Het cytochroom c oxidase / natrium dehydrogenase (COX / SDH) double-labeling methode maakt het mogelijk voor de directe visualisatie van mitochondriale ademhaling enzymdeficiënties in vers ingevroren weefsel secties. Dit is een eenvoudige techniek histochemische en is nuttig bij het onderzoek naar mitochondriële ziekten, veroudering, en veroudering-gerelateerde aandoeningen.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Visualisatie van Mitochondriale respiratoire functie met behulp van cytochroom C Oxidase / succinaat dehydrogenase (COX / SDH) Double-labeling Histochemistry
In dit artikel
Samenvatting
Samenvatting
Mitochondriaal DNA (mtDNA) defecten zijn een belangrijke oorzaak van de ziekte en kunnen ten grondslag liggen aan veroudering en veroudering gerelateerde veranderingen 1,2. De mitochondriale theorie van veroudering suggereert een rol voor mtDNA mutaties, die bio-energetica homeostase en cellulaire functie kan, veranderen in het verouderingsproces 3. Een schat aan bewijs is samengesteld ter ondersteuning van deze theorie 1,4, een voorbeeld hiervan is het mtDNA mutator muis 5, maar de precieze rol van mtDNA schade bij veroudering is het niet helemaal begrepen 6,7.
Het observeren van de activiteit van de respiratoire enzymen is een rechttoe rechtaan aanpak voor het onderzoeken van mitochondriale dysfunctie. Complex IV, of cytochroom c oxidase (COX), is essentieel voor mitochondriale functie. De katalytische subeenheden van COX worden gecodeerd door mtDNA en zijn essentieel voor de montage van het complex (figuur 1). Zo zijn een goede synthese en functie grotendeels gebaseerd op mtDNA integriteit 2.Hoewel andere respiratoire complexen kon worden onderzocht, complexen IV en II zijn het meest vatbaar voor histochemische onderzoeken 8,9. Complex II, of succinaat dehydrogenase (SDH), wordt volledig gecodeerd door nucleair DNA (figuur 1), en de activiteit is meestal niet beïnvloed door een verminderde mtDNA, maar een verhoging zou kunnen mitochondriale biogenese 10-12 aan te geven. De verminderde mtDNA waargenomen in mitochondriale ziekten, veroudering, en leeftijd gerelateerde ziekten leidt vaak tot de aanwezigheid van cellen met een lage of afwezige activiteit van COX 2,12-14. Hoewel de COX-en SDH-activiteiten kunnen individueel worden onderzocht, heeft de sequentiële dubbele labeling methode 15,16 bleek gunstig zijn in de plaatsbepaling van cellen met mitochondriale dysfunctie 12,17-21.
Veel van de optimale grondwetten van de test zijn bepaald, zoals de substraat concentratie, elektronen acceptoren / donateurs, tussentijdse elektronen dragers, invloed van pH, en de reactie time 9,22,23. 3,3 '-diaminobenzidine (DAB) is een effectieve en betrouwbare elektron donor 22. In cellen met functioneren COX, zal de bruine indamine polymeer product te lokaliseren in het mitochondriaal cristae en verzadigen cellen 22. Die cellen met disfunctionele COX zal daarom niet worden verzadigd door de DAB-product, waardoor voor de visualisatie van de SDH-activiteit door vermindering van nitroblauw tetrazolium (NBT), een elektron acceptor, een blauwe formazanproduct eindproduct 9,24. Cytochroom c en natrium succinaat substraten worden toegevoegd aan endogene niveaus tussen controle en zieke / mutant weefsels 9 normaliseren. Catalase wordt toegevoegd als een voorzorgsmaatregel om mogelijke vervuilende reacties van peroxidase-activiteit 9,22 te vermijden. Fenazine methosulfaat (PMS), een tussentijdse elektron drager, wordt gebruikt in combinatie met natrium azide, een ademhalingsketen-remmer, tot de vorming van de uiteindelijke reactieproducten 9,25 te verhogen. Ondanks deze op de hoogteatie, enkele kritische details die het resultaat van deze betamelijk eenvoudige test, in aanvulling op specificiteit controles en de vooruitgang in de techniek, zijn nog niet gepresenteerd.
Protocol
1. Weefsel voorbereiding voor cryosectioning
- Offer het dier door een van beide cervicale dislocatie of onthoofding, in overeenstemming met de beschikbare ethisch mogelijk te maken.
- Snel verzamelen weefsels van belang (bv. Hersenen), en snel bevriezen op droog ijs (weefsels kan bevriezen in isopentaan of propaan gekoeld met vloeibare stikstof om een optimale morfologie verkrijgen vereisen). Bewaar weefsels in aluminiumfolie bij -80 ° C tot klaar sectie.
- Insluiten bevroren weefsel als voorbereiding op cryosectioning.
- Verzamel 14-um cryostaatcoupes bij -21 ° C (kan nodig zijn om temperatuur aan te passen ± 1-2 ° C). Dooi secties op dia's met behulp van verwarming blokkeren, en op te slaan zonder dia's afdekken bij -20 ° C tot klaar voor gebruik.
2. COX histochemie
- Laat dia's op kamertemperatuur drogen gedurende 1 uur. Zet dia's in een slide-kleuring kamer met natte filter papier, in reepjes gesneden. Voor het verkrijgen van consistent resultaten in elk experiment, is het raadzaam om een maximum van tien dia's per experiment proces om vertragingen te minimaliseren.
- Bereid onder een chemische motorkap 1x DAB, 100 uM cytochroom c in 0,1 M PBS pH = 7,0. Vortex snel.
- Voeg 2 ug runderen catalase (2 pg ml -1 of ongeveer 4 IU ml -1). Meng goed door vortexen te breken alle korrels van catalase.
- Van toepassing zijn 150 tot 200 ul van incubatiemedium aan elke dia, gebruik pipettip gelijkmatig op alle onderdelen te verspreiden.
- Incubeer de glaasjes gedurende 40 minuten bij 37 ° C.
- Verwijder overtollige oplossing van de dia's. Was de dia's 4 keer, 10 minuten per keer, in 0,1 M PBS pH = 7,0.
- Keer terug dia naar dia-kleuring kamer met nat papier strips.
3. SDH histochemie
- Bereid onder een chemische motorkap 1,5 mM NBT, 130 mM natrium-succinaat, 0,2 mM PMS, en 1,0 mM natriumazide in 0,1 M PBS pH = 7,0. Neem voorzichtig om het schild tePMS tegen licht. Vortex snel.
- Toe te passen 150-200 pi van incubatiemedium aan elke dia, gebruik pipettip gelijkmatig op alle onderdelen te verspreiden.
- Incubeer de glaasjes gedurende 40 minuten bij 37 ° C.
- Verwijder overtollige oplossing van de dia's. Was de dia's 4 keer, 10 minuten per keer, in 0,1 M PBS pH = 7,0.
- Uitdrogen van de dia's voor 2 minuten in de volgende concentraties van ethanol: 70%, 70%, 95%, 95%, 99,5%. Laat vervolgens 10 minuten in een extra 99,5% stap.
- Plaats de glaasjes in xyleen gedurende 10 minuten. Houder met Entellan en dekglaasje aan. Laat de dia's naar 's nachts, of ten minste 1-2 uur drogen in een geventileerde ruimte.
4. Bepaling van de mitochondriale dysfunctie
- De hoogte van mitochondriale dysfunctie wordt aangegeven door de hoeveelheid van cellulaire blauwe vlekken. Naar semi-kwantificeren deze bedragen, moet dia's worden gecodeerd en gevisualiseerd onder bright-field microscopie. Semi-kwantificering moeten worden uitgevoerd op een blinde basis met behulp van een schaal, bijvoorbeeld 0-4 (0, geen blauwe vlekken, 4, alleen blauwe vlekken). Het is het beste om dit soort van semi-kwantificering uit te voeren op verschillende secties van een bepaald onderwerp / dier aan een gemiddelde waarde voor elk vak / dier te berekenen.
- Statistieken moeten worden uitgevoerd met behulp van een non-parametrische test, zoals Mann-Whitney of Kruskal-Wallis.
5. Juiste specificiteit controles
- Voor de specificiteit controles voor COX-activiteit, herhalen "COX histochemie" stappen, en voeg 2,5 mM natriumazide, een terminal ademhalingsketen-remmer.
- Voor de specificiteit controles voor SDH-activiteit, herhalen "SDH histochemie 'stappen met de verwijdering van natrium succinaat en de toevoeging van 50 mM malonaat, een competitieve remmer van SDH.
- Wassen en drogen afdelingen in een ethanol-serie, en dan monteren en dekglaasje de dia's zoals beschreven in stappen 3,4 tot 3,6.
6. Representatieve resultaten:
tent "> De algemene regeling van de COX / SDH dubbel-labeling histochemische test wordt geïllustreerd in figuur 2. Representatieve voorbeelden van geschikte COX / SDH dubbele etikettering histochemie in de hersenen secties van wild-type en voortijdig verouderen mtDNA mutator muizen zijn weergegeven in figuur 3. De donkere bruine vlekken in wild-type muizen (Figuur 3, links paneel) toonde normale COX-activiteit. Cellen met ademhalingsketen deficiënties, aangegeven door de blauwe kleuring, werden geopenbaard in 12 weken oude mtDNA mutator muizen, en deze tekortkomingen werden meer verspreid als mtDNA mutator muizen de leeftijd tot 46 weken (Figuur 3, midden en rechter paneel).Voorbeelden van ongepaste COX / SDH dubbel-labeling in de hersenen secties van wild-type muizen als gevolg van onvoldoende COX etikettering zijn weergegeven in figuur 4. Onvoldoende incubatietijd voor de demonstratie van COX-activiteit, of het verminderen van de beschikbaarheid van moleculaire zuurstof door het afdekken van de slide tijdens de incubatie, resulteerde in een verminderde afzetting van de DAB reagerenion product, en dus toegestaan voor de vorming van de blauwe formazan eindproduct tijdens de SDH-incubatie.
COX-en SDH-activiteiten kunnen ook afzonderlijk worden onderzocht (Figuur 5, links en midden), maar de sequentiële etikettering is nuttig in het identificeren van cellen met COX tekortkomingen, te wijten aan de vorming van de blauwe neerslag tijdens de SDH-incubatie (Figuur 3, centrum en rechts). Specificiteit controles voor COX-en SDH-activiteiten kan ook worden gedaan (Figuur 5, rechts).
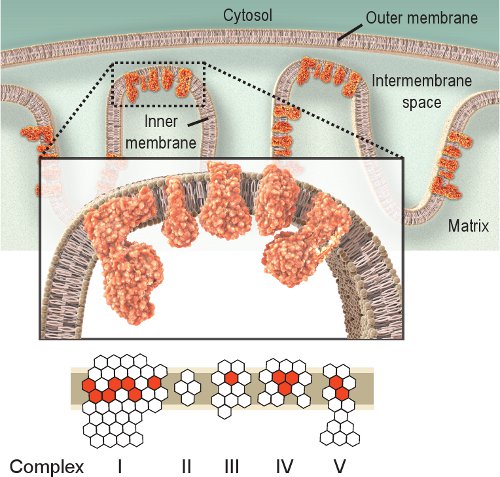
Figuur 1. Mitochondriale luchtwegen Complexen IV. De mitochondriale ademhalingsketen is gelegen binnen de binnenste membraan en omvat vijf complexen. Het doel van de ademhalingsketen is om elektronen transport van Complex I tot en met IV en zo ontstaat er een proton gradient over het binnenste membraan wordt gebruikt door Complex V (ATPase) om ATP te produceren. Rood zeshoeken represent subeenheden gecodeerd door mtDNA. Witte zeshoeken vertegenwoordigen subeenheden gecodeerd door nucleair DNA (Merk op dat complexe II volledig is gecodeerd in het nucleaire genoom). Zo kan mutaties in het mitochondriaal genoom oorzaak disfunctioneren van de respiratoire keten als gevolg van mutaties in de subeenheden van de ademhalingsketen-complexen.
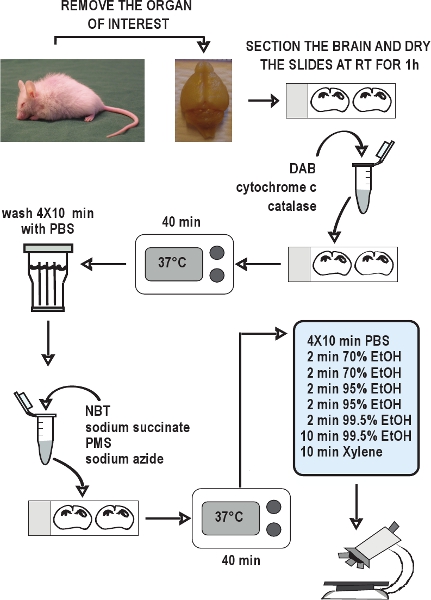
Figuur 2. Stroomschema van de COX / SDH dubbel-labeling histochemische assay. Ontleden de organen van belang, snel bevriezen van de weefsels op droog ijs, en bewaar ze bij - 80 ° C. Verzamel cryostaat secties en te houden bij - 20 ° C tot gebruik. Laat secties aan de lucht drogen bij kamertemperatuur gedurende 1 uur. Bereid de incubatie medium voor COX histochemie, toepassen op de dia's, en gedurende 40 minuten bij 37 ° C. incubeer Was de secties in PBS 4 keer gedurende 10 minuten elke wasbeurt. Bereid de incubatie medium voor SDH histochemie, toepassen op de slides, en opnieuw incubeer gedurende 40 minuten bij 37 ° C. Was weer de secties in PBS, gedehydreerd in een ethanol-serie, en dan monteren en dekglaasje de dia's. De COX / SDH dubbel-gelabeld secties zijn klaar om onder bright-field microscopie te bekijken binnen 1-2 uur.

Figuur 3. Representatieve voorbeelden van COX / SDH double-labeling. Brain secties van wild-type en voortijdig verouderen mtDNA mutator muizen werden opeenvolgend gelabeld voor COX-en SDH-activiteiten. (Schaal bar:. 200 pm) Normaal COX-activiteit (aangegeven door een donker bruine kleur), werd aangetoond in de hippocampus van de wild-type muizen (links). COX tekortkomingen (aangegeven met blauw) werden geopenbaard in de hippocampus van mtDNA mutator muizen (midden en rechts). Er was een verdere daling van COX-activiteit door 46 weken oud in mtDNA mutator muizen, wat suggereert wijdverspreide verergering van de respiratoire keten dysfunctie. De waargenomen mitochondrial dysfunctie in mtDNA mutator muizen 12 wordt veroorzaakt door een hoge mate van mtDNA puntmutaties evenals verhoogde niveaus van lineaire verwijderingen 5.

Figuur 4. Voorbeelden van ongepaste COX / SDH double-labeling. Brain secties van wild-type muizen werden opeenvolgend gelabeld voor COX-en SDH-activiteiten. (Schaal bar:. 200 pm) Onvoldoende incubatietijd (10 en 25 minuten) voor de demonstratie van de COX activiteit resulteerde in een verminderde afzetting van de bruine DAB reactie product, in vergelijking met de 40-minuten incubatietijd (links en midden). De verkorte incubatietijden toegestaan voor de vorming van de blauwe formazan eindproduct tijdens de SDH incubatie, misleidende suggereert de aanwezigheid van cellen met COX tekortkomingen. Het afdekken van de dia's tijdens de COX incubatie resulteerde ook in onjuiste vorming en afzetting van de DAB reagerenion product (rechts).
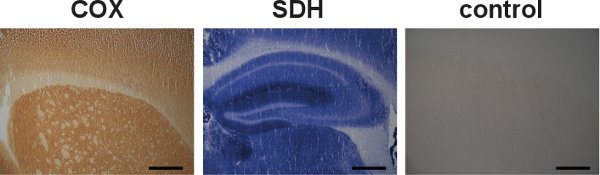
Figuur 5. Ik NDIVIDUELE COX-en SDH-etikettering en de specificiteit controle. Brain secties van wild-type muizen werden apart gelabeld voor COX-en SDH-activiteiten, wordt aangegeven door de donkerbruine kleur en de blauwe kleur, respectievelijk (links en midden). Hoewel de COX-en SDH-activiteiten kunnen individueel worden gemerkt, is de sequentiële etikettering bleek voordelig is in de plaatsbepaling van cellen met mitochondriale dysfunctie. Een voorbeeld van een specificiteit controle voor COX-en SDH-activiteiten in de hersenen van een wild-type muis gaf een afwezigheid van etikettering (rechts). (Schaal bar:. 200 pm)
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
De gecombineerde COX / SDH histochemische methode kan de visualisatie van cellen met mitochondriale dysfunctie. Deze techniek, met vroege studies die teruggaat tot 1968, blijft populair, met vele overweegt het de "gouden standaard" voor het identificeren van mitochondriale ziekten bij patiënten 14,19,26,27. Het is nu vaak gebruikt om mtDNA mutatie-driven veroudering en veroudering-gerelateerde aandoeningen 12,13,18,20,21,24 te onderzoeken. De COX / SDH dubbel-labeling methode wordt vaak g...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
Geen belangenconflicten verklaard.
Dankbetuigingen
Dit werk werd ondersteund door het National Institute of Aging (AG04418), National Institute on Drug Abuse, National Institute of Health-Karolinska Institutet Graduate Partnerships Program, Karolinska Institutet, Zweeds Research Council, de Zweedse Brain Power, en Zweeds Hersenstichting. Veel dank aan Mattias Karlen en dr. Giuseppe Coppotelli voor creatieve ondersteuning bij figuur 1 en 2, respectievelijk; Karin Pernold voor technische bijstand, en Drs. Barry J. Hoffer, Lars Olson, en Nils-Göran Larsson voor veel nuttige adviezen en discussie.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam van het reagens | Vennootschap | Catalogus nummer | Commentaar (optioneel) |
| Dry Ice | AGA Gas AB | blokvorm | |
| Isopentaan (2-methylbutaan) | Sigma-Aldrich | 277258 CAS: 78-78-4 | |
| Cyrostat inbedding oplossing | Sakura Finetek | Tissue Tek 4583 | |
| Cryostaat | Microm | Microm Model HM 500M | |
| Dia's | Thermo Scientific | Super Frost Plus Menzel Glaser J1800AMWZ | |
| Dekglaasjes Borosilicaatglas | VWR International | 16004-098 | 24 x 50 mm |
| Filtreerpapier | Munktell Filter AB | Kwaliteit: 1350 ArtikelNummer: 242 001 | 430 x 430 mm |
| 3,3 '-diaminobenzidine tetrahydrochloride (DAB) | Sigma-Aldrich | Sigma Liquid Substrate System, D7304 | |
| Cytochroom c (Type III, van paarden hart) | Sigma-Aldrich | C2506 CAS: 9007-43-6 | |
| Runderen catalase (uit de lever) | Sigma-Aldrich | C9322 CAS: 9001-05-2 | |
| Nitroblauw tetrazolium (NBT) | Sigma-Aldrich | N6876 CAS: 298-83-9 | |
| Natrium succinaat | Sigma-Aldrich | S2378 CAS: 6106-21-4 | |
| Fenazine methosulfaat (PMS) | Sigma-Aldrich | P9625 CAS: 299-11-6 | PMS is licht gevoelig. Schild tegen licht. |
| Natriumazide | Sigma-Aldrich | S8032 CAS: 26628-22-8 | |
| Xyleen | VWR International | EM-XX0060-4 | |
| Entellan | VWR International | 100503-870 | |
| Malonaat (Malonzuur) | Sigma-Aldrich | M1296 CAS: 141-82-2 |
Referenties
- Larsson, N. G. Somatic mitochondrial DNA mutations in mammalian aging. Annu. Rev. Biochem. 79, 683-706 (2010).
- Cottrell, D. A. Role of mitochondrial DNA mutations in disease and aging. Ann. NY Acad. Sci. 908, 199-207 (2000).
- Harman, D. The biologic clock: the mitochondria. J. Am. Geriatr. Soc. 20, 145-147 (1972).
- Wallace, D. C. Mitochondrial genetics - a paradigm for aging and degenerative diseases. Science. 256, 628-632 (1992).
- Trifunovic, A. Premature ageing in mice expressing defective mitochondrial DNA polymerase. Nature. 429, 417-423 (2004).
- Ameur, A. Ultra-deep sequencing of mouse mitochondrial DNA: mutational patterns and their origins. PLoS Genet. 7, e1002028-e1002028 (2011).
- Safdar, A. Endurance exercise rescues progeroid aging and induces systemic mitochondrial rejuvenation in mtDNA mutator mice. Proc. Natl. Acad. Sci. U. S. A. 108, 4135-4140 (2011).
- DiMauro, S., Bonilla, E., Zeviani, M., Nakagawa, M., DeVivo, D. C. Mitochondrial myopathies. Ann. Neurol. 17, 521-538 (1985).
- Old, S. L., Johnson, M. A. Methods of microphotometric assay of succinate dehydrogenase and cytochrome c oxidase activities for use on human skeletal muscle. Histochem. J. 21, 545-555 (1989).
- Chaturvedi, R. K. Impaired PGC-1alpha function in muscle in Huntington's disease. Hum. Mol. Genet. 18, 3048-3065 (2009).
- Edgar, D. Random point mutations with major effects on protein-coding genes are the driving force behind premature aging in mtDNA mutator mice. Cell. Metab. 10, 131-138 (2009).
- Ross, J. M. High brain lactate is a hallmark of aging and caused by a shift in the lactate dehydrogenase A/B ratio. Proc. Natl. Acad. Sci. U. S. A. 107, 20087-20092 (2010).
- Crugnola, V. Mitochondrial respiratory chain dysfunction in muscle from patients with amyotrophic lateral sclerosis. Arch. Neurol. 67, 849-854 (2010).
- Nonaka, I. Muscle pathology in cytochrome c oxidase deficiency. Acta. Neuropathol. 77, 152-160 (1988).
- DiMauro, S. Mitochondrial encephalomyopathies. Neurol. Clin. 8, 483-506 (1990).
- Bonilla, E. New morphological approaches to the study of mitochondrial encephalomyopathies. Brain. Pathol. 2, 113-119 (1992).
- Brierley, E. J., Johnson, M. A., Lightowlers, R. N., James, O. F., Turnbull, D. M. Role of mitochondrial DNA mutations in human aging: implications for the central nervous system and muscle. Ann. Neurol. 43, 217-223 (1998).
- Borthwick, G. M., Johnson, M. A., Ince, P. G., Shaw, P. J., Turnbull, D. M. Mitochondrial enzyme activity in amyotrophic lateral sclerosis: implications for the role of mitochondria in neuronal cell death. Ann. Neurol. 46, 787-790 (1999).
- Gellerich, F. N. Mitochondrial respiratory rates and activities of respiratory chain complexes correlate linearly with heteroplasmy of deleted mtDNA without threshold and independently of deletion size. Biochim. Biophys. Acta. 1556, 41-52 (2002).
- Larsson, N. G. Mitochondrial transcription factor A is necessary for mtDNA maintenance and embryogenesis in mice. Nat. Genet. 18, 231-236 (1998).
- Ekstrand, M. I. Progressive parkinsonism in mice with respiratory-chain-deficient dopamine neurons. Proc. Natl. Acad. Sci. U. S. A. 104, 1325-1330 (2007).
- Seligman, A. M., Karnovsky, M. J., Wasserkrug, H. L., Hanker, J. S. Nondroplet ultrastructural demonstration of cytochrome oxidase activity with a polymerizing osmiophilic reagent, diaminobenzidine (DAB). J. Cell. Biol. 38, 1-14 (1968).
- Dubowitz, V., Brooke, M. Muscle Biopsy: A Modern Approach. , Saunders. (1973).
- Cottrell, D. A. Cytochrome c oxidase deficient cells accumulate in the hippocampus and choroid plexus with age. Neurobiol. Aging. 22, 265-272 (2001).
- Blanco, C. E., Sieck, G. C., Edgerton, V. R. Quantitative histochemical determination of succinic dehydrogenase activity in skeletal muscle fibres. Histochem. J. 20, 230-243 (1988).
- Moraes, C. T., Ricci, E., Bonilla, E., DiMauro, S., Schon, E. A. The mitochondrial tRNA(Leu(UUR)) mutation in mitochondrial encephalomyopathy, lactic acidosis, and strokelike episodes (MELAS): genetic, biochemical, and morphological correlations in skeletal muscle. Am. J. Hum. Genet. 50, 934-949 (1992).
- Petruzzella, V. Extremely high levels of mutant mtDNAs co-localize with cytochrome c oxidase-negative ragged-red fibers in patients harboring a point mutation at nt 3243. Hum. Mol. Genet. 3, 449-454 (1994).
- Tulinius, M. H., Holme, E., Kristiansson, B., Larsson, N. G., Oldfors, A. Mitochondrial encephalomyopathies in childhood. I. Biochemical and morphologic investigations. J. Pediatr. 119, 242-250 (1991).
- Haas, R. H. The in-depth evaluation of suspected mitochondrial disease. Mol. Genet. Metab. 94, 16-37 (2008).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
