De niveaus van het ontstekingssignaalmolecuul stikstofmonoxide (NO) worden gewoonlijk gemeten met behulp van Griess reagens. In dit protocol hebben we een aangepaste Griess-test gemaakt die gebruik maakt van levend Drosophila hersenweefsel om de afscheiding van NO op een eenvoudige, meetbare en zeer herhaalbare manier te detecteren.
Methodenartikel
Nieuwe kwantitatieve analyse van het gehele weefsel van stikstofmonoxideniveaus bij de Drosophila neuro-inflammatoire respons
In dit artikel
Samenvatting
Samenvatting
Neuro-inflammatie is een complexe aangeboren immuunrespons die essentieel is voor de gezonde werking van het centrale zenuwstelsel (CZS). Onder normale omstandigheden reageert een ingewikkeld netwerk van inducers, detectoren en activators snel op schade aan neuronen, infecties of andere immuuninbreuken. Deze ontsteking van immuuncellen is nauw verbonden met de pathologie van neurodegeneratieve aandoeningen, zoals de ziekte van Parkinson (PD), de ziekte van Alzheimer en ALS. Onder gecompromitteerde ziektetoestanden kan chronische ontsteking, bedoeld om schade aan neuronen te minimaliseren, leiden tot een overmatige excitatie van de immuuncellen, wat uiteindelijk resulteert in de verergering van de ziekteprogressie. Bijvoorbeeld, het verlies van dopaminerge neuronen in de middenhersenen, een kenmerk van PD, wordt versneld door de overmatige activering van de ontstekingsreactie. Hoewel de oorzaak van PD grotendeels onbekend is, is blootstelling aan omgevingsgifstoffen geïmpliceerd in het ontstaan van sporadische gevallen. Het herbicide paraquat bijvoorbeeld, is aangetoond om Parkinson-achtige pathologie te induceren in verschillende diermodellen, inclusief Drosophila melanogaster. Hier hebben we de geconserveerde aangeboren immuunrespons in Drosophila gebruikt om een test te ontwikkelen die in staat is om verschillende niveaus van stikstofmonoxide te detecteren, een celsignaleringsmolecuul dat cruciaal is voor de activering van de ontstekingsresponscascade en gerichte neurondood. Met behulp van paraquat-geïnduceerde neuronale schade beoordelen we de impact van deze immuuninsulten op neuroinflammatoire stimulatie door gebruik te maken van een nieuwe, kwantitatieve test. Hele hersenen worden volledig geëxtraheerd uit vliegen die zijn blootgesteld aan neurotoxinen of van genotypen die de gevoeligheid voor neurodegeneratie verhogen, en vervolgens geïncubeerd in celcultuurmedium. Vervolgens, door gebruik te maken van de principes van de Griess-reagensreactie, zijn we in staat om kleine veranderingen in de secretie van stikstofmonoxide in celcultuurmedium te detecteren, waardoor in wezen een primaire live-weefselmodel wordt gecreëerd in een eenvoudige procedure. De bruikbaarheid van dit model wordt versterkt door de robuuste genetische en moleculaire complexiteit van Drosophila melanogaster, en deze test kan worden aangepast om toepasbaar te zijn op andere Drosophila weefsels of zelfs andere kleine, volledige organisme-ontstekingsmodellen.
Inleiding
Neuro-inflammatie is een ingewikkelde immuunrespons waarvan is aangetoond dat deze nauw verbonden is met de pathologie van een breed scala aan ziekten, waarvan de meerderheid neurodegeneratieve aandoeningen zijn. Onder basale omstandigheden handhaaft dit veelzijdige netwerk van rondtrekkende immuuncellen de weefselgezondheid door zijn snelle respons op infectie, plaques of verwondingen1,2. Een neuro-inflammatoire respons door het centrale zenuwstelsel van zoogdieren kan worden veroorzaakt door kleine beschadigingen, zoals cellulaire oxidatieve stress geassocieerd met normaal verouderen, of grote aanvallen, zoals neuronbeschadiging als gevolg van acute blootstelling aan een chemische toxine. Wanneer deze inductie optreedt, worden fagocytische bewakingscellen, bekend als microglia, geactiveerd en migreren naar de plaats van neuronale celbeschadiging. Deze scavenger-achtige immuuncellen, die vergelijkbaar zijn met macrofagen die in de periferie bestaan, starten vervolgens een geavanceerde signaalcascade met de beschadigde neuron, evenals met astrocyten, ondersteunende gliacellen die naast microglia werken voor de typisch robuuste microgliale respons3-7. Eenmaal geactiveerd, beginnen de microglia een ontstekingsproces om het immuunsysteem te stimuleren en weefselreparatie te bevorderen1,8.
Onder omstandigheden van aanhoudende beschadiging, zoals bij neurodegeneratieve ziekten zoals de ziekte van Parkinson (PD), de ziekte van Alzheimer en amyotrofe laterale sclerose, veroorzaakt chronische ontsteking ook significante schade aan gezond weefsel. Recente studies hebben aangetoond dat deze aanhoudende, agressieve respons van het immuunsysteem in feite kan leiden tot een overmatige reactie die de ziektetoestand verergert in plaats van de toestand te verbeteren9-11.
In Drosophila melanogaster, is de aangeboren immuunrespons genetisch goed bewaard gebleven. Hoewel het een echt adaptief immuunnetwerk mist, Drosophila behoudt een geavanceerd aangeboren immuunsysteem dat een klasse fagocyten bevat die hemocellen worden genoemd. Deze immuuncellen zijn eerder geïdentificeerd als macrofaag-achtige cellen die migreren naar de plaats van verwonding12,13, en ondergaan fagocytose tijdens septische shock14, introductie van een parasiet15, of virale infectie16.
Belangrijk is dat, net als bij zoogdiermacrofagen, fagocytische hemocellen stikstofmonoxidesynthase (NOS) tot expressie brengen en stikstofmonoxide (NO) produceren, een kritische signaalcomponent van Drosophila immuniteit15,16. Al deze studies hebben echter alleen het hemocyt-respons kunnen aantonen tijdens embryonale ontwikkeling en in larven.
Ons lab heeft een robuuste, hemocyt-gemedieerde neuro-inflammatie waargenomen in volwassen hersenen van Drosophila, een eerder onbekend fenomeen17. Deze respons werd geïnduceerd door blootstelling aan de toxische stof paraquat. Epidemiologische studies door de National Institutes of Health hebben de veelgebruikte herbicide geïdentificeerd als een potentiële risicofactor bij het ontstaan van PD bij mensen18. Onderzoek naar paraquat-behandeling in zoogdiermodellen had de neurotoxische eigenschappen al gevalideerd en had aangetoond dat de herbicide Parkinson-achtige symptomen veroorzaakt, zoals motorische afwijkingen en selectieve neuronverlies19-21. In Drosophila, leidt behandeling met paraquat tot een breed scala aan Parkinson-gedragsfenotypen evenals dopaminerge neurondood consistent met PD-pathologie22. Hoewel de mechanismen en genetische factoren die geassocieerd zijn met deze neuro-inflammatoire respons in Drosophila nog niet volledig zijn opgehelderd, hebben we een geconserveerde inductie van NOS waargenomen tijdens neurodegeneratie.
Met behulp van deze methode hebben we bovendien een vergelijkbare, zij het minder dramatische, neuro-inflammatoire respons gedetecteerd met behulp van mutante genotypen met bekende neurotoxische gevoeligheid. Gecodeerd door het gen Punch, is GTP cyclohydrolase het eerste en snelheidsbepalende eiwit in de biosynthese van BH4, die vervolgens dient als een noodzakelijke cofactor voor NOS23,24. De verlies-van-functie mutatie PuZ22 veroorzaakt een afname in de inflammatoire respons en verhoogde vatbaarheid voor paraquat25. Met dit protocol waren we in staat om relatief subtiele modificaties van stikstofmonoxideniveaus geïnduceerd door deze genetische variatie te kwantificeren.
Om NO in onze monsters te detecteren, gebruiken we Griess reagens, een wijd geaccepteerde colorimetrische methode voor het meten van NO-niveaus. Dit reagens meet indirect de relatieve NO-overvloed door het detecteren van de aanwezigheid van nitrieten, een van de twee eindproducten van stikstofmonoxideproductie. De bestaande nitrietdetectieprotocollen met behulp van Griess reagens zijn voornamelijk toegepast voor in vitro analyses of in celcultuur, waar NO in het kweekmedium diffundeert. We hebben aanvankelijk een Griess reagens-gebaseerde methode ontwikkeld voor het detecteren van NOS in ruwe Drosophila hoofdhomogenaten25. We hebben echter gevonden dat deze methode enigszins variabel is onder veranderde omstandigheden, vermoedelijk vanwege de instabiliteit, hoge reactiviteit en lage relatieve concentratie van NO in gehele kopweefsels. Daarom hebben we geprobeerd een methode te ontwikkelen op basis van celcultuurprotocollen die een grotere gevoeligheid en betrouwbaarheid zou bieden bij het kwantificeren van NOS-activiteit. Hier beschrijven we een methode die conceptueel vergelijkbaar is met een eerder gebruikte methode om NOS te detecteren in Drosophila larvale Malpighische buizen26. In deze procedure gebruiken we hele hersenen die onmiddellijk werden gedisseerd na een behandeling met toxine om de inflammatoire respons te induceren. Vervolgens hebben we
Protocol
1. Paraquat Exposure
- Bewaar de culturen van de testvliegen op standaard Drosophila kweekmedium bij 25 °C onder equivalente kweekdichtheden bestaande uit ongeveer 35 vrouwtjes en 15 mannetjes.
- Om voedingskamers voor te bereiden, plaats een kleine hoeveelheid absorberende katoen op de bodem van een lege buis met filterpapier direct boven de katoen.
- Verdoofd volwassen mannetjesvliegen 3-5 dagen na uitkomst met koude coma of CO2. Voor de hier beschreven experimenten, gebruik mannetjes van genotype y w1118.
- Voor scheiding door koude coma, tik voedingsbuizen met vliegen naar beneden en verwijder vervolgens snel de stopper en breng vliegen direct over in een schone, lege buis, zorg ervoor dat u goed labelt.
- Zodra vliegen met succes zijn overgebracht naar lege voedingsbuizen, tik de buizen naar beneden en plaats deze onmiddellijk gedurende 5 min in een ijskast of tot de vliegen knock-out zijn.
Opmerking: Dompel de buis niet volledig in ijs. Dit kan ervoor zorgen dat er water of vocht in de buis komt en de vliegen verdrinken. Als extra voorzorgsmaatregel, gebruik vers ijs in plaats van gesmolten ijs in ijsbakken.
Opmerking: Besteed aandacht aan het aantal vliegen dat nodig is voor elke test en voeg, wanneer mogelijk, extra vliegen toe aan elke groep als voorzorgsmaatregel in het geval van menselijke fouten, bijv. vliegen die ontsnappen tijdens het voeren of overbrengen. De nitric oxide detectietest vereist bijvoorbeeld 20 vlieg-hersenen per steekproefset, dus houd rekening met het vaardigheid- en efficiëntieniveau van de dissectie bij het voeren (d.w.z. novices moeten meer dan 20 vliegen instellen in geval van fouten bij het overbrengen of de dissectie).
- Zodra de vliegen verdoofd zijn, breng elke groep over in de overeenkomstige voedingsbuis zoals hierboven voorbereid.
- Nadat de vliegen volledig wakker zijn in voedingsbuizen, honger ze gedurende 1,5 uur en bereid ondertussen de hieronder beschreven oplossingen voor:
- Bereid een voorraadoplossing van 5% sucrose (controleoplossing) voor door 5 g sucrose toe te voegen in 100 ml dubbel-gedestilleerd water. Roer tot het volledig is opgelost en bewaar bij 4 °C.
Opmerking: Gebruik 5% sucrose voorraadoplossing als oplosmiddel voor alle daaropvolgende voedingsoplossingen. - Bereid een 10 mM paraquat voorraadoplossing voor met 5% sucrose als verdunningsmiddel en bewaar bij 4 °C. Bereid alle andere concentraties voor met seriële verdunningen zoals nodig.
VOORSICHT: PARAQUAT IS UITERST TOXISCH. RAADGEZOEGD HET MSDS VOOR VEILIGHEIDSRICHTLIJNEN EN JUISTE BESCHERMING/VERWERVING. - Bereid 10 mM voorraadoplossingen van N-Nitro-L-arginine methyl ester hydrochloride (L-NAME), N-nitro-D-arginine methyl ester hydrochloride (D-NAME) met 5% sucrose als verdunningsmiddel en bewaar bij 4 °C. Voor het samen incuberen van L-NAME of D-NAME met paraquat, geeft u elk compound in een 1:1 verhouding met paraquat concentratie. Bereid alle andere concentraties voor met seriële verdunningen zoals nodig.
Opmerking: Filter alle oplossingen direct na bereiding. Paraquat, D-NAME en L-NAME voorraden moeten binnen een week na bereiding worden gebruikt om experimentele consistentie te garanderen. - Pipet 150 μl per dag (of minder, afhankelijk van de voedingsduur) van de voedingsoplossing op het filterpapier, zorgvuldig om vliegen niet te verdrinken of te laten ontsnappen.
- Bereid een voorraadoplossing van 5% sucrose (controleoplossing) voor door 5 g sucrose toe te voegen in 100 ml dubbel-gedestilleerd water. Roer tot het volledig is opgelost en bewaar bij 4 °C.
2. Overleving/Mortaliteitstest
- Stel voedingskamers in zoals eerder beschreven.
Opmerking: Gebruik ten minste 3 lagen filterpapier per buis om uitdroging te voorkomen. - Plaats 10 mannetjesvliegen 3-5 dagen na uitkomst in elke buis en voer zoals hierboven aangegeven, wees voorzichtig om het filterpapier niet te laten uitdrogen gedurende de nacht.
Opmerking: Houd de buizen op kamertemperatuur, uit de directe zon om versnelde verdamping van oplossingen te voorkomen. - Begin de volgende dag (aangeduid als "Dag 1") met het tellen van het aantal dode vliegen per buis twee keer per dag gedurende 10 opeenvolgende dagen.
Opmerking: Reguleer zowel de score als het voeren naar specifieke uren elke dag om variatie te verminderen en hogere consistentie te bieden. - Bereken de gemiddelde overleving met ten minste drie onafhankelijke replica's van alle groepen.
3. Dissectie van volwassen vlieg-hersenen en incubatie
- Voor de dissecties, pipet 50 μl van Grace's Insect Medium in het juiste aantal putjes (één putje voor elke steekproefset + één voor de "leeg"/controle) in een 96-wells microtiterplaat en label gepast. Bedek met plaatdeksel tot gebruik.
Opmerking: Alternatief kunnen ook steriele centrifugebuizen worden gebruikt indien gewenst. - Verdoof vliegen van één steekproefset met koude coma zoals beschreven in stappen 1.3.1-1.3.2.
- Zodra de vliegen volledig verdoofd zijn, plaats enkele vliegen op een microscoopglasplaat
Opmerking: Begin met een kleine subset vliegen als u niet ervaren bent met dissecties. - Onthoofd de vliegen onder een dissectiemicroscoop met behulp van pincetten en een chirurgisch mes of twee pin
Resultaten
In talrijke diermodellen, zoals muizen19, ratten20 en fruitvliegen22, is aangetoond dat paraquat neurologische degeneratie induceert die consistent is met een ziektebeeld dat lijkt op de ziekte van Parkinson. Wij hebben eerder gerapporteerd dat het ontstekingsremmende antibioticum minocycline, wanneer gelijktijdig met paraquat wordt toegediend, leidt tot een verlengde overleving, een verminderde productie van reactieve zuurstofsoorten en het voorkomen van de dood van dopaminerge neuronen25. Aangezien minocycline ontstekingen onderdrukt, zijn we daarom begonnen met het onderzoeken van NOS, een sleutelprotein bij de activering van de ontstekingsrespons, en de rol hiervan bij het moduleren van paraquattoxiciteit.
Er is een toxiciteitscurve voor paraquat uitgevoerd om een effectieve letale dosis en een toxisch behandelingsbereik vast te stellen, waarbij paraquatconcentraties tussen 1,25 en 10 mM werden gebruikt (Figuur 2A). We hebben ook de effecten van paraquatconcentraties van 20 mM en 40 mM onderzocht, maar stelden vast dat de toxiciteit bij deze hogere concentraties te acuut was om de cellulaire reacties op deze oxidatieve stressor nauwkeurig te beoordelen; daarom hebben we de resultaten voor deze concentraties niet in dit verslag opgenomen. Met behulp van L-NAME, een competitieve NOS-remmer, en D-NAME, het inactieve isomeer van NAME, hebben we volwassen mannelijke vliegen gelijktijdig behandeld met paraquat en een van de NAME-isomeren. Gelijktijdige behandeling van vliegen met paraquat en L-NAME resulteerde in een significante redding van de verkorte levensduur veroorzaakt door paraquatinname, terwijl vliegen die gelijktijdig met paraquat en D-NAME waren behandeld, geen verbetering in overleving vertoonden (Figuur 2B), wat de hypothese ondersteunt dat het onderdrukken van ontsteking via de remming van NOS de overleving van met paraquat behandelde vliegen verbeterde.
Als verdere validatie van een NOS-gemedieerde paraquatrespons hebben we veranderingen in de NOS-proteineniveaus gedetecteerd direct na blootstelling aan paraquat. De NOS-proteineniveaus namen toe op een paraquatconcentratie-afhankelijke wijze (Figuur 3A). Bij het behandelen van vliegen met 10 mM paraquat over blootstellingsduren variërend van 6-30 uur observeerden we een initiële toename, gevolgd door een afname naarmate de blootstellingstijd toenam (Figuur 3B), wat consistent is met de patronen van nitrietniveaus waargenomen in onze variant van de Griess-assay (Figuur 5B). Deze resultaten zijn consistent met onze rapportages dat paraquatbehandeling leidt tot inductie van NOS en dat inhibitie van NOS of behandeling met L-NAME of minocycline gedeeltelijke bescherming biedt17,25.
Figuur 4A demonstreert een lineaire relatie tussen de toename van de paraquatconcentratie en de omvang van de ontstekingsrespons, gedefinieerd door de secretie en detectie van NO. Bij basale niveaus secreteerden heterozygote Punch-mutanten iets lagere niveaus van NO, een variatie die te onbeduidend was om te kunnen bepalen met eerdere detectiemethoden. Wanneer ze paraquat kregen toegediend, werd een uitgesproken toename van de NO-niveaus waargenomen bij de Punch-mutant, hoewel dit significant minder was dan bij de behandelde wildtype vliegen (Figuur 4B). De relatieve waarden van de wildtype en Punch-vliegen kunnen nauwkeurig en reproduceerbaar worden gekwantificeerd, hoewel de variatie bij onbehandelde niveaus buitengewoon subtiel was.
Bij het werken met toxines of chemicaliën is het essentieel om zowel een blootstellingstijdcurve als een concentratiegebaseerde toxiciteitscurve op te stellen, aangezien deze condities de gevoeligheid van de assay drastisch kunnen beïnvloeden. Zo resulteert behandeling met 5 mM paraquat in een maximale NO-detectie na 24 uur blootstelling (Figuur 5A), terwijl blootstelling aan 10 mM paraquat leidde tot een snellere inductie (maximale niveaus na 12 uur), maar ook tot een snellere afname van de activiteit tijdens verlengde blootstelling (Figuur 5B). Hoewel een hogere concentratie met snelle inductie preferabel lijkt, versnelt een gemaximaliseerde respons de sterfte van zowel neuronen als mogelijk hemocyten tot een punt waarop de reproduceerbaarheid problematisch kan worden.
NO-moleculen zijn onstabiel en zeer reactief. Een succesvolle assay moet daarom incubatiecondities bevatten die een optimale balans bieden tussen de voortdurende inductie van NOS en de snelle omzetting van NO. Om de optimale incubatiecondities te bepalen, hebben we het effect beoordeeld van de tijd dat gedissekeerde hersenen werden geïncubeerd in het cultuurmedium voordat het Griess-reagens werd toegevoegd. We stelden vast dat een incubatie van 6 uur bij kamertemperatuur leidde tot maximale nitrietgehaltes in de daaropvolgende Griess-reactie (Figuur 5C). We verwachten dat variaties in de incubatieperiode nodig kunnen zijn om de detectie te optimaliseren voor verschillende ontstekingsmodellen. Een zorgvuldige vaststelling van alle optimale parameters voor het specifieke organisme, genotype en weefsel dat wordt geanalyseerd, is essentieel om betrouwbare en nauwkeurige resultaten te verkrijgen, aangezien het proces zeer dynamisch is. In het bijzonder wordt verwacht dat genetische varianten en transgene expressiemodellen aanzienlijke optimalisatie vereisen, met name met betrekking tot het ontwikkelingsstadium of de leeftijd van volwassenen.
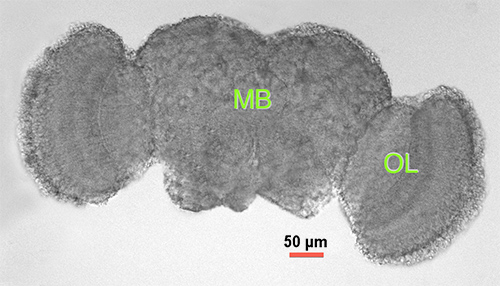
Figuur 1. Volwassen brein van Drosophila. Lichtmicroscopie van een gedissecteerd volwassen mannelijk brein 2-3 dagen na het uitkomen. MB = middenbrein (centrale cortex), OL = optische lob.
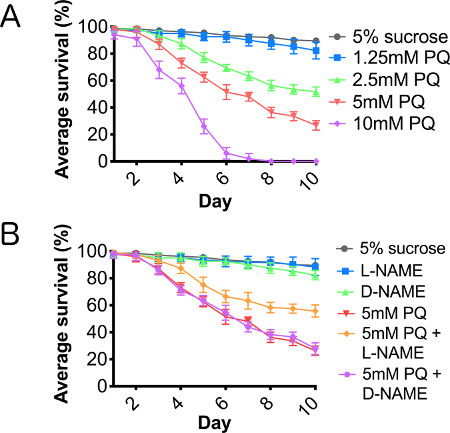
Figuur 2. Paraquat resulteert in een dosisafhankelijke vermindering van de levensduur, gemedieerd via stikstofoxidesynthase. Mannelijke vliegen van het wilde type gevoed met (A) 5% sucrose (controle) en seriële verdunningen van paraquat met concentraties variërend van 1,25-10 mM in 5% sucrose en (B) gelijktijdig gevoed met paraquat en L-NAME of D-NAME gedurende 10 opeenvolgende dagen. N = 3 groepen van 10. Foutenbalken = SEM.
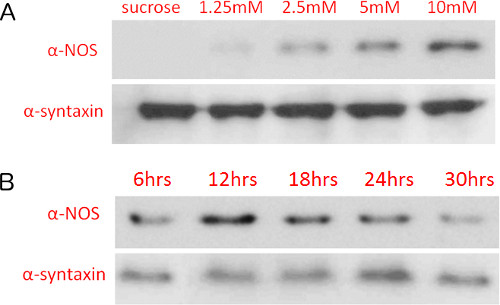
Figuur 3. Eiwerniveaus van stikstofoxidesynthase nemen toe met de paraquatconcentratie en de blootstellingsduur. Immunoblot-detectie van de stikstofoxidesynthaseniveaus van vliegen behandeld met variërende (A) paraquatconcentraties (12 uur blootstelling) en (B) 10 mM paraquat met variërende blootstellingsduuren. Eiwerniveaus werden gedetecteerd op nitrocellulosemembranen met behulp van chemiluminescentie en X-ray-filmbelichting.
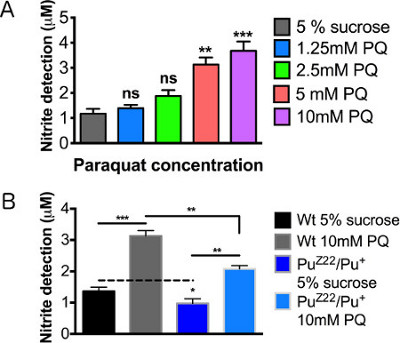
Figuur 4. Nitrietdetectieniveaus na blootstelling aan paraquat. Mannelijke wild-type (WT) vliegen 2-3 dagen na uitkomen werden geanalyseerd na 12 uur voeding. (A) Concentratiecurve van paraquatconcentraties. (B) Mannelijke Punch heterozygote mutanten gevoed met sucrose-controle en 10mM paraquat. N = 20 hersenen/groep. Resultaten vertegenwoordigen 3 replicaties per groep. Foutenbalken = SEM. Statistische analyses werden uitgevoerd met behulp van eenweg-ANOVA met Dunnett's Multiple Comparison posttest (*, p < 0,05, **, p < 0,01, ***, p < 0,001).

Figuur 5. Optimalisatie van de detectie van stikstofmonoxideproductie door de duur van de paraquatblootstelling en de incubatietijd van het weefsel te variëren. Relatieve stikstofmonoxidestemmingen in mannelijke hersenen 2-3 dagen na het uitkomen na een behandeling van 12 uur met (A) 5 mM paraquat en (B) 10 mM paraquat. (C) NO-curve met variërende incubatieperioden van het weefsel na voeding met 10 mM paraquat gedurende 12 uur. Significantiewaarden werden berekend ten opzichte van de volgende: (A, B) 5% sucrose-controles voor elke blootstellingstijd (niet weergegeven in de grafiek), (C) 5% sucrose-controles voor elke incubatietijd (niet weergegeven in de grafiek). N = 20 hersenen/groep. De resultaten vertegenwoordigen 3 replicaties per groep. Foutenbalken = SEM. Statistische analyses werden uitgevoerd met een één-weg ANOVA met Dunnett's Multiple Comparison post-test (*, p<0.05, **, p<0.01, ***, p<0.001).
Discussie
Deze methode, hoewel eenvoudig in benadering, biedt een kosteneffectieve, zeer herhaalbare en uiterst gevoelige methode voor het kwantificeren van niveaus van NOS-gemedieerde neuro-inflammatie. Zoals getoond in de Resultaten-sectie, zijn er veel variabelen die kunnen worden aangepast om de respons in verschillende inductiemodellen of organismen te verbeteren of te optimaliseren. Omdat dit echter een zeer gevoelig systeem is, kunnen deze variabelen ook tot zeer variabele resultaten leiden als alle aspecten van het protocol niet zorgvuldig worden behandeld. Bij het eerst testen met elk model, raden we aan de parameters in te stellen door variabelen te testen, waaronder chemische concentratie (Figuur 4A), duur van de blootstelling (Figuur 5A en 5B) en incubatieduur (Figuur 5C). Houd rekening met andere variabelen, zoals het aantal hersenen/weefselmonsters dat nodig is om de detectielimiet en consistentie te bereiken, zelfs wanneer deze methode wordt toegepast op vergelijkbare Drosophila-modellen. Bovendien zal in leeftijdsafhankelijke genetische modellen van ontsteking een uitgebreide optimalisatie van tijdstippen nodig zijn.
Zoals hierboven vermeld, kunnen door de gevoelige aard van de test inconsistenties in het protocol onbetrouwbare resultaten opleveren. Met dit in gedachten werden alle apparatuur en materialen gesteriliseerd voor gebruik. Vanwege de korte incubatietijd werden in deze experimenten geen antibiotica aan het kweekmedium toegevoegd. Als het protocol echter wordt aangepast voor langere incubatietijden of als bacteriegroei wordt waargenomen in culturen of media, moeten typische kweekantibiotica zoals penicilline-streptomycine worden toegevoegd en moet de apparatuur opnieuw worden gesteriliseerd. Zoals bij alle experimenten met chemische behandelingen, moet er voorzichtigheid worden betracht om ervoor te zorgen dat alle groepen onder goed gecontroleerde omstandigheden worden grootgebracht, geslacht en leeftijd overeenkomen, en alle groepen exact dezelfde voedingsomstandigheden krijgen. Enkele voorbeeldvoedingsvoorwaarden om te overwegen, zijn variaties in concentraties, beschikbaarheid en toegang tot voedselbronnen, duur van de voeding en het tijdstip van de dag waarop de voeding wordt toegediend. Gedetailleerde records voor alle experimentele omstandigheden en nauwe aandacht voor de natuurlijke voedingspatronen van uw model zullen helpen de variabiliteit te minimaliseren. Als mutaties of transgene stammen die neurale circuits of gedragspatronen beïnvloeden, worden gebruikt, zou een belangrijke controle het monitoren van het voedingsgedrag omvatten.
Nogmaals, hoewel vergelijkbare protocollen beschikbaar zijn in celcultuur en lysaten, is een groot voordeel van deze methode dat de integriteit van het weefsel wordt gehandhaafd, waardoor vrijwel alle cellulaire relaties binnen de hersenen intact blijven. Dit systeem vertegenwoordigt een relatief natuurlijke, in vivo toestand van neuro-inflammatoire signalering en cellulaire secretie. Ontwikkeld in Drosophila, kan deze techniek gemakkelijk worden aangepast aan andere kleine modelorganismen en is niet beperkt tot het centrale zenuwstelsel, zoals gedemonstreerd door een vergelijkbare toepassing voor NO-signalering in een Malpighische buismodel voor nierfunctie26. Het meest significante voordeel van dit protocol is verreweg de mogelijkheid om deze test aan te passen en aan te passen aan de behoeften en interesses van de onderzoeker of het modelsysteem.
Door het gebruik van combinatie chemische-genetische benaderingen, heeft deze test het potentieel om de capaciteit van kleine modelsystemen aanzienlijk te verbeteren om de mechanismen, genetische componenten en chemische modulatoren van ontsteking te onderzoeken.
Openbaarmakingen
De auteurs verklaren geen concurrerende financiële belangen.
Dankbetuigingen
We danken Dr. Guy en Dr. Kim Caldwell voor het gebruik van hun NanoDrop spectrofotometer tijdens de ontwikkeling van deze test en J. Gavin Daigle voor zijn kritische opmerkingen en suggesties. De ontwikkeling van deze methode werd gefinancierd door een subsidie van de National Institutes of Health (NS-078728) aan J.M.O.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Voedingskamers | |||
| Lege Drosophila fles | Genesee Scientific | #32-116 | |
| Absorbtieve watten | Je kunt elk standaard product gebruiken. | ||
| Filterpapier | Fisher | #09-802-1B | |
| Paraquat blootstelling | |||
| Sucrose | Sigma-Aldrich | #S0389 | |
| Paraquat (methyl viologen dichloride hydraat) | Sigma-Aldrich | #856177 | Toxisch. Handel met zorg en binnen de MSDS-richtlijnen |
| L-NAME (N-Nitro-L-arginine methyl ester hydrochloride) | Sigma-Aldrich | #N5751 | |
| D-NAME (N-Nitro-D-arginine methyl ester hydrochloride) | Sigma-Aldrich | #N4770 | |
| Dissectie van volwassen vlieg hersenen en incubatie | |||
| Grace's Insect Medium | Invitrogen | #11605-094 | Grace's Medium kan ook worden vervangen door Sf-900 II SFM of Sf-900 III SFM Medium voor hogere lot-to-lot consistentie. |
| 96-well plate | Corning | #3596 | Je kunt elk standaard product gebruiken. |
| Microscoopglas | Je kunt elk standaard product gebruiken. | ||
| Chirurgisch mes | Feather | #0197 | Je kunt elk standaard product gebruiken. |
| Medische pincet 5 | Dumont | EMS #72877-D | Je kunt elk standaard product gebruiken. |
| 10x PBS buffer | OmniPur | #6508 | |
| Detectie van Nitriet niveaus | |||
| Gemodificeerd Griess reagens | Sigma-Aldrich | #4410 | |
| Natriumnitriet | Sigma-Aldrich | #S2252 of #237213 | |
| Eiwit Assay Kit | Bio-Rad | 500-0001 | |
| Cuvettes | Je kunt elk standaard product gebruiken. | ||
| Nitraat reductase | optioneel | ||
| NADPH | optioneel | ||
| Western Blot Analyse | |||
| RIPA lysis buffer | Amresco | 97063-270 | |
| dithiothreitol (DTT)- Reduceermiddel | Novex | B0009 | |
| Protease inhibitor cocktail | Amresco | 97063-082 | |
| 4x LDS sample buffer | Novex | B0007 | |
| Voorgevormd 4-12% Bis-Tris minigel | Novex | BG04125BOX | |
| MOPS SDS running buffer | Novex | B0001 | |
| Antioxidant | NuPage | NP0005 | |
| iBlot Transfer Stacks (Nitrocellulose) | Invitrogen | IB301002 | |
| Western blot detectie kit | Invitrogen | IB711002 | |
| Muis α-nNOS | BD Biosciences | 611853 | |
| Muis α-syntaxin | DSHB | 8C3 |
Referenties
- Gehrmann, J., Matsumoto, Y., Kreutzberg, G. W. Microglia: Intrinsic immuneffector cell of the brain. Brain Res. Rev. 20, 269-287 (1995).
- Dissing-Olesen, L., et al. Axonal lesion-induced microglial proliferation and microglial cluster formation in the mouse. Neuroscience. 149, 112-122 (2007).
- Aloisi, F., Penna, G., Cerase, J., Menendez Iglesias, B., Adorini, L. IL-12 production by central nervous system microglia is inhibited by astrocytes. J. Immunol. 159, 1604-1612 (1997).
- Vincent, V. A., Tilders, F. J., Van Dam, A. M. Inhibition of endotoxin-induced nitric oxide synthase production in microglial cells by the presence of astroglial cells: a role for transforming growth factor beta. Glia. 19, 190-198 (1997).
- Rohrenbeck, A. M., et al. Upregulation of COX-2 and CGRP expression in resident cells of the Borna disease virus-infected brain is dependent upon inflammation. Neurobiol. Dis. 6, 15-34 (1999).
- Walsh, D. T., Perry, V. H., Minghetti, L. Cyclooxygenase-2 is highly expressed in microglial-like cells in a murine model of prion disease. Glia. 29, 392-396 (2000).
- Aloisi, F., Serafini, B., Adorini, L. Glia-T cell dialogue. J. Neuroimmunol. 107, 111-117 (2000).
- Minghetti, L., Levi, G. Microglia as effector cells in brain damage and repair: focus on prostanoids and nitric oxide. Prog. Neurobiol. 54, 99-125 (1998).
- Mrak, R. E., Griffin, W. S. T. Glia and their cytokines in progression of neurodegeneration. Neurobiol. Aging. 26, 349-354 (2005).
- Zhang, W., et al. Aggregated alpha-synuclein activates microglia: a process leading to disease progression in Parkinson's disease. FASEB J. 19, 533-542 (2005).
- Beers, D. R., et al. Neuroinflammation modulates distinct regional and temporal clinical responses in ALS mice. Brain Behav. Immun. 25, 1025-1035 (2011).
- Wood, W., Faria, C., Jacinto, A. Distinct mechanisms regulate hemocyte chemotaxis during development and wound healing in Drosophila melanogaster. J. Cell Biol. 173, 405-416 (2006).
- Babcock, D. T., et al. Circulating blood cells function as a surveillance system for damaged tissue in Drosophila larvae. Proc. Natl. Acad. Sci. U.S.A. 105, 10017-10022 (2008).
- Vlisidou, I., et al. Drosophila embryos as model systems for monitoring bacterial infection in real time. PLoS Pathog. 5, e1000518(2009).
- Foley, E., O'Farrell, P. H. Nitric oxide contributes to induction of innate immune responses to gram-negative bacteria in Drosophila. Genes Dev. 17, 115-125 (2003).
- Costa, A., Jan, E., Sarnow, P., Schneider, D. The Imd pathway is involved in antiviral immune responses in Drosophila. PloS One. 4, e7436(2009).
- Daigle, J. G. Integrated microglial-like neuroinflammatory and hypoxia responses in a Drosophila model for Parkinson's disease. , in preparation Forthcoming.
- Tanner, C. M., Kamel, F., Ross, G. W., Hoppin, J. A., Goldman, S. M., Korell, M., Marras, C., Bhudhikanok, G. S., Kasten, M., et al. Rotenone, Paraquat and Parkinson's Disease. Environ. Health Perspect. 119 (6), 866-8672 (2011).
- Manning-Bog, A. B., McCormack, A. L., Li, J., Uversky, V. N., Fink, A. L., Di Monte, D. A. The herbicide paraquat causes up-regulation and aggregation of alpha- synuclein in mice: paraquat and alpha-synuclein. J. Biol. Chem. 277, 1641-1644 (2002).
- Ossowska, K., Wardas, J., Smialowska, M., Kuter, K., Lenda, T., Wieronska, J. M., Zieba, B., Nowak, P., Dabrowska, J., Bortel, A., et al. A slowly developing dysfunction of dopaminergic nigrostriatal neurons induced by long-term paraquat administration in rats: An animal model of preclinical stages of Parkinson's disease. Eur. J. Neurosci. 22, 1294-1304 (2005).
- McCormack, A. L., et al. Role of oxidative stress in paraquat-induced dopaminergic cell degeneration. J. Neurochem. 93, 1030-1037 (2005).
- Chaudhuri, A., et al. Interaction of genetic and environmental factors in a Drosophila parkinsonism model. J. Neurosci. 27, 2457-2467 (2007).
- Krishnakumar, S., Burton, D., Rasco, J., Chen, X., O'Donnell, J. Functional interactions between GTP cyclohy- drolase I and tyrosine hydroxylase in Drosophila. J. Neurogenet. 14 (1), 1-23 (2000).
- Foxton, R. H., Land, J. M., Heales, S. J. R. Tetrahydro- biopterin availability in Parkinson's and Alzheimer's disease; potential pathogenic mechanisms. Neurochem. Res. 32 (4-5), 751-756 (2007).
- Inamdar, A. A., Chaudhuri, A., O'Donnell, J. The Protective Effect of Minocycline in a Paraquat-Induced Parkinson's Disease Model in Drosophila is Modified in Altered Genetic Backgrounds. Parkinson's Disease. 2012, 938528(2012).
- Kean, L., Cazenave, W., Costes, L., Broderick, K. E., Graham, S., Pollock, V. P., Davies, S. A., Veenstra, J. A., Dow, J. A. Two nitridergic peptides are encoded by the gene capability in Drosophila melanogaster. Am. J. Phys. Reg. Integr. Comp. Phys. 282, R1297-R1307 (2002).
- Williamson, W. R., Hiesinger, P. R. Preparation of Developing and Adult Drosophila Brains and Retinae for Live Imaging. J. Vis. Exp. (37), (2010).
- Desjardins, P., Hansen, J. B., Allen, M. Microvolume Protein Concentration Determination using the NanoDrop 2000c Spectrophotometer. J. Vis. Exp. (33), (2009).
- Desjardins, P., Conklin, D. NanoDrop Microvolume Quantitation of Nucleic Acids. J. Vis. Exp. (45), (2010).
Herprints en machtigingen
