Bepaalde genetische verstoringen of blootstelling aan toxines kunnen normale ontwikkelingsprocessen verstoren, wat leidt tot de dood van specifieke celtypen. De analyse van geactiveerde Caspase 3 door middel van immunofluorescence in zijn geheel in zebrafish embryo's onthult een stadium- en weefselspecifieke lokalisatie van cellen die specifiek apoptose ondergaan.
Methodenartikel
Analyse van Apoptose in Zebravis Embryo's door middel van Whole-mount Immunofluorescentie om Geactiveerd Caspase 3 te Detecteren
In dit artikel
Samenvatting
Samenvatting
Whole-mount immunofluorescence om geactiveerde Caspase 3 (Casp3-assay) te detecteren is nuttig om cellen te identificeren die ofwel intrinsieke of extrinsieke apoptose ondergaan in zebravisembryo's. De whole-mount analyse biedt ruimtelijke informatie met betrekking tot weefselspecificiteit van apoptose-ondergaande cellen, hoewel uiteindelijk secties en/of colabeling vereist zijn om de exacte celtypen die apoptose ondergaan te bepalen. De whole-mount Casp3-assay is geoptimaliseerd voor analyse van gefixeerde embryo's tussen de 4-cellig stadium en 32 uur na bevruchting en is nuttig voor een aantal toepassingen, inclusief analyse van zebravis mutanten en morphanten, overexpressie van mutante en wild-type mRNA's, en blootstelling aan chemicaliën. In vergelijking met acridine-oranje kleuring, die apoptotice cellen in levende embryo's binnen enkele uren kan identificeren, nemen Casp3- en TUNEL-assays aanzienlijk meer tijd in beslag om te voltooien (2-4 dagen). Echter, vanwege de dynamische aard van apoptotice celvorming en opruiming, verzekert analyse van gefixeerde embryo's een nauwkeurige vergelijking van apoptotice cellen over meerdere monsters op specifieke tijdstippen. We hebben ook gevonden dat de Casp3-assay superieur is aan analyse van apoptotice cellen door de whole-mount TUNEL-assay met betrekking tot kosten en betrouwbaarheid. Over het algemeen vertegenwoordigt de Casp3-assay een robuuste, zeer reproduceerbare assay om apoptotice cellen in vroege zebravisembryo's te analyseren.
Inleiding
Hier beschrijven we hoe we immunofluorescence op het hele embryo uitvoeren in vroege zebravis-embryo's om cellen te detecteren met geactiveerde Caspase 3 (hierna verder aangeduid als de Casp3-assay). Het algemene doel van deze methode is om de relatieve abundantie en locatie van apoptotische cellen in zebravissen te identificeren vanaf het 4-cellig stadium tot 32 uur na bevruchting (hpf).
Zowel intrinsieke (door mitochondriën gemedieerde) als extrinsieke (doodsreceptor-gemedieerde) apoptotische routes bemiddelen celdood door activering van de caspase-cascade1-2. Initiatie-caspases bestaan normaal gesproken als monomeren binnen de cel, en eenmaal gerekruteerd naar pad-specifieke platforms als reactie op een pro-apoptotisch signaal, worden ze geactiveerde dimeren. Geactiveerde initiatie-caspases (Caspase 9; intrinsieke route, en Caspase 8; extrinsieke route) richten vervolgens de voorgedimeriseerd, inactieve effector-caspases (Caspase 3, 6, 7) op voor splitsing om actieve heterotetramers te vormen. Actieve effector-caspases splitsen vervolgens cellulaire doelwitten met specifieke tetrapeptide-residuen om de specifieke proteolytische vernietiging te initiëren die culmineert in de ultrastructurele kenmerken van apoptose, zoals chromatinecondensatie en membraanblaasvorming, en celoppervlaksignalen die het verpakken van de cel mediëren voor omhulling door fagocyten op een immuunstille manier. In zoogdiercellen wordt aangenomen dat actieve effector-caspases de meerderheid van de cellulaire splitsingsgebeurtenissen uitvoeren die apoptose mediëren via zowel de intrinsieke als extrinsieke routes1-2. Het protocol dat hierin wordt beschreven, gebruikt een antilichaam dat specifiek bindt aan de gesplitste, heterotetramere vorm van Caspase 3, maar niet aan het inactieve Caspase 3-dimer.
Een van de voordelen van de Casp3-assay is de mogelijkheid om de ruimtelijke verdeling van apoptotische cellen te visualiseren binnen de context van het hele embryo. Daarom kunnen weefsels van belang worden onderzocht op de aanwezigheid van apoptotische cellen, en als er antilichamen of fluorescerende transgene stammen bestaan die specifieke celtypen labelen, dan is het mogelijk om de exacte identiteit van cellen die apoptose ondergaan te bepalen door middel van colabeling-experimenten. Verschillende groepen hebben met succes geactiveerde Caspase 3 gebruikt als marker voor apoptose in zebravis-embryo's (bijv. 3-7). Aanvullende hele-mounttechnieken om apoptotische cellen in zebravis-embryo's te identificeren, omvatten de TUNEL-assay8 en acridine orange (AO) kleuring9. We hebben alle drie de methoden gebruikt om apoptotische cellen in zebravis-embryo's te identificeren4,6,10.
TUNEL (Terminal deoxynucleotidyl transferase dUTP nick end labeling) kleuring maakt gebruik van het enzym Terminal deoxynucleotidyl Transferase (TdT) dat wordt gebruikt om nucleotiden toe te voegen aan 3’ hydroxyl-uiteinden van DNA tijdens VDJ-recombinatie in lymfocyten11. TdT voegt dUTP-biotine toe aan vrije 3’ hydroxylgroepen in het DNA, die voornamelijk overvloedig zijn in apoptotische cellen. Weefsels worden vervolgens blootgesteld aan avidine-peroxidase, en apoptotische cellen worden gekleurd bij toevoeging van het substraat 3-amino-9-ethylcarbazool. De TUNEL-assay werd gebruikt om een uitgebreide analyse van apoptotische cellen uit te voeren tijdens embryonale ontwikkeling in wildtype zebravis-weefsels12. Net als de Casp3-assay wordt de TUNEL-assay alleen uitgevoerd op gefixeerde embryo's. We hebben de Casp3-assay consistenter en goedkoper gevonden dan de TUNEL-assay.
AO kleuring werd voor het eerst beschreven als een mechanisme om specifiek apoptotische cellen te identificeren in Drosophila13. AO kleurt zowel het cytoplasma als de kern van apoptotische, maar niet necrotische, cellen. AO is goed bekend omdat het nucleïnezuren bindt14, en dit wordt verondersteld verantwoordelijk te zijn voor de nucleaire kleuring. Echter, AO kleurt niet de chromatine van levende cellen; in plaats daarvan lijkt het dat specifieke veranderingen die optreden tijdens apoptose het intercaleren en kleuren van gecondenseerde apoptotische kernen mogelijk maken15. AO kleuring heeft het voordeel van snelle apoptotische analyse van levende embryo's. Echter, documentatie van monsters moet snel worden uitgevoerd vanwege de dynamische aard van apoptotische celvorming en klaring. Aan de andere kant biedt gelijktijdige fixatie van alle monsters een momentopname van apoptose op een bepaald tijdstip in alle monsters en is niet onderhevig aan deze tijdelijke variabele. Dus, aangezien analyse van apoptotische cellen door AO kleuring niet compatibel is met gefixeerde embryo's, is de Casp3-assay de voorkeursmethode voor experimenten waarbij fotografische documentatie en/of kwantificering vereist is over meerdere monsters.
Protocol
1. Voorbereiding van oplossingen
- Bereid 500 ml van 1x PBST (1x PBS, 0,1% Tween-20) voor en steriliseer door filteren. 1x PBST kan onbeperkt bij kamertemperatuur (RT) worden bewaard, zolang er geen tekenen van bacteriegroei zijn.
- VOORZICHTIG: Bereid 50 ml van 4% paraformaldehyde (PFA) in een chemische afzuigkap door gepoederd PFA op te lossen in 1x PBS bij 60 °C gedurende 1 uur en bedekt met aluminiumfolie om te beschermen tegen licht. Bewaar bij 4 °C gedurende 1 maand, of bij -20 °C gedurende 2 jaar.
- Bereid 500 ml van verse 1x PDT (1x PBST, 0,3% Triton-X, 1% DMSO). 1x PDT kan worden bewaard bij 4 °C gedurende maximaal één maand.
- Bereid 50 ml blokkerende buffer (1x PBST, 10% hitte-geïnactiveerd foetaal bovien serum, 2% bovien serumalbumine). Maak 10 ml aliquoten en bewaar bij -20 °C gedurende maximaal 1 jaar. Eenmaal ontdooid, kan blokkerende buffer bij 4 °C worden bewaard gedurende maximaal 48 uur.
- Bereid 100 ml van 4% methylcellulose door 30 ml water te verwarmen tot 80 °C. Voeg 4 g methylcellulose toe aan het hete water en meng met behulp van een roerstaaf op een roerplaat op kamertemperatuur. Grondig mengen duurt meestal tussen de 4 uur tot een nacht. Voeg de rest van (onverwarmd) water toe en meng bij 4 °C gedurende 1 uur. Bewaar bij RT.
- Indien embryo's worden gebruikt tussen stadia van staartknop en 32 hpf, bereid 50 ml van 10 mg/ml pronase en bewaar maximaal 1 week bij 4 °C. Anders, bewaar in 10 ml aliquoten bij -20 °C gedurende maximaal 1 jaar.
- Plaats 50 ml van 100% methanol bij -20 °C.
- Bereid 60x eierwater door 280 g Instant Ocean Sea Salt op te lossen in 2 L gedestilleerd water (zoals in Westerfield16). Bereid 1x eierwater door de 60x voorraad te verdunnen in gedeïoniseerd water.
2. Voorbereiding van embryo's
- Verzamel zebravis embryo's in een petrischaal in 1x eierwater tussen de 4-cel stadium en 32 hpf.
- Voor embryo's tussen de 4-cel en staartknop stadia, ga door naar stap 2.2.
- Voor embryo's tussen staartknop stadium en 32 hpf, verwijder chorions door 100 μl van 10 mg/ml pronase toe te voegen aan embryo's in 10 ml van 1x eierwater.
- Opmerking: Pronase activiteit kan variëren tussen batches. Daarom, moet de uiteindelijke pronase concentratie worden geoptimaliseerd voor dechorionering wanneer nieuwe batches worden verkregen.
- Laat gedurende 30 min. bij kamertemperatuur incuberen.
- Giet eierwater / pronase oplossing af in afval en voeg langzaam vers 1x eierwater weer toe.
- Spuit 2x door bestaand eierwater (en vrij zwevende chorions) af te gieten en voeg voorzichtig nieuw eierwater toe.
- Opmerking: De meeste chorions moeten op dit punt zijn verwijderd. Met een transferpijpje, zuig voorzichtig embryo's op en neer totdat resterende chorions zijn verwijderd.
- Breng maximaal 40 embryo's over naar een 1,5 ml buisje. Spoel 2 keer met 1 ml van 1x PBST.
- Verwijder PBST, laat vloeistof net boven de embryo's (ongeveer 100 μl volume zou in de buis moeten blijven). Voeg 1 ml van 4% PFA toe. Leg buisjes op hun zijde (zodat embryo's zich uitstrekken langs de lengte van de buis) in een geschikt formaat container voor gemakkelijke transport (bijv. een petrischaal of een pipet doos bovenkant), en plaats op een zachte rocker bij 4 °C gedurende de nacht of maximaal een week.
- Voor embryo's tussen de 4-cel en staartknop stadia, dechorionate de gefixeerde embryo's handmatig met een pincet.
3. Immunofluorescentie procedure
- Plaats buisjes in een buisjesrek zodat alle embryo's naar de bodem van de buis zinken. Verwijder PFA (in het juiste afvalcontainer) en laat vloeistof net boven het niveau van de embryo's. Na fixatie (stap 2.3), mogen embryo's nooit worden blootgesteld aan lucht om achtergrond antilichaamkleuring te voorkomen.
- Voeg 1 ml van ijs-koud 100% methanol (voor permeabilisatie) druppelsgewijs toe. Embryo's zijn nu kwetsbaar na de fixatie, en extra voorzichtigheid moet worden genomen om ze te voorkomen van omvallen in de buis tijdens alle verdere verwijdering / toevoeging van vloeistoffen. Leg buisjes op hun zijde en plaats bij -20 °C gedurende 2 uur. Alternatief, kunnen embryo's worden bewaard bij -20 °C gedurende maximaal 24 uur.
- Plaats buisjes in een rek om embryo's op de bodem van de buis te verzamelen. Verwijder methanol, en laat vloeistof net boven het niveau van de embryo's.
- Voeg voorzichtig 1 ml 1x PDT toe. Verwijder PDT, en voeg 1 ml van verse 1x PDT toe. Leg buisjes op hun zijde en schud zachtjes bij RT gedurende 30 min. Verwijder PDT, en herhaal 30 min wassen met verse PDT.
- Verwijder PDT to
Resultaten
De Casp3-assay levert duidelijk bewijs voor apoptotische cellen vanaf het 4-celstadium tot 32 hpf. Figuur 2A laat zien dat injectie van embryo's met hoge concentraties mRNA dat codeert voor potente pro-apoptotische bh3-only-eiwitten, zoals Bim of Noxa, al in het 4-celstadium van de ontwikkeling snel leidt tot actief Caspase 3. Embryonale sterfte treedt vervolgens binnen 1 uur op4. Let op dat de fluorescentie-intensiteit matig is, maar de resultaten zijn doorslaggevend. In latere stadia is de fluorescentie-intensiteit robuuster. Figuur 2B laat bijvoorbeeld heldere, actief Caspase 3-positieve cellen zien in embryo's in het sfeer-stadium die zijn geïnjecteerd met matig toxische hoeveelheden4 mRNA dat codeert voor het pro-apoptotische bh3-only-gen puma. Messenger-RNA dat codeert voor het anti-apoptotische bcl-2-gen werd gelijktijdig geïnjecteerd om aan te tonen dat injectie van puma-mRNA apoptose induceert via de intrinsieke, mitochondriaal-gemedieerde route.
Door IR geïnduceerde apoptose in zebravissen vereist p53-gemedieerde transcriptie van bh3-only genen zoals puma5-6. De vertraging in door IR geïnduceerde apoptose in Figuur 3 is consistent met de vereiste voor p53-gemedieerde transcriptie.
Het Casp3-protocol moet leiden tot een robuuste signaal-ruisverhouding. Figuur 4 vergelijkt het optimale Casp3-assayresultaat met twee veelvoorkomende suboptimale resultaten die optreden wanneer kritieke stappen in het gedrang komen (zie Discussie): een zwakke signaal-ruisverhouding als gevolg van achtergrondfluorescentie in dierlijk weefsel en eigeelvruchtfluorescentie die afleidt van het signaal waarvoor men geïnteresseerd is.
Colabeling-experimenten met transgene GFP-expresserende lijnen benaderen weefsels die apoptose ondergaan (Figuur 5).
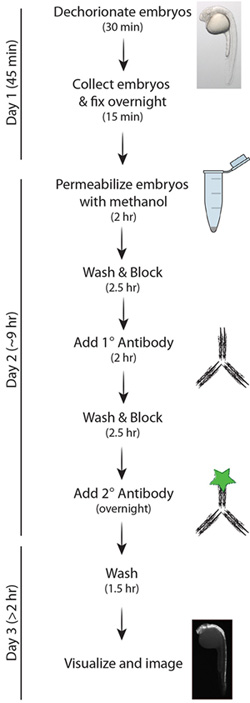
Figuur 1. Vereenvoudigd schema van het Casp3-protocol.

Figuur 2. (A) Analyse van apoptose in embryo's in het 4-celstadium. Embryo's werden in het één-celstadium van de ontwikkeling geïnjecteerd met 50 pg mRNA dat egfp (controle) of de pro-apoptotische bh3-only genen bim en noxa codeert. In het 4-celstadium (ongeveer één uur na injectie, hpi), werden embryo's geanalyseerd via immunofluorescentie om geactiveerd Caspase 3 te detecteren. Bim en noxa mRNA induceren snelle apoptose in zebravisembryo's direct na injectie, wat, indien de embryo's zich verder ontwikkelen, leidt tot de dood binnen 2 hpi4. Ter vergelijking wordt een brightfield-afbeelding van een wild-type embryo in het 4-celstadium getoond. (B) Analyse van apoptose in zebravisembryo's in het sfeerstadium. Embryo's werden in het één-celstadium van de ontwikkeling geïnjecteerd met mRNA dat respectievelijk 50 pg egfp (controle), 5 pg puma plus 45 pg egfp (puma), of 5 pg puma plus 45 pg bcl-2 (bcl-2) codeert. In het sfeerstadium (ongeveer 4 hpi) werden de embryo's geanalyseerd met de Casp3-assay. Zowel laterale als animale poolweergaven worden getoond om apoptotische cellen te visualiseren. Reddingsactie van puma-geïnduceerde apoptose door bcl-2 geeft aan dat injectie van puma mRNA specifiek apoptose induceert via de intrinsieke, mitochondriaal-gemedieerde route. Ter vergelijking wordt een brightfield-afbeelding van een wild-type embryo in het sfeerstadium getoond.

Figuur 3. Tijdsverloop van door ioniserende straling (IR) geïnduceerde apoptose tussen 17-20 hpf. Zebrafish-embryo's werden bestraald met 8 Gy IR bij 17 hpf en geanalyseerd op 0, 1,5, 2 en 3 uur na IR (hpIR) met behulp van de Casp3-assay. Pijlen bij 20 hpf tonen de accumulatie van apoptotische cellen in het ruggenmerg bij 3 hpIR. Ter vergelijking wordt een brightfield-afbeelding van een embryo van 17 hpf getoond.
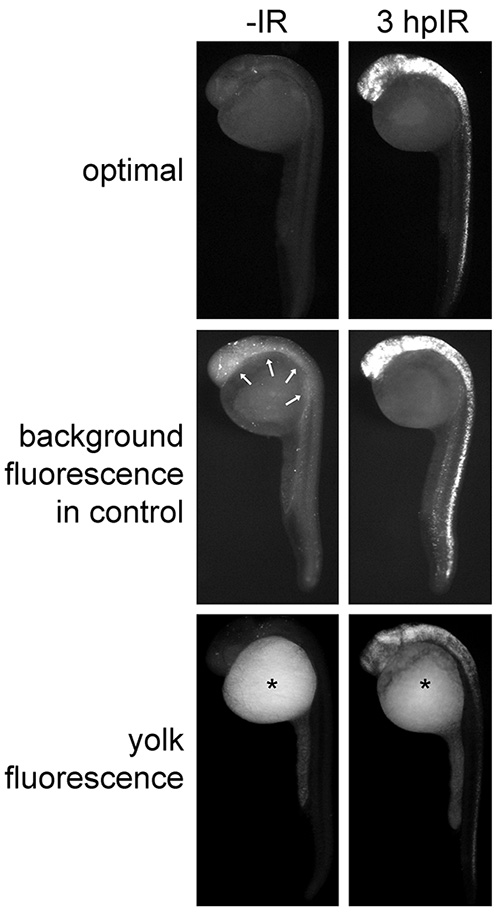
Figuur 4. Optimale en suboptimale Casp3-immunofluorescentieresultaten in embryo's van 27 hpf. Zebrafish-embryo's werden (wel of niet) bestraald bij 24 hpf met 15 Gy en geanalyseerd met de Casp3-assay. De "optimale" groep vertoont ideale resultaten waarbij apoptotische cellen helder fluoresceren en niet-apoptotische cellen en de dooier een minimale achtergrondfluorescentie vertonen. Pijlen in de groep "achtergrondfluorescentie in controle" duiden op overmatige achtergrondfluorescentie in het dierlijke weefsel van controle-embryo's. Asterisken in de groep "dooierfluorescentie" tonen overmatige aspecifieke fluorescentie in de dooier.
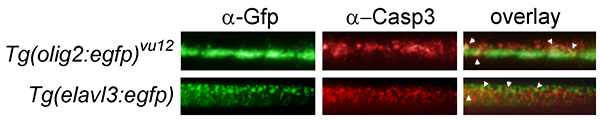
Figuur 5. Colabeling-experimenten benaderen de weefselspecificiteit van IR-geïnduceerde apoptose. De Tg(olig2:egfp)vu12 transgene lijn labelt motorneuronen en oligodendrocyten17, en de Tg(elavl3:egfp) lijn labelt alle differentiërende neuronen18. Elke transgene lijn werd bestraald met 15 Gy bij 24 hpf en 3 uur later geanalyseerd met zowel muis anti-GFP als konijn anti-actief-Caspase 3 primaire antilichamen, gevolgd door respectievelijk groen- en rood-fluorescerende secundaire antilichamen. Een vergroting van het ruggenmerg (gelegen dorsaal ten opzichte van het uiteinde van de dooieruitstulping van 27-hpf, 3-hpIR embryo's) wordt getoond. Apoptotische cellen lijken gedeeltelijk gelokaliseerd te zijn in zowel de Tg(elavl3:egfp) als de Tg(olig2:egfp)vu12 populaties (zie pijlpunten in de overlay), wat suggereert dat neuronen en oligodendrocyten gevoelig zijn voor IR-geïnduceerde apoptose.
Discussie
De Casp3-test zoals gepresenteerd in dit protocol is bedoeld om eenvoudig te zijn, en als hij wordt uitgevoerd zoals hierin wordt aangegeven, zou hij een robuuste signaal-ruisverhouding moeten opleveren. De cruciale stappen van dit protocol omvatten het gebruik van verse 1x PDT-buffer voor alle wasbeurten, voldoende lengte van wasstappen in PDT-buffer na incubatie van embryo's in de primaire antilichaam, voorzichtig omgaan met embryo's en zorgvuldige boekhouding van alle embryo's in buizen of overdrachtspipetten tijdens alle stappen van het protocol.
Volgens onze ervaring zijn de volgende de meest voorkomende redenen voor het ontbreken van een signaal op positieve controles: 1) 1x PBST wordt vervangen door 1x PDT tijdens wasstappen, 2) 1x PDT-buffer is ouder dan een maand, 3) het verkeerde secundaire antilichaam werd gebruikt, 4) embryo's zijn ouder dan 32 hpf en/of 5) meer dan 40 embryo's werden in één buis geanalyseerd. Wanneer inconsistente resultaten of variabiliteit optreedt binnen monsters, komt dit meestal doordat 1) er niet voor is gezorgd dat alle embryo's te allen tijde in de vloeistof bleven tijdens de procedure en/of 2) embryo's niet voldoende werden geïncubeerd onder voldoende schudden. Hoge niveaus van achtergrondruis worden vaak gevisualiseerd als een algemene fluorescente waas die door het dierlijk weefsel van het embryo ontstaat (zie Figuur 4, "achtergrondfluorescentie"). Een slechte signaal-ruisverhouding kan ontstaan wanneer 1) embryo's niet voldoende werden gewassen na de primaire antilichaam en/of 2) embryo's langer in PFA of methanol werden gelaten dan de aanbevolen tijd. Als embryo's niet intact blijven aan het einde van de test: 1) werden oplossingen niet druppelsgewijs toegevoegd na fixatie met PFA, en/of 2) was de snelheid van de rocker tijdens incubatiestappen te hoog ingesteld.
De volledige visualisatie inherent aan de Casp3-test is nuttig voor ruimtelijke lokalisatie van apoptotische cellen. Echter, weefselspecificiteit is bij benadering en zal waarschijnlijk afhankelijk zijn van colabelingtechnieken (zie Figuur 5) en/of embryo-sectie om de exacte identiteit van cellen die apoptose ondergaan, te bepalen. In het hier beschreven protocol is colabeling beperkt door de vereiste voor het specifieke konijn-afgeleide antilichaam dat in onze test wordt gebruikt. We hebben geen commercieel verkrijgbaar niet-konijn-afgeleid anti-geactiveerd Caspase 3-antilichaam geïdentificeerd dat specifiek apoptotische cellen labelt door volledige immunofluorescence in zebravis-embryo's. Daarom zullen celtype-specifieke antilichamen die in konijnen worden gekweekt niet compatibel zijn met de Casp3-test voor colabelingexperimenten. Een alternatief is om een TUNEL-test uit te voeren die een muis-afgeleid antilichaam vereist om apoptotische cellen te labelen6. We hebben echter gevonden dat de volledige TUNEL-test uitgevoerd op zebravis-embryo's zeer gevoelig is voor een aantal variabelen in de reactie, inclusief de concentratie van TdT-enzym, duur van embryo-incubatie in TdT-enzym, en het aantal embryo's per buis (onze ongepubliceerde observaties). Daarom is het een uitdaging om een balans van enzym te vinden die consistente interpretatie van resultaten geeft. Daarom is een betere alternatief om apoptotische cellen te analyseren in transgene zebravis-embryo's die een fluorofoor (met commercieel verkrijgbare robuuste antilichamen) zoals GFP in een specifiek celtype uitdrukken. Vervolgens kunnen colabelingexperimenten worden uitgevoerd met behulp van een primaire muis anti-Gfp-antilichaam gevolgd door een groen-fluorescerend anti-muis secundair antilichaam. Zie Figuur 5 voor een voorbeeld.
Terwijl de Casp3-protocol robuuste, betrouwbare kleuring van apoptotische cellen in embryo's geeft vanaf het 4-cellig stadium tot 32 hpf, heeft het beperkte toepassing voorbij 32 hpf vanwege het onvermogen van de antilichamen om de huid van oudere embryo's te penetreren. Aanvullende technieken om de embryo's te permeabiliseren, inclusief behandeling met collagenase, trypsine, aceton of ethanol, zouden mogelijk kunnen worden geoptimaliseerd om deze test aan te passen aan de analyse van oudere embryo's. Kleuring met AO kan echter worden uitgevoerd op levende zebravissen tot minimaal 5 dagen oud9. Daarom omzeilt de AO-test de embryonale fase-restrictie en vertegenwoordigt een snelle test om apoptotische cellen te analyseren (1-2 uur). Daarentegen vereist de Casp3-test overnacht fixatie van embryo's en duurt 2-4 dagen om te voltooien. De nadelen van de AO-test zijn dat efficiënte fotografische documentatie van embryo's uitdagend kan zijn met meerdere monsters omdat embryo's levend zijn en apoptotische cellen snel worden gevormd en verwijderd. Dit kan vooral problematisch zijn als embryo's moeten worden gemonteerd om een specifieke oriëntatie te verkrijgen voor documentatie. Bovendien hebben we gevonden dat AO-kleuring vermindert na fixatie met PFA, dus het is niet compatibel met colabelingexperimenten die immunofluorescence omvatten.
Kwantitatieve analyse van geactiveerde Caspase 3 kan worden uitgevoerd met behulp van softwareprogramma's die de fluorescentie-intensiteit van gedocumenteerde afbeeldingen meten. We hebben IR-geïnduceerde apoptose in het neurale weefsel gekwantificeerd, een methode die we elders in detail hebben beschreven10. Afhankelijk van het experiment, kan kwantitatieve analyse van geactiveerde Caspase 3 verdere manipulatie van embryo's vereisen, zoals vlak-montage, om de juiste oriëntatie voor optimale weefselanalyse te verkrijgen. Bovendien zal de lineariteit van de analyse afhangen van de dikte van het weefsel dat wordt geanalyseerd. Bijvoorbeeld, we hebben IR-geïnduceerde apoptose in het neurale weefsel geanalyseerd door actieve Caspase 3 immunofluorescence in het ondiepe neurale weefsel van het ruggenmerg te meten in plaats van het neuron-dichte weefsel van de hersenen4,10.
Volgens onze
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
De financiering werd verzorgd door de Huntsman Cancer Foundation (CJ, CT), American Cancer Society-subsidie #RSG-13-025-01-CSM (RS) en NIH T32 GM007464-36 (SS).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 1.5 ml tubes | Denville Scientific | c2170 | Niet-gevaarlijk. Elke vergelijkbare 1,5 m kunststof buizen zijn voldoende. |
| 10x Phosphate Buffered Saline (PBS) | Sigma Aldrich | P5493 | Niet-gevaarlijk. |
| a-activated-human-Caspase-3 antibody | Fisher Scientific | BDB559565 | Kan schadelijk zijn bij inademing of inslikken. |
| a-GFP monoklonaal antilichaam (muis) | Life Technologies | 33-2600 | Kan schadelijk zijn bij inademing of inslikken. |
| a-HuC/HuD humane neuronale eiwit, muis IgG2b, monoklonaal 16A11 - UNCONJ | Life Technologies | A21271 | Kan schadelijk zijn bij inademing of inslikken. |
| Albumine, bovine BSA Heat Shock Isolation | Amresco | CAS 9048-46-8 | Niet-gevaarlijk. Kan ook worden gekocht via Bioexpress: 0332-1006 |
| Alexa Fluor 488 Donkey anti-muis IgG | Life Technologies | A11029 | Gebruik bij 1:200 verdunning. Kan schadelijk zijn bij inademing of inslikken. |
| Alexa Fluor 488 Donkey anti-Konijn IgG | Life Technologies | A21206 | Gebruik bij 1:200 verdunning. Kan schadelijk zijn bij inademing of inslikken. |
| Alexa Fluor 568 Donkey anti-Konijn IgG | Life Technologies | A10042 | Gebruik bij 1:200 verdunning. Kan schadelijk zijn bij inademing of inslikken. |
| Dimethyl Sulfoxide (DMSO) | Sigma Aldrich | D8418 | Ontvlambaar. |
| Dumont #5 Inox Forceps (standaard tips/recht) | Fine Science Tools | 11251-20 | Scherp! |
| FBS HyClone Fetal Bovine Serum | Thermo-Fisher | SH3091003 | Niet-gevaarlijk. |
| Fisher Scientific Ocelot Rotator | Fisher Scientific | 05-450-21 | Elke rotator met handmatige snelheidsregeling is geschikt. |
| Instant Ocean Aquarium Salt | Petco | 1373684 | Niet-gevaarlijk. |
| Methanol (aceton-vrij) | Sigma Aldrich | M1775 | Ontvlambaar: giftig bij inademing, inslikken en contact. |
| Methylcellulose | Sigma Aldrich | M0387-1006 | Niet-gevaarlijk. |
| Paraformaldehyde | Sigma Aldrich | P6148 | Ontvlambaar: giftig bij inademing, inslikken en contact. |
| Probe (Gewelfde 80 Kort/15,5cm/0,15mm tip diameter) | Fine Science Tools | 10140-02 | Scherp! |
| Pronase | Roche | 11459643001 | Niet-gevaarlijk. |
| Pyrex Spot Plate | Fisher Scientific | 13-748B | Niet-gevaarlijk. |
| Transfer Pipets, Samco algemeen gebruik | Thermo-Scientific | 204 | Niet-gevaarlijk. |
| Triton X-100 | Sigma Aldrich | T8787 | Irritatie: schadelijk bij inslikking of contact. |
| Tween-20 | Sigma Aldrich | P7949 | Niet-gevaarlijk. Andere merken omvatten VWR #97063-872. |
Referenties
- Tait, S. W., Green, D. R. Mitochondria and cell death: outer membrane permeabilization and beyond. Nat. Rev. Mol. Cell Biol. 11, 621-632 (2010).
- Taylor, R. C., Cullen, S. P., Martin, S. J. Apoptosis: controlled demolition at the cellular level. Nat. Rev. Mol. Cell Biol. 9, 231-241 (2008).
- Eimon, P. M., et al. Delineation of the cell-extrinsic apoptosis pathway in the zebrafish. Cell Death Differ. 13, 1619-1630 (2006).
- Jette, C. A., et al. BIM and other BCL-2 family proteins exhibit cross-species conservation of function between zebrafish and mammals. Cell Death Differ. 15, 1063-1072 (2008).
- Kratz, E., et al. Functional characterization of the Bcl-2 gene family in the zebrafish. Cell Death Differ. 13, 1631-1640 (2006).
- Sidi, S., et al. Chk1 suppresses a caspase-2 apoptotic response to DNA damage that bypasses p53, Bcl-2, and caspase-3. Cell. 133, 864-877 (2008).
- Zhao, X., et al. Interruption of cenph causes mitotic failure and embryonic death, and its haploinsufficiency suppresses cancer in zebrafish. J. Biol. Chem. 285, 27924-27934 (2010).
- Yager, T. D., Ikegami, R., Rivera-Bennetts, A. K., Zhao, C., Brooker, D. High-resolution imaging at the cellular and subcellular levels in flattened whole mounts of early zebrafish embryos. Biochem. Cell Biol. 75, 535-550 (1997).
- Furutani-Seiki, M., et al. Neural degeneration mutants in the zebrafish, Danio rerio. Development. 123, 229-239 (1996).
- Sorrells, S., et al. Ccdc94 Protects Cells from Ionizing Radiation by Inhibiting the Expression of p53. PLoS Genet. 8, (2012).
- Gavrieli, Y., Sherman, Y., Ben-Sasson, S. A. Identification of programmed cell death in situ via specific labeling of nuclear DNA fragmentation. J. Cell Biol. 119, 493-501 (1992).
- Cole, L. K., Ross, L. S. Apoptosis in the developing zebrafish embryo. Dev. Biol. 240, 123-142 (2001).
- Abrams, J. M., White, K., Fessler, L. I., Steller, H. Programmed cell death during Drosophila embryogenesis. Development. 117, 29-43 (1993).
- Beers Jr, R. F., Hendley, D. D., Steiner, R. F. Inhibition and activation of polynucleotide phosphorylase through the formation of complexes between acridine orange and polynucleotides. Nature. 182, 242-244 (1958).
- Delic, J., Coppey, J., Magdelenat, H., Coppey-Moisan, M. Impossibility of acridine orange intercalation in nuclear DNA of the living cell. Exp. Cell Res. 194, 147-153 (1991).
- Westerfield, M. The Zebrafish Book. , University of Oregon Press. Eugene, OR. (1993).
- Shin, J., Park, H. C., Topczewska, J. M., Mawdsley, D. J., Appel, B. Neural cell fate analysis in zebrafish using olig2 BAC transgenics. Methods Cell Sci. 25, 7-14 (2003).
- Park, H. C., et al. Analysis of upstream elements in the HuC promoter leads to the establishment of transgenic zebrafish with fluorescent neurons. Dev. Biol. 227, 279-293 (2000).
Herprints en machtigingen
