Unlike celvrij HIV-1 deeltjes geïnfecteerd CD4 + T-cellen effectief waargenomen door plasmacytoïde dendritische cellen (pDCs). Dit manuscript beschrijft een werkwijze waarbij perifere mononucleaire cellen (PBMC's) of geïsoleerde pDCs mede gekweekt met HIV-1 geïnfecteerde T-cellen aangeboren sensing evalueren pDCs zoals bepaald door afgifte van type I IFN.
Methodenartikel
Het beoordelen van de Aangeboren Sensing van HIV-1 geïnfecteerde CD4
In dit artikel
Samenvatting
Samenvatting
HIV-1 aangeboren detectie vereist direct contact van geïnfecteerde CD4 + T-cellen met plasmacytoïde dendritische cellen (pDCs). Om dit te bestuderen, de hier beschreven protocollen Vers geïsoleerde humane perifere bloed mononucleaire cellen (PBMCs) of plasmacytoïde dendritische cellen (pDCs) infecties in beide T-cellijn (MT4) of heteroloog primaire CD4 + T-cellen te detecteren. Om een goede waarneming verzekeren, is het essentieel dat PBMC direct worden geïsoleerd na bloedafname en optimale percentage geïnfecteerde T-cellen worden gebruikt. Bovendien kunnen meerdere parametrische flowcytometrische kleuring worden gebruikt om te bevestigen dat PBMC monsters bevatten verschillende cellijnen bij fysiologische verhoudingen. Een aantal controles zijn mogelijk levensvatbaarheid en functionaliteit van pDCs evalueren. Deze omvatten de aanwezigheid van specifieke oppervlakte merkers, beoordelen cellulaire reacties op bekende agonist van Toll-Like receptoren (TLR) banen, en bevestigt een gebrek aan sponmomentane type I interferon (IFN) productie. In dit systeem, vers geïsoleerde PBMCs of pDCs mede gekweekt met HIV-1 geïnfecteerde cellen in 96 putjesplaten gedurende 18-22 uur. Supernatanten uit deze co-kweken worden vervolgens gebruikt om de niveaus van bioactieve type I IFN's bepalen door het bewaken van de activering van de ISGF3 route in HEK-Blue IFN-α / β-cellen. Vóór en tijdens gelijktijdige kweekomstandigheden, kunnen targetcellen worden onderworpen aan cytometrische analyse stromen naar een aantal parameters, waaronder het percentage geïnfecteerde cellen niveaus van specifieke oppervlakte merkers en differentiële doden van geïnfecteerde cellen te bepalen. Hoewel deze protocollen oorspronkelijk ontwikkeld om type I IFN productie volgen, kunnen ze eventueel worden gebruikt om andere Imuno-modulerende moleculen vrijgemaakt uit pDCs bestuderen en om meer inzicht in de moleculaire mechanismen van HIV-1 aangeboren detectie krijgen.
Inleiding
Type-I IFN-producerende pDCs vormen de eerste verdedigingslinie tegen virale infecties, en als zodanig dienen als een vitale schakel tussen aangeboren en adaptieve immuniteit 1. Terwijl celvrij HIV-1 deeltjes slecht worden gedetecteerd door het aangeboren immuunsysteem, zijn HIV-1 geïnfecteerde CD4 + T-cellen effectief gedetecteerd door pDCs 2. Het voelermechanisme vereist een eerste contact tussen de virale envelop glycoproteïne (gp120) aan het oppervlak van de geïnfecteerde T-cellen en CD4-moleculen op het pDC, die vervolgens wordt gevolgd door virus vangen en internalisatie door de PDC. Daaropvolgende opname overgedragen HIV-1 RNA door TLR7 veroorzaakt de activering van de Myd88 / IRF7 route en leidt uiteindelijk aan type I-IFN productie 3. Belangrijk is dat de tweede sensor route aanwezig pDCs, wat gemedieerd door TLR9, wordt geremd door de interactie van het virale glycoproteïne, gp120, met pDC specifieke oppervlaktemarker BDCA2 4.
De TLR7 en TLR9 sensing paden van pDC kan mogelijk negatief gemoduleerd worden door de inzet van BST2 (ook aangeduid Tetherin of CD317) met een ander pDC-specifieke oppervlakte remmende receptor genaamd ILT7 5. BST2 expressie wordt gebracht in hoge niveaus aan het oppervlak van pDCs en sommige kankercellen, maar bij relatief lage concentraties in andere celtypes, zoals B-cellen, macrofagen en T-cellen. Belangrijk BST2 kan worden geïnduceerd door type I IFN in een aantal getransformeerde cellijnen en in primaire celculturen van humane en muriene oorsprong 6. Naast de immuun-regulerende functie, werd BST2 recent gevonden om de afgifte van HIV-1 remmen en andere omhulde virale deeltjes door verknoping ontluikende virusdeeltjes op het geïnfecteerde celoppervlak 7. In het geval van HIV-1, het virus gecodeerde eiwitten accessory U (Vpu) bleek te fungeren als een BST2 antagonist. Er wordt aangenomen dat Vpu downregulates BST2 van het celoppervlak van HIV-1-geïnfecteerde cellen, de plaats van de kettinging activiteit en als gevolg verbetert virale afgifte en verspreiden 7, hoewel dit begrip wordt betwist 8,9. Aangezien Vpu, een groot aantal volledig gevormde en volwassen nakomelingen HIV-1 deeltjes vastgehouden op het celoppervlak. Of deze tethered deeltjes effectief doelen voor het immuunsysteem sensing kon vertegenwoordigen nog steeds een open vraag. Daarnaast is het onduidelijk of Vpu type I IFN productie kon dysregulate van pDCs door het moduleren oppervlak BST2 niveaus.
Vroege onderzoeken om HIV-1 detectie evalueren werden uitgevoerd met celvrij HIV-1 deeltjes die algemeen worden beschouwd slechte inductoren van type I IFN 3,10-12. Aangezien recente studies suggereren dat PBMCs en pDCs efficiënt detecteren HIV-geïnfecteerde CD4 + T-lymfocyten 2,13,14 We beschrijven hier een eenvoudige methode om aangeboren responsen veroorzaakt door pDCs bij herkenning van HIV-1-geïnfecteerde cellen in vitro te meten.
Protocol
Algemene opmerkingen
Het is belangrijk om in kweek te houden zonder antibiotica, omdat zelfs gecontroleerd bacteriële infecties kunnen worden waargenomen door PBMCs. Dergelijke detectie van bacteriële componenten achtergrond interferon productie die niet kunnen worden onderscheiden van die veroorzaakt door HIV-1 specifieke detectie induceren. Verder zijn alle cellen moeten regelmatig worden getest op de afwezigheid van mycoplasma verontreiniging.
Gebruik altijd endotoxinevrij oplossingen waar mogelijk.
Flow cytometrische karakterisatie van de verschillende cellen voor gebruik in de co-kweken (PBMCs, pDCs, MT4 en CD4 + T-cellen) stap is optioneel, maar sterk aanbevolen omdat het waardevolle informatie die nodig is voor juiste interpretatie van een bepaald experiment kan verschaffen.
1. Bereiding van geïnfecteerde doelcellen
- Onderhouden humane CD4 + T-cellijn MT4 in RPMI 1640 medieen gesupplementeerd met 10% foetaal runderserum (FBS), voortaan aangeduid als RPMI-1640 compleet medium.
- Isolatie van primaire CD4 + T-cellen.
- Isoleer mononucleaire cellen uit menselijk perifeer bloed door dichtheidsgradiënt centrifugatie.
- Isoleer CD4 + T-lymfocyten met een CD4 + T-cellen negatieve selectie kit, na aanbevelingen van de fabrikant.
- Activeren CD4 + T-lymfocyten met PHA-L (5 ug / ml) gedurende 48 uur en vervolgens handhaven cellen in RPMI 1640 compleet-medium aangevuld met recombinant IL-2 (100 U / ml). Infecteren primaire T-cellen 5 dagen na isolatie.
- Infectie van doelcellen (MT4 T cellijn of heteroloog primaire CD4 + T-cellen).
- Twee dagen vóór de co-cultuur, infecteren T-cellen met HIV-1 virus. In het specifieke voorbeeld hier beschreven pNL4.3-GFP_ires_Nef wild-type (WT) of pNL4.3-GFP_ires_Nef delta Vpu (dVpu) virussen werden gebruikt. Deze virale stammen vertegenwoordigen green fluorescerend eiwit (GFP) -markering isogene besmettelijke moleculaire klonen die alleen verschillen in hun vermogen om Vpu uiten.
- Gebruik verschillende multipliciteiten van infectie (MOI) en selecteer culturen met vergelijkbare niveaus van besmetting voor co-culturen. De dag van de co-cultuur bepaalt het percentage GFP + cellen door flowcytometrie als marker van infectie. Gebruik alleen kweken met een bereik van 20-50% geïnfecteerde cellen voor co-kweken.
Optionele stappen: Voer flowcytometrische kleuring op dit punt aan de oppervlakte expressie van moleculen / liganden van belang, zoals BST2 en CD4 te evalueren. Voor celoppervlak kleuring, resuspendeer 0,5 x 10 6 T-cellen in 100 pi wasoplossing, voeg 1 pl anti-CD4_PerCP / Cy5.5 en 1 pl anti-BST2_A660. Incubeer buizen gedurende 45 minuten bij 4 ° C vóór wassen met flowcytometrie wasoplossing. Als de onderzoeken zijn gericht op het evalueren van de rol van Vpu gemedieerde BST2 antagonisme, het uitvoeren van een HIV-1 deeltjeafgifte assay op dit moment als hiervoor beschreven 15.
2. Isolatie en Verrijking van Sensing Cells (Whole PBMCs of verrijkte pDCs)
Opmerking: Wanneer PBMC's worden gebruikt voor de detectie, starten isolatie binnen een half uur na de bloedafname en het gedrag in een tijdige wijze. Gebruik PBMCs onmiddellijk voor co-culturen of pDC verrijking.
- Isoleer mononucleaire cellen uit menselijk perifeer bloed door dichtheidsgradiënt centrifugatie.
Optionele stap: Voer meerdere parametrische flowcytometrie kleuring te bevestigen dat vers geïsoleerde PBMC bevatten verschillende cellijnen bij fysiologische verhoudingen. Voor celoppervlak kleuring, resuspendeer 10 6 PBMC in 100 pl Fc blokkerende oplossing en incubeer gedurende 15 minuten bij 4 ° C. Na blokkering voeg 1 pl anti-CD3_Pacific Blue (voor T-cellen), 1 pl anti-CD14-PE_Texas Red (voor myeloïde cellen), 4 pl anti-BDCA2_APC en 1 pl anti-ILT7_PE (voor pDCs). Broedenbuizen gedurende 45 minuten bij 4 ° C vóór wassen met flowcytometrie wasoplossing. - Verrijk pDCs met een PDC negatieve selectie kit, na aanbevelingen van de fabrikant. Het wordt aanbevolen om snel te werken, houden de cellen koud, en het gebruik van pre-gekoelde oplossingen. Dit voorkomt dat de aftopping van antilichamen op het celoppervlak en de niet-specifieke cel etikettering, alsmede het waarborgen van maximale pDC activiteit.
- Het uitvoeren van multi-parametrische flowcytometrische analyse van de vers geïsoleerde pDCs naar zuiverheid, het percentage van de verrijking, en de relatieve hoeveelheden van Pdc- specifieke oppervlakte merkers (zoals ILT7 en BDCA2) bevestigen. Voor celoppervlak kleuring, resuspendeer 10 4 pDCs in 100 pl Fc blokkeren oplossing en incubeer gedurende 15 minuten bij 4 ° C. Na blokkering voeg 1 pl anti-CD3_Pacific Blue, 1 pl anti-CD14_PE_Texas Red, 4 pl anti-BDCA2_APC en 1 pl anti-ILT7_PE. Incubeer buizen gedurende 45 minuten bij 4 ° C vóór wassen met flowcytometrie wasoplossing (PBS, 5mM EDTA, 5% FBS). Ten minste 40% pDC zuiverheid aanbevolen (indien het uitgangsmateriaal 0,4% pDC, zou dit overeenkomt met een 100-voudige verrijking).
3. Co-cultuur van geïnfecteerde CD4 + T-cellen en Sensing Cells (Whole PBMCs of verrijkte pDCs)
- Meng 220 pl PBMCs (verdund tot 850.000 cellen / ml) of 220 pl pDCs (in een concentratie variërend van 100.000 tot 500.000 cellen / ml) met 30 ul van geïnfecteerde T-cellen (verdund tot 10 6 cellen / ml) per putje in een U-bodem 96 wells plaat.
- Als controles, plaat PBMCs of pDCs en T-cellen alleen. Stel het volume in goed tot 250 ul met RPMI 1640 compleet medium.
- Beoordelen van cellulaire reacties op bekende agonist van de TLR7 en TLR9 pathways. Daartoe plaat 220 gl PBMCs (verdund tot 850.000 cellen / ml) of 200 pl pDCs (in een concentratie variërend van 100.000 tot 500.000 cellen / ml) per putje in een U-bodem 96 wells plaat en voeg TLR7 agonist ( Imiquimod, eindconcentratie: 2,5 ug / ml) of TLR9 agonist (ODN 2216 CpG-A, eindconcentratie 5 uM). Incubeer cellen bij 37 ° C en 5% CO2 gedurende 18-22 uur en verwerken op een wijze vergelijkbaar met de co-kweken hieronder beschreven.
- Incubeer co-kweken bij 37 ° C en 5% CO2 gedurende 18-22 uur, en vervolgens overbrengen naar een V-bodem 96 wells plaat. Centrifugeer gedurende 5 minuten bij 400 x g.
- Transfer supernatanten een vlakke bodem 96 wells plaat. Supernatanten kunnen bij -80 ° C worden opgeslagen of gebruikt worden voor het type-I IFN detectie onmiddellijk.
- Resuspendeer co-gekweekte cellen in 2% paraformaldehyde en analyseren met flowcytometrie. Vanwege de verschillen in omvang en granulatie, MT4 cellen zijn gemakkelijk te onderscheiden van PBMCs of pDCs op basis van hun kant-verstrooiing (SS) versus forward-verstrooiing (FS) profielen. Als primaire T-cellen worden gebruikt als doelwit geïnfecteerde cellen, kunnen deze worden gekleurd met een cel tracker kleurstof, zoals CDVU voorafgaand aan co-kweek.
- Meting van bioactieve type I IFN behulp HEK-Blue IFN-α / β reporter cellen.
Opmerking: Deze cellen werden gegenereerd door stabiele transfectie van HEK293-cellen met humane STAT2 en IRF9 genen volledig actieve type I IFN signaalweg verkrijgen. Ze bevatten ook het uitgescheiden alkaline fosfatase (SEAP) reportergen onder controle van de IFN-α / p induceerbare promoter ISG54. Stimulatie van deze cellen met type I-IFN activeert de JAK / STAT / ISGF3 pathway en induceert de productie van SEAP.- Handhaaf HEK-Blue IFN-α / β-cellen in DMEM gesupplementeerd met 10% FBS. Plaat ze bij een dichtheid van 50.000 cellen per putje in een platte-bodem 96 wells plaat in een eindvolume van 180 pl.
- Voeg 20 ul van co-kweek supernatant aan elk putje in duplo. Elke plaat vereist ook een aantal interne standaard controles (humane IFNa, eindconcentratie van 100 U / ml tot 2500 U / ml). Incubeer de platen bij 37 ° C en 5% CO2 gedurende 18-22 Hr.
- Bepaal niveaus van alkalisch fosfatase activiteit met QUANTI Blue-oplossing, die verandert van roze tot paars / blauw in aanwezigheid van het enzym. Bereid QUANTI-Blue volgende aanbevelingen van de fabrikant. Voeg 180 ul van deze oplossing aan elk putje van een vlakke bodem 96-well plaat. Aan elk putje ook toevoegen 20 ui van de geïnduceerde HEK-Blue IFN-α / β cellen supernatanten en incubeer de plaat in een 37 ° C incubator tot kleurontwikkeling in de standaard IFN controleputjes.
- Evalueer niveaus van SEAP gebruik van een spectrofotometer bij 620-655 nm en het gehalte van het type I-IFN door extrapolatie van het lineaire deel van de standaardcurve IFN.
Resultaten
De co-kweeksysteem in figuur 1 beschreven zorgt voor een gecontroleerde studie van HIV-1 aangeboren detectie. Vanwege de variabele aard van de elementen, is het belangrijk dat de normale verhoudingen van myeloïde en T-cellen (respectievelijk CD14 + en CD3 +) worden waargenomen, zoals in de figuur 2A voorbeeld. Bovendien werd slechts een klein aantal geactiveerde T-cellen (FS hogere en hogere niveaus CD3 vergelijking met niet-geactiveerde T-cellen) zijn wenselijk in de vers geïsoleerde PBMC kweken. PBMCs met abnormale verhoudingen tussen de verschillende celtypen zijn vaak niet in staat een correcte montage aangeboren immuunrespons in vitro, waarschijnlijk te wijten aan een reeds geactiveerde fenotype als gevolg van een voortdurende infectie. Het belangrijkste is het relatieve percentage pDCs moeten worden onderworpen zoals getoond in figuur 2B. Hoewel dit percentage kan variëren van 0,2 om 1,2%, wordt een abnormaal fenotype detectie ook waargenomen met zowel extremes van deze range. Verrijking van pDCs middels negatieve selectie leidt vaak tot 50-95% pDC zuiverheid, zoals in de twee voorbeelden uit figuur 2B (92% en 72%). Een prototypisch voorbeeld voor de algemene experiment wordt getoond in figuren 3 en 4. In dit voorbeeld werden MT4-cellen geïnfecteerd met pNL4.3-GFP_ires_Nef WT of delta Vpu tot 30% infectie bereiken bij de co-kweek (Figuur 3A). Zoals eerder beschreven, alleen infecties met WT virus resulteerde in een aanzienlijke neerwaartse regulatie van oppervlak BST2 (Figuur 3B). Als gevolg van hun verschillen in grootte en granulariteit, kan MT4 cellen gemakkelijk van PBMCs met flowcytometrie (Figuur 4A). Na de co-kweek incubatie, alleen PBMC in contact met bekende TLR7 of TLR9 agonist en PBMCs in contact met HIV-1 geïnfecteerde cellen bezit aanzienlijke hoeveelheden type I IFN (Figuur 4B). Nr IFN gedetecteerd in PBMCs alleen in PBMC-co cultured met mock-geïnfecteerde MT4 cellen of in geïnfecteerde MT4 cellen alleen (Figuur 4B). In het hier gepresenteerde voorbeeld, aangeboren detectie van HIV-1-geïnfecteerde MT4 cellen door PBMC's werd significant bij aanwezigheid van Vpu verminderd.
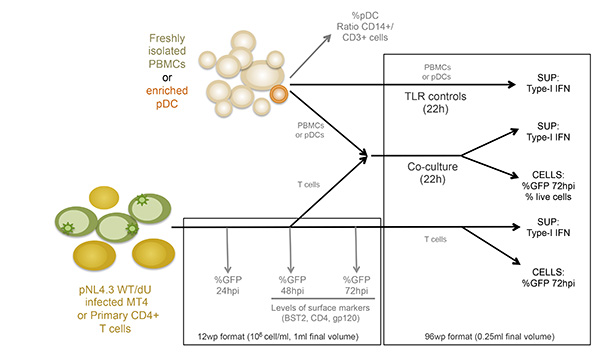
Figuur 1:. Schematisch overzicht van de experimentele opzet SUP: bovendrijvende Klik hier voor grotere afbeelding.
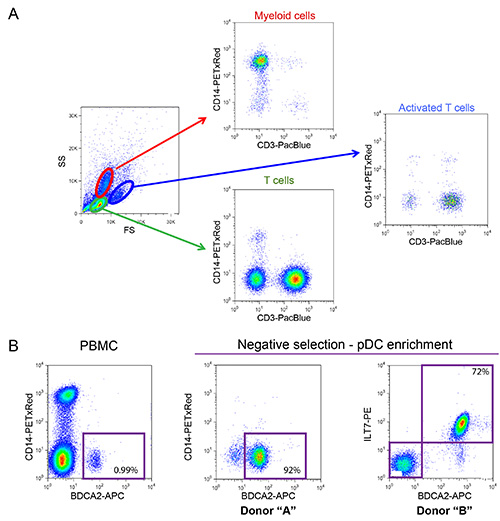
Figuur 2: Fenotypische karakterisering van vers geïsoleerde PBMCs en Enriched pDCs. (A) normale verdeling van myeloïde cellen en T-cellen waargenomen in PBMC geïsoleerd uit gezonde donoren (percentage van myeloïde cellen moet liggen tussen 10-20% en T-cellen 55-65%). PBMC monster werden gekleurd met behulp van fluorofoor-geconjugeerde antilichamen die oppervlak CD14 (myeloïde afstamming marker) en CD3 (T-cel marker) herkennen. (B) Fenotypische karakterisering van pDCs. Vóór verrijking pDCs vertegenwoordigen tussen 0,2-1,2% van het totale aantal cellen in de PBMCs (0,99% in het getoonde voorbeeld). Deze cellen kunnen worden geïdentificeerd op basis van expressie van specifieke merkers, zoals BDCA2 en ILT7, aanwezig op het celoppervlak. Negatieve selectie kan worden aanzienlijk verrijken het aantal pDCs en elimineren potentieel schadelijke verontreinigingen, zoals CD14 + myeloïde cellen (verrijking bereiken van 92% en 72% in de twee voorbeelden getoond). Click hier voor grotere afbeelding.
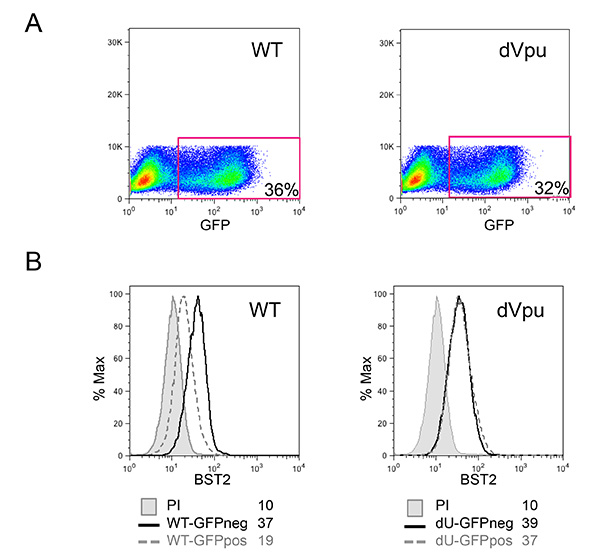
Figuur 3:. Karakterisering van HIV-1-geïnfecteerde MT4 doelwit cellen (A) Percentage van geïnfecteerde cellen in de kweken geïnfecteerd met MT4 pNL4.3-GFP_ires_Nef WT of dVpu bepaald door het percentage GFP-positieve cellen. Oppervlak (B) BST2 cel expressie in de geïnfecteerde cellen werd geëvalueerd na het oppervlak vlekken. De grijze gevulde histogrammen mock-geïnfecteerde cellen gekleurd met pre-immuun konijnenserum (ongekleurde control); de resterende histogrammen cellen gekleurd met anti-BST2 polyklonaal konijnenserum. Histogrammen met ononderbroken lijnen vertegenwoordigen controle GFP negatieve (neg) cellen; terwijl histogrammen met gestippelde lijnen overeen met geïnfecteerde GFP positieve (pos) cellen. Bedoel grieporescence intensiteit (MFI) waarden zijn aangegeven voor elk monster. Flowcytometrie werd uitgevoerd en geanalyseerd zoals beschreven in figuur 2. Klik hier voor grotere afbeelding.
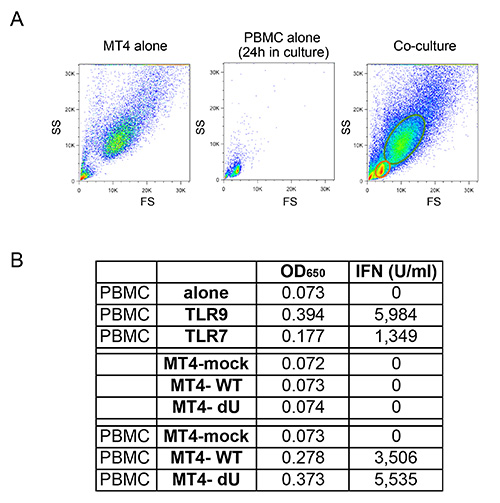
Figuur 4:. Co cultuur van vers geïsoleerde PBMCs en geïnfecteerde MT4 T-cellen (A) Vergelijking van stromingscytometrie FS / SS profielen waargenomen MT4 T-cellen alleen, PBMCs alleen of samen kweken tussen MT4 PBMCs en T-cellen. Vanwege de verschillen in grootte en granulariteit, kan MT4 T cellen gemakkelijk van PBMCs in co-culturen gebruikt flowcytometrie. (B) representatief voorbeeld van de hoeveelheid type I-IFN vrijgelaten na stimulatie van PBMC met TLR7 of TLR9 agonist (geleden), of na co-culturen met mock of de aangegeven MT4 cellen geïnfecteerd met pNL4.3-GFP_ires_Nef WT of dVpu. Ruwe data getoond als OD 650-waarden en de bijbehorende converseion aan type-I IFN concentratie uitgedrukt in U / ml. Klik hier voor grotere afbeelding.
Discussie
De hier beschreven protocollen meten detectie van T-cellen geïnfecteerd met GFP-gelabelde HIV-1-virussen die alleen verschillen in hun vermogen om Vpu drukken, zoals beschreven in onze recent rapport 18. Deze werkwijzen kunnen gemakkelijk worden gewijzigd om detectie van ongelabelde virussen en virussen ontbreekt andere virale genen die kan moduleren aangeboren sensing bestuderen. Als de virussen die niet hebben GFP expressie, het percentage geïnfecteerde doelcellen worden bepaald op andere wijze vóór co-cultuur, zoals p24 (capside) intracellulaire kleuring en flowcytometrie of p24 ELISA. Bovendien kunnen deze protocollen worden gebruikt met verschillende voorwerp T-cellen, waaronder diverse beschikbare cellijnen en primaire cellen.
De in dit manuscript beschreven werkwijzen hebben een aantal voordelen ten opzichte van vroege methoden voor HIV-1 detectie bestuderen. Eerst en vooral is opgericht door een aantal groepen die celvrij HIV-1 partikelen zijn slechte inductoren van type I IFN 2,13,14. De vroegtijdige studies aangevoerde oudere IFNa ELISA-gebaseerde methoden om de hoeveelheid type I-IFN geproduceerde kwantificeren. Een beperking van deze detectietechniek is dat de meeste oudere IFNa ELISA kits meten slechts één type IFNa, met uitzicht op het andere typen IFNa en IFNβ. Het gebruik van de beschreven reporter cellijnen overwint deze beperking als de concentratie van biologisch actieve vormen van humaan type I-IFN's kan worden gemeten in een keer. De techniek is zeer gevoelig, goedkoper dan de nieuwe generatie van IFN ELISA kit en vele donors grote hoeveelheden type I IFN kan gemakkelijk worden opgespoord. Desalniettemin kan dit protocol gemakkelijk worden aangepast voor gebruik met andere type I IFN uitlezing methoden zoals ELISA.
Kritische stappen: Het is belangrijk dat de kwaliteit van cellulaire componenten (zowel targets en effectors) strak gecontroleerd. Mogelijke besmetting, zelfs wanneer asymptisch, moet worden bewaakt en gecontroleerd. Zoals wij eerder vermeld, antibiotica gecontroleerde asymptomatische bacteriële besmetting en eventueel andere intracellulaire pathogenen zoals mycoplasma, kan dit immuunresponsen met die waargenomen na HIV-1-infectie, namelijk de productie van type I IFN genereren. Bovendien moeten alle reagentia vrij van LPS of andere potentiële endotoxinen zijn. Ook monitoring van PBMC en pDCs is ook belangrijk omdat de menselijke monsters vaak kan worden gevuld door onderliggende aanhoudende infecties, die normaal sensing kunnen beïnvloeden. We raden altijd inclusief de voorgestelde negatieve controles, zoals afwezigheid van doelcellen evenals co-culturen met de mock-geïnfecteerde cellen. Levensvatbaarheid van geïnfecteerde cellen is eveneens belangrijk voor een goede pDC detectie omdat type I IFN niet geproduceerd na co-kweek met apoptotische cellen 2,14.
Een belangrijke beperking van de techniek is de behoefte aan vers geïsoleerde primaire cellen. Deze procedure nietgetest met behulp van PBMC of pDCs die ofwel voorheen zijn bevroren of in cultuur gehouden. De isolatie van PBMC is arbeidsintensief en deze cellen hebben een zeer beperkte levensduur. Bovendien moet standaard protocollen voor het beschermen tegen via bloed overdraagbare pathogenen worden gebruikt tijdens het werken met menselijk bloed. Er zijn vaak meerdere bronnen van variabiliteit in verband met werkzaamheden die vers geïsoleerde menselijke cellen. Onder hen zijn de verschillende procedures uitgevoerd om deze cellen te isoleren en de erfelijke variabiliteit ondervonden van donor tot donor. Hoewel het onmogelijk is om variatie tussen donor te vermijden, het gebruik van de voorgestelde positieve controles, zoals het meten van reactie op bekende agonisten van TLR7 en TLR9 wegen, zou een belangrijke interne controle voor deze experimenten geven. We vonden dat een robuuste reactie op agonisten van de TLR9 pathway kan worden gecorreleerd met een gezonde pDC reactie, terwijl een responsieve TLR7 route is voor het goede respons tegen HIV-1 3.
Op basis van de opmerkingen van ons en anderen 2, verrijking van pDCs uit PBMCs is vaak niet nodig. Indien proefopzet vereist (bijvoorbeeld in de context waarin depletie specifieke pDC oppervlakmerkers vereist) negatieve selectie voorkeur boven positieve selectie, zoals cellen vrij blijven van antilichamen na de selectieprocedure. Geïsoleerde pDCs ondergaan snelle apoptose in cultuur. Voor experimenten die deze cellen vereisen gekweekt gedurende langere tijd, kan kweekmedium aangevuld met IL-3. Deze cytokine induceert pDC proliferatie en remt de apoptose 16. Echter, IL-3 gebruik moet goed worden gecontroleerd, omdat het kan leiden tot pDC rijping of differentiatie.
De hier beschreven methode combineert doel HIV-1 geïnfecteerde cellen met vers geïsoleerde PBMCs of pDCs om de eerste stappen betrokken bij aangeboren detectie opnieuw. Deze methode zal ongetwijfeld nuttig zijn om explor zijne vroege aangeboren immuunsysteem geassocieerd met een HIV-infectie. Hoewel de bijbehorende protocollen gericht op het meten van type I IFN, kunnen zij gemakkelijk worden aangepast aan andere biologisch actieve moleculen vrijgemaakt uit pDCs bij herkenning van geïnfecteerde cellen te meten. Deze kunnen omvatten: het type III-IFN (IFN-λ), pro-inflammatoire cytokinen (zoals TNF-α en IL-6) en chemokines CXCL10, CCl4 en CCL5 17.
Dankbetuigingen
Wij danken E. Massicotte en J. Lord voor deskundige technische assistentie tijdens flowcytometrie en celsortering experimenten. Ook willen we de IRCM kliniek personeel en alle donoren te bedanken voor het verstrekken van bloedmonsters. Perifere bloedmonsters werden verkregen van gezonde volwassen donoren die gaven schriftelijk geïnformeerde toestemming, in overeenstemming met de Verklaring van Helsinki onder onderzoeksprotocollen door de ethische toetsingscommissie van het Institut de Recherches Cliniques de Montréal (IRCM) goedgekeurd. De volgende reagentia werden verkregen door middel van het NIH AIDS Reagent Program, Division van aids, NIAID, NIH: MT4 cellen van Dr. Douglas Richman; en Human rIL-2 van Dr. Maurice Gately, Hoffmann - La Roche Inc.
Dr Cohen is de ontvanger van de Canada Research Chair in Human Retrovirology. Dit werk werd ondersteund door subsidies van CIHR (CIHR 111.226) naar Dr. Cohen en van de Fonds de recherche du Québec-Santé (FRQ-S) AIDS netwerk Dr. Bego en Dr Cohen.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| MT4 cellen | NIH AIDS Reagent Program | 120 | Dit reagens werd verkregen via het NIH AIDS Reagent Program, Division of AIDS, NIAID, NIH: MT-4 van Dr. Douglas Richman. |
| HEK-Blu IFN-α/β reporter cellen | Invivogen | HKB-IFNAB | |
| RPMI | Wisent | 350-000-CL | |
| DMEM | Wisent | 319-005-CL | |
| FBS | Wisent | 080-150 | |
| Ficoll-Pâque Plus | Myltenyi | 17-1440-03 | |
| CD4+ T cel isolatiekit II | Myltenyi | 130-091-155 | |
| Diamond Plasmacytoid Dendritische Cel Isolatie Kit II | Myltenyi | 130-097-240 | |
| PHA-L | Sigma-Aldrich | O2769 | |
| Human rIL-2 | NIH AIDS Reagent Program | 136 | Dit reagens werd verkregen via het NIH AIDS Reagent Program, Division of AIDS, NIAID, NIH: Human rIL-2 van Dr. Maurice Gately, Hoffmann - La Roche Inc. |
| Imiquimod | Invivogen | TLRL-IMQS | |
| ODN 2216 CpG-A | Hycult Biotec | HC4037 | |
| Human IFNα | PBL Interferon source | 11100-1 | |
| QUANTI-Blue | Cedarlane | REP-QB2 | |
| Flow cytometry (Antilichamen/reagentia) | |||
| Fc blokkeringsoplossing (samenstelling hieronder): | Opmerking: maak in wasoplossing (PBS, 5mM EDTA, 5% FBS) | ||
| 10% Geitenserum | Sigma-Aldrich | G 9023 | |
| 10% Konijnenserum | Sigma-Aldrich | R 9133 | |
| 10% Muizenserum | Sigma-Aldrich | M 5909 | |
| 2.5 mg/ml menselijk IgG | Sigma-Aldrich | I 4506 | |
| anti-CD3_Pacific Blue | Biolegend | 300417 | |
| anti-CD14_PE-TxRed | Life Technologie | MHCD1417 | |
| anti-BDCA2_APC | Myltenyi | 130-090-905 | |
| anti-ILT7_PE | Biolegend | 326408 | |
| anti-CD4_PerCP/Cy5.5 | Biolegend | 317427 | |
| anti-BST2_Alexa 660 | eBioscience | 50-3179 | |
| Paraformaldehyde | Sigma-Aldrich | P 6148 | |
| Celzeef | BD Falcon | 352340 | |
| Cyan ADP instrument | Beckman Coulter | CY20030 |
Referenties
- Colonna, M., Trinchieri, G., Liu, Y. J. Plasmacytoid dendritic cells in immunity. Nature immunology. 5, 1219-1226 (2004).
- Lepelley, A., et al. Innate sensing of HIV-infected cells. PLoS pathogens. 7, e1001284(2011).
- Beignon, A. S., et al. Endocytosis of HIV-1 activates plasmacytoid dendritic cells via Toll-like receptor-viral RNA interactions. The Journal of clinical investigation. 115, 3265-3275 (2005).
- Martinelli, E., et al. HIV-1 gp120 inhibits TLR9-mediated activation and IFN-{alpha} secretion in plasmacytoid dendritic cells. Proceedings of the National Academy of Sciences of the United States of America. 104, 3396-3401 (2007).
- Cao, W., et al. Regulation of TLR7/9 responses in plasmacytoid dendritic cells by BST2 and ILT7 receptor interaction. The Journal of experimental medicine. 206, 1603-1614 (2009).
- Bego, M. G., Mercier, J., Cohen, E. A. Virus-activated interferon regulatory factor 7 upregulates expression of the interferon-regulated BST2 gene independently of interferon signaling. Journal of virology. 86, 3513-3527 (2012).
- Neil, S. J., Zang, T., Bieniasz, P. D. Tetherin inhibits retrovirus release and is antagonized by HIV-1 Vpu. Nature. 451, 425-430 (2008).
- Miyagi, E., Andrew, A. J., Kao, S., Strebel, K. Vpu enhances HIV-1 virus release in the absence of Bst-2 cell surface down-modulation and intracellular depletion. Proceedings of the National Academy of Sciences of the United States of America. 106, 2868-2873 (2009).
- McNatt, M. W., Zang, T., Bieniasz, P. D. Vpu binds directly to tetherin and displaces it from nascent virions. PLoS pathogens. 9, e1003299(2013).
- Manel, N., et al. A cryptic sensor for HIV-1 activates antiviral innate immunity in dendritic cells. Nature. 467, 214-217 (2010).
- Yan, N., Regalado-Magdos, A. D., Stiggelbout, B., Lee-Kirsch, M. A., Lieberman, J. The cytosolic exonuclease TREX1 inhibits the innate immune response to human immunodeficiency virus type 1. Nature immunology. 11, 1005-1013 (2010).
- Fonteneau, J. F., et al. Human immunodeficiency virus type 1 activates plasmacytoid dendritic cells and concomitantly induces the bystander maturation of myeloid dendritic cells. Journal of virology. 78, 5223-5232 (2004).
- Ankel, H., Capobianchi, M. R., Frezza, F., Castilletti, C., Dianzani, F. Interferon induction by HIV-1-infected cells: a possible role of sulfatides or related glycolipids. Virology. 221, 113-119 (1996).
- Schmidt, B., Ashlock, B. M., Foster, H., Fujimura, S. H., Levy, J. A. HIV-infected cells are major inducers of plasmacytoid dendritic cell interferon production, maturation, and migration. Virology. 343, 256-266 (2005).
- Bego, M. G., Dube, M., Mercier, J., Cohen, E. A. Effect of calcium-modulating cyclophilin ligand on human immunodeficiency virus type 1 particle release and cell surface expression of tetherin. Journal of virology. 83, 13032-13036 (2009).
- Grouard, G., et al. The enigmatic plasmacytoid T cells develop into dendritic cells with interleukin (IL)-3 and CD40-ligand. The Journal of experimental medicine. 185, 1101-1111 (1997).
- Fitzgerald-Bocarsly, P., Jacobs, E. S. Plasmacytoid dendritic cells in HIV infection: striking a delicate balance. Journal of leukocyte biology. 87, 609-620 (2010).
- Bego MG,, Côté, É, Aschman, N., Mercier, J., Weissenhorn, W. Cohen ÉA. Exploits the Cross-Talk between BST2 and the ILT7 Receptor to Suppress Anti-HIV-1 Responses by Plasmacytoid Dendritic Cells. PLoS Pathog. 11 (7), e1005024(2015).
Herprints en machtigingen
