Heterologe expressie en zuivering van het cystische fibrose transmembraan geleiding regulator (CFTR) zijn belangrijke uitdagingen en beperkende factoren in de ontwikkeling van geneesmiddelen therapieën voor cystic fibrosis. Dit protocol beschrijft twee werkwijzen voor de isolatie van milligram hoeveelheden CFTR voor functionele en structurele studies.
Methodenartikel
Zuivering van het Cystic Fibrosis transmembrane conductance regulator eiwit dat tot expressie in
In dit artikel
Samenvatting
Samenvatting
Defecten in het cystische fibrose transmembraan geleiding regulator (CFTR) eiwit veroorzaken cystic fibrosis (CF), een autosomaal recessieve ziekte die momenteel beperkt de gemiddelde levensverwachting van patiënten tot <40 jaar. De ontwikkeling van nieuwe geneesmiddelen moleculen om de activiteit van CFTR te herstellen is een belangrijk doel in de behandeling CF, en de isolatie van functioneel actieve CFTR is een nuttige stap naar het bereiken van dit doel.
We beschrijven twee werkwijzen voor de zuivering van CFTR van een eukaryoot heteroloog expressiesysteem, S. cerevisiae. Zoals prokaryotische systemen, S. cerevisiae kan snel worden gekweekt in het laboratorium tegen lage kosten, maar kan ook het verkeer en posttranslationeel grote membraaneiwitten wijzigen. De selectie van wasmiddelen voor solubilisatie en zuivering is een kritische stap bij de zuivering van een membraaneiwit. Na gescreend op de oplosbaarheid van CFTR in verschillende wasmiddelen hebben we twee co gekozenntrasting wasmiddelen voor gebruik bij de zuivering waardoor het uiteindelijke CFTR preparaat worden afgestemd op de later geplande experimenten.
In deze methode geven we vergelijking van de zuivering van CFTR in dodecyl-β-D-maltoside (DDM) en 1-tetradecanoyl-sn-glycero-3-fosfo-(1'-rac-glycerol) (LPG-14). Eiwitten gezuiverd DDM deze werkwijze toont ATPase activiteit in functionele assays. Eiwitten gezuiverd LPG-14 blijkt hoge zuiverheid en opbrengst kunnen worden toegepast om post-translationele modificaties te bestuderen, en kan gebruikt worden voor structurele werkwijzen zoals kleine-angle X-ray scattering en elektronenmicroscopie. Toont echter aanzienlijk lager ATPase activiteit.
Inleiding
Cystic fibrosis (CF) is de meest voorkomende erfelijke aandoening in Europa en Noord-Amerika met een incidentie van ongeveer 1 op de 2500 levendgeborenen. CF ontstaat wanneer mutaties in het cystische fibrose transmembraan geleiding regulator (CFTR) eiwit leiden tot verlies van functionaliteit in het plasmamembraan van epitheelcellen 1. De meest ernstige gevolg van dit gebrek onomkeerbaar longschade, die de levensverwachting van patiënten verkort tot <40 jaar 2,3.
CFTR is een ATP-binding cassette (ABC) transporter die zich heeft ontwikkeld tot een ionkanaal 1,4 geworden. Ondanks de behoorlijk veranderde functie in het plasmamembraan van cellen, behoudt steeds aanzienlijke sequentiehomologie met andere ABC transporters. Intrigerend, de gespecialiseerde onderdelen van CFTR (dwz haar regulerende gebied en zijn N-en C-uiteinden) delen geen significante sequentie-overeenkomst met andere metazoan ABC transporters, dus zijn er geen aanwijzingen naar ee oorsprong van deze sequenties in CFTR. Op basis van de primaire structuur wordt CFTR geclassificeerd als een C-familielid van de ABC transporter familie, maar er is geen sterk bewijs voor een resterende functionele koppeling aan deze sub-familie. Er zijn enkele meldingen van glutathion vervoersactiviteiten al CFTR 5-7, die consistent zijn met de rollen van andere C-familieleden 8,9 zou zijn, hoewel andere rapporten suggereren dat gereduceerd glutathion het CFTR-ATPase activiteit kan remmen, in plaats van met de -substraat geïnduceerde stimulatie dat de ABC transporters karakteriseren 10. Meting van ion geleidbaarheid is voldoende gevoelig om de kanaalactiviteit van CFTR enkele moleculen te bestuderen 1 en CFTR kanaal eigenschappen zijn als functie van de tijd, temperatuur, ATP-concentratie, membraanpotentiaal en fosforylering staat, en in de aanwezigheid van een groot aantal kleine molecule inhibitoren, potentiators en modifiers. Dezestudies hebben ook aanzienlijk toegevoegd aan onze kennis van hoe ABC transporters functioneren. Niettemin expressie van CFTR in significante hoeveelheden en de daaropvolgende zuivering heeft bewezen een bijzondere uitdaging en succes is beperkt tot enkele laboratoria 10-13 zijn.
De noodzaak om meer doeltreffende geneesmiddelen te ontwikkelen is druk, maar dit proces is belemmerd door het gebrek aan gezuiverd CFTR voor het screenen van kleine moleculen. Het oplossen van de CFTR expressie en zuivering probleem zou high-throughput screening van geneesmiddelen gericht op het corrigeren van de primaire defect in CF staat en zou ook open te stellen een route voor structurele studies van hoge-resolutie te rational drug design informeren. Zelfs relatief eenvoudige biochemische eigenschappen van het eiwit, zoals de functionele oligomere toestand interagerende eiwitten en ATPase activiteit blijven slecht gekarakteriseerd. We hebben eerder gemeld een protocol voor de grootschalige expressie van GFP-en His-gelabelde muizen CFTRin S. cerevisiae 14 en nu verder protocollen beschrijven de zuivering van CFTR. Wij hebben deze methoden vijf orthologen van CFTR en presenteren gegevens te zuiveren voor het zuiveren van kip CFTR als voorbeeld. De selectie van wasmiddelen voor solubilisatie en zuivering is een kritische stap bij de zuivering van een membraaneiwit. Na gescreend op de oplosbaarheid van CFTR in verschillende wasmiddelen, kozen we twee contrasterende wasmiddelen voor gebruik bij de zuivering. Dodecyl-β-D-maltoside (DDM) is een niet-ionische detergens dat uitgebreid gebruikt voor zowel structurele en functionele studies van membraaneiwitten 15-21. De ionische detergens 1-tetradecanoyl-sn-glycero-3-fosfo-(1'-rac-glycerol) (LPG-14) is zeer efficiënt in de solubilisatie van CFTR en is eerder toegepast bij de zuivering van functionele membraaneiwitten 10, 22,23, waaronder zuivering van CFTR uit S. cerevisiae 24.
Protocol
1. Bereiding van Buffers
- Om de 100x voorraad van proteaseremmer maken (PI) cocktail ontbinden 96 mg AEBSF, 3,5 mg chymostatine, 10 mg E64, 16,5 mg leupeptin, 16,5 mg pepstatine, 348 mg PMSF, en 4 mg bestatine in 20 ml DMSO. Maak 1 ml porties en bewaar bij -20 ° C. Om een 100x voorraad van benzamidine maken, los 720 mg in 20 ml ultrapuur water (DDH 2 O) en op te slaan in 1 ml fracties bij -20 ° C. Deze hoeveelheid is voldoende voor een zuiveringsstap. In alle buffers zijn PI en benzamidine voorraden gebruikt in een 1:100 verdunning.
- Bereid 'MPIB (0,3 M Tris pH 8, 0,3 M sucrose, 2 mM DTT) en "CFTR (50 mM Tris pH 8, 20% (v / v) glycerol, 1 mM DTT) buffers en chill 4 ° C . Voor gebruik, voeg 1:100 van de proteaseremmer cocktail en 1:100 benzamide volgens het volume van MPIB gebruikt om de celpellet opnieuw in suspensie (bijvoorbeeld gebruik 3,5 ml PI en 3,5 ml benzamidine in een totaal volume van 350 ml MPIB).
- Bereid solubilization buffers. Lyso-fosfatidyl glycerol-14 (LPG) solubilisatie-buffer (50 mM Tris pH 8, 10% (v / v) glycerol, 50 mM NaCl, 1 mM DTT, proteaseremmers (PI's) en 4% (w / v) LPG) en dodecylmaltoside (DDM) solubilisatie-buffer (50 mM Tris pH 8, 20% (v / v) glycerol, 1 M NaCl, 1 mM DTT, proteaseremmers, 4% (w / v) DDM). Buffer kan worden behandeld met geluidsgolven in een sonicator bad (35 W, 40 kHz) om te helpen met verspreiding van het wasmiddel, maar vermijd vortexen het mengsel, als dit leidt tot bubbels. Chill tot 4 ° C voor gebruik.
- CFTR zuivering buffer voor LPG zuivering 50 mM Tris, 10% (v / v) glycerol, 50 mM NaCl, 1 mM DTT, 0,1% (w / v) LPG-14 en proteaseremmers. Bereid 350 ml van deze buffer en 150 ml van dezelfde buffer plus 1 M imidazol. Stel de pH van beide buffers 8.
- De buffer voor zuivering in DDM bestaat uit 50 mM Tris pH 8, 20% (v / v) glycerol, 1 M NaCl, 1 mM DTT, 0,1% (w / v) DDM. Bereid 350 ml van deze buffer en 150 ml van dezelfde buffer plus 1 M imidazole. Stel de pH van beide buffers 8.
- Voor gelpermeatiechromatografie (GPC) buffer die LPG, bereid 50 mM Tris pH 8, 10% (v / v) glycerol, 50 mM NaCl, 1 mM DTT, 0,05% (w / v) LPG-14. Voor GPC met DDM bereiden van een buffer van 50 mM Tris pH 8, 20% (v / v) glycerol, 1 M NaCl, 1 mM DTT, 0,1% (w / v) DDM. Alle buffers en DDH 2 O gebruikt op de GPC-kolom worden gefiltreerd (0,2 urn filter) en ontgast vóór gebruik.
- SDS-PAGE monsterbuffer (2x de werkconcentratie): 50 mM Tris-HCl pH 7,6, 5% (v / v) glycerol, 5 mM EDTA, 0,02% (w / v) broomfenolblauw. Maak 700 ul porties en bewaar bij -20 ° C. Voor gebruik, voeg 200 pl 20% (w / v) natriumdodecylsulfaat (SDS) en 100 gl vers 0,5 M DTT. Incubeer gedurende ten minste 10 minuten met monster bij kamertemperatuur voordat op gel. Niet verwarmen; dit zal de GFP denatureren en kunnen leiden CFTR aggregeren.
- Om lipide voorraden maken reconstitutie oplossen een 4:1 (w / w) mengsel van E. coli lipiden eend cholesterol in chloroform en methanol (2:1 v / v), en droog in een glazen flesje onder N2-gas gedurende 2 uur tot een lipide film te vormen. Voeg GPC buffer (zonder NaCl) een lipide concentratie van 40 mg / ml en herhaald gebruik vortexen en sonicatie (35 W, 40 kHz) aan de oplossing verduidelijken.
- Voor de ATPase assay bereiden 100x voorraden ATPase inhibitoren door het oplossen SCH28080 tot 1 mM in DMSO, NaSCN 1 M in DDH 2 O en oligomycine 2,5 mM in 100% (v / v) ethanol. Bewaren in aliquots bij -20 ° C. Voeg 100 ml ATPase buffer met 50 mM Tris pH 7,4, 150 mM NH4Cl, 5 mM MgSO4 en 0,02% (gew / vol) NaN3. Dit kan worden bewaard bij kamertemperatuur en gebruikt voor verschillende testen. Bereid een 5 mM ATP voorraad onmiddellijk voorafgaand aan het gebruik en blijf op ijs. (NB Gebruik Na 2 ATP buitensporige achtergrondsignaal voorkomen fosfaat in de test). Bereid de SDS stopoplossing (12% (w / v) SDS in DDH 2 O).
- Voor de detectie Chifflet bereiden buffer A (3% (w/ V) ascorbaat, 0,5% (w / v) ammoniummolybdaat, 0,5 M HCl) onmiddellijk voor gebruik en buffer B (2% (w / v) natriumcitraat, 2% (w / v) natrium meta-arseniet, 2% (v / v) azijnzuur).
2. Isolatie van Gist Microsomen
- S. cerevisiae tot expressie kip CFTR worden gekweekt als beschreven in O'Ryan et al.. (2012) 14. Bewaar het materiaal van een 20 L fermentatie in twee fracties bij -80 ° C maximaal 6 maanden.
- Ontdooi een portie van de cellen snel en opnieuw in suspensie in 3 ml gekoelde MPIB per gram cellen.
- Verstoren cellen in een kraal molen met behulp van glazen kralen van 425-600 micrometer diameter. Gebruik vijf 1 min periodes van celdisruptie gescheiden door 1 min. rusttijden. (De rusttijden van essentieel belang dat de cellen niet gedurende verstoring worden verhit.)
- Monitor cel verstoring door centrifugeren van 1 ml van het cellysaat van de parelmolen. Centrifuge (12.000 xg, 4 ° C, 5 min) in een bench top centrifuge. Verdun de bovenstaande vloeistof om 01:50 met MPIB in een cuvet en meet de A 380. Als A 380> 0,1, of is gestopt met het verhogen ondanks diverse herhaalde kraal-beating cycli, gaat u verder met de volgende stap. Zo niet, herhaal 2,3-2,4.
- Centrifugeer het totale cellysaat (12.000 x g, 4 ° C, 20 min). Bewaar het supernatant. Gooi de pellet (met gebroken cellen en mitochondria), maar als er enige twijfel over de efficiëntie van de cel breken (zie 2.4), dan behouden de pellet ook.
- Centrifugeer het supernatant van de voorgaande stap (200.000 x g, 4 ° C, 1,5 uur). Verwijder het supernatant en resuspendeer de gepelleteerde microsomale membranen in CFTR buffer. Als de microsomen bestemd voor zuivering middels DDM vult deze CFTR buffer met 1 M NaCl.
- Herhaal het centrifugeren van de geresuspendeerd membraan fractie (100.000 x g, 4 ° C, 1 uur) en de bovenstaande vloeistof.
- Resuspendeer het ingehulde microsomen ineen minimaal volume van CFTR buffer (eindvolume 5-15 ml, totaal microsomale eiwitten 70-200 mg). Een Bradford assay kan worden gebruikt om de totale concentratie van microsomale eiwitten 25 bepalen. Naast de fluorescentie emissiespectrum van de membranen moet worden gemeten (excitatie = 485 nm, emissie = 500-600 nm) en derhalve een zelfstandige GFP fluorescentie piek (maximum bij 512 nm) te hebben. CFTR kan specifiek worden gedetecteerd op een SDS-PAGE gel onder GFP fluorescentie omstandigheden gescand (figuur 1).
- Flash-vries het geresuspendeerd microsomen door het onderdompelen in vloeibare stikstof en bewaar bij -80 ° C, of ga verder met stap 3.
3. Oplossen van microsomen
- Indien bevroren, ontdooien microsomen vlak voor gebruik in een waterbad ingesteld op 10 ° C.
- Voor de solubilisatie van membranen verdunnen microsomen met een gelijk volume van de desbetreffende solubilisatie buffer (stap 1.3) tot een uiteindelijke concentratie van detergens geven2% (w / v) en een microsomale proteïneconcentratie 5 mg / ml. Incubeer dit mengsel gedurende 1 uur bij 4 ° C onder schudden (buis rotator). Behoud 200 ul voor analyse.
- Centrifugeer het mengsel (100.000 x g, 4 ° C, 45 min). Verwijder het supernatant dat het oplosbaar membraaneiwitten, doorgeven door een 0,45 urn spuitfilter en bewaren op ijs. Meet de fluorescentie van de supernatant (zoals in stap 2.8).
- Resuspendeer de onoplosbare fractie in 1% (w / v) SDS oplossing tot een volume gelijk aan de oplosbare fractie. Meet de fluorescentie in deze fractie behouden en een portie van 50 pl van SDS-PAGE-analyse.
4. Nickel-affiniteitszuivering van CFTR
- Link twee 5 ml nickel sepharose kolommen in serie. Wassen met 2 kolomvolumes (CV) 20% (v / v) ethanol, gevolgd door 2 CV DDH 2 O, dan was de kolom met 2 CV van solubilisatie buffer (stap 1,4-1,5), met 1 M imidazol. Herhaal dit met 2 CV van solubilization buffer ontbreekt imidazool.
- Imidazool Aan een eindconcentratie van 5 mM aan het opgeloste materiaal (stap 2.8) en het materiaal handmatig naar de kolom of in een sample loop bij gebruik van een geautomatiseerd vloeistofchromatografie apparaat.
- Plaats het opgeloste materiaal op de kolom met een stroomsnelheid van 0,5 ml / min, en wassen met 2 CV van imidazool ontbreekt buffer bij dezelfde stroomsnelheid om ongebonden materiaal te verwijderen. Verzamel fracties in 50 ml Falcon buizen.
- Voor de eerste wasbeurt, gebruik 3 CV van zuivering buffer met 40 mM imidazool bevat met een stroomsnelheid van 1 ml / min. Verzamel 2 ml fracties.
- Voor de tweede maal spoelen, gebruik dan 3 CV van zuivering buffer met 100 mM imidazol. Verzamel 2 ml fracties.
- CFTR elueren uit de kolom HisTrap met 3 CV van zuivering buffer met 400 mM imidazool. Verzamel 2 ml fracties.
- Monitor fluorescentie in geëlueerd fracties (Stap 2.8).
- Behouden fracties van piekfracties voor SDS-PAGE-analyse. Flash bevriezen resterende piek freactieproducten monsters en bewaar bij -80 ° C, of doorgaan naar de volgende zuiveringsstap.
5. Gel Permeatie Chromatografie (GPC) Zuivering van CFTR
- Equilibreer de kolom (Superose 6 10/300 GL) met 1,2 CV DDH 2 O, gevolgd door 1,2 CV GPC buffer.
- In stap 5.1, concentreren de Ni-affiniteit gezuiverde fracties met de hoogste GFP-fluorescentie met een 100.000 MWCO centrifugale filter bij 4 ° C. Als zuiveren in DDM vermijden concentreren van het monster boven een eiwitconcentratie van 0,3 mg / ml eiwit, omdat dit significante steekproef veroorzaken. Verwijder het retentaat uit de concentrator en centrifugeer bij 100.000 x g gedurende 30 min bij 4 ° C om grote deeltjes neer te slaan.
- Injecteer dit monster in de kolom en elueer met een isocratisch stijgingspercentage van 1,2 CV GPC buffer. Verzamel fracties van 0,5 ml.
- Meet GFP-fluorescentie zoals in paragraaf 2.8 aan die fracties die CFTR identificeren. Behouden van een klein volume (bijvoorbeeld </ Em> 50 pl) van elk voor analyse door SDS-PAGE.
- Freeze fracties in vloeibare stikstof en bewaar bij -80 ° C.
6. Reconstitutie van CFTR
- Lipiden (stap 1.8) In de gezuiverde CFTR op lipide-to-eiwitverhouding 100:1 (w / w) en incuberen bij 4 ° C gedurende 1 uur. Ook het opzetten van een enkel-lipidecontrole, vervangende gezuiverde eiwit met hetzelfde volume buffer GPC.
- Verwijder wasmiddel het eiwit / lipide mengsel met hydrofobe adsorberende korrels. Was adsorbens kralen in 5 CV DDH 2 O 5 CV 70% (v / v) ethanol, 5 CV DDH 2 O en 5 CV GPC buffer zonder het detergens. Voeg 200 mg gewassen adsorbens kralen per ml gezuiverd eiwit en incuberen bij 4 ° C geïncubeerd onder zacht schudden.
- Verzamel de reconstructie monster van het adsorptiemiddel kralen in een nieuwe buis met behulp van een dunne-ended pipet tip.
7. Meting van ATPase activiteit
- Bepaal de snelheid van CFTR-specifieke ATPase activiteit met een gemodificeerde Chifflet assay 26,27 in een 96-well plaat formaat. Met natriumfosfaat voorraadoplossing (0.65 mM) bereiden 0-20 nmol fosfaat in een eindvolume van 50 pl als standaarden. Gebruik een 01:01 mengsel van CFTR buffer en ATPase buffer om de fosfaatvoorraadoplossing verdunnen.
- Incubeer zowel gereconstitueerde CFTR en lege liposomen met 1:100 (v / v) ATPase remmers (stap 1.9) op ijs gedurende 10 minuten. Gebruik minimaal 5 ug van gereconstitueerde CFTR.
- Voeg ATP (stap 1.9) tot een eindconcentratie van 2 mM en incubeer bij 25 ° C gedurende 1 uur. Stop de reactie door toevoeging van 40 ui 10% (w / v) SDS (Stap 1.9) aan elk putje (inclusief standaarden).
- Voeg 100 ul buffer A (stap 1.10) en incubeer gedurende 10 minuten. Voeg 100 ul buffer B (1.10) aan elk putje en meet de absorptie bij een golflengte van 800 nm in een 96-wells plaat-compatibele UV / Vis spectrofotometer.
- Converteren absorptie bij 800 nm in een hoeveelheid vrijgekomen fosfaat via defosfaat standaarden. Bereken de snelheid van ATP hydrolyse na aftrek achtergrond signaal (liposoom alleen-putten).
- Voor niet-opgeloste CFTR volgen hetzelfde protocol met behulp van CFTR buffer voor de achtergrond lezingen.
Resultaten
De hierboven beschreven protocol is een efficiënt middel om CFTR verrijkt microsomen, bijna volledig herstel van CFTR sluiten tijdens het breken van de cellen en de bereiding van het ruwe microsomen (figuur 1). Andere mobiele breuk werkwijzen kunnen ook effectief worden toegepast. We hebben een Franse drukcel en andere high-pressure/cavitation inrichtingen (ook in combinatie met deur tegen een robijn doel) gebruikt met gelijke efficiëntie. Voor het gemak en de lage aanschafkosten van de apparatuur, vinden we de kraal-beating-methode de beste.
Het gebruik van LPG aan het oplosbaar en te zuiveren CFTR leverde 80 ug eiwit / L cultuur bij> 90% zuiverheid (figuur 2). De hoge opbrengst was door efficiënt solubilisatie van CFTR op LPG (vergelijk figuur 2b, banen 2 en 4). Bovendien, efficiënte en sterke binding aan de kolom geleid minimaal verlies van CFTR in de gebonden fractie en het ontbreken van CFTR in de was fracties (Figuur 2, lanen 3, 5, en6). Het geëlueerde eiwit had een zuiverheid van> 90%, geschat door Coomassie-gekleurde SDS-PAGE gelen en met densitometrie van CFTR en verontreiniging bands. Gel permeatie chromatografie (GPC) gescheiden LPG gezuiverd CFTR van laagmoleculaire verontreinigingen (figuur 4, onderste paneel).
Het protocol voor CFTR zuivering met gebruik DDM geeft zuiverheid van ongeveer 60% en opbrengst van ongeveer 50 ug / L (figuur 3). Elektronenmicroscopie (EM) van negatief gekleurde fracties uit de GPC eluerend bij ongeveer 10 ml (figuur 4) blijkt dat DDM-gezuiverde CFTR bevat aggregaten van 20-30 nm diameter en kleinere deeltjes van 10 nm diameter (gegevens niet getoond). Het is mogelijk dat de kleine aggregaten reversibel kan associëren en dissociëren als ultrafiltratie met 1 MDa cut-off filter niet de EM-detecteerbare aggregaten te verwijderen. LPG-gezuiverde materiaal niet adsorberen aan een gloed ontladen rooster, dus werd bestudeerd door cryo-EM van ongekleurde fracties. Dit toondeeen zeer homogene deeltjespopulatie van betrekkelijk geringe omvang (6-8 nm diameter, gegevens niet getoond).
Tenslotte, de ATPase activiteit van de gezuiverde eiwitten werd gemeten (Figuur 5). Als lid van de ABC eiwitfamilie, CFTR twee nucleotide-bindende domeinen (NBD) kan binden en / of hydrolyse van ATP. De gegevens geven aan dat het gezuiverde eiwit niet kon ATP hydrolyseren in de LPG-opgeloste toestand en vertoonde zwakke ATPase activiteit in aanwezigheid van DDM (figuur 5, ongevulde bars). Na de toevoeging van lipiden en detergensverwijdering, ATPase-activiteit werd 4 maal hoger voor monsters die gezuiverd waren in DDM (13 nmol ATP / min / mg eiwit). De toevoeging van lipiden en verwijdering van LPG eveneens hersteld activiteit CFTR die geïsoleerd waren met LPG, maar met een laatste lager (1,5 nmol ATP / min / mg eiwit) dan de DDM-gezuiverd en gereconstitueerd materiaal.

Figuur 1. Bewakingsniveaus kip CFTR in cellysaat (CL), supernatanten (S) en pellets (P) in verschillende centrifugatiestappen voor microsoompreparaten isolatie en wassen. SDS-PAGE gelen werden gevisualiseerd met behulp van de in-gel fluorescentie van de GFP tag. De supernatant na breken van de cellen en centrifugeren bij 14.000 xg bevat vrijwel alle CFTR (waaronder afbraakproducten). Ultracentrifugatie bij 200.000 xg sedimenten de volledige lengte CFTR waardoor sommigen fragmenten in het supernatant. Ultracentrifugatie bij 100.000 xg van zout gewassen microsomen pellets bijna alle CFTR met de verwijdering van enige verdere fragmenten.
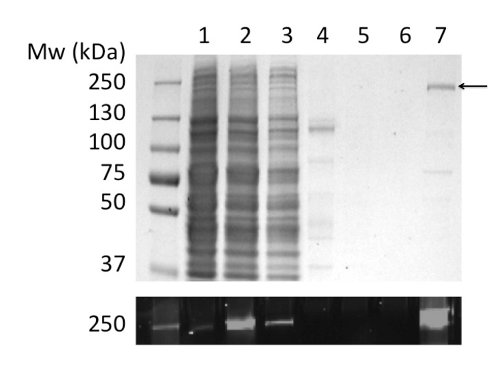
Figuur 2. Zuivering kip CFTR LPG door geïmmobiliseerde metaalion affiniteitschromatografie. Fracties werden geanalyseerd door SDS-PAGE gevolgd door Coomassie kleuring (bovenste paneel) en fluorescentiedetectie van de GFP-tag (onderste paneel). Tracks: (1) Microsomen. (2)-LPG opgelost microsomen. (3) Niet geconsolideerd materiaal. (4) Onoplosbaar materiaal. (5) en (6) 40 en 100 mM imidazool wasbeurten. (7) Materiaal geëlueerd met 400 mM imidazool.
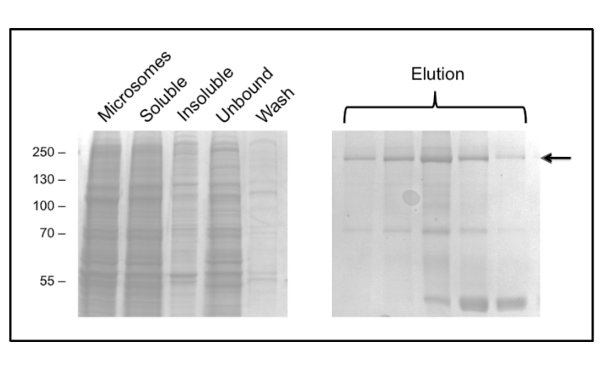
Figuur 3. Zuivering kip CFTR in DDM door geïmmobiliseerde metaalion affiniteitschromatografie. Fracties werden geanalyseerd door SDS-PAGE gevolgd door Coomassie kleuring. Het linker paneel toont fracties voorafgaand aan elutie. Verschillende opeenvolgende elutie fracties worden getoond in het rechter paneel CFTR indicated door de pijl. Latere fracties verrijkt met een 40 kDa verontreiniging, die is geïdentificeerd door massaspectrometrie als ribosomaal eiwit L3.
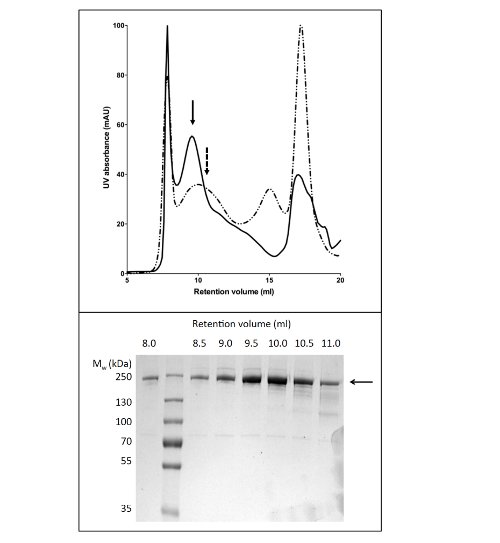
Figuur 4. Zuivering kip CFTR met gelpermeatiechromatografie. CFTR gezuiverd door Ni-affiniteitschromatografie werd geconcentreerd en aangebracht op een GPC-kolom. Het elutieprofiel voor CFTR (bovenste paneel) gezuiverd in een buffer met LPG-14 (vaste lijn) of DDM (stippellijn) worden bedekt. SDS-PAGE (onderste paneel) bleek dat CFTR elueerde tussen 8 en 11 ml.
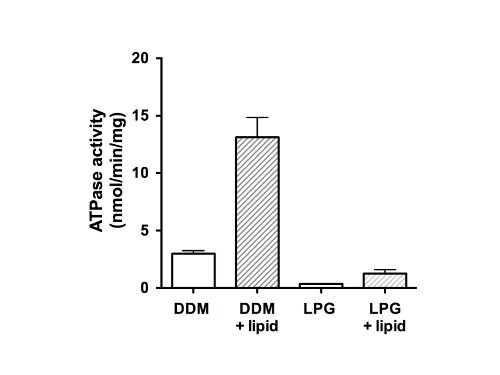
Figuur 5. ATPase activity gezuiverd kip CFTR fracties. eiwit gezuiverd DDM of LPG werd getest met behulp van een gemodificeerde Chifflet test 26 in aanwezigheid van een cocktail van ATPase remmers tegen de achtergrond ATPase-activiteit verwijderen uit F-, P-en V-ATPasen (ongevuld staven ). De snelheid van ATP hydrolyse werd ook gemeten na detergensverwijdering en lipide toevoeging (gevulde repen). De grafiek toont het gemiddelde en de standaarddeviatie (n = 3). Verschillen tussen gemiddelden van ATPase-activiteit in aanwezigheid en afwezigheid van lipiden en tussen activiteit DDM en LPG significant p <0,05.
Discussie
Wij hebben eerder beschreven een werkwijze voor de overexpressie van muizen CFTR 14. Sinds de publicatie van dat protocol, hebben we expressie gebracht en gezuiverd verschillende orthologen van CFTR met hetzelfde systeem. Alle orthologen getest dusver goed gezuiverd LPG wasmiddel, terwijl de DDM zuivering vertoonden meer variatie tussen verschillende orthologen (gegevens niet getoond). Deze flexibiliteit geeft de sterkte van de gist benadering: het is mogelijk om vele constructen betrekkelijk snelheid screenen teneinde een voor een bepaald doel te selecteren.
Het wassen van de gist microsomen met een buffer met 1 M NaCl voorafgaand aan het oplosbaar met DDM resulteert in een schoner microsoom voorbereiding en vermindert de verontreinigingen in latere stadia. Deze stap is niet nodig in de LPG-protocol als de laatste CFTR monster is> 90% zuiver, zonder de microsoom wassen. Bovendien, zuivering in DDM vereist een aantal aanpassingen aan de buffers voor een oplosbaarnd zuivering, namelijk het toevoegen van extra glycerol en zout. Samen vormen deze toevoegingen aanzienlijke toename binding van de DDM-oplosbaar eiwit aan de kolom.
De DDM zuivering methodologie biedt ruimte voor verbetering, in het bijzonder de verwijdering van een 40 kDa grote verontreinigingen die, beoordeeld door massaspectrometrie, is door de gist ribosomale subeenheid L3, die lijkt een inherente affiniteit voor de nikkel hars. Er is geen duidelijke polyHis sequentie in de L3 eiwit, maar onderzoek van de 3D-structuur wanneer gebonden aan het ribosoom (VOB = 1FFK) blijkt dat de gevouwen L3 subeenheid potentiële polyHis cluster. Dat deze band minder problematisch LPG gezuiverde materiaal kan door het hardere LPG wasmiddel.
Hoewel de zuivering in DDM lijkt slechter dan die in LPG zijn, kan milder detergenten zoals DDM meer compatibel met functionele en structurele analyses en zijn al gebruikt in diverse X-ray crystallographic studies van membraaneiwitten 15-21. Bovendien, onze resultaten aan dat het gebruik van LPG leidt tot verlies van ATPase functie CFTR opzichte zuivering in DDM. Daarom zouden we de LPG-gebaseerde zuiveringsvoorschrift aanbevolen voor het genereren van CFTR waarbij de zuiverheid cruciaal is, bijvoorbeeld in toepassingen zoals de karakterisatie van post-translationele modificaties, of het genereren van antilichamen, de LPG-gebaseerd protocol worden gekozen . Anderzijds in toepassingen waar de activiteit en volledig natieve toestand van het eiwit essentieel is, zouden we de DDM-gebaseerd protocol voorgesteld als een betere optie.
Tot slot, dit protocol beschrijft een reproduceerbare methode voor het isoleren van CFTR in zwitterionische detergens LPG-14 of niet-ionisch detergens DDM. Als zodanig geeft een groter bereik van zuiveringsomstandigheden voor CFTR dan eerder gerapporteerd 10-13. Bovendien milligram hoeveelheden gezuiverde CFTR kanverkregen met behulp van deze procedures in combinatie met een hoog volume gistgroei systeem, zoals een 20 L vergister en een hoge capaciteit cel oogsten zoals een 6 L lage snelheid centrifuge rotor. De verkregen CFTR heeft een splitsbaar GFP-tag die eenvoudige controle van het eiwit in verschillende biochemische en biofysische analyses maakt.
De in dit manuscript (kip-CFTR bevattend plasmide of bevroren gistcellen) beschreven reagens kan worden verkregen via de Cystic Fibrosis Foundation (USA).
Openbaarmakingen
De auteurs hebben geen concurrerende financiële belangen of andere tegenstrijdige belangen met betrekking tot dit werk.
Dankbetuigingen
Dit werk werd gefinancierd door de Amerikaanse Cystic Fibrosis Foundation (CFF) via haar CFTR 3D Structuur Consortium. TR werd gefinancierd door een Britse CF Trust studententijd, en NC door een Britse BBSRC studententijd. Wij erkennen onze collega's in de CFF CFTR 3D-structuur consortium voor hun hulp en advies en voor het ontwerp van de-codon geoptimaliseerde kip CFTR volgorde en zuivering tags.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0.2 μm syringe filter | Sartorius | FC121 | |
| 100 kDa MWCO centrifugal concentrator (PES membrane) | Vivaspin | VS0641 | |
| 2 ml microfuge tubes | Sarstedt | 72.695 | |
| 40Ti rotor | Beckman Coulter | 337901 | |
| 50 ml sterile Falcon tubes | Sarstedt | 62.547.254 | |
| Adenosine triphosphate disodium salt (Na2ATP) | Sigma-Aldrich | A26209 | |
| Liquid chromatography system | GE Healthcare | 28-4062-64 | |
| Aminoethylbenzenesulfonyl fluoride (AEBSF) | Sigma-Aldrich | A8456 | |
| Glass bead-beating cell disrupter | BioSpec | 1107900 | |
| Benchtop centrifuge | HERMLE | Z300 | |
| Benchtop centrifuge | Eppendorf | 5417R | |
| Benchtop microfuge | Fisher | 13-100-511 | |
| Benzamidine hydrochloride | Sigma-Aldrich | 434760 | |
| Hydrophobic Beads SM-2 Adsorbent | BioRad | 152-3920 | |
| Bromophenol blue | Sigma-Aldrich | 114391 | |
| Centrifuge tubes | Beckman Coulter | 357000 | |
| Gel imaging system | BioRad | 170-808 | |
| Cholesterol | Sigma-Aldrich | C8667 | |
| Chymostatin | Sigma-Aldrich | C7268 | |
| Dimethylsulfoxide (DMSO) | Sigma-Aldrich | D8418 | |
| Dithiothreitol (DTT) | Sigma-Aldrich | 43815 | |
| E. coli total lipid extract | Avanti lipids | 100500 | |
| Epoxysuccinyl-leucylamido-butane (E-64) | Sigma-Aldrich | E3132 | |
| Glass beads, acid washed | Sigma | G8772 | |
| Glycerol | Fisher | 65017 | |
| HisTrap HP columns (5 ml) | GE Healthcare | 17-5247-05 | |
| Rapid Coomassie Stain | Novexin | ISB1L | |
| Centrifuge JA-17 rotor | Beckman Coulter | 369691 | |
| Leupeptin | Merck | 108975 | |
| Lyso-phosphatidyl glycerol-14 (LPG) | Avanti lipids | 858120 | |
| MgSO4 | Sigma-Aldrich | M7506 | |
| Gel tank SDS-PAGE system | BioRad | 165-8006 | |
| n-Dodecyl-β-D-maltopyranoside (DDM) | Affymetrix | D310S | |
| NaCl | Sigma-Aldrich | S6191 | |
| NaN3 | Sigma-Aldrich | S2002 | |
| NH4Cl | Sigma-Aldrich | A9434 | |
| Oligomycin | Sigma-Aldrich | 75351 | |
| Ultracentrifuge | Beckman Coulter | 392050 | |
| Prestained protein standards | Fermentas | SM1811 | |
| Desalting columns (Sephadex G-25) | GE Healthcare | 17-0851-01 | |
| Pepstatin A | Sigma-Aldrich | P4265 | |
| Phenylmethanesulfonylfluoride (PMSF) | Sigma-Aldrich | P7626 | |
| SCH28080 | Sigma-Aldrich | S4443 | |
| Sodium dodecyl sulfate (SDS) | Sigma-Aldrich | L37771 | |
| Sodium thiocyanate (NaSCN) | Sigma-Aldrich | 251410 | |
| Gel filtration 10/300 GL column | GE Healthcare | 17-5172-01 | |
| Tris-base | Formedium | TRIS01 | |
| Ultracentrifuge tubes | Beckman Coulter | 355618 | |
| Vortex mixer | Star Labs | N2400-0001 | |
| Ultrasonic water bath | Ultrawave | F0002202 | |
| Multimode plate reader | BioTek | BTH1MF |
Referenties
- Aleksandrov, A. A., Aleksandrov, L. A., Riordan, J. R. CFTR (ABCC7) is a hydrolyzable-ligand-gated channel. Pflugers Arch. 453, 693-702 (2007).
- Dodge, J. A., Lewis, P. A., Stanton, M., Wilsher, J. Cystic fibrosis mortality and survival in the UK: 1947-2003. EUR RESPIR J. 29, 522-526 (2007).
- O'Sullivan, B. P., Freedman, S. D. Cystic fibrosis. Lancet. 373, 1891-1904 (2009).
- Rommens, J. M., et al. Identification of the cystic fibrosis gene: chromosome walking and jumping. Science. 245, 1059-1065 (1989).
- Kariya, C., et al. A role for CFTR in the elevation of glutathione levels in the lung by oral glutathione administration. Am J Physiol Lung Cell Mol Physiol. 292, (2007).
- Gould, N. S., Min, E., Martin, R. J., Day, B. J. CFTR is the primary known apical glutathione transporter involved in cigarette smoke-induced adaptive responses in the lung. Free Radic Biol Med. 52, 1201-1206 (2012).
- Childers, M., Eckel, G., Himmel, A., Caldwell, J. A new model of cystic fibrosis pathology: lack of transport of glutathione and its thiocyanate conjugates. Med Hypotheses. 68, 101-112 (2007).
- Cole, S. P., et al. Overexpression of a transporter gene in a multidrug-resistant human lung cancer cell line. Science. 258, 1650-1654 (1992).
- Conseil, G., Deeley, R. G., Cole, S. P. Polymorphisms of MRP1 (ABCC1) and related ATP-dependent drug transporters. Pharmacogenet Genomics. 15, 523-533 (2005).
- Ketchum, C. J., Rajendrakumar, G. V., Maloney, P. C. Characterization of the adenosinetriphosphatase and transport activities of purified cystic fibrosis transmembrane conductance regulator. Biochemistry. 43, 1045-1053 (2004).
- Ramjeesingh, M., et al. A novel procedure for the efficient purification of the cystic fibrosis transmembrane conductance regulator (CFTR). Biochem J. 327 (Pt 1), 17-21 (1997).
- Huang, P., Liu, Q., Scarborough, G. A. Lysophosphatidylglycerol: a novel effective detergent for solubilizing and purifying the cystic fibrosis transmembrane conductance regulator. Anal Biochem. 259, 89-97 (1998).
- Rosenberg, M. F., Kamis, A. B., Aleksandrov, L. A., Ford, R. C., Riordan, J. R. Purification and crystallization of the cystic fibrosis transmembrane conductance regulator (CFTR). J Biol Chem. 279, 39051-39057 (2004).
- O'Ryan, L., Rimington, T., Cant, N., Ford, R. C. Expression and purification of the cystic fibrosis transmembrane conductance regulator protein in Saccharomyces cerevisiae. J Vis Exp. , (2012).
- Oldham, M. L., Chen, J. Snapshots of the maltose transporter during ATP hydrolysis. Proc Natl Acad Sci USA. 108, 15152-15156 (2011).
- Pinkett, H. W., Lee, A. T., Lum, P., Locher, K. P., Rees, D. C. An inward-facing conformation of a putative metal-chelate-type ABC transporter. Science. 315, 373-377 (2007).
- Dawson, R. J. P., Locher, K. P. Structure of a bacterial multidrug ABC transporter. Nature. 443, 180-185 (2006).
- Gerber, S., Comellas-Bigler, M., Goetz, B. A., Locher, K. P. Structural basis of trans-inhibition in a molybdate/tungstate ABC transporter. Science. 321, 246-250 (2008).
- Ward, A., Reyes, C. L., Yu, J., Roth, C. B., Chang, G. Flexibility in the ABC transporter MsbA: Alternating access with a twist. Proc Natl Acad Sci USA. 104, 19005-19010 (2007).
- Kadaba, N. S., Kaiser, J. T., Johnson, E., Lee, A., Rees, D. C. The high-affinity E. coli methionine ABC transporter: structure and allosteric regulation. Science. 321, 250-253 (2008).
- Aller, S. G., et al. Structure of P-Glycoprotein Reveals a Molecular Basis for Poly-Specific Drug Binding. Science. 323, 1718-1722 (2009).
- Koehler, J., et al. Lysophospholipid micelles sustain the stability and catalytic activity of diacylglycerol kinase in the absence of lipids. Biochemistry. 49, 7089-7099 (2010).
- Tian, C., et al. Preparation, functional characterization, and NMR studies of human KCNE1, a voltage-gated potassium channel accessory subunit associated with deafness and long QT syndrome. Biochemistry. 46, 11459-11472 (2007).
- Huang, P., Liu, Q., Scarborough, G. A. Lysophosphatidylglycerol: a novel effective detergent for solubilizing and purifying the cystic fibrosis transmembrane conductance regulator. Anal Biochem. 259, 89-97 (1998).
- Bradford, M. M. A rapid and sensitive method for the quantitation of microgram quantities of protein utilizing the principle of protein-dye binding. Anal Biochem. 72, 248-254 (1976).
- Chifflet, S., Torriglia, A., Chiesa, R., Tolosa, S. A method for the determination of inorganic phosphate in the presence of labile organic phosphate and high concentrations of protein: Application to lens ATPases. Analytical Biochemistry. 168, 1-4 (1988).
- Rothnie, A., et al. The importance of cholesterol in maintenance of P-glycoprotein activity and its membrane perturbing influence. Eur Biophys J. 30, 430-442 (2001).
Herprints en machtigingen
