Hier beschrijven we een methode om een gerichte siRNA "ubiquitome" scherm om nieuwe ubiquitine en ubiquitine-achtige regulatoren van de-HIF1a gemedieerde cellulaire respons op hypoxie identificeren voeren. Dit kan worden aangepast aan elke biologische weg wanneer een robuuste uitlezing van reporter-activiteit beschikbaar.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
siRNA Screening naar Ubiquitin en Ubiquitin-achtig systeem regulatoren van biologische pathways identificeren in gekweekte zoogdiercellen
In dit artikel
Samenvatting
Samenvatting
Post-translationele modificatie van proteïnen met ubiquitine en ubiquitine-achtige moleculen (UBLS) is in opkomst als een dynamische cellulaire signalerende netwerk dat diverse biologische processen zoals de hypoxierespons, proteostasis de DNA schade respons en transcriptie reguleert. Om beter te begrijpen hoe UBLS reguleren wegen naar menselijke ziekten relevant, hebben we een mens siRNA gecompileerd "ubiquitome" bibliotheek bestaande uit 1186 siRNA duplex zwembaden gericht zijn op alle bekende en voorspelde componenten van UBL systeem trajecten. Deze bibliotheek kan worden gescreend tegen een reeks van cellijnen die verslaggevers van diverse biologische pathways te bepalen welke UBL onderdelen fungeren als positieve of negatieve regulatoren van de route in kwestie. Hier beschrijven we een protocol gebruik deze bibliotheek ubiquitome-regulatoren van de HIF1a-gemedieerde cellulaire respons op hypoxie via een transcriptie gebaseerde luciferase reporter identificeren. Een eerste test ontwikkelingsfasewordt uitgevoerd om geschikte screening parameters van de cellijn vast voordat u het scherm in drie fasen: de primaire, secundaire en tertiaire / deconvolutie screening. Het gebruik van gerichte dan hele genoom siRNA bibliotheken wordt steeds populairder want het biedt het voordeel van de rapportage alleen de leden van het pad waarmee de onderzoekers zijn het meest geïnteresseerd. Ondanks de inherente beperkingen van siRNA screening, met name vals-positieven door siRNA off-target effecten, de identificatie van echte nieuwe regulatoren van de routes betrokken opwegen tegen deze tekortkomingen die worden overwonnen door het uitvoeren van een reeks zorgvuldig uitgevoerde controle-experimenten.
Inleiding
Modificatie van eiwitten met ubiquitine en ubiquitine-achtige moleculen (UBLS) vertegenwoordigt een expansieve biochemisch systeem dat diverse biologische pathways en stress reacties regelt. De covalente binding van UBLS hun doeleiwitten kunnen verschillende uitkomsten regelen van de stabiliteit, lokalisatie, functie of interactoom van het substraat 1. De enzymatische stappen onderliggende UBL modificatie werden voor het eerst vastgesteld voor ubiquitine, en nu dienen als een paradigma voor modificatie met de meeste UBLS, met inbegrip van SUMO, NEDD8, ISG15 en FAT10. Voor wijzigingen voordoen, worden de carboxylaat groep BMW diglycine motief eerst geactiveerd door een E1 activerend enzym een hoge energie-thiol dat wordt overgebracht naar de actieve plaats van een cysteïne E2 conjugerend enzym vormen. De E2 vervolgens interactie met een substraat gebonden E3 ligase overdracht van BMW bemiddelen op (meestal) een doelstelling lysinerest tot een vertakte keten (isopeptide) hefinrichting 2. Opeenvolgende ronden van modificatie kunnen ondergaan isopeptide ketens bouwen op het substraat, die voor ubiquitine kan plaatsvinden via elk van de zeven lysines of door de N-terminale methionine lineaire ubiquitine ketens maken. Deze wijzigingen vormen discrete topologieën met diverse doeleinden, zoals het creëren van nieuwe interactie motieven en targeting eiwitten voor degradatie voorafgaand aan UBL verwijdering door gespecialiseerde proteasen. Bij ubiquitine er twee enzymen E1, E2 30-40 conjugeren enzymen, ten minste 600 E3 ligasen en ongeveer 100 deubiquitylating enzymen (DUBS). Terwijl de paden zijn minder expansief voor de andere 10 of zo UBLS, de complexiteit van het geheel ubiquitome biedt enorme diversiteit in de biologische uitkomst van een bepaald UBL modificatie. Echter, terwijl de grote vooruitgang in de UBL biologie zijn gemaakt, de precieze cellulaire rollen van de meerderheid van deze ubiquitome componenten onbekend blijven.
Het gebruik van korte interfering RNA (siRNA's) is ontstaan als een krachtig instrument reverse genetica vanwege het vermogen van siRNAs specifiek gericht cellulaire mRNA voor vernietiging, waardoor de rol van individuele genen in verschillende biologische 3 contexten worden onderzocht. Hele genoom schermen zijn gebruikt om nieuwe regulatoren van vele cellulaire processen te identificeren en te valideren, en een schat aan bruikbare gegevens toegankelijk zijn voor de bredere wetenschappelijke gemeenschap hebben gecreëerd. Echter, terwijl de hele genoom schermen hebben bewezen zeer nuttig, gerichte schermen worden steeds populairder omdat ze goedkoper, sneller, betrekken minder data management en rapportering uitsluitend betrekking op de leden van het genoom waarin de onderzoeker is het meest geïnteresseerd. Daarom beter begrijpen welke cellulaire processen UBL familie componenten betrokken bij hebben wij een humane bibliotheek siRNA gericht alle bekende en voorspelde elementen van de ubiquitome samengesteld. Dit omvat de UBLS, E1 activerende enzymen, E2 conjugerendeenzymen, E3 ligasen, ubiquitine-bindend domein (UBD)-bevattende eiwitten en dubs. Deze bibliotheek kan worden gebruikt voor het screenen tegen een groot aantal reporter cellijnen van verschillende biologische problemen, waardoor de onpartijdige identificatie van nieuwe BMW onderdelen voor deze routes.
Het volgende protocol wordt beschreven hoe u een strenge gerichte siRNA ubiquitome scherm om nieuwe regelaars van het HIF1a-afhankelijke respons op hypoxie identificeren voeren. Onder normale zuurstofspanning, HIF1a is onderworpen aan prolyl hydroxylering die ervoor zorgt dat het wordt erkend en gericht voor degradatie door het Von Hippel Lindau (VHL) E3 ligase complex 4. Hypoxie remt prolyl hydroxylering leiden tot de stabilisatie van HIF1a en de daaropvolgende binding aan hypoxie respons elementen (hres) om genexpressie. Hier beschrijven we een scherm met U20S osteosarcoomcellen stabiel tot expressie vuurvlieg luciferase onder controle van drie tandem kopieën van de Hypoxia Response Element (U20S-HRE cellen) 5. Dit protocol kan worden aangepast voor elke biologische weg als een robuust aflezing van reporter activiteit haalbaar en kan worden gekoppeld met positieve en negatieve controles.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
1. Assay Development Stage
Opmerking: voorafgaand aan de inleiding van de siRNA-scherm, een test ontwikkelingsfase is van cruciaal belang om belangrijke parameters voor screening met de reporter cellijn uiteengezet. Het is essentieel om aanzienlijke moeite te investeren in dit stadium als deze het toekomstige succes van het scherm zal ondersteunen.
- De hypoxia-reactie van U20S-HRE reporter cellijn kenmerken, groei 2 x 75 cm2 flessen van U20S-HRE cellen 80-90% confluentie in Dulbecco Modified Eagle Medium (DMEM) aangevuld met 10% FBS.
- Zuig het medium van een fles van cellen, was tweemaal met 10 ml PBS en los cellen door toevoeging van 2 ml 0,05% trypsine-EDTA-oplossing en incuberen bij 37 ° C gedurende 5 minuten. Resuspendeer cellen in 8 ml DMEM 10% FBS en pipet op en neer om een homogene celsuspensie te creëren.
- Pipetteer 20 ul van de schorsing aan een cel telkamer, in tweevoud, en steek de kamer in een geautomatiseerde cel counter. Klik op "Tonen Afbeelding" op de cel teller software en zorgen voor de cellen zijn in focus. Klik op "Count" en maak een notitie van de celdichtheid. Herhaal dit voor de andere duplicaat en bereken het gemiddelde celdichtheid. Verdun de cellen met DMEM 10% FBS tot een concentratie van 60.000 cellen / ml.
- Met behulp van een multichannel pipet, voeg 100 ul (6000 cellen) van de verdunde cellen om dezelfde drie kolommen (bijv. A5-H5, A6-H6 en A7-H7) van 5 steriele witte wanden 96-well assay platen, en transfer naar een bevochtigde 37 ° C incubator bij 5% CO2 gedurende de nacht. Opmerking: deze platen worden gebruikt om de hypoxie-afhankelijke luciferase uitgang voor een reeks hypoxie blootstellingen bepalen: 0 uur, 2 uur, 6 uur, 10 uur en 24 uur.
- Aan het eind van de volgende dag, let op de tijd en voeg de 24 uur hypoxie plaat om de hypoxie werkstation ingesteld op 1% zuurstof. De volgende morgen, berekent de tijd 10 uur, 6 uur en 2 uur voor de 24 uurs plaat zal worden verwijderd frOM de hypoxie werkstation. Op die momenten, voeg de 10 uur, 6 uur en 2 uur platen om de hypoxie werkstation.
- Bereid 30 ml 2x gecombineerde luciferase lysis / testbuffer (50 mM Tris pH 7,8, 16 mM MgCl2, 2 mM DTT, 2% Triton-X-100, 30% glycerol, 1 mM ATP, 1% BSA, 0,25 mM luciferin en 8 uM Na 4 P 2 O 7). Opmerking: het toevoegen van componenten in de aangegeven volgorde en laat de BSA tenminste 30 minuten oplossen vóór de toevoeging van luciferine en Na 4 P 2 O 7.
- Verwijder alle platen uit de hypoxie werkstation op het juiste moment. Voeg 100 ul van 2x luciferase lysis / assay buffer om de juiste putjes van de testplaat en dek af met transparante folie. Schud de platen op een plaat schudder gedurende 10 min bij 500 rpm grondig lyseren van de cellen.
- Breng de plaat stapel om een geautomatiseerde 96 wells plaat luminometer rek. Onder het menu "Protocollen", selecteer "abs 595" en markeer al wells om te lezen in de plaat kaart op het scherm onder het menu "well selectie". Klik op "run" om luminescentie van elke maatregel goed bereken dan de gemiddelde waarde van elke plaat. Bereken de hypoxie-afhankelijke voudige-toename van reporter-activiteit door de gemiddelde waarde van elk hypoxie plaat te delen door de gemiddelde waarde van de normoxia (0 hr hypoxie) control plaat. Let op: het is essentieel om een robuuste hypoxie-afhankelijke luciferase reactie observeren geschikt voor de screening te zijn. Een vijf tot tien voudige toename van reporter-activiteit wordt beschouwd als uitstekend.
- Maak een master control plaat die vier high control (HIF1a siRNA) herhalingen (putten A1-D1), vier laag regeling (FIH1 siRNA) repliceert (putten A12-D12) bevat, slechts vier buffer controle herhalingen (putten E1-H1) en vier doelsoort siRNA controleduplo's (E12-H12), waar alle siRNA zwembaden zijn in een concentratie van 200 nM. Opmerking: Hoge en lage controles worden vastgesteld op basis van gekende weg toezichthouders dat verhogen en decrrespectievelijk verlichten de hypoxierespons. Alternatief kan analyseontwikkeling met een subset van de bibliotheek worden gebruikt om geschikte controles vast.
- Met behulp van een multichannel pipet 10 pi van elke controle siRNA een steriele witte ommuurde testplaat. Bereid transfectie mix van 0,1 pl transfectiereagens in 10 ul verlaagde serum medium (1:100) per well, en overdracht 10 ul van transfectie mix aan elke controle ook. Pipet op en neer kort te mengen, en laat de plaat te rusten voor 20-60 minuten tot transfectie complexe vorming mogelijk te maken.
- Bereid een celsuspensie van 75.000 cellen / ml met de tweede fles van U20S-HRE cellen. Met een multichannel pipet 80 ul (6000 cellen) van de celsuspensie elke transfectie mix. Breng de plaat een bevochtigde 37 ° C incubator met 5% CO2 gedurende 24 uur, vervolgens over een hypoxie werkstation voor een verdere 24 uur en uitvoeren luciferase assays zoals beschreven in stap 1.6-1.8.
- Bereken de Z-factor voor de hoge en lage controles met de formule Z = 1 - [3 x (standaardafwijking van hoge controle + standaardafwijking van lage controle) / (gemiddeld hoge controle - gemiddelde van lage controle)]. Opmerking: een waarde heeft van tussen 0,5-1 geeft een uitstekende test en worden nagestreefd.
2. Primaire Screen
Opmerking: zodra aan deze essentiële voorwaarden van de test ontwikkelingsfase zijn plaats is, kan het primaire scherm worden in drievoud uitgevoerd in 96 well plaat formaat met behulp van het volgende protocol.
- Kweek 7 x 75 cm2 kolven van U20S-HRE cellen 80-90% confluentie in DMEM gesupplementeerd met 10% v / v foetaal runderserum (FCS).
Opmerking: De volgende stappen 2,2-2,13 moet op dag 1 worden uitgevoerd. - Initiëren repliceren 1 door het opstellen van een master control plaat met 200 pi van elke controle zoals beschreven in stap 1.9 en het ontdooien van een verdunningsreeks van het siRNA ubiquitome library gedurende minimaal 30 minuten. Opmerking: elk putje bevat een pool van 4 siRNAs geassembleerd in 17 x 96 putjes met kolommen 1 en 12 leeg voor controles.
- In een laminaire stroming kap, etiket (of bar-code) 17 steriele wit ommuurde assayplaten met deksels uit nummers 1-17, wat overeenkomt met elke plaat van de siRNA-bibliotheek serie.
- Centrifugeer de master control plaat en siRNA ubiquitome library kort (1 min bij 2000 xg) zodat alle siRNA ophopen op de bodem van de put.
- Gebruik een geautomatiseerde vloeistof dispenser robot "stempel" 10 pi van elke controle van de master control plaat op de 17 assay platen, met dezelfde 96-opzetstuk stack voor elke plaat.
- Met een nieuwe 96-opzetstuk stack voor elk van de 17 bibliotheek platen, overdracht 10 pi van elke ubiquitome siRNA zijn overeenkomstige testplaat een geautomatiseerd vloeistofuitreiker.
- Bereid 40 ml transfectie reagens voor 17 testplaten met de verhouding established in 1.10. Opmerking: dit omvat een extra 20 ml om rekening te houden voor de "dood volume" in de cel dispenser. De "dood volume" verwijst naar de hoeveelheid vloeistof continu in het leidingennetwerk in de cel aanwezig dispenser.
- Gebruik een geautomatiseerde cel dispenser 10 gl transfectie reagens goed aan elkaar overdragen in de 17 testplaten. Kort schud de testplaten op een schudinrichting (1 min bij 500 rpm) grondig mengen en siRNA transfectie reagens toe, dan laat nog bij kamertemperatuur gedurende 20-60 minuten staan om siRNA: transfectiereagens complexvorming.
- Was twee 75 cm2 kolven van U20S-HRE cellen tweemaal met 10 ml PBS en los met 2 ml trypsine-EDTA bij 37 ° C gedurende 5 minuten. Voeg 8 ml DMEM 10% FBS aan elke kolf en pipet op en neer meerdere malen een homogene celsuspensie te creëren. Combineer cellen uit zowel kolven en overbrengen naar een steriele 50 ml plastic buis.
- Bereken celconcentratie pipetteren20 pi cellen in tweevoud een cel telkamer en bereken de gemiddelde celconcentratie van beide lezingen van een geautomatiseerde celgetalmeter zoals beschreven in stap 1.3.
- Maak 155 ml celsuspensie door verdunning met DMEM 10% FBS tot een concentratie van 75.000 cellen per ml in een steriele plastic container. Opmerking: dit volume is voldoende voor 17 platen en bevat een extra 25 ml van het dode volume in de cel dispenser.
- Voeg een steriele magneetroerder aan de celsuspensie en plaats op een roerder opgezet in de laminaire stroming kap naar cel klonteren beperken. Equilibreer de geautomatiseerde cel dispenser met de celsuspensie en zet deze op 80 ul van cellen per putje (6000 cellen) af te geven.
- Plaats elk van de platen 17 op hun beurt op de geautomatiseerde cel dispenser en afzien cellen. Noteer de tijd en stapel platen in groepen van 5 leg stapels in een vochtige 37 ° C incubator bij 5% CO2 gedurende 24 uur. Opmerking: de eindconcentratiesiRNA zwembad zal 20 nM in 100 ul totaal volume.
Opmerking: De volgende stappen 2,14-2,15 dient op dag 2 worden uitgevoerd. - Start de tweede repliceren op dag 2, volgens de procedure beschreven in Dag 1 voor herhaling 1 (2,2-2,13).
- Na 24 uur transfectie, overdrachtsplaten van 1 repliceren in een steriele omgeving om hypoxie werkstation vastgesteld op 1% zuurstof en laat 24 uur aan de HRE reporter induceren.
Opmerking: De volgende stappen 2,16-2,20 moet op dag 3 worden uitgevoerd. - Inleiding van de derde repliceren, volgens de procedure beschreven in Dag 1 voor herhaling 1 (2,2-2,13).
- Na 24 uur transfectie, overdrachtsplaten van repliceren 2 in een steriele omgeving om hypoxie werkstation vastgesteld op 1% zuurstof en laat 24 uur aan de HRE reporter induceren.
- Twee uur voor repliceren 1 platen van hypoxie werkstation te verwijderen, bereiden 200 ml 2x luciferase lysis / testbuffer zoals beschreven in 1.6. Let op: dit volume inSLOTSOM een extra 20 ml om ervoor te zorgen de buffer reservoir blijft goed bedekt.
- Verwijder repliceren 1 assayplaten van de hypoxie werkstation na blootstelling 24 uur hypoxie en het gebruik van een geautomatiseerde vloeistof dispenser, voeg 100 ul van 2x luciferase lysis / assay buffer aan elke assay plaat en dek af met transparante folie.
- Schud de platen op een cel gedurende 10 minuten bij 500 rpm grondig lyseren van de cellen. Transfer elke plaat weer tot een lichtmeter plaat lezer en opnemen luminescentie zoals beschreven in stap 1.8.
Opmerking: De volgende stappen 2,21-2,22 dient op dag 4 worden uitgevoerd. - Na 24 uur transfectie, overdrachtsplaten van 3 repliceren in een steriele omgeving om hypoxie werkstation vastgesteld op 1% zuurstof en laat 24 uur aan de HRE reporter induceren.
- Lees het repliceren 2 platen door volgende stappen 2,18-2,20 gebruikt voor herhaling 1.
Let op: de volgende stap 2.23 moet op dag 5 worden uitgevoerd. - Lees het repliceren 3 platen door het volgenstap 2,18-2,20 gebruikt voor herhaling 1.
- Compileer alle 3 herhalingen van het primaire scherm, en bereken de Z-factor voor elke plaat met behulp van de formule in 1.12. Let op: als elke plaat heeft een Z-factor van minder dan 0,5, overweeg dan het herhalen van deze plaat om de kwaliteit van de gegevens te verbeteren.
- Bereken de variatiecoëfficiënt (CV) voor de hoge en de lage controles met de volgende formule: 100 x standaardafwijking controle / gemiddelde van controle. Opmerking: CV moet zo laag mogelijk zijn, is het redelijk om te verwachten 10-15% variatie. Als variant is aanzienlijk hoger, overweeg herhalen van de plaat.
- Bereken procent activering van elke siRNA per plaat met behulp van de volgende formule: [(gemiddelde van hoge controle - siRNA score) / (gemiddelde van hoge controle - gemiddelde van lage controle)] x 100 Daarnaast berekenen de non-target (NT. )-voudige van elke siRNA met behulp van de formule [Sample data / gemiddelde van NT]. Zowel procent activering en NT-voudig, bereken het gemiddelde van de drie replicates en compileren van de waarden.
- Met behulp van de ruwe data, het berekenen van de Spearman Rank Correlatie Coëfficiënt (SRCC) om te bepalen hoe nauwkeurig de drie replicaplaten correleren met de formule:
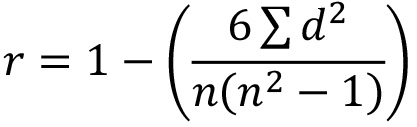
waarbij r = SRCC; d = verschil tussen de twee getallen in elk paar rijen en n = aantal paren gegevens. Opmerking:. Een goede correlatie tussen plaat herhalingen zullen waarden dicht bij 1 te geven Als een duplo toont laag SRCC tegen de andere 2 borden, verder te onderzoeken en te overwegen herhalen dat bord. - Beslis welke siRNA's zijn van voldoende belang voor secundaire screening (tot 80). Employ gebruiker gedefinieerde cut offs (bijv. selectie van alle siRNA's tonen minder dan 5% of meer dan 95% procent activering, of minder dan 0,5 NT-voudige of meer dan 1,5 NT-voudig) of bioinformatica of kennis gebaseerde redenering toepassen om te zoeken naar clusters van raakt van dezelfde UBL route. Opmerking:normaal, een combinatie van deze benaderingen bepaalt welke siRNA tot secundaire screening worden genomen.
3. Tweede scherm
Let op: een bevestigende secundaire scherm is uitgevoerd op basis van een maximum van 80 siRNA belangstelling van het primaire scherm. Dit aantal kan geschikt uitgevoerd met elk duplo uitgeplaat op een plaat met 96 putjes vol controles volgens de primaire screening (zie 2.2) uitgevoerd. Het is zeer nuttig om te bevestigen dat de regulatoren die in de primaire screening reproduceerbaar wekken hetzelfde fenotype, en dit zal helpen bij het verfijnen van de triage beslist welke schiet moeten worden uitgevoerd in de definitieve tertiaire / deconvolutie scherm.
- Kweek 1 x 75 cm2 kolf van U20S-HRE cellen 80-90% confluentie in DMEM met 10% FBS.
- Noteer het kenteken en de locatie van het primaire scherm hits, en zijn van plan hun nieuwe locatie op het secundaire scherm uitgepikt meester plaat, waardoor de kolommen 1 eend 12 gratis voor controles. Bereid een moederplaat zoals in 1.9, maar met een totaal volume van elk besturingselement 50 pl.
- Ontdooi een tweede verdunningsreeks van de ubiquitome bibliotheek (gereserveerd voor cherry picking individuele siRNA zwembaden) voor een minimum van 30 minuten. Centrifugeer de platen kort (1 min bij 2000 xg) en voeg 50 ul van het secundaire scherm siRNA's naar hun nieuwe plaat locaties op de kersen geplukt meester plaat.
- Voer de secundaire scherm met hetzelfde basisontwerp beschreven protocol voor het primaire scherm met de volgende wijzigingen: (a) draaien alle drie herhalingen op dezelfde dag in een testplaat per herhaling en (b) de hoeveelheden van de reagentia aan te passen.
4. Tertiaire / Deconvolutie Screen
Opmerking: tertiair of deconvolution screening wordt uitgevoerd op een maximum van 20 siRNA's uit het secundaire scherm. Deze stap is het effect van het uitschakelen onderzoeken met elk individu siRNA van de oorspronkelijke pool vier. Normaal gesproken moeten ten minste twee afzonderlijke siRNA duplexen van elke poule hetzelfde fenotype ontlokken om een redelijke mate van vertrouwen dat de waargenomen fenotype is niet te wijten aan siRNA off-target effecten hebben. Om vertrouwen in dit stadium verder te verhogen, kunnen extra individuele siRNA duplexen gericht desbetreffende gen ontworpen en getest op hun vermogen om de gegeven fenotype wekken. De resultaten van deze experimenten kan dan worden gebruikt om de score H, waarbij H = 0.6 of ouder (dwz waar minstens 3 van de 5 individuele siRNA uitlokken het fenotype) is aanvaardbaar 6 beschouwd berekenen.
- Kweek een 75 cm2 kolf van U20S-HRE cellen 80-90% confluentie in DMEM met 10% FBS.
- Maak een bord kaart voor de tertiaire scherm door het plannen van de locatie van de vier individuele siRNA duplexen van elke hit op de tertiaire scherm meester plaat, waardoor de kolommen 1 en 12 gratis voor controles. Bereid de controle meester plaat als in 1.9, maar met een totaalvolume van elke controle van 50 pl.
- Ontdooi de deconvolutie / siRNA individuele platen en voeg 50 ul van de individuele siRNAs (200 nM) in elk putje van de tertiaire scherm masterplaat volgens de plaat map (4.2) om drie replicaten x 10 ul en 20 ul comfortabele overtollige .
- Voer de tertiaire scherm met hetzelfde basisontwerp beschreven protocol voor het primaire scherm met de volgende wijzigingen: (a) draaien alle drie herhalingen op dezelfde dag in een testplaat per herhaling en (b) de hoeveelheden van de reagentia aan te passen
Opmerking: Idealiter zou de drempel voor individuele siRNA duplexen moet worden vastgesteld op dezelfde stringente cut-off als voor het zwembad. Echter kan het aanvaardbaar zijn om de drempel te ontspannen met 10-20% voor individuele siRNA, vooral wanneer ten minste een andere duplex in de ingestelde drempelwaarde daalt. Het is nuttig gezien het feit dat het afzonderlijke effect van siRNA minder dan kanhet zwembad, en omgekeerd, in sommige gevallen afzonderlijke siRNA kan een sterker effect op de cellulaire fenotype afzonderlijk dan wanneer deze bestaat in het zwembad (zelfs wanneer de concentratie wordt verwerkt) tonen.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Voorafgaand aan selectie, wordt de hypoxie-reactiviteit van U20S-HRE cellen vastgesteld. U20S-HRE cellen brengen een reporter construct bestaande uit vuurvlieg luciferase stroomafwaarts van drie tandem kopieën van de hypoxie responselement, die gebonden is aan de HIF1A/HIF1B heterodimeer bij blootstelling aan hypoxie (figuur 1A) gefuseerd. Cellen worden in een hypoxie werkstation geplaatst diverse malen te stellen welke blootstelling hypoxie produceert de meest effectieve respons voor screening. U20S ce...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Het gebruik van genoom-brede siRNA schermen in zoogdiercellen heeft bewezen zeer waardevol bij het identificeren van nieuwe regulatoren van verschillende biologische processen te zijn. Hier hebben wij het gebruik van een gerichte ubiquitome siRNA scherm regulatoren van de HIF1a gemedieerde cellulaire respons op hypoxie identificeren beschreven. Gerichte schermen steeds aantrekkelijk als algemeen goedkoper, sneller, gemakkelijker te beheren en verslag pas op het pad onderdelen waarin de onderzoekers geïnteresseerd 7...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Dit werk werd ondersteund door The Wellcome Trust, Glaxosmithkline (GSK) en de Schotse Instituut voor Cell Signalling (nu onderdeel van het MRC Proteïne Fosforylatie en ubiquitylation unit).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Automated Liquid Dispenser | Fluid-X | XPP-721 | http://www.fluidx.eu/BIOTRACK/xpp-721-liquid-handling-system.html |
| White Walled Assay Plate | Greiner Bio One | 655083 | http://www.greinerbioone.com/en/row/articles/catalogue/article/37_11/13221/ |
| Clear Plate Film | Perkin Elmer | 1450-461 | http://www.perkinelmer.co.uk/Catalog/Product/ID/1450-461 |
| siRNA library | Thermo Scientific | On-Target Plus | http://www.thermoscientificbio.com/rnai-and-custom-rna-synthesis/sirna/on-targetplus-sirna/search-gene/ |
| Transfection reagent | Invitrogen | Lipofectamine RNAimax | http://www.invitrogen.com/site/us/en/home/Products-and-Services/Applications/Protein-Expression-and-Analysis/Transfection-Selection/lipofectamine-rnaimx.html |
| Reduced Serum Medium | Invitrogen | Optimem | http://products.invitrogen.com/ivgn/product/31985062?ICID=search-product |
| DMEM | Invitrogen | 41965-039 | http://products.invitrogen.com/ivgn/product/41965039# |
| FBS | Invitrogen | 16000-044 | https://products.invitrogen.com/ivgn/product/16000044?ICID=search-product# |
| Tryspin-EDTA | Invitrogen | 25300-054 | https://products.invitrogen.com/ivgn/product/25300054?ICID=search-product# |
Referenties
- Hochstrasser, M. Origin and function of ubiquitin-like proteins. Nature. 458, 422-429 (2009).
- Schulman, B. A., Harper, J. W. Ubiquitin-like protein activation by E1 enzymes: the apex for downstream signalling pathways. Nat Rev Mol Cell Biol. 10, 319-331 (2009).
- Siomi, H., Siomi, M. C. On the road to reading the RNA-interference code. Nature. 457, 396-404 (2009).
- Kaelin, W. G., Ratcliffe, P. J. Oxygen sensing by metazoans: the central role of the HIF hydroxylase pathway. Mol Cell. 30, 393-402 (2008).
- Melvin, A., Mudie, S., Rocha, S. The chromatin remodeler ISWI regulates the cellular response to hypoxia: role of FIH. Mol Biol Cell. 22, 4171-4181 (2011).
- Bhinder, B., Djaballah, H. A simple method for analyzing actives in random RNAi screens: introducing the "H Score" for hit nomination & gene prioritization. Comb Chem High Throughput Screen. 15, 686-704 (2012).
- Bett, J. S., et al. The P-body component USP52/PAN2 is a novel regulator of HIF1A mRNA stability. Biochem J. 451, 185-194 (2013).
- Zhang, J. H., Chung, T. D., Oldenburg, K. R. A Simple Statistical Parameter for Use in Evaluation and Validation of High Throughput Screening Assays. J Biomol Screen. 4, 67-73 (1999).
- Birmingham, A., et al. Statistical methods for analysis of high-throughput RNA interference screens. Nat Methods. 6, 569-575 (2009).
- Stagg, H. R., et al. The TRC8 E3 ligase ubiquitinates MHC class I molecules before dislocation from the ER. J Cell Biol. 186, 685-692 (2009).
- Zhang, Y., et al. RNF146 is a poly(ADP-ribose)-directed E3 ligase that regulates axin degradation and Wnt signalling. Nat Cell Biol. 13, 623-629 (2011).
- Jackson, A. L., et al. Expression profiling reveals off-target gene regulation by RNAi. Nat Biotechnol. 21, 635-637 (2003).
- Birmingham, A., et al. 3' UTR seed matches, but not overall identity, are associated with RNAi off-targets. Nat Methods. 3, 199-204 (2006).
- Whither RNAi. Nat Cell Biol. 5, 489-490 (2003).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
