We tonen de bouw van alcohol damp kamers met behulp van gemakkelijk beschikbare materialen die tegelijk huisvesten 6 muis kooien. We gebruik ervan verder te beschrijven in een muismodel van foetale blootstelling aan alcohol gelijk aan alle 3 trimesters van de zwangerschap bij de mens. Dit paradigma bloot dieren tijdens de dracht en postnatale dagen 1-12.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Bouw van Vapor Chambers gebruikt om muizen bloot te stellen aan alcohol tijdens het equivalent van alle drie trimesters van Menselijke Ontwikkeling
In dit artikel
Samenvatting
Samenvatting
Blootstelling aan alcohol tijdens de ontwikkeling kan resulteren in een constellatie van morfologische en gedragsafwijkingen die gezamenlijk bekend staan als Foetaal Alcohol Spectrum Disorders (FASDs). Bij de meest ernstige einde van het spectrum foetaal alcoholsyndroom (FAS), gekenmerkt door groeiachterstand, craniofaciale dysmorphology en neuro tekorten. Onderzoeken met diermodellen, zoals knaagdieren, hebben vele moleculaire en cellulaire mechanismen die betrokken zijn bij de pathofysiologie van FASDs toegelicht. Ethanol toediening aan zwangere knaagdieren is gebruikt om menselijke blootstelling model tijdens het eerste en tweede trimester van de zwangerschap. Derde trimester ethanol verbruik bij de mens is gemodelleerd met behulp van neonatale knaagdieren. Er zijn echter weinig studies met knaagdieren het effect van blootstelling aan ethanol tijdens het equivalent van de drie trimesters van de zwangerschap bij de mens, een patroon van blootstelling dat gebruikelijk is bij zwangere vrouwen gekarakteriseerd. Hier laten we zien hoe damp kamers bouwen van gemakkelijk obtainable materialen die elk plaats bieden aan maximaal zes standaard muis kooien. We beschrijven een dampkast paradigma dat kan worden gemodelleerd blootstelling aan ethanol, met minimaal hanteren gedurende drie trimesters. Onze studies tonen aan dat zwangere dammen ontwikkeld significante metabole tolerantie voor ethanol. Echter, neonatale muizen niet ontwikkelen metabole tolerantie en het aantal foetussen, foetus gewicht, placenta gewicht, aantal jongen / nest, aantal dode jongen / nest, en gewicht van de jongen werd niet significant beïnvloed door blootstelling aan ethanol. Een belangrijk voordeel van dit paradigma is de toepasbaarheid studies met genetisch gemodificeerde muizen. Bovendien, dit paradigma minimaliseert de omgang met dieren, een belangrijke verwarren in foetaal alcohol onderzoek.
Inleiding
Drinken tijdens de zwangerschap kan de foetus schaden, waarbij een aanhoudende veranderingen in vele organen en systemen die de kwaliteit van leven voor de getroffen individuen en hun families aanzienlijk zal dalen. Geschat wordt dat ongeveer 10-30% van de vrouwen drinken tijdens zwangerschap in de VS, met 1-8% drinken in een binge patroon 1,2. Het bereik van de effecten veroorzaakt door blootstelling aan ethanol tijdens de foetale ontwikkeling is gezamenlijk bekend als foetale alcohol spectrum stoornissen (FASDs). Recente schattingen geven aan dat FASDs zijn een belangrijk probleem voor de volksgezondheid met een prevalentie zo hoog als 2-5% in de VS 3. De meer ernstige manifestatie van FASDs is Foetaal Alcohol Syndroom (FAS), die wordt gekenmerkt door groeiachterstand, craniofaciale afwijkingen en neurobehavioral tekorten, waaronder leerstoornissen. De prevalentie van FAS geschat 0,2-0,7% en in de VS 3. De momenteel beschikbare behandelingen voor FASDs slechts ten dele doeltreffenden ontwikkeling van effectievere behandelingen wordt beperkt door de slechte begrip van de cellulaire en moleculaire onderbouwing van deze complexe spectrum van aandoeningen.
Gegevens van de Nationale Aangeboren afwijkingen Prevention Study (NBDPS) geven aan dat zwangere vrouwen het meest drinken tijdens het 1 e trimester, vóór de zwangerschap is gedetecteerd, gevolgd door onthouding tijdens de latere stadia van de zwangerschap 2. De NBDPS vond ook dat de tweede meest voorkomende patroon van ethanol consumptie tijdens de dracht gaat drinken in alle trimesters van de zwangerschap 2. De redenen hiervoor zijn gebrek aan bewustzijn over de mogelijke schadelijke effecten van foetale blootstelling aan ethanol (zelfs bij lage doses), beperkte toegang tot prenatale zorg, positieve geschiedenis voor neuropsychiatrische aandoeningen, en misbruik van of afhankelijkheid van ethanol 4. Interessant is dat de NBDPS gemeld dat de derde meest voorkomende consumptiepatroon betrokken onthouding tijdens de 1 E en 2 e trimester gevolgd door het verbruik in het 3e trimester, wanneer het wordt vaak aangenomen dat het drinken is veilig omdat organogenese is grotendeels afgerond. Echter, het 3 e trimester is een periode van hoge gevoeligheid voor ethanol veroorzaakte schade aan het zenuwstelsel, want dit is een periode waarin neuronale circuits ondergaan ingrijpende verfijning 2. De NBDPS identificeerde ook andere, minder frequente patronen van alcoholgebruik die zich voordoen tijdens de zwangerschap, met inbegrip van het verbruik gedurende de 1 e en 2 e trimester gevolgd door onthouding tijdens het 3e trimester 2.
In een poging om de verschillende patronen ethanol consumptie waargenomen bij zwangere vrouwen model, een aantal ontwikkelings blootstelling ethanol paradigma uitgeoefend aan verschillende diersoorten, ratten en muizen zijn meest 5,6. De duur van de zwangerschap bij deze dieren meestal lasts ongeveer 3 weken, wat overeenkomt met de 1e en 2e trimester van de zwangerschap. Veel knaagdieren studies hebben het effect van verschillende doses en patronen van de blootstelling ethanol in deze periode geëvalueerd. Voorbeelden van de methoden vaak gebruikt om ethanol te dienen aan zwangere muizen en ratten omvatten toediening via vloeibare diëten 7,8 toevoeging van ethanol aan het drinkwater 9,10, vrijwillige inname van sacharine gezoete oplossingen 11, maag sonde 12, dampinademingstoxiciteit 13 en subcutane of intraperitoneale injectie 14. Resultaten van deze studies hebben verscheidene van de waargenomen bij mensen met FASDs tekorten samengevat, tonen dat blootstelling tijdens de vroege stadia van de zwangerschap is voldoende neuronale circuits beschadigen in de hersenen (beoordeeld in 6,15).
Experimenten met knaagdieren hebben ook aangetoond dat blootstelling gedurende het equivalent van de 3e Trimester van de zwangerschap, die ongeveer overeenkomt met de eerste 1-2 weken na de geboorte bij ratten en muizen, kan aanzienlijk afbreuk hersenontwikkeling. Blootstelling tijdens deze periode is gemodelleerd door het toedienen van ethanol tot neonatale ratten of muizen. Ethanol werd toegediend aan de dieren met behulp van verschillende methoden, waaronder voeden via gastrostomie in kunstmatig opgefokt 16-18, intragastrische intubatie 19, subcutane injectie 20 en dampinademingstoxiciteit 21,22. Deze studies hebben overtuigend aangetoond dat de hersenen groeispurt is een periode van grote kwetsbaarheid voor de effecten op de ontwikkeling van ethanol 6.
Zoals hierboven vermeld, het drinken tijdens alle trimesters van de zwangerschap is een gemeenschappelijk patroon van ethanol consumptie bij vrouwen 2. Er zijn echter relatief weinig studies die het effect van dit patroon van blootstelling met behulp van diermodellen beoordeeld. Sommige van deze studies hebben advantag genomene van grote dieren waar de 3e trimester equivalent voorkomt in utero dan de neonatale periode bij ratten en muizen. Deze diermodellen, zoals niet-menselijke primaten 23,24 en schapen 25-27. Echter, deze diermodellen niet op grote schaal gebruikt in FASDs onderzoek, gedeeltelijk vanwege de hoge kosten en de behoefte aan gespecialiseerde zorginstellingen. Knaagdieren zijn vaker gebruikt om het effect van al-trimester ethanol blootstelling op de foetale ontwikkeling 5 karakteriseren. Cavia's zijn bijzonder voordelig zijn in dit verband gezien hun uitgebreide prenatale ontwikkeling en overeenkomsten in het brein met die van mensen 28,29. Bij cavia's, is het mogelijk om het effect van blootstelling ethanol karakteriseren in utero dat het equivalent ontwikkelingsperiode van de menselijke 3e trimester omvat. De relatief hoge kosten van deze dieren, alsook de relatief lange duur van de zwangerschap(~ 67 dagen), heeft het gebruik ervan beperkt tot enkele laboratoria aan FASDs onderzoek.
Vanwege hun kosteneffectiviteit en breed gebruik in biomedisch onderzoek, hebben onderzoekers gebruikt ratten model blootstelling aan ethanol tijdens alle trimesters van de zwangerschap. In eerste studies werden ratten blootgesteld tijdens dracht via vloeibare diëten gevolgd door toediening van ethanol via gastrostomie kunstmatig gekweekte pasgeborenen (postnatale dagen (P) 1-10) waardoor piekbloed ethanol levels (BEC) in de dam van 0,08 g / dl en de pups 0,16 g / dl. Dit paradigma veroorzaakt langdurige veranderingen in de oogzenuw myelinisatie en vermindering van het aantal Bergmann glia vezels in het cerebellum 30-32. Evenzo, Maier en medewerkers met behulp van kunstmatige kweekomstandigheden toegediend ethanol aan zwangere dammen rat in een binge-achtige manier via de maag intubatie gevolgd door neonatale toediening gedurende een deel van het 3e trimester equivalent (P4-9) 33,34. PEAK moeder en pup Becs waren 0,3 g / dl bij zowel een zwangerschapsduur van 20 en P6. Deze alles-trimester blootstelling paradigma leidde tot groeivertraging die aanzienlijk groter is dan die waargenomen bij pups blootgesteld tijdens bepaalde periodes van de zwangerschap 33 was. Bovendien ratten blootgesteld aan ethanol tijdens hetzelfde voor alle trimester vertoonde een vermindering van het aantal cerebellaire Purkinje cellen en granule die groter dan waargenomen bij dieren blootgesteld tijdens andere perioden 34 was. Verlagingen van de hippocampus cel aantallen werden ook gemeld met dit paradigma, maar deze effecten lijken vooral het gevolg van blootstelling tijdens het 3e trimester-equivalent 35. Werkwijze die ethanol toediening omvat via intragastrische sonde zowel zwangere ratten en neonatale muizen werd ook gebruikt om alle trimester blootstelling 36 model. Deze methode, die BEC van 0,13 g / dl bij de moederdieren (zwangerschapsduur van 17) en 0,24 g / dl in P6 pups geïnduceerde lon leverdeg blijvende veranderingen in monoamine neurotransmitter niveaus in de hippocampus en hypothalamus, en verhoogde expressie van DNA-methyl en methyl-CpG-bindend eiwit 2 in de hippocampus 37,38. Met een vergelijkbare blootstelling paradigma (BEC = 0,14-0,2 g / dl in dammen en 0,2 g / dl in jongen), Gil-Mohapel et al.. 39 gedetecteerd een toename van het aantal nieuwe onrijpe neuronen in de dentate gyrus van volwassen ratten die kan een compensatiemechanisme vertegenwoordigen ethanol geïnduceerde neuronale schade of een wijziging van de rijping van volwassen geboren neuronen. Onderzoekers hebben ook geprobeerd om alle trimester blootstelling aan ethanol te modelleren door het blootstellen van dammen via vloeibare voeding of drinkwater tijdens de zwangerschap en tijdens het geven van borstvoeding 9,40. Echter, het nut van het blootstellen van de pups via de moedermelk is beperkt, omdat het resulteert meestal in lage pup Becs (bijv. ,002-,05 g / dl; 41,42).
Muizen zijn ook gebruikt Extenstend de effecten van ontwikkelingsstoornissen ethanol blootstelling karakteriseren. Dit diermodel heeft veel van de hierboven beschreven voor de rat diermodel, met het bijkomende voordeel dat veel sterke genetisch gemodificeerde muizenstammen beschikbaar 5. Muizen zijn met succes gebruikt om de effecten van ethanol karakteriseren tijdens de 1e, 2e of 3e trimester van de zwangerschap 43,44. Het effect van trimester blootstelling van deze dieren is niet goed gekarakteriseerd omdat het technisch moeilijker om muizen blootstellen bij het equivalent van alle trimester van de zwangerschap. Bijvoorbeeld, kunstmatige kweek en maag maagsonde, die met succes gebruikt bij ratten, vereisen meer gespecialiseerde procedures in muizen 45. Aan het beste van onze kennis, maar een studie tot nu toe heeft geprobeerd om het effect van alle trimester blootstelling aan ethanol met behulp van muizen te bestuderen; deze dieren werden blootgesteld aan ethanoloplossing in drinkwater During zwangerschap en borstvoeding 46. Maternale Becs waren 0,07 g / dl en pup Becs werden niet bepaald, maar zal naar verwachting een fractie van die in de dammen zijn.
Hier beschrijven we een nieuw model voor alle trimester ethanol blootstelling van muizen waar alcohol wordt toegediend aan zowel zwanger dammen en pasgeborenen via damp inhalatiekamers. Vapor kamers werden gebouwd op basis van een eerder ontwerp 47. Wij bieden gedetailleerde instructies over hoe de inhalatiekamers bouwen en het uitvoeren van de procedures blootstelling. We bieden ook informatie over de Becs die kunnen worden bereikt en het effect van blootstelling op overleving van de jongen en groei.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Alle dierlijke procedures werden goedgekeurd door de Universiteit van New-Mexico Health Sciences Center Institutional Animal Care en gebruik Comite.
1. Vapor Chamber Vergadering
- Cut polycarbonaat platen met een cirkelzaag of decoupeerzaag aan de afmetingen die in de video voor de bovenkant, onderkant, voorkant, achterkant, zijkanten en de deur (figuur 1 en tabel 1).
- Met een cirkelzaag of decoupeerzaag, snijd een opening 8 cm hoog met 16 cm breed in het midden van het voorpaneel.
- Meet en markeer de gaten voor de piano scharnier op de 18 inch met 10 inch polycarbonaat dat de deur van de kamer zal worden.
- In de deur, boor verzinkingsradius gaten met een 5/16 inch boor, en met een 3/16 inch boor, boor het gat voor de schroeven. Zorg ervoor dat u verzinkingsradius gaten aan de binnenkant van de deur voor de schroefkoppen.
- Bereid de polycarbonaat platen voor het lassen.
- Monteer weernt, achterkant en zijkanten op het onderste paneel met Weld-bij # 16.
- Seal eventuele openingen tussen panelen met Weld-on # 16.
- Bevestig het bovenpaneel met Weld-on # 16.
- Gebruik bar klemmen of zware tekstboeken om alles op zijn plaats, terwijl de lassen te genezen.
- Bevestig een 1 inch bij 12 inch stuk polycarbonaat op het bedieningspaneel 1 inch onder de opening voor de bevestiging van het scharnier.
- Laat minstens 24 uur voor Weld-on te genezen.
- Knip 2 stukken van PEX buis 12 centimeter lang en 1 stuk van 1 cm lang PEX buizen.
- Met een 5/16 boor een gat in elk van de 12 inch PEX buizen ongeveer 1 tot 2 cm van het uiteinde.
- Maak 2 x 12 cm PEX buizen een 3/8 inch T-connector met de gaten vanaf de connector.
- Cap de open einden van de PEX buis met 3/8 inch pluggen.
- Bevestig de piano scharnier aan de voorkant en deur met behulp van 4-40 machine schroeven en moeren.
- Met behulp van de deur als een gids, mark de gaten die nodig zijn voor de piano scharnier op de 1 inch spacer op het voorpaneel van de kamer.
- Met een 3/16 inch boor, boor de gaten in de frontplaat voor de piano scharnier.
- Bevestig de deur en piano scharnier op het voorpaneel met behulp van 4-40 machine schroeven en moeren.
- Monteer de spanbanden zoals in beeld met een ring en moer aan weerszijden van de zijarm.
- Mark en boor 3/16 inch gaten voor de toggle klemmen op het voorpaneel en bevestig gaffelklemmen met 4-40 machine schroeven en moeren.
- Voeg 3/8 inch rubber bulb afdichtingen aan de binnenkant van de deur.
- Met een 5/8 inch saai boor, boor een gat in het midden van het bovenpaneel voor de inlaatpoort.
- Boor een 1/2 inch gat in bodem / midden van het achterpaneel voor de uitgang poort.
- Monteer de uitlaatopening van de schroefdraad van de 3/8 inch doorgaande wand adapters duwen door de achterwand van de damp kamer in de uitlaatopening gat. Bevestig de moer van debinnenkant van de kamer plaats te houden.
- Verwijder de beschermende laag van polycarbonaat platen.
- Bevestig de 1 inch stuk van PEX buis aan de T-connector en dwingen de PEX buizen door de opening in de bovenkant van de kamer van binnenuit.
- Bevestig een 3/8 inch 90 elleboog naar de top van de 1 inch PEX buizen van buitenaf.
OPMERKING: Boor een 1/2 inch gat in de deur en plaats een 1/2 inch afdichting septa in het gat. - Herhaal de stappen 1-22 voor de lucht alleen regelkamer.
2. Rack en Air Delivery Assembly
- Als het plaatsen van de kamers op de kar / rek in het materiaal lijst vermeld, assembleren de kar volgens de instructies van de fabrikant.
- Met reserve moeren en bouten, bevestig een restje polycarbonaat aan het rek om de luchtstroom toezichthouders houden.
- Overal op het schroot stuk polycarbonaat, merk en boor 3/4 inch gaten voor de luchtstroom toezichthouders en bevestig toezichthouders met de moerenontvangen.
- Met 3/8 inch doorgaande wand adapter aan op de in-en uitlaatpoorten van de luchtstroom toezichthouders.
- Monteer de ethanol kolf met de beluchting steen, # 8 stop en quick release in-line connectors.
- Met 3/8 inch Tygon-buis, sluit de debietregelaars de luchtpomp en ethanol fles zoals getoond in figuur 1.
- Voor de lucht slechts kamer, sluit de uitlaatopening van de luchtstroom regelaar naar inlaat 3/8 inch 90 elleboog met 3/8 inch Tygon-buis zoals getoond in figuur 1.
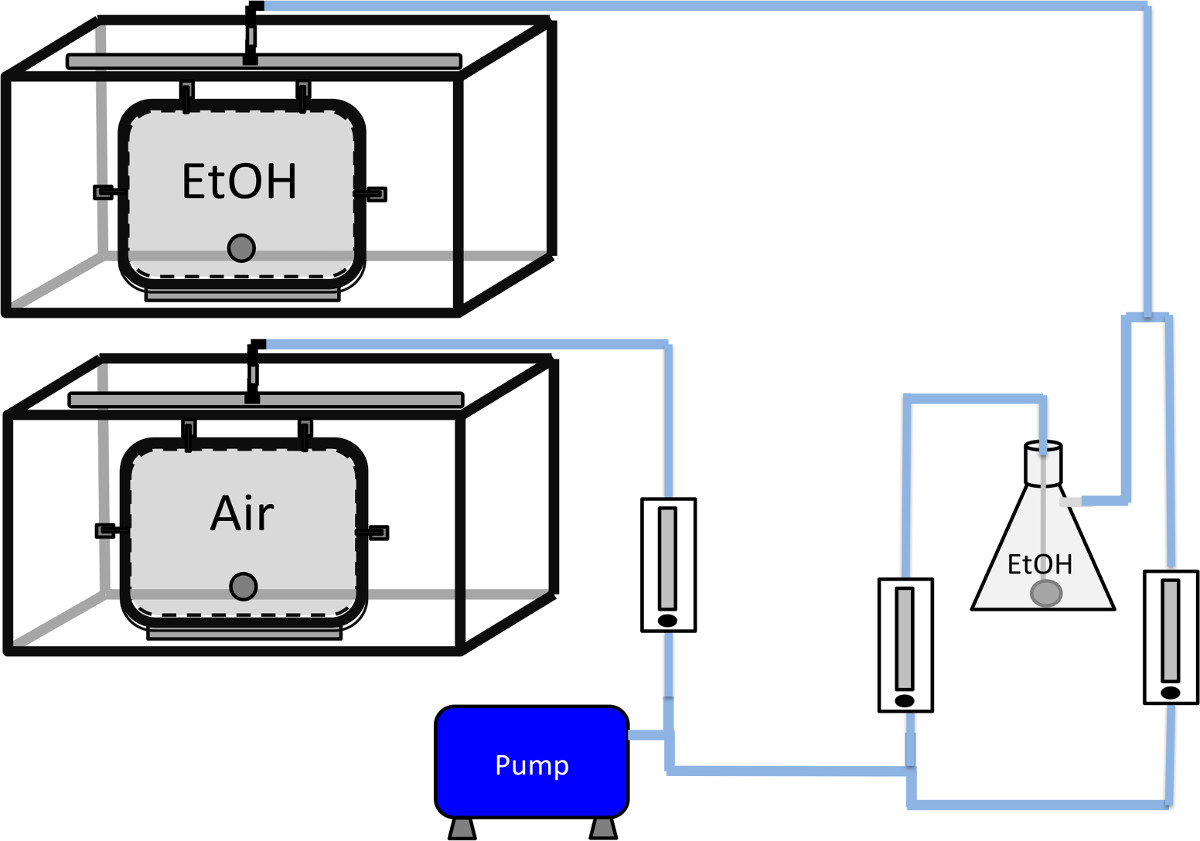
Figuur 1. Schematische weergave van de configuratie van de damp kamers. Een T-connector aan de geluidsarme luchtpomp aangesloten. De ene kant van de T-connector is direct aangesloten op een luchtstroom regelaar voor de lucht alleen damp kamer. De andere side opnieuw gesplitst en grenst aan 2 verschillende luchtstroom te regelen, een voor lucht en een voor ethanol. De luchtkamer is direct verbonden met de regelaar zijn. Voor de ethanol damp kamer, wordt een luchtstroom regelaar aangesloten op de beluchter steen ondergedompeld in vloeibaar ethanol in de filtreerkolf. De zijarm haven van de filter kolf wordt verbonden met de uitgang van de luchtregelaar aangegeven. De gefuseerde ethanol damp en lucht wordt vervolgens aangesloten op de inlaat van de ethanol damp kamer. De uitlaatbuizen (niet getoond) zijn verbonden met een ventilatieopening in de kamer.
3. Test Vapor Chambers en aanpassen Ethanol Levels
- Voeg 600 ml van 190 bewijs ethanol om het filter fles, steek de beluchting steen, en aansluiten op buis inlaat aan de zijarm van de kolf.
- Sluiten kamerdeuren en zet luchtpomp.
- Pas luchtstroom toezichthouders zodat ongeveer de helft zo veel lucht stroomt door de vloeistof alcohol als de lucht wordt vermengd met. Verstelbaart de lucht alleen luchtstroom naar de gecombineerde stroom van de alcohol en de lucht van de ethanol kamer.
- Laat kamers equilibreren gedurende ten minste 30 minuten voor het meten van de lucht ethanolconcentratie.
- Meet lucht ethanol concentratie door het extraheren van 5 ml lucht met een 18G naald en een spuit 60 ml door het septum. Verdunnen dat monster met lucht in de ruimte door de zuiger terug tot 60 ml (1:12 verdunning). Meet lucht ethanol niveau met behulp van een blaastest volgens de aanwijzingen van de fabrikant. De verdunning van de kamer lucht is nodig om alcohol damp niveaus te bereiken binnen het detectiebereik van de blaastest.
OPMERKING: Bij gebruik van verschillende niveaus van blootstelling aan alcohol de verdunning moet mogelijk worden aangepast. - Als uitgangspunt, past de luchtstroom toezichthouders als nodig is om een lucht alcoholconcentratie van ongeveer 4,5-5 g / dl (g verdampte alcohol per dl van lucht) te bereiken.
4. Fokkerij
- Groepshuis vrouwtjes C578BL / 6 muizen (2-3 maanden oud) gedurende minstens 1 week tot ovariële cycli synchroniseren.
- Individueel te huisvesten mannelijke C57BL / 6 muizen (2-5 maanden oud) gedurende minstens 2 weken.
- Na het synchroniseren, zet een enkele vrouw in met een mannetje voor 5 dagen om te paren.
- Na de paring, verwijderen mannetjes en individueel huis vrouwtjes en plaats ze in kamers.
5. Pre-en postnatale Ethanol Vapor Exposure
- Expose zwanger dammen om ethanol damp gedurende 4 uur per dag vanaf 10:00 tijdens de licht-cyclus (lichten aan van 6:00-6:00), behalve de dag van de geboorte tot de pup dood te voorkomen.
- Weeg dammen op een zwangerschapsduur van (G) 5, G13-G14, en G18-G20 om zwangerschappen te controleren; beddengoed was veranderd op dagen dat vrouwen werden gewogen om het hanteren te minimaliseren.
- Elke dag vervangen voedsel voor ethanol blootgestelde groepen consumptie pellets met enig ethanol geabsorbeerd vermijden.
- Op de dag vangeboorte geen dieren bloot. Na de geboorte bloot de dammen en pups gedurende 4 uur per dag vanaf 10:00 van P1-P12.
- Weeg pups op P2, P8, P12 en P25; en veranderen beddengoed op P8 en P12 tot extra handelingen te minimaliseren.
- Direct na de laatste blootstelling (P12), de overdracht van de kooien om een standaard stallen kamer.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Figuur 2A laat zien dat zowel de zwangere muizen en neonatale nakomelingen werden blootgesteld aan relatief stabiel ethanol damp concentraties in de kamers. Deze varieerde van 4-6 g / dl. Figuur 2B toont de resultaten van de zwangere muizen als een functie van de tijd BEC. BEC werden gemeten met een standaard alcoholdehydrogenase gebaseerde test 48. Op G5, Becs snel steeg tot ~ 60 mM 2 uur na de start van de blootstelling en piekte op het einde van de 4 uur blootstelling peri...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Hier beschrijven we in detail de werkwijzen voor de constructie van damp inhalatiekamers. De materialen en gereedschappen die nodig zijn om de kamers te bouwen zijn verkrijgbaar bij een aantal commerciële leveranciers en de stappen voor de bouw van de kamers zijn relatief eenvoudig. Het systeem dat we hier beschrijven heeft geen in-line terugslagkleppen bevatten een back-flow en menging te voorkomen. We konden geen detecteerbare ethanol te meten in de lucht slechts kamers te suggereren dat we geen vermenging of terugstr...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Ondersteund door National Institutes of Health verleent R01-AA015614, R01-AA014973, T32-AA014127 en K12-GM088021. De auteurs danken Samantha L. Blomquist voor technische bijstand en Drs. Kevin Caldwell en Donald Patrijs voor kritisch evalueren van het manuscript en video.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
```html
```
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Polycarbonaat 1/4" helder 48" x 24" | McMaster-Carr | 8574K23 | 10 |
| Schuimrubberen knop afdichting 3/8"w x 7/32"h | McMaster-Carr | 93085K67 | 10 ft |
| Weld-on #16 | McMaster-Carr | 7515A11 | 3 |
| Pianoscharnier 12" lang | McMaster-Carr | 1658A11 | 2 x 1 ft |
| Klemmen om te klemmen standaard | McMaster-Carr | 5126A26 | 8 |
| PEX-buis 1/2" | McMaster-Carr | 51275K88 | 10 ft |
| Gestraalde Tee buis fitting (Zwart) Pkg 10 | McMaster-Carr | 5463K608 | 1 |
| Gestraalde plug fitting (Zwart) Pkg 10 | McMaster-Carr | 5462K79 | 1 |
| Gestraalde elleboog buis fitting (Zwart) Pkg 10 | McMaster-Carr | 5463K596 | 1 |
| 3/8" Door-Wall Adapters, Buis naar Draadgebundelde Pijp | McMaster-Carr | 5463K851 | 1 |
| Phillips Machine schroef 4-40 | McMaster-Carr | 91772A112 | 1 |
| Machine schroef zeskantmoer 4-40 | McMaster-Carr | 90480A005 | 1 |
| Paneelmontage flowmeter 2-20 | McMaster-Carr | 41945K76 | 3 |
| FLASK, FILTER 1.000 ml 6/PACK | VWR | 89001-800 | 2 |
| Precision Seal Septa | VWR | 89084-490 | 1 |
| VWR Zwarte Rubber Stopper #8 1-gats | VWR | 59581-367 | 1 |
| TUBE TYGON R3603 3/8X9/16 50' | VWR | 89068-556 | 1 |
| TUBE TYGON R3603 1/4X11/16 50' | VWR | 89068-502 | 1 |
| Aerator Steen P2120 | VWR | 32573-007 | 1 |
| 3/8" T-connectors Pk van 20 | VWR | 46600-060 | 1 |
| VWR Disconnectors conisch Pk van 10 | VWR | 46600-110 | 1 |
| 3/8 slang Gestraalde binnen klepkoppeling | Colder Products Company | HFCD17612 | 1 |
| Luchtpomp middelgrote capaciteit | LMI Manufacturers | DB60L | 1 |
| Nexelate Draadrek 36"B X 24"D X 63"H | Global industrial | T9A990135 | 1 |
| Set van (4) 5" Polyurethaan Wiel op Stelvoeten | Global industrial | T9A500591 | 1 |
Referenties
- Centers for Disease Control and Prevention (CDC). World Health Organization Who. Alcohol use and binge drinking among women of childbearing age--United States. MMWR Morb Mortal Wkly Rep. 61 (28), 534-538 (2012).
- Ethen, M. K., et al. Alcohol consumption by women before and during pregnancy. Matern Child Health J. 13, 274-285 (2009).
- May, P. A., et al. Prevalence and epidemiologic characteristics of FASD from various research methods with an emphasis on recent in-school studies. Dev Disabil Res Rev. 15, 176-192 (2009).
- Wendell, A. D. Overview and epidemiology of substance abuse in pregnancy. Clin Obstet Gynecol. 56, 91-96 (2013).
- Cudd, T. A. Animal model systems for the study of alcohol teratology. Exp Biol Med (Maywood. 230, 389-393 (2005).
- Valenzuela, C. F., Morton, R. A., Diaz, M. R., Topper, L. Does moderate drinking harm the fetal brain? Insights from animal models). Trends Neurosci. 35, 284-292 (2012).
- Sliwowska, J. H., Song, H. J., Bodnar, T., Weinberg, J. Prenatal Alcohol Exposure Results in Long-Term Serotonin Neuron Deficits in Female Rats: Modulatory Role of Ovarian Steroids. Alcohol Clin. Exp. Res. 10, (2013).
- Sutherland, R. J., McDonald, R. J., Savage, D. D. Prenatal exposure to moderate levels of ethanol can have long-lasting effects on hippocampal synaptic plasticity in adult offspring. Hippocampus. 7, 232-238 (1997).
- Naassila, M., Daoust, M. Effect of prenatal and postnatal ethanol exposure on the developmental profile of mRNAs encoding NMDA receptor subunits in rat hippocampus. J Neurochem. 80, 850-860 (2002).
- Servais, L., et al. Purkinje cell dysfunction and alteration of long-term synaptic plasticity in fetal alcohol syndrome. Proc Natl Acad Sci U S A. 104, 9858-9863 (2007).
- Brady, M. L., Allan, A. M., Caldwell, K. K. A limited access mouse model of prenatal alcohol exposure that produces long-lasting deficits in hippocampal-dependent learning and memory. Alcohol Clin Exp Res. 36, 457-466 (2012).
- Bake, S., Tingling, J. D., Miranda, R. C. Ethanol exposure during pregnancy persistently attenuates cranially directed blood flow in the developing fetus: evidence from ultrasound imaging in a murine second trimester equivalent model. Alcohol Clin Exp Res. 36, 748-758 (2012).
- Cuzon, V. C., Yeh, P. W., Yanagawa, Y., Obata, K., Yeh, H. H. Ethanol consumption during early pregnancy alters the disposition of tangentially migrating GABAergic interneurons in the fetal cortex. J Neurosci. 28, 1854-1864 (2008).
- Godin, E. A., et al. Magnetic resonance microscopy defines ethanol-induced brain abnormalities in prenatal mice: effects of acute insult on gestational day 7. Alcohol Clin Exp Res. 34, 98-111 (2010).
- Gil-Mohapel, J., Boehme, F., Kainer, L., Christie, B. R. Hippocampal cell loss and neurogenesis after fetal alcohol exposure: insights from different rodent models. Brain Res Rev. 64, 283-303 (2010).
- Diaz, J., Samson, H. H. Impaired brain growth in neonatal rats exposed to ethanol. Science. 208, 751-753 (1980).
- Stanton, M. E., Goodlett, C. R. Neonatal ethanol exposure impairs eyeblink conditioning in weanling rats. Alcohol Clin Exp Res. 22, 270-275 (1998).
- West, J. R., Hamre, K. M., Pierce, D. R. Delay in brain growth induced by alcohol in artificially reared rat pups. Alcohol. 1, 213-222 (1984).
- Tran, T. D., Stanton, M. E., Goodlett, C. R. Binge-like ethanol exposure during the early postnatal period impairs eyeblink conditioning at short and long CS-US intervals in rats. Dev Psychobiol. 49, 589-605 (2007).
- Ikonomidou, C., et al. Ethanol-induced apoptotic neurodegeneration and fetal alcohol syndrome. Science. 287, 1056-1060 (2000).
- Heaton, M. B., Paiva, M., Madorsky, I., Siler-Marsiglio, K., Shaw, G. Effect of bax deletion on ethanol sensitivity in the neonatal rat cerebellum. J Neurobiol. 66, 95-101 (2006).
- Ryabinin, A. E., Cole, M., Bloom, F. E., Wilson, M. C. Exposure of neonatal rats to alcohol by vapor inhalation demonstrates specificity of microcephaly and Purkinje cell loss but not astrogliosis. Alcohol Clin Exp Res. 19, 784-791 (1995).
- Kraemer, G. W., Moore, C. F., Newman, T. K., Barr, C. S., Schneider, M. L. Moderate level fetal alcohol exposure and serotonin transporter gene promoter polymorphism affect neonatal temperament and limbic-hypothalamic-pituitary-adrenal axis regulation in monkeys. Biol Psychiatry. 63, 317-324 (2008).
- Schneider, M. L., et al. Moderate-level prenatal alcohol exposure alters striatal dopamine system function in rhesus monkeys. Alcohol Clin Exp Res. 29, 1685-1697 (2005).
- Ramadoss, J., Hogan, H. A., Given, J. C., West, J. R., Cudd, T. A. Binge alcohol exposure during all three trimesters alters bone strength and growth in fetal sheep. Alcohol. 38, 185-192 (2006).
- Ramadoss, J., Lunde, E. R., Pina, K. B., Chen, W. J., Cudd, T. A. All three trimester binge alcohol exposure causes fetal cerebellar purkinje cell loss in the presence of maternal hypercapnea, acidemia, and normoxemia: ovine model. Alcohol Clin Exp Res. 31, 1252-1258 (2007).
- Ramadoss, J., Tress, U., Chen, W. J., Cudd, T. A. Maternal adrenocorticotropin, cortisol, and thyroid hormone responses to all three-trimester equivalent repeated binge alcohol exposure: ovine model. Alcohol. 42, 199-205 (2008).
- Byrnes, M. L., Reynolds, J. N., Brien, J. F. Brain growth spurt-prenatal ethanol exposure and the guinea pig hippocampal glutamate signaling system. Neurotoxicol Teratol. 25, 303-310 (2003).
- Catlin, M. C., Abdollah, S., Brien, J. F. Dose-dependent effects of prenatal ethanol exposure in the guinea pig. Alcohol. 10, 109-115 (1993).
- Phillips, D. E., Krueger, S. K. Effects of combined pre- and postnatal ethanol exposure (three trimester equivalency) on glial cell development in rat optic nerve. Int J Dev Neurosci. 10, 197-206 (1992).
- Phillips, D. E., Krueger, S. K., Rydquist, J. E. S. hort- Short- and long-term effects of combined pre- and postnatal ethanol exposure (three trimester equivalency) on the development of myelin and axons in rat optic nerve. Int J Dev Neurosci. 9, 631-647 (1991).
- Shetty, A. K., Burrows, R. C., Wall, K. A., Phillips, D. E. Combined pre- and postnatal ethanol exposure alters the development of Bergmann glia in rat cerebellum. Int J Dev Neurosci. 12, 641-649 (1994).
- Maier, S. E., Chen, W. J., Miller, J. A., West, J. R. Fetal alcohol exposure and temporal vulnerability regional differences in alcohol-induced microencephaly as a function of the timing of binge-like alcohol exposure during rat brain development. Alcohol Clin Exp Res. 21, 1418-1428 (1997).
- Maier, S. E., Miller, J. A., Blackwell, J. M., West, J. R. Fetal alcohol exposure and temporal vulnerability: regional differences in cell loss as a function of the timing of binge-like alcohol exposure during brain development. Alcohol Clin Exp Res. 23, 726-734 (1999).
- Livy, D. J., Miller, E. K., Maier, S. E., West, J. R. Fetal alcohol exposure and temporal vulnerability: effects of binge-like alcohol exposure on the developing rat hippocampus. Neurotoxicol Teratol. 25, 447-458 (2003).
- Kelly, S. J., Lawrence, C. R. Intragastric intubation of alcohol during the perinatal period. Methods Mol Biol. 447, 101-110 (2008).
- Perkins, A., Lehmann, C., Lawrence, R. C., Kelly, S. J. Alcohol exposure during development: Impact on the epigenome. Int J Dev Neurosci. 31, 391-397 (2013).
- Tran, T. D., Kelly, S. J. Alterations in hippocampal and hypothalamic monoaminergic neurotransmitter systems after alcohol exposure during all three trimester equivalents in adult rats. J Neural Transm. 106, 773-786 (1999).
- Gil-Mohapel, J., et al. Altered adult hippocampal neuronal maturation in a rat model of fetal alcohol syndrome. Brain Res. 1384, 29-41 (2011).
- Popovic, M., Caballero-Bleda, M., Guerri, C. Adult rat's offspring of alcoholic mothers are impaired on spatial learning and object recognition in the Can test. Behav Brain Res. 174, 101-111 (2006).
- Guerri, C., Sanchis, R. Alcohol and acetaldehyde in rat's milk following ethanol administration. Life Sci. 38, 1543-1556 (1986).
- Matta, S. G., Elberger, A. J. Combined exposure to nicotine and ethanol throughout full gestation results in enhanced acquisition of nicotine self-administration in young adult rat offspring. Psychopharmacology (Berl. 193, 199-213 (2007).
- Olney, J. W. Fetal alcohol syndrome at the cellular level). Addict Biol. 9, 137-149 (2004).
- Sulik, K. K. Genesis of alcohol-induced craniofacial dysmorphism. Exp Biol Med (Maywood). 230, 366-375 (2005).
- Lewis, S. M., et al. Modifying a displacement pump for oral gavage dosing of solution and suspension preparations to adult and neonatal mice). Lab Anim (NY). 39, 149-154 (2010).
- Cebolla, A. M., et al. Effects of maternal alcohol consumption during breastfeeding on motor and cerebellar Purkinje cells behavior in mice. Neurosci Lett. 455, 4-7 (2009).
- Becker, H. C., Hale, R. L. Repeated episodes of ethanol withdrawal potentiate the severity of subsequent withdrawal seizures: an animal model of alcohol withdrawal "kindling". Alcohol Clin. Exp. Res. 17, 94-98 (1993).
- Galindo, R., Valenzuela, C. F. Immature hippocampal neuronal networks do not develop tolerance to the excitatory actions of ethanol. Alcohol. 40, 111-118 (2006).
- Workman, A. D., Charvet, C. J., Clancy, B., Darlington, R. B., Finlay, B. L. Modeling transformations of neurodevelopmental sequences across mammalian species. J Neurosci. 33, 7368-7383 (2013).
- Becker, H. C., Diaz-Granados, J. L., Weathersby, R. T. Repeated ethanol withdrawal experience increases the severity and duration of subsequent withdrawal seizures in mice. Alcohol. 14, 319-326 (1997).
- Ukita, K., Fukui, Y., Shiota, K. Effects of prenatal alcohol exposure in mice: influence of an ADH inhibitor and a chronic inhalation study. Reprod Toxicol. 7, 273-281 (1993).
- Varma, P. K., Persaud, T. V. Influence of pyrazole, an inhibitor of alcohol dehydrogenase on the prenatal toxicity of ethanol in the rat. Res Commun Chem Pathol Pharmacol. 26, 65-73 (1979).
- Balcombe, J. P., Barnard, N. D., Sandusky, C. Laboratory routines cause animal stress. Contemp Top Lab Anim Sci. 43, 42-51 (2004).
- Arias, C., Molina, J. C., Mlewski, E. C., Pautassi, R. M., Spear, N. Acute sensitivity and acute tolerance to ethanol in preweanling rats with or without prenatal experience with the drug. Pharmacol Biochem Behav. 89, 608-622 (2008).
- Nizhnikov, M. E., Molina, J. C., Varlinskaya, E. I., Spear, N. E. Prenatal ethanol exposure increases ethanol reinforcement in neonatal rats. Alcohol Clin Exp Res. 30, 34-45 (2006).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
Tags
Alcohol-dampkamersfoetaal alcoholmodel bij muizenethanol-blootstellingsparadigmaconstructie van polycarbonaatkamersluchtstroomregelsysteemblootstelling van drachtige muizenneonatale blootstelling bij muizenmeting van het alcoholgehalte in het bloedafdichting met klemvergrendelingeninlaat- en uitlaatpoorten
