DNA en eiwitten sequentie-specifiek gemerkt met affiniteit of fluorescente reporter groepen met DNA of eiwit methyltransferases en synthetische analogen cofactor. Afhankelijk van de cofactor specificiteit van de enzymen, aziridine of dubbel geactiveerde cofactor analogen worden gebruikt voor één of twee stappen labeling.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Sequentie-specifieke Labeling van nucleïnezuren en eiwitten met methyltransferases en Cofactor Analogues
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
S -Adenosyl-L-methionine (AdoMet of SAM) -afhankelijke methyltransferase (MTase) katalyseren de overdracht van de geactiveerde methylgroep van AdoMet specifieke posities in DNA, RNA, eiwitten en kleine biomoleculen. Deze natuurlijke methylering reactie kan worden uitgebreid naar diverse alkyleringsreacties met synthetische analoga cofactor. Vervanging van het reactieve sulfonium centrum van AdoMet een aziridinering leidt tot cofactoren die kunnen worden gekoppeld met DNA van verschillende DNA MTases. Deze aziridine cofactoren kunnen worden uitgerust met reportergroepen op verschillende posities van de adenine eenheid en voor S equence specifieke M ethyltransferase- I nduced L abel ing van DNA (lachend DNA). Als voorbeeld geven we een protocol voor biotinylering van pBR322 plasmide DNA bij de 5'-ATCG A T-3 'sequentie van het DNA MTase M.BseCI en aziridine cofactor 6BAz ineen stap. Verlenging van de geactiveerde methylgroep met onverzadigde alkylgroepen resultaten in andere klasse van AdoMet analogen die gebruikt worden voor m-ethyltransferase gerichte T ransfer van A ctivated G de andere groepen (mTAG). Aangezien de uitgebreide zijketens worden geactiveerd door het sulfonium- midden en de onverzadigde binding, worden deze cofactoren genoemd dubbel geactiveerde AdoMet analogen. Deze analogen niet slechts als cofactoren voor DNA MTases, zoals aziridine cofactoren, maar ook voor RNA, eiwitten en kleine moleculen MTases. Ze worden doorgaans gebruikt voor enzymatische modificatie van MTase substraten met unieke functionele groepen die zijn gemerkt met reportergroepen in een tweede chemische stap. Dit wordt geïllustreerd in een protocol voor fluorescentie etikettering van histon H3 eiwit. Een kleine propargylgroep wordt overgebracht van de cofactor analoge SeAdoYn aan het eiwit door de histon H3 lysine 4 (H3K4) MTase Set7 / 9 gevolgd door klik etikettering van dealkynylated histon H3 met TAMRA azide. MTase-gemedieerde labeling met cofactor analogen is een enabling technology voor veel spannende toepassingen, waaronder de identificatie en functionele studie van MTase ondergrond, alsmede DNA genotypering en methylatie-detectie.
Inleiding
Specifieke kenmerken van nucleïnezuren 1,2 en eiwitten 3,4 is van groot belang voor de functionele karakteriseringen, medische diagnose en (nano) biotechnologie. Hier presenteren we een enzymatische labeling methode die biopolymeren die is gebaseerd op S -adenosyl-l-methionine (AdoMet of SAM) -afhankelijke methyltransferase (MTases). Deze klasse van enzymen (EC 2.1.1.) Richt afzonderlijke nucleofiele posities (stikstof, zuurstof, zwavel en koolstofatomen) binnen bepaalde residuen van nucleïnezuren en eiwitten en natuurlijk brengt de geactiveerde methylgroep van de cofactor AdoMet (figuur 1A) 5. Bovendien kunnen MTases gebruik cofactor synthetische analogen voor specifieke labeling met affiniteit tags fluoroforen of andere labels (Figuur 1B) 6. Twee klassen AdoMet analogen ontwikkeld: Aziridine cofactoren voor S equence specifieke M ethyltransferase- I Nduced L abel ing (glimlachend) 7 en dubbele geactiveerd AdoMet analogen voor m-ethyltransferase geregisseerd T ransfer van A ctivated G de andere groepen (mTAG) 8.
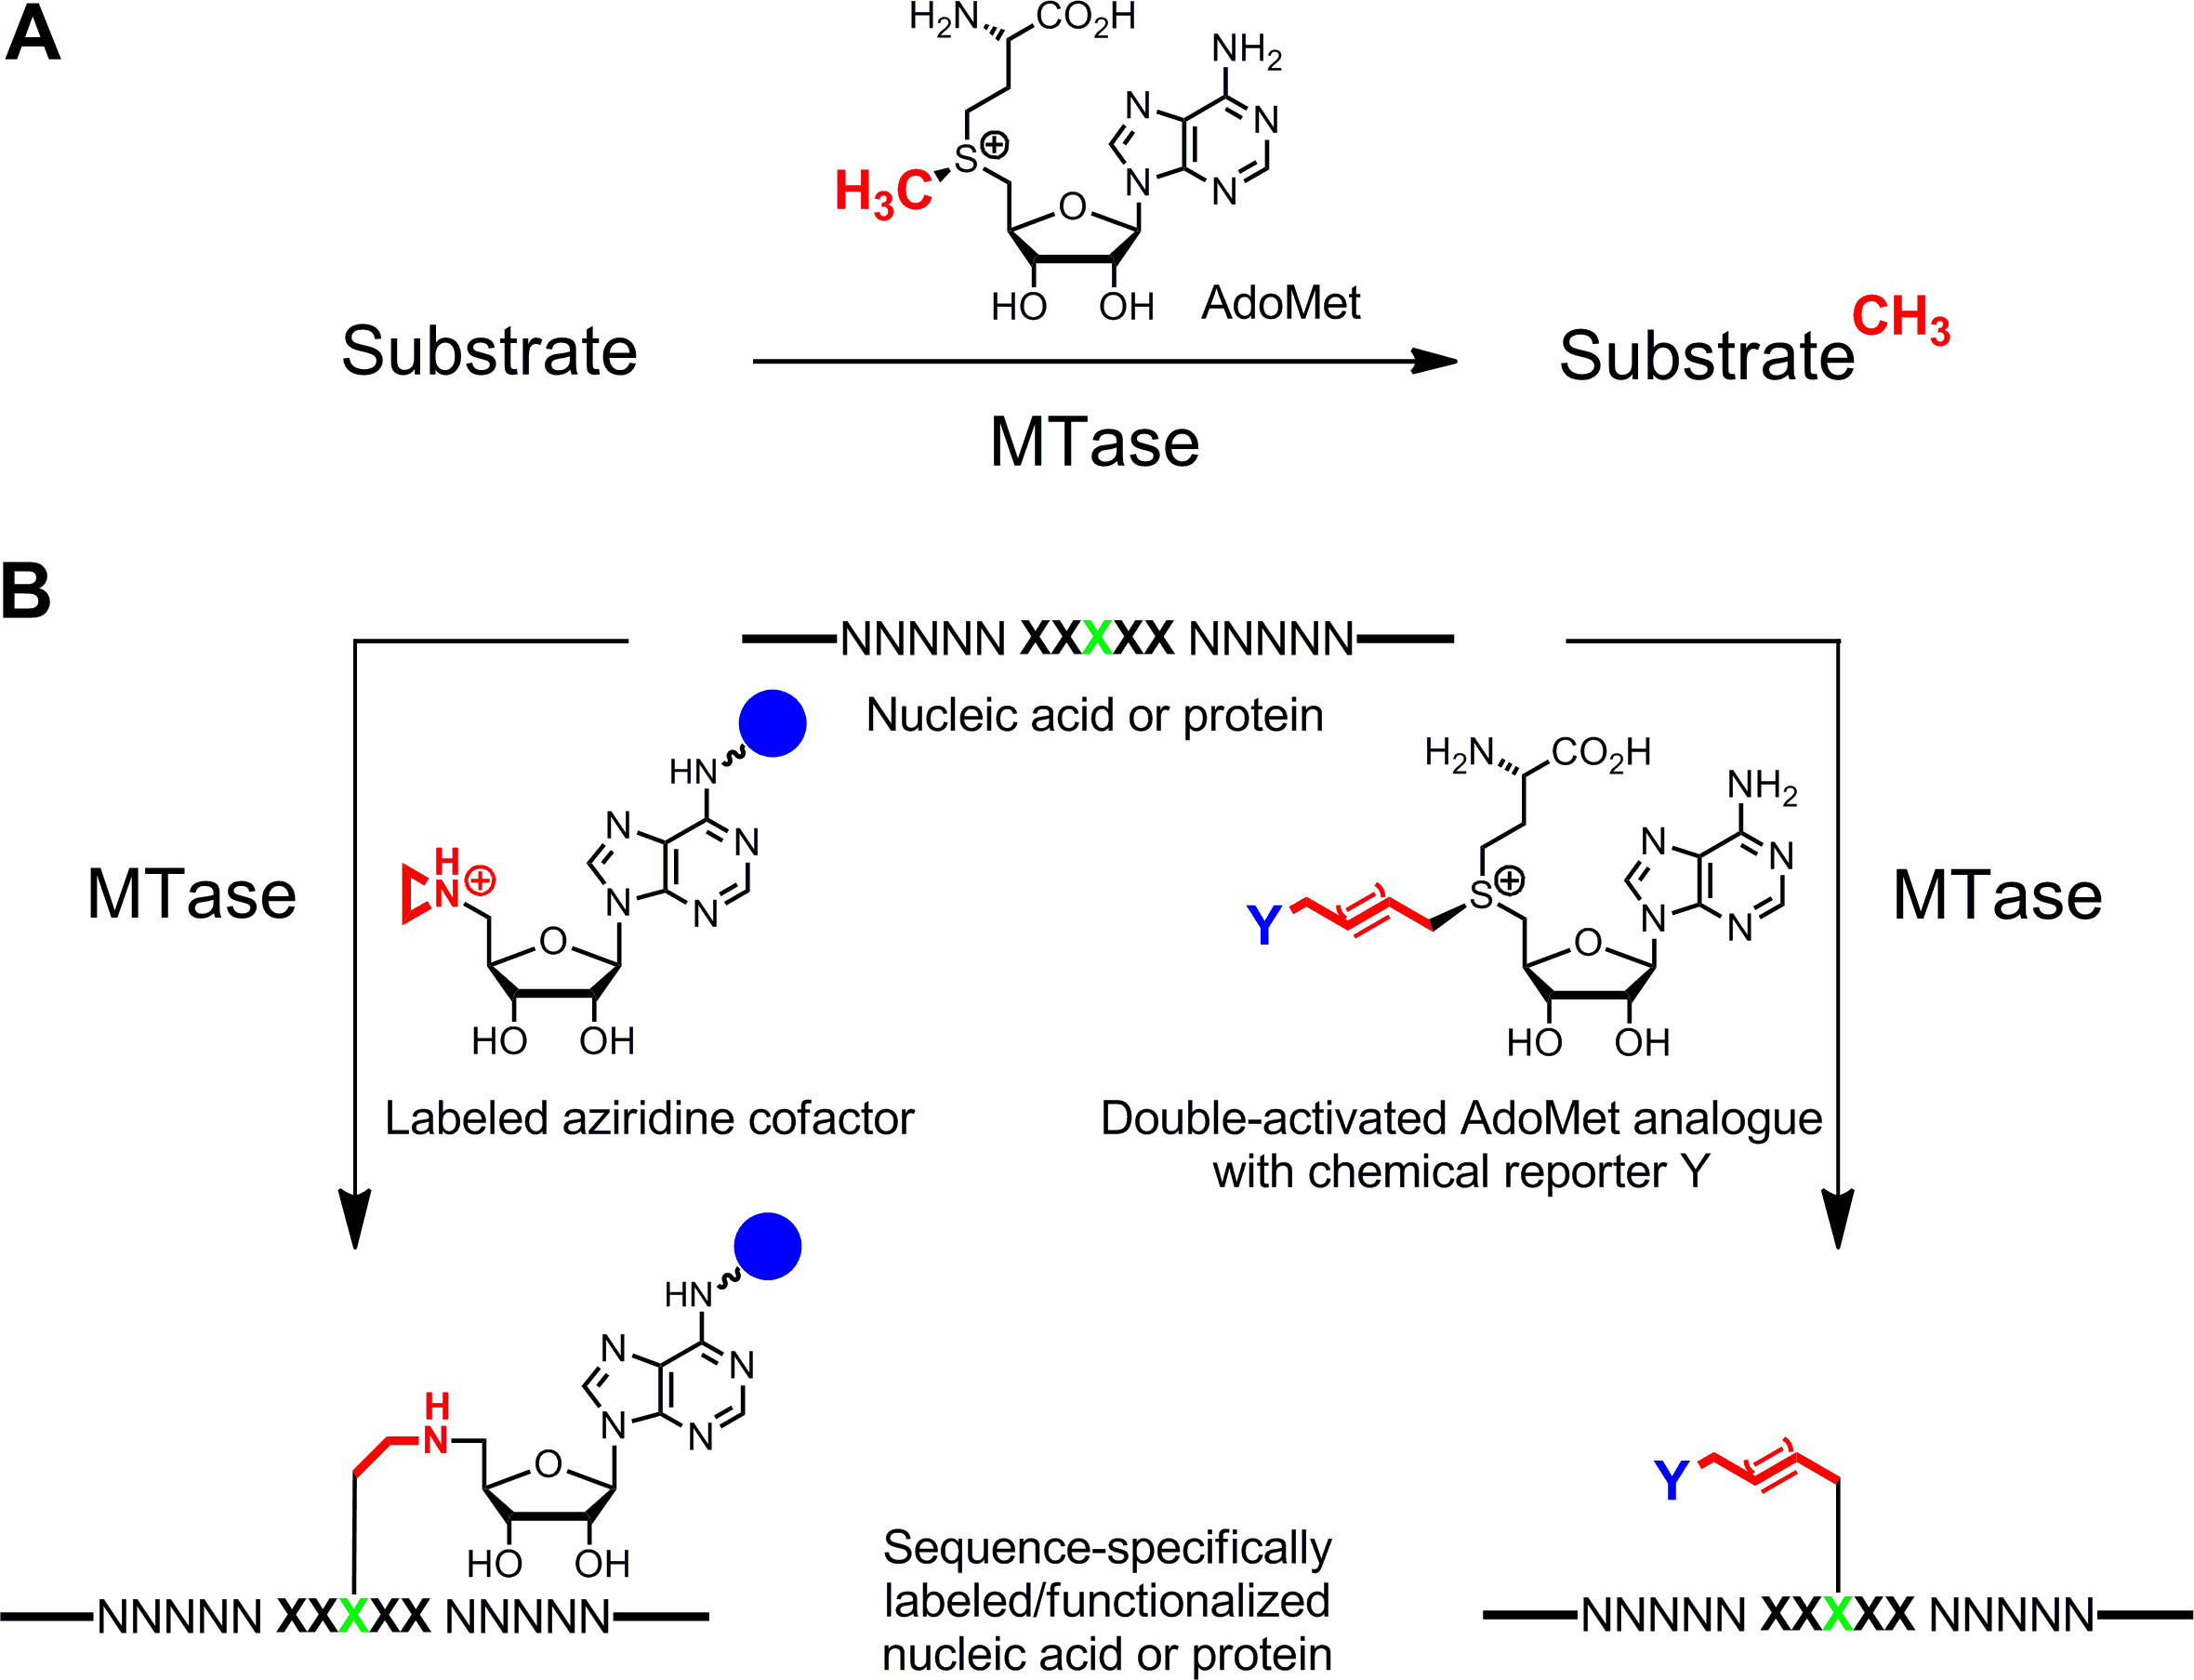
Figuur 1: gekatalyseerd door methyltransferase (MTases) A. Methyl groepstransfer van de natuurlijke cofactor AdoMet (SAM) op diverse substraten, waaronder DNA, RNA, eiwitten en kleine biomoleculen B. Labeling / functionalisering van nucleïnezuren en eiwitten (NNNNN =.. basenparen van DNA nucleotiden voor RNA en aminozuren voor eiwitten; XXXXX = herkenningssequentie van de MTase met doel residuen in groen) met synthetische analoga cofactor. Aziridine- co-factoren die een reporter groep (blauwe bol)aan de adenine ring zijn sequentie specifiek gekoppeld aan het doel residu (links) en dubbel-geactiveerde AdoMet analogen leiden tot de overdracht van uitgebreide alkylketens die een chemische reporter Y (rechts) die aan bioorthogonal click reactie in een tweede stap kan worden gelabeld. Klik hier om een grotere versie van deze afbeelding te bekijken.
Aziridine- cofactoren het beste werken met DNA MTases. Ze bevatten een drieledige ring met een stikstofatoom 9 (of een N -mustard 10,11) in plaats van het sulfonium centrum als reactieve groep. Protonering van het stikstofatoom activeert de aziridine ring voor nucleofiele aanval van de doelwitnucleotidesequentie die leidt tot het koppelen van de gehele cofactor met DNA covalente. Door het aanbrengen reportergroepen de adenine ring de aziridine cofactoren kunnen worden gebruikt in combinatie met DNA MTases DNA label in één stap ( g> Figuur 1B, links) 7,12. Dit blijkt in detail de biotinylering van DNA met 6BAz 13-15 (aziridine cofactor met biotine gehecht aan de 6 positie van de adenine ring) en adenine-specifieke DNA MTase uit Bacillus stearothermophilus (M.BseCI) 16 (figuur 2, zie protocol sectie 2: Eén-stap etikettering van DNA via aziridine- co-factoren). Naast M.BseCI (5'-ATCG A T-3 'herkenningssequentie), het DNA MTases uit Thermus aquaticus (M.TaqI, 5'-TCG A -3') van Haemophilus heamolyticus (M.HhaI, 5 '-G C GC-3') en van Spiroplasma (M.SssI, 5'-CG-3 ') zijn met succes gebruikt om DNA biotinyleren met 6BAz 17. Bovendien kan aziridine cofactoren worden voor één stap fluorescentie DNA labeling 18,19.
NHOUD "fo: keep-together.within-page =" always ">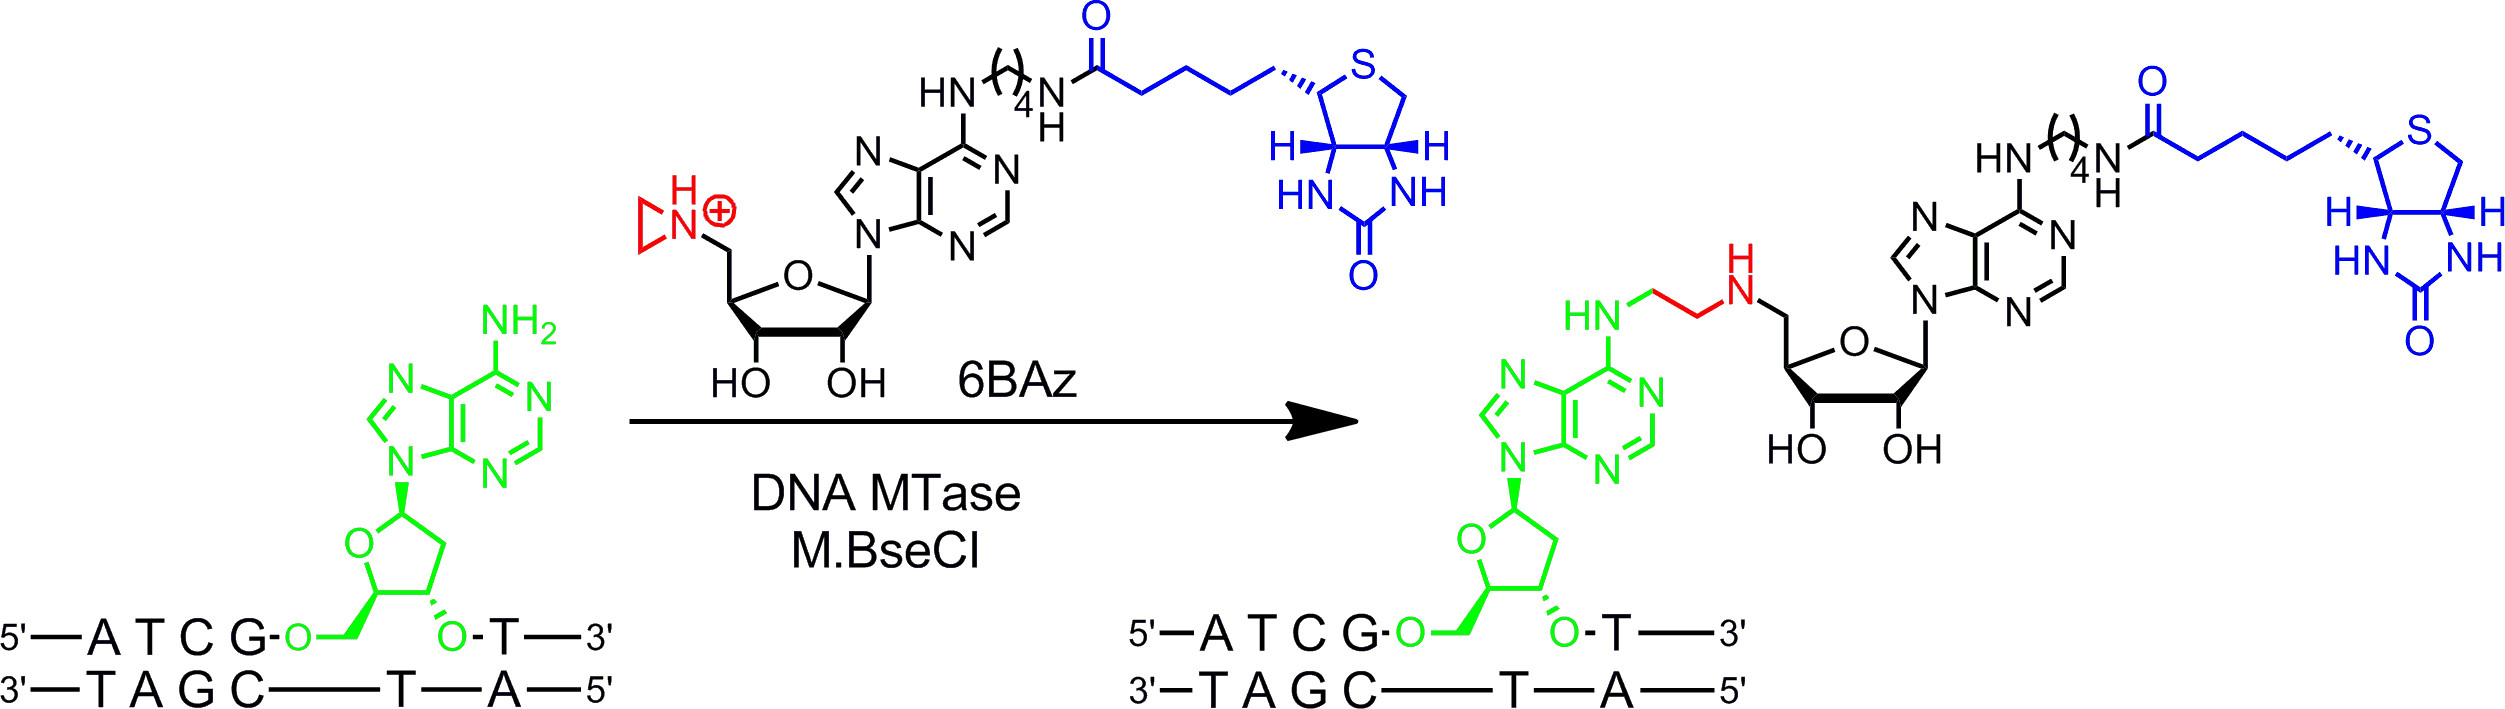
Figuur 2:. Sequentiespecifieke één stap biotinylering DNA met M.BseCI en 6BAz De DNA MTase M.BseCI herkent de dubbelstrengige DNA-sequentie 5'-ATCG A T-3 'en natuurlijk methyleert de aminogroep van het tweede adenine residu (groen) met behulp van AdoMet. Met de aziridine- cofactor 6BAz het verloop van de reactie wordt veranderd en M.BseCI leidt tot specifieke DNA biotinilatie sequencen door het koppelen van de hele cofactor waaronder biotine (blauw) met het doel adenine. Klik hier om een grotere versie van deze afbeelding te bekijken.
Dubbele geactiveerd AdoMet analogen bevatten verlengd onverzadigde zijketens in plaats van een methylgroep op de sulfonium centrum (Figuur 1B , rechts) 20. De onverzadigde dubbele of drievoudige binding in β-positie om de sulfonium- centrum compenseert elektronisch ongunstige sterische effecten binnen de transitie staat via conjugatie stabilisatie. Aangezien zowel de sulfonium- centrum en het onverzadigde binding activeert de zijketen voor enzymatische overdracht, werden deze co-factoren genoemd dubbel-geactiveerde AdoMet analogen. Meestal worden ze gebruikt om zijketens dragen met unieke chemische groepen (chemische reporters), zoals aminozuren, alkyne en azide groepen, voor chemo-selectieve etikettering in een tweede stap 8,21. In het algemeen, dubbel-geactiveerde AdoMet analogen niet alleen kan functioneren als co-factoren voor DNA MTases 8,20,21, maar ook voor RNA MTases 22,23 en eiwit MTases 24-28 waardoor aanvullende etikettering van RNA en eiwitten. Echter, de uitgebreide zijketens zijn sterisch veeleisender dan een methylgroep en het vergroten van de MTase actieve sites door het eiwit engineering is often die nodig is om efficiënt overdrachtsnelheden te verkrijgen. Een andere oplossing voor dit probleem is een AdoMet analoge gebruiken met een kleine propargyl groep (drie koolstofatomen) wanneer de terminal alkyn heeft twee functies: 1. Stabilisatie van de overgangstoestand tijdens enzymatische overdracht en 2. reactief handvat volgende chemische modificaties van koper- gekatalyseerde azide-alkyn cycloadditie (CuAAC) click chemie. Het bleek dat de resulterende propargyl AdoMet analoog 29 is vrij onstabiel onder neutrale of enigszins basische omstandigheden en slechts van beperkt nut. Dit nadeel kan worden verholpen door het vervangen van het zwavelatoom met selenium. De resulterende cofactor 5 '- [(Se) [(3S) -3-amino-3- carboxypropyl] prop-2-ynylselenonio] 5'-deoxyadenosine (SeAdoYn, figuur 3) wordt door wild-type DNA aanvaard, RNA en eiwit MTases 30-32 waarin de behoefte aan eiwit-engineering in veel gevallen af te schaffen. Dit wordt geïllustreerd door fluorescentie pro Tein etikettering met de histon H3 lysine 4 (H3K4) MTase Set7 / 9 33 (Figuur 3, zie protocol hoofdstuk 3: Two-step eiwitmarkerend via dubbele geactiveerde co-factoren).
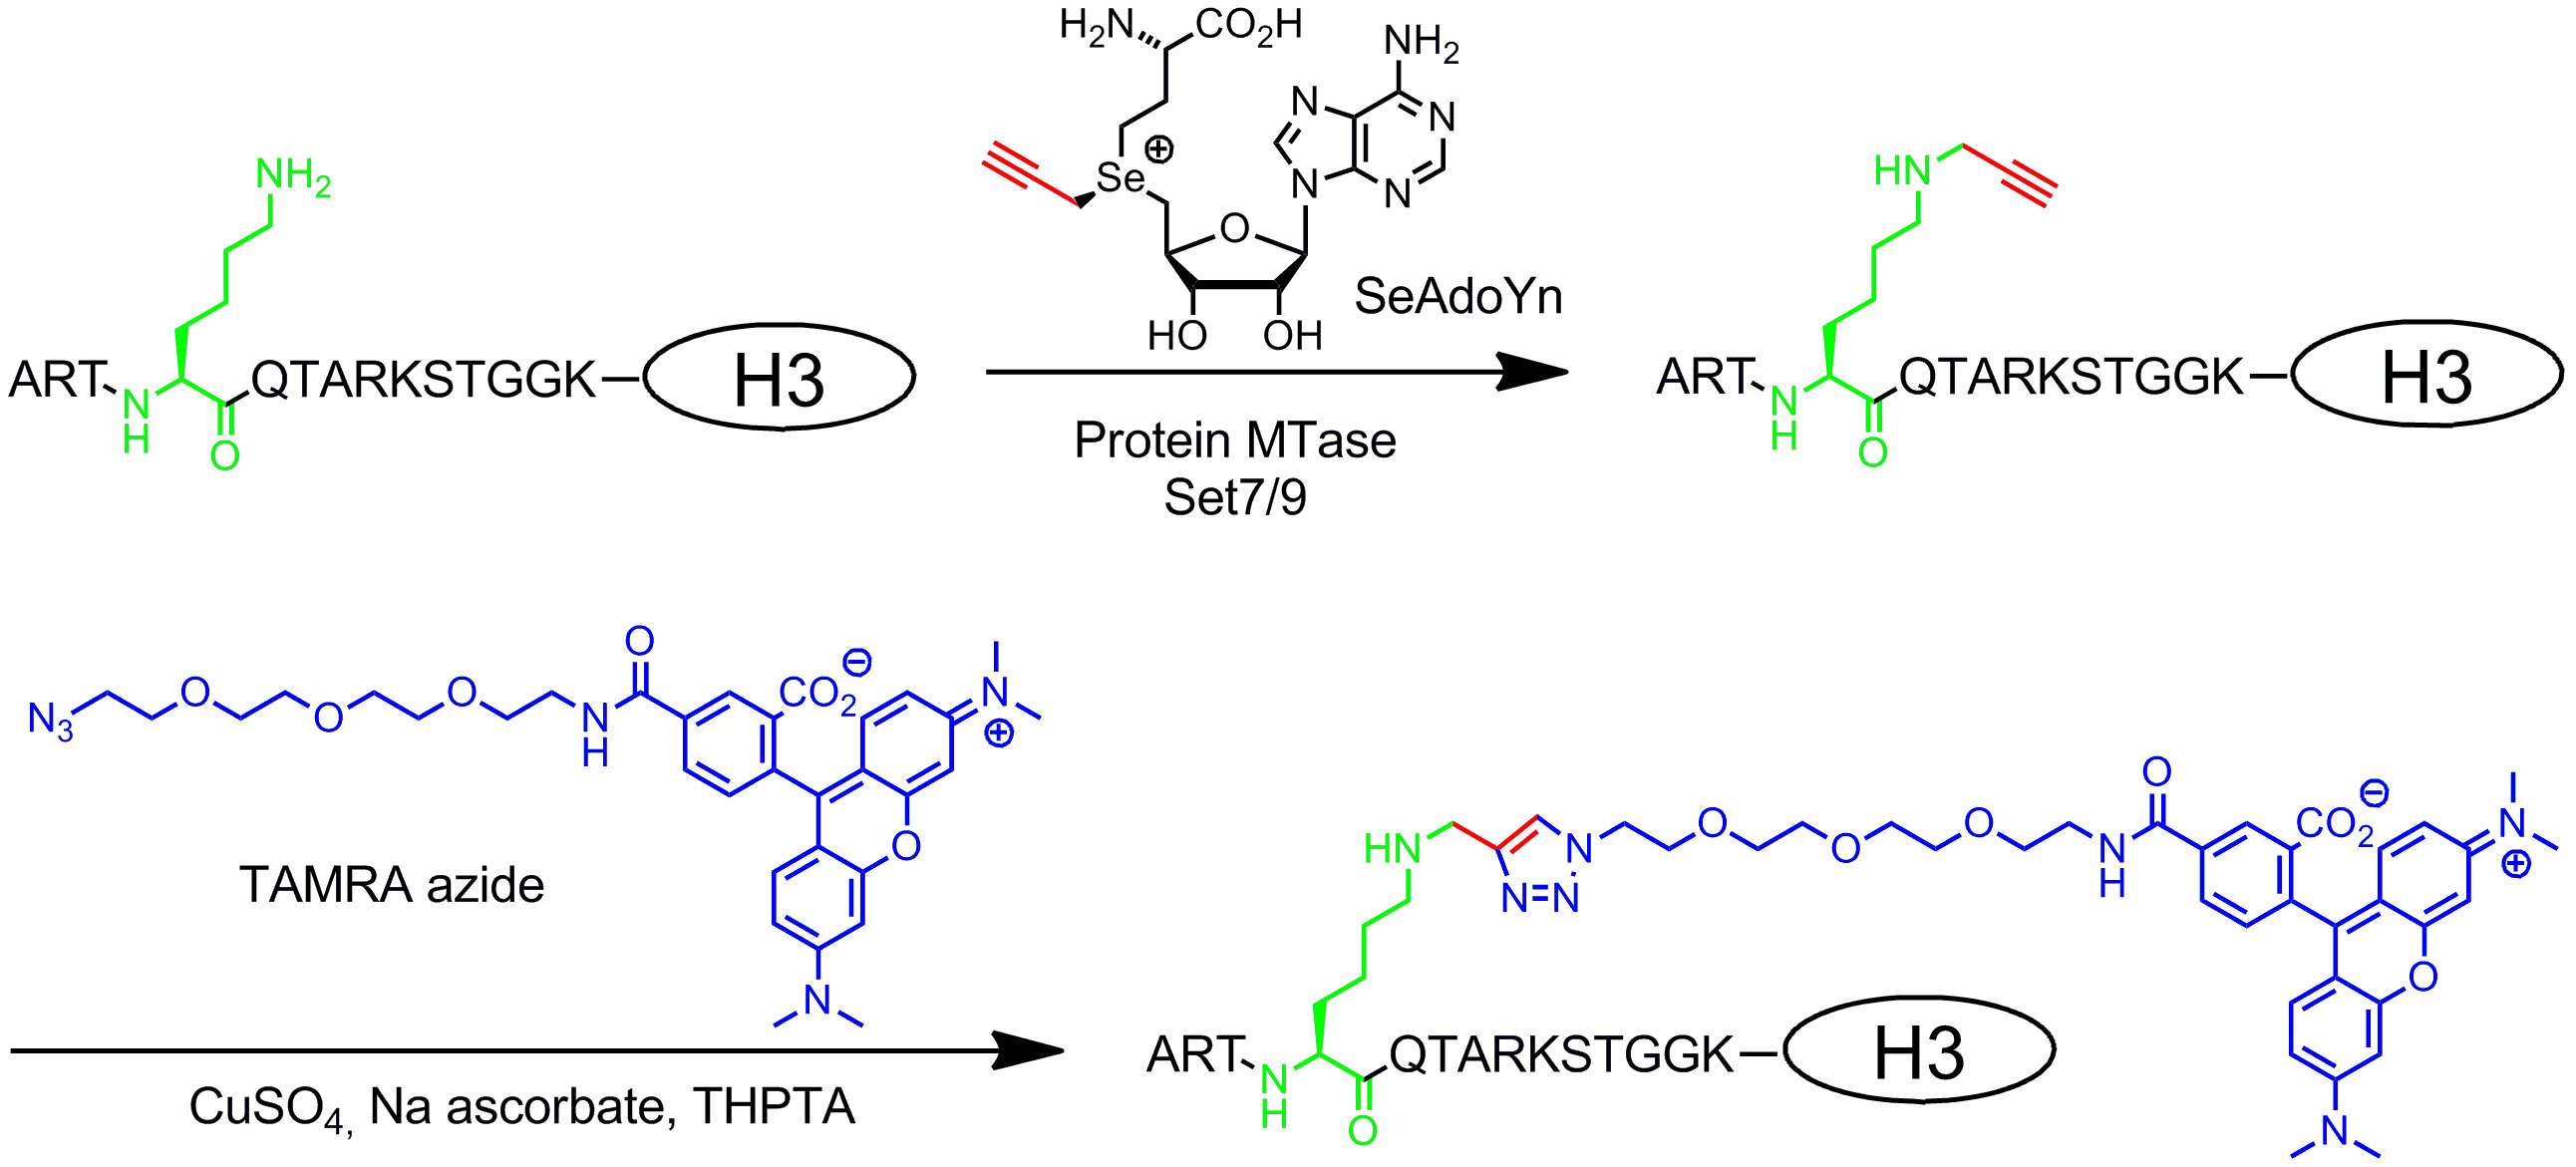
Figuur 3:. Sequentie-specifieke tweestaps fluorescentie labeling van histon H3 met Set7 / 9 SeAdoYn en TAMRA azide Het eiwit MTase Set7 / 9 nature methyleert de aminogroep van lysine 4 van histon H3 (H3K4, groen) met AdoMet. Met de dubbel-geactiveerde cofactor SeAdoYn de MTase overdraagt een kleine propargylgroep (rood) aan de lysineresidu. De bijgevoegde terminal drievoudige binding wordt vervolgens selectief gewijzigd in een bioorthogonal klik reactie (koper-gekatalyseerde azide-alkyn cycloadditie, CuAAC) met azide gederivatiseerde TAMRA (tetramethylrhodamine, blauw) fluorofoor.belasting / 52014 / 52014fig3highres.jpg "target =" _ blank "> Klik hier om een grotere versie van deze afbeelding te bekijken.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
1. Algemene instructies
- WINKEL aziridine cofactor 6BAz (in DMSO) en proteïne MTase Set7 / 9 bij -80 ° C en alle andere reagentia zoals dubbele-geactiveerde cofactor SeAdoYn en DNA MTase M.BseCI (in 50% glycerol) bij -20 ° C.
- Bepaal de concentratie van 6BAz en SeAdoYn via UV / Vis spectroscopie met behulp van de extinctiecoëfficiënten ε 269nm (6BAz) = 16.000 cm -1 M -1 en ε 260 nm (SeAdoYn) = 15.400 cm -1 M -1 in gedeïoniseerd water. Bepaal de concentratie van MTases door de Bradford assay of, indien de extinctiecoëfficiënt is beschikbaar via directe absorptie bij 280 nm.
- Probeer te voorkomen dat er luchtbellen door intensieve pipetteren of vortexen om het verlies van de enzymactiviteit te voorkomen. In plaats daarvan, meng door voorzichtig en neer te pipetteren.
- Bij het toevoegen van aziridine- co-factoren uit voorraad oplossingen in DMSO ervoor te zorgen dat uiteindelijke DMSO-concentratie in de test is minderdan 5%. Altijd omvatten 10 mM magnesiumionen in de assay buffer om niet-specifieke reacties met DNA voorkomen.
- Bij het toevoegen van dubbele geactiveerde co-factoren van zure voorraad oplossingen gebruik maken van kleine hoeveelheden (sterk geconcentreerde stamoplossing) tot pH-veranderingen te voorkomen en ervoor te zorgen dat de pH van de test oplossing niet significant verandert. Vermijd thiolen, bijvoorbeeld β-mercaptoethanol of dithiothreitol (DTT), in de assay buffer omdat ze interfereren met de click reactie door complexering van de vereiste koperionen.
2. Een stap Labeling van DNA via Aziridine Cofactoren
- Sequentie-specifieke methyltransferase Induced Label ing (glimlachend) van plasmide DNA met M.BseCI DNA MTase en aziridine- cofactor 6BAz.
- Ontdooi de cofactor oplossing bij 20 ° C en bereidt de reactiemengsels op ijs.
- Naast het uitvoeren van een assay "cofactor" control, elke niet-specifieke modificaties en een & # visualiseren8220; enzym "controle, om ervoor te zorgen dat de MTase voorbereiding is vrij van de natuurlijke cofactor AdoMet.
- Voor het testmengsel 2 ui 10X modificatie buffer (die 100 mM Tris-HCl, 100 mM MgCl2, 20 mM β-mercaptoethanol, pH 7,4), 2 ui pBR322 (0,5 ug / ul), 10 eq. M.BseCI per herkenningssequentie aan het DNA (1 herkenningssequentie in pBR322) en het aziridine cofactor 6BAz tot een uiteindelijke concentratie van 60 uM in een totaal volume van 20 pl. Voeg cofactor en DNA MTase laatste.
OPMERKING: β-Mercaptoethanol is giftig, bijtend en milieubelastende. - Voor de "cofactor" control toe gedemineraliseerd water in plaats van M.BseCI en voor de "enzym" control toe gedemineraliseerd water in plaats van 6BAz.
- Meng de oplossingen door zachtjes en neer te pipetteren.
- Incubeer de buizen bij 55 ° C gedurende 1 uur.
- Centrifugeer kort om alle vloeistof te verzamelen op de bodem van de buizen.
- Restrictie-modificatie assay DNA modificatie controleren.
- Bereid een oplossing door 10 pl 10x R.TaqI buffer (die 100 mM Tris-HCl, 50 mM MgCl2, 1 M NaCl, 1 mg / ml runderserumalbumine, pH 8,0), 80 pl gedeïoniseerd water en 3,3 ul van de restrictie endonuclease (Rease) van Thermus aquaticus (R.TaqI, 10 U / ul). Zorg ervoor dat u de Rease in de laatste stap toe te voegen.
- Aan elke buis van 2.1.7 voeg 2 pl 10x R. TaqI buffer en 28 pl van de oplossing van boven (2.2.1).
- Meng de oplossingen door zachtjes en neer te pipetteren.
- Incubeer de buizen bij 65 ° C gedurende 30 min.
- Centrifugeer kort om alle vloeistof te verzamelen op de bodem van de buizen.
- Elektromobiliteit shift assay (EMSA) met streptavidine om functionele wijzigingen te controleren.
- Verwijder 25 pi van elke buis (2.2.5) en voeg 2,4 ul van een streptavidine-oplossing (1 mM met betrekking tot streptavidine monomer in streptavidine buffer die 100 mM Na 2 HPO 4, 100 mM NaCl, pH 7,5; 4 equivalenten totaal biotine). Voeg 2.4 ul streptavidine buffer om de resterende buizen.
- Incubeer alle buizen bij 37 ° C gedurende 1 uur.
- Analyse via agarosegelelektroforese.
- Voeg 5 gl 6x loading buffer (0,25% broomfenolblauw, 30% glycerol) aan elke buis.
- Meng de oplossingen voorzichtig.
- Plaats 10 gl van elk monster in de putjes van een agarosegel (1% agarose in 0,5x TBE buffer die 1x GelRed van een 10.000 x voorraadoplossing).
- Voer de gel in 0,5x TBE buffer met 80 V voor ong. 1 uur.
- Visualiseren DNA-banden op een UV-tafel (312 nm) met een CCD-camera uitgerust met een filter (540 ± 50 nm).
OPMERKING: UV-licht is schadelijk voor de ogen en de huid.
3. Twee-stap Eiwit Labeling via Double Activated Cofactoren
- Methyltransfwis-Directed Overdracht van Geactiveerde groepen (mTAG) met Set7 / 9 en dubbel-geactiveerde cofactor SeAdoYn voor histon H3 lysine 4 etikettering (modificatie stap).
- Ontdooi de componenten en de voorbereiding van de reactie mengsels op ijs. OPMERKING: Houd altijd SeAdoYn afgekoeld tot degradatie te voorkomen.
- Naast het uitvoeren van een assay "cofactor" control, elke niet-specifieke modificaties visualiseren, en een "enzym" controle op aspecifieke reacties van de fluorescente probe sluiten.
- Bereid een test-oplossing (20 pl) bevattende modificatie buffer (50 mM Tris-HCl, 5% glycerol, pH 8,5), 10 uM histon H3, 10 uM Set7 / 9 en 600 uM SeAdoYn (mengsel van beide epimeren op selenium). In de laatste stappen toevoegen cofactor en dan MTase.
- Voor de "cofactor" control bereiden een test oplossing zoals in 3.1.3 en voeg 60 mM AdoMet om te concurreren met de synthetische cofactor. Voor de "enzym" control toe gedemineraliseerd water in plaats van SeAdoYn.
- Meng de oplossingen door langzaam en neer te pipetteren. Controleer de pH door toevoeging van 1 pi van elke oplossing voor het bovenste veld van een pH-strip (pH 5-10).
- Incubeer bij 37 ° C gedurende 2 uur.
- Ondertussen bereidt een 12% SDS polyacrylamidegel (runninggel: 357 mM Bis-Tris pH 6,5-6,8, 0,1% (w / v) APS, 0,04% (v / v) TEMED en 12% acrylamide / bisacrylamide 37.5: 1 , loading gel: 357 mM Bis-Tris pH 6,5-6,8, 0,1% (w / v) APS, 0,04% (v / v) TEMED en 5% acrylamide / bisacrylamide 37,5: 1).
OPMERKING: Acrylamide / bisacrylamide is giftig en schadelijk voor de gezondheid. Draag handschoenen tijdens deze procedure.
- Chemische kenmerken van alkinylated lysine 4 in histon H3 via-koper-gekatalyseerde azide-alkyn cycloadditie (CuAAC) (etikettering stap).
- Vlak voor het einde van de modificatiereactie bereiden 5x klik mengsel dat 3 mM CuSO4, 3 mM tris (3-hydroxypropyl-triazolylmethylgroep) amine (THPTA), 250 mM natrium ascorbaat en 6 mM TAMRA azide met eentotaal volume van 20 pl.
- Voeg 5 ul van de vers bereide 5x klik mix aan elke buis aan de CuAAC starten en de wijziging reactie te blussen.
- Meng voorzichtig door en neer te pipetteren.
- Bescherm alle buizen met aluminiumfolie van licht naar foto-bleken van de fluorofoor te voorkomen.
- Incubeer bij 20 ° C gedurende 1 uur.
- Eiwitprecipitatie tot overmaat aan vrije TAMRA fluorofor verwijderen.
- Om gemak verslaat van de fluorescerende gelabelde histon H3 door intensieve in-gel fluorescentie van vrije TAMRA fluorofor voorkomen, verwijder overtollig fluorofoor door precipitatie van eiwitten (3.3.2 - 3.3.4) 34.
- Voeg 75 ul methanol, 18,8 ul chloroform en 50 pi gedeïoniseerd water aan elke buis en vortex kort na elke toevoeging. Centrifugeer bij 16.000 xg gedurende 5 minuten. Verwijder de bovenste fase zonder de grenslaag, die het eiwit bevat.
- Naar 56.3 ul methanol de resterende fase in elke buis, vortex en centrifugeer bij 16.000 xg gedurende 5 minuten tot het proteïne pellet. Verwijder het supernatant. Herhaal deze stap om de pellet te wassen.
- Bedek de open buizen met een pluisvrij doekje en laat ze drogen voor 15-30 min.
- Analyse via SDS PAGE.
- Los het geprecipiteerde eiwitten uit 3.3.4 20 ui SDS laadbuffer (50 mM Tris-HCl, 2,5% (w / v) SDS, 10% (v / v) glycerol, 320 mM β-mercaptoethanol en 0,05% (w / v) broomfenolblauw, pH 6,8). Zorg volledig los de pellet gespoeld de wanden van de buizen met een pipet.
- Incubeer de monsters bij 95 ° C gedurende 10 minuten en laat ze afkoelen tot 20 ° C.
- Centrifugeer kort om alle vloeistof te verzamelen op de bodem van de buizen.
- Laad de gehele hoeveelheid van elk monster in de putjes van een SDS polyacrylamidegel (3.1.7). Gebruik 50 mM MOPS, 50 mM Tris-X (Tris-base), 5 mM EDTA, 0,1% (w / v) SDS als loopbuffer voor elektroforese.
- Voer de gel met 120 V voor ong. 90 min.
- Visualiseren in fluorescentie-gel op een UV tafel (312 nm) met een CCD camera met een filter (540 nm ± 50 nm).
OPMERKING: UV-licht is schadelijk voor de ogen en de huid.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
One-step Labeling van DNA via Aziridine Cofactoren
Dit voorbeeld reactie wordt uitgevoerd met het DNA MTase M.BseCI, waarbij de tweede adenine residu wijzigt in het dubbelstrengs 5'-ATCG A T-3 'sequentie en heeft een herkenningsplaats op het pBR322-plasmide (figuur 4A). Om plasmide labeling testen, is pBR322 uitgedaagd met het restrictie endonuclease (Rease) R.TaqI (5'-TCGA-3 '). R.TaqI zeven plaatsen op pBR322, waarvan één in de M.B...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
One-step etikettering van DNA met DNA MTases en aziridine- cofactoren (Glimlachend DNA) is een robuuste methode, maar sommige aspecten moeten worden overwogen bij de planning van het experiment.
Aziridine cofactor: De 6BAz concentratie DNA labeling met M.BseCI was 60 uM. Wanneer andere DNA MTases de cofactor concentratie worden geoptimaliseerd, bijvoorbeeld concentraties van slechts 20 pM werden toegepast bij de DNA MTase M.TaqI 19. Lage 6BAz concentraties hebben...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs maken de volgende concurrerende financiële belangen bekend: E.W. is uitvinder van gerelateerde patenten.
Dankbetuigingen
De auteurs danken Kerstin Glensk voor het voorbereiden van de MTases M.BseCI en Set7/9 en erkennen met dank de financiering door de Excellence Initiative van de Duitse federale en deelstaatregeringen en RWTH Aachen University. De auteurs zijn blij om 6BAz en SeAdoYn of andere cofactor-analogen te verstrekken voor samenwerkingsonderzoek.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 6BAz | Gesynthetiseerd volgens Weinhold et al., Patentnummer US 8.129.106, gepubliceerd op 6 maart 2012. | ||
| β-Mercaptoethanol | Serva | 28625 | |
| Azijnzuur | Fisher Scientific | 10304980 | |
| Acryamide/Bis-oplossing, 37.5:1 | Serva | 10688 | |
| UltraPure Agarose | Invitrogen | 16500100 | |
| Ammoniumpersulfaat (APS) | Serva | 13375 | |
| Bis-Tris | Gerbu | 1304 | |
| Boorzuur | Gerbu | 1115 | |
| Broomfenolblauw Na-zout | Serva | 15375 | |
| Koper(II)sulfaat | Aldrich | C1297 | |
| Chloroform | Fisher Scientific | 10020090 | |
| Coomassie Briljant Blauw | Serva | 17525 | |
| EDTA dinatriumzout | Gerbu | 1034 | |
| Ethanol | Merck | 100983 | |
| GelRed (10.000x in water) | Biotium | 41003 | |
| Glycerol (99,5%) | Gerbu | 2006 | |
| FastRuler Low Range DNA Ladder | Thermo Scientific | SM1103 | |
| Histone H3 | Expressieplasmide verkregen van Dr. Philipp Voigt en Prof. Danny Reinberg; expressie en isolatie volgens T. J. Richmond et al., J. Mol. Biol. 1997, 272, 301-311. | ||
| M.BseCI | Expressieplasmide verkregen van Dr. Michael Kokkinidis; expressie en isolatie volgens Kapetaniou et al., Acta Cryst. 2006, F63, 12-14. | ||
| Methanol | Fisher Scientific | 10675112 | |
| Magnesiumchloride hexahydraat | J.T. Baker | 4003 | |
| MOPS | Gerbu | 1081 | |
| Natriumchloride | Gerbu | 1112 | |
| pH-strip (Neutralit) | Merck | 1.095.330.001 | |
| pBR322 | Thermo Scientific | SD0041 | |
| R.TaqI (10 u/μl) | Thermo Scientific | ER0671 | |
| SeAdoYn | Gesynthetiseerd volgens Willnow et al., ChemBioChem 2012, 13, 1167-1173. | ||
| Set7/9 | Expressieplasmide verkregen van Prof. Danny Reinberg, expressie en isolatie volgens D. Reinberg et al., Genes Dev.2002, 16, 479-489. | ||
| Streptavidine | Gerbu | 3058 | |
| (+)-Natrium L-ascorbinezuur | Sigma Life Science | A7631 | |
| SDS Granulair | Gerbu | 1833 | |
| di-Natriumwaterstoffosfaat | Merck | 106.586 | |
| TAMRA azide | Gesynthetiseerd volgens referentie 30: Willnow et al., ChemBioChem 2012, 13, 1167-1173. | ||
| TaqI-buffer (10x) | Thermo Scientific | B28 | |
| N,N,N',N'-Tetramethylethyleendiamine (TEMED) | Acros Organics | 42058 | |
| Tris-HCl | Gerbu | 1028 | |
| Tris-X (TRIS-base) | Gerbu | 1018 | |
| Tris(3-hydroxypropyltriazolyl-methyl)amine (THPTA) | Sigma-Aldrich | 762342 |
Referenties
- Gottfried, A., Weinhold, E. Sequence-specific covalent labelling of DNA. Biochem. Soc. Trans. 39, 623-628 (2011).
- Zohar, H., Muller, S. J. Labeling DNA for single-molecule experiments: methods of labeling internal specific sequences on double-stranded DNA. Nanoscale. 3, 3027-3039 (2011).
- Hinner, M. J., Johnsson, K. How to obtain labeled proteins and what to do with them. Curr. Opin. Biotechnol. 21, 766-776 (2010).
- Wua, Y. -W., Goody, R. S. Probing protein function by chemical modification. J. Pept. Sci. 16, 514-523 (2010).
- Struck, A. -W., Thompson, M. L., Wong, L. S., Micklefield, J. S-Adenosyl-methionine-dependent methyltransferases: Highly versatile enzymes in biocatalysis, biosynthesis and other biotechnological applications. ChemBioChem. 13, 2642-2655 (2012).
- Klimasauskas, S., Weinhold, E. A new tool for biotechnology: AdoMet-dependent methyltransferases. Trends Biotechnol. 25, 99-104 (2007).
- Pljevaljcic, G., Schmidt, F., Weinhold, E. Sequence-specific Methyltransferase-Induced Labeling of DNA (SMILing DNA). ChemBioChem. 5, 265-269 (2004).
- Lukinavicius, G., Lapiene, V., Stasevskij, Z., Dalhoff, C., Weinhold, E., Klimasauskas, S. Targeted labeling of DNA by methyltransferase-directed Transfer of Activated Groups (mTAG). J. Am. Chem. Soc. 129, 2758-2759 (1021).
- Pignot, M., Siethoff, C., Linscheid, M., Weinhold, E. Coupling of a nucleoside with DNA by a methyltransferase. Angew. Chem. Int. Ed. 37, 2888-2891 (1998).
- Weller, R. L., Rajski, S. R. Design, synthesis, and preliminary biological evaluation of a DNA methyltransferase-directed alkylating agent. ChemBioChem. 7, 243-245 (2006).
- Du, Y., Hendrick, C. E., Frye, K. S., Comstock, L. R. Fluorescent DNA Labeling by N-Mustard Analogues of S-adenosyl-l-methionine. ChemBioChem. 13, 2225-2233 (2012).
- Pljevaljcic, G., Schmidt, F., Scheidig, A. J., Lurz, R., Weinhold, E. Quantitative labeling of long plasmid DNA with nanometer precision. ChemBioChem. 8, 1516-1519 (1002).
- Wilkinson, S., et al. Molecular scale architecture: engineered three- and four-way junctions. Bioconjugate Chem. 19, 470-475 (2008).
- Braun, G., et al. Enzyme-directed positioning of nanoparticles on large DNA templates. Bioconjugate Chem. 19, 476-479 (2008).
- Kim, S., et al. Enzymatically incorporated genomic tags for optical mapping of DNA binding proteins. Chem. Int. Ed. 51, 3578-3581 (2012).
- Rina, M., Bouriotis, V. Cloning purification and characterization of the BseCI DNA methyltransferase from Bacillus stearothermophilus. Gene. 133, 91-94 (1993).
- Sequence-specific detection of methylation in biomolecules. US Patent. , 8,129,106 (2012).
- Pljevaljcic, G., Pignot, M., Weinhold, E. Design of a new fluorescent cofactor for DNA methyltransferases and sequence-specific labeling of DNA. J. Am. Chem. Soc. 125, 3492-3410 (2003).
- Schmidt, F. H. -G., Hüben, M., Gider, B., Renault, F., Teulade-Fichou, M. -P., Weinhold, E. Sequence-specific Methyltransferase-Induced Labelling (SMILing) of plasmid DNA for studying cell transfection. Bioorg. Med. Chem. 16, 40-48 (2008).
- Dalhoff, C., Lukinavicius, G., Klimasauskas, S., Weinhold, E. Direct transfer of extended groups from synthetic cofactors by DNA methyltransferases. Nat. Chem. Biol. 2, 31-32 (2006).
- Lukinavicius, G., Tomkuviene, M., Masevicius, V., Klimasauskas, S. Enhanced chemical stability of AdoMet analogues for improved methyltransferase-directed labeling of DNA. ACS Chem. Biol. 8, 1134-1139 (2013).
- Motorin, Y., et al. Expanding the chemical scope of RNA:methyltransferases to site-specific alkynylation of RNA for click labeling. Nucleic Acids Res. 39, 1943-1952 (1943).
- Schulz, D., Holstein, J. M., Rentmeister, A. A chemo-enzymatic approach for site-specific modification of the RNA cap. Angew. Chem. Int. Ed. 52, 7874-7878 (2013).
- Peters, W., et al. Enzymatic site-specific functionalization of protein methyltransferase substrates with alkynes for click labeling. Angew. Chem. Int. Ed. 49, 5170-5173 (2010).
- Islam, K., Zheng, W., Yu, H., Deng, H., Luo, M. Expanding cofactor repertoire of protein lysine methyltransferase for substrate labeling. ACS Chem. Biol. 6, 679-684 (2011).
- Wang, R., Zheng, W., Yu, H., Deng, H., Luo, M. Labeling substrates of protein arginine methyltransferase with engineered enzymes and matched S-adenosyl-l-methionine analogues. J. Am. Chem. Soc. 133, 7648-7651 (2011).
- Islam, K., et al. Bioorthogonal profiling of protein methylation using azido derivative of S-adenosyl-l-methionine. J. Am. Chem. Soc. 134, 5909-5915 (2012).
- Islam, K., et al. Defining efficient enzyme-cofactor pairs for bioorthogonal profiling of protein methylation. Proc. Natl. Acad. Sci. U.S.A. 110, 16778-16783 (2013).
- Binda, O., Boyce, M., Rush, J. S., Palaniappan, K. K., Bertozzi, C. R., Gozani, O. A chemical method for labeling lysine methyltransferase substrates. ChemBioChem. 12, 330-334 (2011).
- Willnow, S., Martin, M., Lüscher, B., Weinhold, E. A selenium-based click AdoMet analogue for versatile substrate labeling with wild-type protein methyltransferases. ChemBioChem. 13, 1167-1173 (2012).
- Bothwell, I. R., et al. Se-Adenosyl-l-selenomethionine cofactor analogue as a reporter of protein methylation. J. Am. Chem. Soc. 134, 14905-14912 (2012).
- Tomkuviene, M., Clouet-d’Orval, B., Cerniauskas, I., Weinhold, E., Klimasauskas, S. Programmable sequence-specific click-labeling of RNA using archaeal box C/D RNP methyltransferases. Nucleic Acids Res. 40, 6765-6773 (2012).
- Nishioka, K., et al. Set9, a novel histone H3 methyltransferase that facilitates transcription by precluding histone tail modifications required for heterochromatin formation. Genes Dev. 16, 479-489 (2002).
- Clark, P. M., et al. Direct in-gel fluorescence detection and cellular imaging of O-GlcNAc-modified proteins. J. Am. Chem. Soc. 130, (2008).
- Lukinavicius, G., Lapinaite, A., Urbanaviciute, G., Gerasimaite, R., Klimasauskas, S. Engineering the DNA cytosine-5 methyltransferase reaction for sequence-specific labeling of DNA. Nucleic Acids Res. 40, 11594-11602 (2012).
- Neely, R. K., Dedecker, P., Hotta, J., Urbanaviciute, G., Klimasauskas, S., Hofkens, J. DNA fluorocode: A single molecule, optical map of DNA with nanometre resolution. Chem. Sci. 1, 453-460 (2010).
- Roberts, R. J., Vincze, T., Posfai, J., Macelis, D. REBASE-a database for DNA restriction and modification: enzymes, genes and genomes. Nucleic Acids Res. 38, 234-236 (2010).
- Petrossian, T. C., Clarke, S. G. Uncovering the human methyltransferasome. Mol. Cell. Proteomics. 10, 1-12 (2011).
- Kriukiene, E., et al. DNA unmethylome profiling by covalent capture of CpG sites. Nat. Commun. 4, 2190(2013).
- Wang, R., et al. Profiling genome-wide chromatin methylation with engineered posttranslation apparatus within living cells. J. Am. Chem. Soc. 135, 1048-1056 (2013).
- Zhang, C., Weller, R. L., Thorson, J. S., Rajski, S. R. Natural product diversification using a non-natural cofactor analogue of S-adenosyl-l-methionine. J. Am. Chem. Soc. 128, 2760-2761 (2006).
- Stecher, H., et al. Biocatalytic Fiedel-Crafts alkylation using non-natural cofactors. Angew. Chem. Int. Ed. 48, 9546-9548 (2009).
- Lee, B. W. K., Sun, H. G., Zang, T., Kim, B. J., Alfaro, J. F., Zhou, Z. S. Enzyme-catalyzed transfer of a ketone group from an S-adenosylmethionine analogue: A tool for the functional analysis of methyltransferases. J. Am. Chem. Soc. 132, 3642-3643 (2010).
- Winter, J. M., et al. Expanding the structural diversity of polyketides by exploring the cofactor tolerance of an inline methyltransferase domain. Org. Lett. 15, 3774-3777 (2013).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
