We bieden een reproduceerbare basismethode voor de langetermijnmicroscopie van de seksuele levenscyclus van splijtingsgist. Met kleine aanpassingen zoals beschreven, stelt het gepresenteerde protocol onderzoekers in staat zich te concentreren op verschillende stappen van het reproductieproces.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Microscopie van Fission Yeast Sexual Lifecycle
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
De splitsingsgist Schizosaccharomyces pombe is een onschatbaar modelsysteem geweest in het bestuderen van de regulatie van de mitotische celcyclusprogressie, de mechanica van celdeling en celpolariteit. Bovendien hebben klassieke experimenten over zijn seksuele voortplanting resultaten opgeleverd die essentieel zijn voor het huidige begrip van DNA-recombinatie en meiose. Meer recente analyses van splitsingsgistparing hebben interessante vragen opgeworpen over de mechanismen van respons op extrinsieke stimuli, gepolariseerd celgroei en cel-celfusie. Om deze onderwerpen in detail te bestuderen, hebben we een eenvoudig protocol ontwikkeld voor microscopie van de volledige seksuele levenscyclus. De hier beschreven methode kan eenvoudig worden aangepast om specifieke paringsstadia te bestuderen. In het kort, nadat ze in een stikstofrijk medium tot exponentiële fase zijn gekweekt, worden celculturen gedurende perioden die geschikt zijn voor het stadium van de seksuele levenscyclus dat zal worden onderzocht, overgebracht naar een stikstof-arm medium. Cellen worden vervolgens gemonteerd op aangepaste, gemakkelijk te bouwen agarose-padkamers voor beeldvorming. Deze aanpak maakt het mogelijk om cellen te monitoren vanaf het begin van de paring tot de uiteindelijke vorming van sporen.
Inleiding
Hoewel genetische uitwisseling tussen twee cellen is de centrale gebeurtenis in geslachtelijke voortplanting, beroept zij zich op een keten van gebeurtenissen die celdifferentiatie te bevorderen, zorgen voor partnerkeuze, het uitvoeren van cel-cel fusie en genomische stabiliteit te handhaven. Aldus presenteert de seksuele levenscyclus zich als een modelsysteem om een aantal vragen omtrent ontwikkelingsstoornissen schakelaars bestuderen reactie op extrinsieke stimuli, plasma membraanfusie, chromosoomsegregatie, enz Exploring the splijtgist seksuele cyclus van deze fenomenen te bestuderen brengt de voordelen van de de modelsysteem krachtige genetica, gevestigde high-throughput benaderingen en geavanceerde microscopie. Sex in kernsplijting gist is een heterotypic evenement tussen een P-cel en een M-cel van verschillende soorten paring. De twee celtypen verschillend drukken een aantal genen waaronder die 1,2 voor de productie van de uitgescheiden P- en M-feromonen, feromoon-receptoren map3 en Mam2 en feromoon-proteases Sxa1 en Sxa2. Homothallic stammen, zoals de gebruikte stam H90, dragen de genetische informatie voor beide paren in een genoom en cellen ondergaan een complex patroon van paringstype schakelen gedurende de mitotische levenscyclus (besproken in ref. 3). Meerdere isolaten van heterothallisch splijtgist die zelden of nooit schakel mating type worden ook vaak gebruikt 4, het meest opvallend h + N (P-type) en h -S (M-type) stammen.
In kernsplijting gist, de toegang tot de seksuele levenscyclus is onder strikte nutritionele regelgeving. Alleen stikstof verhongerde splijtingsproducten gistcellen arresteren mitotische voortplanting en produceren diffundeerbare feromonen om de aanwezigheid van een seksuele partner te signaleren en de verdere stappen van de seksuele cyclus (beoordeeld in ref. 5) te promoten. Stikstof ontbering de-onderdrukt de sleutel transcriptionele regulator van de paring Ste11 die fungeert als een ontwikkelings-switch en bevordert eXpression van paring specifieke genen met inbegrip van het feromoon receptor en de feromoonproductie genen 6,7. Feromoon-receptor betrokkenheid activeert de receptor gekoppelde eiwit G-alfa en downstream MAPK signalering die verder verbetert Ste11 transcriptionele activiteit 8-10, waardoor de feromonen productie in een positieve terugkoppeling tussen de paring partners. Pheromone niveaus zijn cruciaal voor andere cel polarisatie toestanden te induceren door het reguleren van de meester organisator van de cel polariteit, de Rho-familie GTPase Cdc42 11. Bij blootstelling aan lage concentraties feromoon wordt actief Cdc42 gevisualiseerd dynamische pleisters verkennen van de cel periferie en geen celgroei waargenomen in dit stadium. Verhoogde feromoon niveaus bevorderen van de stabilisering van de Cdc42 activiteit aan één zone en de groei van een gepolariseerde projectie, aangeduid als de Shmoo, welke partner cellen in contact brengt. Vervolgens worden de twee haploïde parende partners fuseren van een diploïde zygote te vormen. Recent werk onthult the bestaan van een nieuwe actine structuur essentieel voor fusie die is samengesteld door de paring geïnduceerd formin FUS1 12. Deze fusie aandacht concentreert type V myosine afhankelijke processen en positioneert het celwandafbraak machines, waardoor remodelleren van de celwand plasmamembraan contact zonder cellyse 12 mogelijk. Bij het cel-cel fusie, de kernen in contact komen en ondergaan karyogamie. Een prominente dynein afhankelijke heen en weer bewegen van de kern in de zygote (paard-tail beweging) bevordert vervolgens de koppeling van chromosoom homologen 13,14, gevolgd door meiose. Tenslotte de vier producten van meiose worden verpakt in afzonderlijke sporen tijdens sporulatie.
Vanwege de complexiteit en de vele stappen die betrokken zijn, heeft gedetailleerde monitoring van de paring is uitdagend. Twee opmerkelijke problemen zijn dat het hele proces duurt meer dan vijftien uur en dat cellen moeilijk te synchroniseren. deze difficulties worden omzeild door eencellige microscopie benaderingen. Hier wordt een algemeen protocol om te onderzoeken van de seksuele levenscyclus in kernsplijting gist wordt gepresenteerd. Met kleine aanpassingen Dit protocol maakt het bestuderen van de verschillende stappen van het proces, namelijk de inductie van paring genproduct celpolarisatie en paring tussen zuster-cellen na mating type schakel- en tussen niet-zuster partners, cel-celfusie en post-fusie horse-tail beweging, meiose en sporulatie. Deze methode maakt het mogelijk om 1) gemakkelijk te visualiseren fluorescent gelabelde eiwitten in de tijd vóór, tijdens en na de fusie; 2) discriminatie het gedrag van cellen van tegengestelde mating; en 3) het meten en kwantificeren van parameters zoals shmooing, paring, fusie of sporulatie efficiency.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Microscopie analyse van kernsplijting gist geslachtelijke voortplanting
1. Mediavoorbereiding
- Bereid Minimum Sporulatie medium (MSL-N) 15 door mengen van de volgende componenten: Glucose: 10 g / l, KH 2PO 4: 1 g / l, NaCl: 0,1 g / l MgSO4 · 7H 2 O: 0,2 g / L. Voeg Sporenelementen (10.000x): 100 ul / L, vitaminen (1000x): 1 ml / l en 0,1 M CaCl2 ml / L. Filter-steriliseren met behulp van een 0,22 pm poriegrootte filter en bewaar bij kamertemperatuur (RT).
- Gebruik de volgende Vitamins (1000x) voorraad: Pantothenaat: 1 g / l, nicotinezuur: 10 g / l, Inositol: 10 g / l, biotine: 10 mg / l. Filter-steriliseren met behulp van een 0,22 um poriegrootte filter en bewaar bij 4 ° C.
- Gebruik de volgende sporenelementen (10.000 x) voorraad: Boorzuur: 5 g / l, MnSO 4: 4 g / l, ZnSO 4 · 7H 2 O: 4 g / l, FeCl2 · 6H 2 O: 2 g / l , MoO 3: 0,4 g / l, KI: 1 g / l, CuSO4· 5H 2 O: 0,4 g / l, citroenzuur: 10 g / l. Filter-steriliseren met behulp van een 0,22 um poriegrootte filter en bewaar bij 4 ° C.
- Bereid MSL-N Agarose 2% (gebruikt voor de agarose pad kamers te maken) door het combineren van 10 ml van MSL-N met 0,2 g agarose. Smelten ~ 2 minuten bij hoog vermogen in een microgolfoven, tot agarose oplost en aliquot 0,5 ml in microcentrifugebuizen. Bewaar bij kamertemperatuur.
- Bereid Minimum Sporulatie medium met stikstof (MSL + N) van MSL-N door toevoeging van (NH4) 2 SO 4: 1 g / l, Leucine: 0,225 g / l, Adenine: 0,225 g / l, uracil: 0,225 g / l . Filter-steriliseren met behulp van een 0,22 um poriegrootte filter. Bewaar bij kamertemperatuur.
Opmerking: leucine, adenine en uracil zijn aan dit medium toegevoegd om de groei van auxotrofe stammen. Extra aminozuur supplement moeten worden opgenomen als de gebruikte stam draagt een duidelijke auxotrofie (bijvoorbeeld his3Δ). Houd er ook rekening mee dat het werk met volledig prototroph stammen wordt aanbevolen, omdat alleendergelijke stammen zal hoog paring efficiency mogelijk te maken. - Bereid 200 ml valap voor Kamer afdichting. In een bekerglas gelijke gewichten van lanoline, vaseline (of andere vaseline) en paraffine. Heat mengsel bij lage temperatuur en roer af en toe tot het goed gemengd. Aliquot de mix in meerdere kleine petrischaaltjes. Bewaar bij kamertemperatuur.
2. Het kweken kernsplijting giststammen voor Mating Experimenten (figuur 1).
- Dag 1, 's avonds:
Inoculeer vers weggeschoten stammen uit vaste media in de cultuur buisjes met 3 ml van MSL + N. Gebruik vlakke bodem buizen van ongeveer 2,5 cm diameter. Gebruik andere cultuur buizen of flessen met aangepaste cultuur volume. Incubeer overnacht (O / N) onder schudden bij 25 ° C, 200 rpm. Als het werken met heterothallisch stammen, te enten afzonderlijk.- Verdunde celsuspensies media de volgende ochtend zodat culturen optische dichtheid gemeten bij 600 nm (OD 600) van 0,4-0,8 in de avond.
Notitie:OD 600 metingen als benadering van celconcentratie van splijtgist lineair in het bereik van ongeveer 0,1-1,0. Voor onze spectrofotometer OD 600 = 0,1 komt overeen met 1,4 x 10 6 cellen per ml. Dus, als de initiële OD 600 leest zijn buiten dit bereik monsters moeten worden verdund / geconcentreerd zijn om betrouwbare metingen.
- Verdunde celsuspensies media de volgende ochtend zodat culturen optische dichtheid gemeten bij 600 nm (OD 600) van 0,4-0,8 in de avond.
- Dag 2, 's avonds:
Verdun de cellen in 20 ml N + MSL media OD 600 = 0,025 in 100 ml kolven. Incubeer stammen O / N bij 30 ° C, 200 rpm.
Let op: Wild-type celculturen moet OD te bereiken 600 ~ 0.8 de volgende ochtend (15 uur later). Als het werken met stammen met langer generatie aan te passen verdunning dienovereenkomstig. - Dag 3 Ochtend:
Meet de OD 600 om te controleren of culturen hebben cel dichtheid van OD 600 ~ 0.8. Als het werken met heterothallisch stammen, meng gelijke aantallen partner cellen. Pellet cellen bij 1000 xg en transfer naar een 1,5 mlbuis. Was de cellen drie keer in 1 ml N MSL-medium. Resuspendeer cellen in 3 ml N MSL-medium en verdund cellen OD 600 = 1,5.- De paring tussen zus cellen te controleren cellen direct mount voor beeldvorming (zie protocol paragraaf 2.4). Gebruik homothallic H90 stammen, in welk type paring omschakeling plaats tijdens de mitotische divisies die zich na stikstof ontbering zal nemen. Directe montage van cellen op de agarose pad waarborgt dat na celdeling, zuster-cellen blijven naast elkaar.
- Naar cel polarisatie (verkennend dynamiek en shmooing) toezicht broeden 1-3 ml van de celcultuur bij 30 ° C, 200 rpm gedurende 3-4 uur voorafgaand aan de montage van cellen voor beeldvorming. Binnen deze 3-4 uur, zal de laatste mitotische deling hebben voorgedaan. Een paar cellen zullen geïnitieerd hebben polarisatie, maar de meeste zullen alleen worden beginnen hun verkennend polarisatie dynamiek.
- Monitoren cel-celfusie incubeer 1-3 ml celkweek bij 30 ° C, 200 rpm gedurende 4-6 uur priof de montage cellen voor beeldvorming.
- om toezicht te houden na fusiegebeurtenissen incubeer 1-3 ml celculturen bij 30 ° C, 200 rpm gedurende 8 uur vóór montage cellen voor beeldvorming.
- Om op speciaal feromoon concentratie (alleen voor heterothallisch stammen) controleren incubeer 3 ml celkweek bij 30 ° C, 200 rpm gedurende 3-4 uur vóór montage cellen voor beeldvorming.
- Verwijder de MSL-N-bevattende microcentrifugebuis uit de 95 ° C warmte-blok (zie Protocol paragraaf 2.4.1. Hieronder). Add P-factor of M-factor op de gewenste concentratie direct in de gesmolten MSL-N agarose. Meng goed door vortexen voor onmiddellijke pad voorbereiding.
- Na montage van de meetcellen, incubeer de pad 15-30 min bij 25 ° C voorafgaand aan beeldvorming. P-factor en M-factor feromonen werden uit een voorraadoplossing van 1 mg / ml in methanol.
Opmerking: Als het werken met gemuteerde stammen incubatietijd kan variëren. Samenklontering van cellen kunnen optreden na langdurige incubatie in vloeibare media en kunnen met name sterk in sommige gemuteerde stammen zijn. Samengeklonterd cellen niet worden gespot op agarose pads in een enkele laag en dus moeilijk autofocus en beeld. Bij intensief cel klonteren monteren cellen op agarose pads direct na wassen en resuspensie in stikstof ontbreekt media (zoals in het protocol 2.3.1.) En incubeer ze op 30 ° C voorafgaand aan beeldvorming.
- Montage Cellen voor Imaging:
- Bereid MSL-N agarose pads 16 door het smelten van een monster in een 95 ° C warmte-blok voor 10-15 min en het toevoegen van 200 pl tussen twee glasplaatjes gescheiden door afstandhouders (Figuur 1B). Gebruik spacers met een dikte van ~ 0,5 mm. Afstandhouders maken gebruik stroken gesneden uit karton, zoals geleverd met restrictie-enzymen.
- Pellet 100 pl cellen bij 1000 g gedurende 1 min, verwijder het supernatant en resuspendeer cellen in residuele 2-4 pl medium. Niet opnieuw te schorten in vers medium als het vertraagtparing.
- Na 2-3 min verwijder voorzichtig afstandhouders en de top glasplaatje. Als er meerdere stammen moeten worden gemonteerd, de voorbereiding van de cel concentreert voor de voorbereiding van de agarose pad.
- Voeg 1 ul van de cellen aan de pad en wacht tot de daling begint drogen (~ 1 min), voordat ze met een deksel slip en afdichten met valap.
- Laat de pad zitten gedurende ten minste 30 minuten voor de beeldvorming bij 25 ° C of RT.
- Aan een mengsel van cellen in verschillende stadia van het koppelen krijgen, moet een pad direct na wassingen in MSL-N (zie paragraaf 2.3.) En incubeer bij 18 ° CO / N (= 15 uur). Deze benadering is nuttig voor de beeldvorming van cellen op verschillende stadia paring met een hoge tijdsresolutie of monsters met een zwak signaal.
3. live-cell imaging van het Koppelen van gistcellen
- Pas Image Acquisition-instellingen.
Opmerking: Afbeelding overname hier gepresenteerde werden geoptimaliseerd voor de DeltaVision platform bestaat uit een op maat Olympus IX-71omgekeerde microscoop met Plan Apo 60X / 1.42 NA of U-Plan Apo 100X / 1.4 NA doelstellingen, een CoolSNAP HQ2 camera en een Insight SSI 7 kleuren gecombineerd unit verlichting. De hardware wordt gecontroleerd door softWoRx v4.1.2 dat maakt het ook mogelijk de digitale autofocus.- Waarborgen dat de autofocusserende frequentie niet hoger zijn dan 15 min aangezien de Z-drift over langere tijd de capaciteit van de software autofocussysteem kunnen overtreffen. Bij gebruik van een hardware-gebaseerde autofocus-systeem, gebruik maken van grotere tussenpozen.
- Passen beeldvorming interval. Neem beelden elke 10 min gedurende ~ 15 uur als uitgangspunt bij het werken met een fluorescent gelabeld eiwit voor de eerste keer. Dit interval geeft een goed overzicht van het gehele paring proces zonder uitgebreide bleken.
- Afbeelding met intervallen van 5 min of korter nauwkeuriger time events, zoals fusie. Kortere intervallen vereisen sterke fluoroforen waardoor lage belichtingstijden en weinig bleken. Voor beeldvorming met tussenpozen van minder dan 1 min vermijden O / N microscopieen in plaats daarvan voor te bereiden een mengsel van alle paring fasen zoals beschreven in paragraaf 2.4.6 Protocol.
- Pas de afbeelding belichtingstijd. exposure testtijden tussen de 50 en 300 msec. Proberen een evenwicht tussen de signaal-ruisverhouding en photobleaching slaan als een groot aantal tijdstippen bereiken met een waarneembaar signaal (normaal meer dan 100).
- Pas Z-snijden. Secties elk 0,3 pm die 5 urn zorgen voor een goede beeldvorming diepte. NB-Z snijden verdere toename foto-schade kan worden geminimaliseerd door de OAI (optische as integratie - een enkele slag verkrijging van het totale monster diepte). Goede auto-focus systeem vermindert de noodzaak voor vele Z-profielen en wordt sterk aanbevolen.
- Tips om Mating Typespecifieke Gedrag Studie:
- Voor heterothallisch stammen gebruikt h- en h + cellen die verschillende fluoroforen, zodat de twee celtypen te onderscheiden. Gebruik een genetisch gecodeerde fluorophoopnieuw uitgedrukt als cytosolische versie of fusie met een endogeen eiwit, hoewel we goed succes met sfGFP, snel opvouwbaar variant van GFP 17 hebben. Endogene eiwitten zijn meestal gelabeld op hun endogene genomische locus door middel van homologe recombinatie 14.
- Voor homothallic stammen, drukken een genetisch gecodeerde cytosolisch fluorescent eiwit onder de controle van paringstype promoters zoals die van het feromoon receptor genen map3 en mam2 de expressie rijden P en M cellen. De promotors van map3 en mam2 zijn niet actief tijdens de vegetatieve groei en worden geïnduceerd op stikstof uithongering 18,19. Constructen de expressie van cytosolische GFP of mCherry onder de controle van deze promoters worden typisch geïntegreerd in een genomische locus (Ura4, Leu1) die niet interfereert met de normale progressie van de seksuele levenscyclus 12.
- Gebruik mating type-specifieke cytosolische fluoroforen (zoals in paragraaf 3.2.2 Protocol) precieze timing van celfusie gevisualiseerd de overdracht van fluorescentiesignaal per partner cel naar de andere te bepalen.
4. Kwantificering van het Koppelen en Fusion Efficiëntieverbeteringen
- Paring en fusie efficiëntie 11,12, vlek cellen kwantificeren direct na MSL-N wassen op MSL-N agarose pads, zoals in stap 2.3.1 hierboven, en laat gedurende 24 uur bij 25 ° C voorafgaand aan beeldvorming (Figuur 1A). Met dit protocol een homothallic wildtype mating efficiëntie bereikt -60% en fusie-efficiëntie 99%. Om te testen of een eventuele verlaging van deze waarden waargenomen in mutant stammen weerspiegelen een terminal fenotype of een vertraging, herhaal het experiment met een 36 uur incubatie tijd.
- Bereken paring efficiëntie
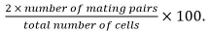 Mating paren omvatten zygotes, ASCI en gefuseerde cel paren geïdentificeerd vanhun positie en groei naar elkaar.
- Bereken fusion efficiëntie
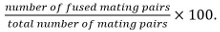
Opmerking: Gesmolten koppelen paren worden geïdentificeerd door hun vermogen om sporen te vormen indien bekend is dat de mutant onderzochte sporulatie niet beïnvloedt. Als sporulatie niet kan worden gebruikt als uitlezing wordt fusion bepaald door het observeren van de verspreiding van een cytosolische merker uitgedrukt in één seksuele partner naar beide partners.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Kernsplijting Gist Groei en Mating Dynamics bij verwijdering van een stikstofbron
Stikstof honger is een voorwaarde voor de aanvang van de seksuele voortplanting in kernsplijting gist, werd wild-type homothallic H90 stam gecontroleerd op verschuiving van stikstofrijke aan stikstof beroofd medium (figuur 2), naar aanleiding van de in figuur 1 protocol. In het kort, cellen werden gegroeid O / N exponentiële fase (OD600 = 0,5) in ...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Eisen aan de omgeving, en de beschikbaarheid van voedingsstoffen in het bijzonder, sterk van invloed op de kernsplijting gist fysiologie. Stikstoftekort is noodzakelijk inzet voor de geslachtelijke voortplanting en aanvankelijk leidt tot opvallende veranderingen in de mitotische celcyclus (Ref. 21 en figuur 2). Na stikstofverwijdering uit exponentieel groeiende bevolking, celgrootte bij deling snel af (figuur 2C) en de meerderheid van de cellen arrestatie mitotische progressi...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs verklaren dat ze geen concurrerende financiële belangen hebben.
Dankbetuigingen
AV werd ondersteund door een EMBO lange termijn postdoctoraal fellowship. Onderzoek in het Martin lab wordt gefinancierd door een ERC Starting Grant (GeometryCellCycle) en een Zwitserse National Science Foundation subsidie (31003A_155944) naar SGM.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Glucose | Sigma-Aldrich | G8270-10KG | |
| KH2PO4 | Sigma-Aldrich | 1.05108.0050 | |
| NaCl | Sigma-Aldrich | 71381 | |
| MgSO4•7H2O | Sigma-Aldrich | 63140 | |
| CaCl2 | Sigma-Aldrich | 12095 | |
| Pantothenaat | AppliChem | A2088,0025 | |
| Nicotinezuur | AppliChem | A0963,0100 | |
| Inositol | AppliChem | A1716,0100 | |
| Biotine | AppliChem | A0967,0250 | |
| Boorzuur | Sigma-Aldrich | B6768-1KG | |
| MnSO4 | AppliChem | A1038,0250 | |
| ZnSO4•7H2O | Sigma-Aldrich | Z4750 | |
| FeCl2•6H2O | AppliChem | A3514,0250 | |
| Molybdenumoxide (VI) (MoO3) | Sigma-Aldrich | 69850 | |
| KI | AppliChem | A3872,0100 | |
| CuSO4•5H2O | AppliChem | A1034,0500 | |
| Citroenzuur | AppliChem | A2344,0500 | |
| Agarose | Promega | V3125 | |
| (NH4)2SO4 | Merck | 1.01217.1000 | |
| L-Leucine | Sigma-Aldrich | L8000-100G | |
| Adenine Hemisulfaat Zout, mini 99% | Sigma-Aldrich | A9126-100G | |
| Uracil | Sigma-Aldrich | U0750 | |
| Lanoline | Sigma-Aldrich | L7387 | |
| Vaseline | Reactolab | 92045-74-4 | |
| Paraffine | Reactolab | 7005600 |
Referenties
- Mata, J., Bahler, J. Global roles of Ste11p, cell type, and pheromone in the control of gene expression during early sexual differentiation in fission yeast. Proc Natl Acad Sci U S A. 103 (42), 15517-15522 (2006).
- Xue-Franzen, Y., Kjaerulff, S., Holmberg, C., Wright, A., Nielsen, O. Genomewide identification of pheromone-targeted transcription in fission yeast. BMC Genomics. 7, 303(2006).
- Klar, A. J. Lessons learned from studies of fission yeast mating-type switching and silencing. Annu Rev Genet. 41, 213-236 (2007).
- Beach, D. H., Klar, A. J. Rearrangements of the transposable mating-type cassettes of fission yeast. EMBO J. 3 (3), 603-610 (1984).
- Merlini, L., Dudin, O., Martin, S. G. Mate and fuse: how yeast cells do it. Open Biol. 3 (3), 130008(2013).
- Mochizuki, N., Yamamoto, M. Reduction in the intracellular cAMP level triggers initiation of sexual development in fission yeast. Mol Gen Genet. 233 (1-2), 17-24 (1992).
- Sugimoto, A., Iino, Y., Maeda, T., Watanabe, Y., Yamamoto, M. Schizosaccharomyces pombe ste11+ encodes a transcription factor with an HMG motif that is a critical regulator of sexual development. Genes Dev. 5 (11), 1990-1999 (1991).
- Kjaerulff, S., Lautrup-Larsen, I., Truelsen, S., Pedersen, M., Nielsen, O. Constitutive activation of the fission yeast pheromone-responsive pathway induces ectopic meiosis and reveals ste11 as a mitogen-activated protein kinase target. Mol Cell Biol. 25 (5), 2045-2059 (2005).
- Obara, T., Nakafuku, M., Yamamoto, M., Kaziro, Y. Isolation and characterization of a gene encoding a G-protein alpha subunit from Schizosaccharomyces pombe: involvement in mating and sporulation pathways. Proc Natl Acad Sci U S A. 88 (13), 5877-5881 (1991).
- Toda, T., Shimanuki, M., Yanagida, M. Fission yeast genes that confer resistance to staurosporine encode an AP-1-like transcription factor and a protein kinase related to the mammalian ERK1/MAP2 and budding yeast FUS3 and KSS1 kinases. Genes Dev. 5 (1), 60-73 (1991).
- Bendezu, F. O., Martin, S. G. Cdc42 explores the cell periphery for mate selection in fission yeast. Curr Biol. 23 (1), 42-47 (2013).
- Dudin, O., et al. A formin-nucleated actin aster concentrates cell wall hydrolases for cell fusion in fission yeast. J Cell Biol. 208 (7), 897-911 (2015).
- Chikashige, Y., et al. Telomere-led premeiotic chromosome movement in fission yeast. Science. 264 (5156), 270-273 (1994).
- Bahler, J., et al. Heterologous modules for efficient and versatile PCR-based gene targeting in Schizosaccharomyces pombe. Yeast. 14 (10), 943-951 (1998).
- Egel, R., Willer, M., Kjaerulff, S., Davey, J., Nielsen, O. Assessment of pheromone production and response in fission yeast by a halo test of induced sporulation. Yeast. 10 (10), 1347-1354 (1994).
- Tran, P. T., Marsh, L., Doye, V., Inoue, S., Chang, F. A mechanism for nuclear positioning in fission yeast based on microtubule pushing. J Cell Biol. 153 (2), 397-411 (2001).
- Pedelacq, J. D., Cabantous, S., Tran, T., Terwilliger, T. C., Waldo, G. S. Engineering and characterization of a superfolder green fluorescent protein. Nat Biotechnol. 24 (1), 79-88 (2006).
- Kitamura, K., Shimoda, C. The Schizosaccharomyces pombe mam2 gene encodes a putative pheromone receptor which has a significant homology with the Saccharomyces cerevisiae Ste2 protein. EMBO J. 10 (12), 3743-3751 (1991).
- Tanaka, K., Davey, J., Imai, Y., Yamamoto, M. Schizosaccharomyces pombe map3+ encodes the putative M-factor receptor. Mol Cell Biol. 13 (1), 80-88 (1993).
- Motegi, F., Arai, R., Mabuchi, I. Identification of two type V myosins in fission yeast, one of which functions in polarized cell growth and moves rapidly in the cell. Mol Biol Cell. 12 (5), 1367-1380 (2001).
- Sajiki, K., Pluskal, T., Shimanuki, M., Yanagida, M. Metabolomic analysis of fission yeast at the onset of nitrogen starvation. Metabolites. 3 (4), 1118-1129 (2013).
- Miyawaki, A., Nagai, T., Mizuno, H. Mechanisms of protein fluorophore formation and engineering. Curr Opin Chem Biol. 7 (5), 557-562 (2003).
- Dyer, J. M., et al. Tracking shallow chemical gradients by actin-driven wandering of the polarization site. Curr Biol. 23 (1), 32-41 (2013).
- Beta, C., Bodenschatz, E. Microfluidic tools for quantitative studies of eukaryotic chemotaxis. Eur J Cell Biol. 90 (10), 811-816 (2011).
- Lee, S. S., et al. Quantitative and dynamic assay of single cell chemotaxis. Integr Biol (Camb). 4 (4), 381-390 (2012).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
