Dit protocol beschrijft hoe Western blotting en immunocytochemie gecombineerd met remming van lysosomale enzymen kunnen worden gebruikt om de neerwaartse regulatie van ciliaire neurotrofe factor receptor-α (CNTFRa), die wordt overgebracht door de interactie tussen cytokine-achtige factor-1 (CLF-1 tonen ) en de endocytosereceptor sorLA.
Methodenartikel
SorLA en CLC: CLF-1-afhankelijke negatieve regulatie van CNTFRa zoals aangetoond door Western blotting, Remming van lysosomale enzymen en immunocytochemie
In dit artikel
Samenvatting
Samenvatting
De heterodimere cytokine cardiotrofine-achtige cytokine: cytokine-achtige Factor-1 (CLC: CLF-1) richt zich op de glycosylphosphatidylinositol (GPI) -anchored CNTFRa een trimere complex dat vervolgens rekruten glycoproteïne 130 / Leukemie Remmende Factor Receptor-β vormen (gp130 / LIFRB) voor signalering. Zowel CLC en CNTFRa nodig zijn voor signalering, maar tot nu toe CLF-1 is alleen bekend als een vermeende facilitator van CLC secretie. Er is echter onlangs aangetoond dat CLF-1 bevat drie bindingsplaatsen: één voor CLC; een voor CNTFRa (die kunnen assemblage van het trimere complex te bevorderen); en één voor de endocytosereceptor sorLA. De laatste locatie biedt een hoge affiniteit binding van CLF-1, CLC: CLF-1, en de trimere (CLC: CLF-1: CNTFRa) complex sorLA, en sorLA-exprimerende cellen de oplosbare liganden CLF-1 en CLC : CLF-1 worden snel opgepakt en geïnternaliseerd. In cellen die co-expressie CNTFRa en sorLA, CNTFRa bindt eerste CLC: CLF-1 te vormeneen membraangebonden trimere complex, maar het verbindt ook sorLA via de vrije sorLA bindingsplaats in CLF-1. Hierdoor CNTFRa, die geen mogelijkheid voor endocytose kan zelf wordt gerukt langs en geïnternaliseerd door de sorLA-gemedieerde endocytose van CLC: CLF-1.
Het huidige protocol beschrijft de experimentele procedures die worden gebruikt om aan te tonen i) de sorLA-gemedieerde en CLC: CLF-1-afhankelijke downregulatie van oppervlakte-membraan CNTFRa meningsuiting; ii) sorLA-gemedieerde endocytose en lysosomale targeting van CNTFRa; en iii) de verlaagde cellulaire respons op CLC: CLF-1-stimulatie na sorLA-gemedieerde downregulatie van CNTFRa.
Inleiding
De CLC en CLF-1 vormen de twee subeenheden van het heterodimere cytokine CLC: CLF-januari 1-3. Voor mobiele signaal inductie, CLC: CLF-1 de eerste doelstellingen van de CNTFRa, zijn primaire en GPI-verankerd receptor, een membraangebonden trimere complex te vormen. De CLC: CLF-1: CNTFRa complex vervolgens werft gp130 / LIFRB die bemiddelt transmembraan signalering via de Janus Kinase / Signal Transducers en Activators van transcriptie 3 (JAK / STAT3) route 4. Muizen waarin een van de drie subeenheden tonen eenzelfde fenotype en sterven binnen 24 uur na de geboorte als gevolg van een verminderd aantal gezichts- neuronen en onvoldoende zuigen 5-8. Bevindingen bij de mens ook onderstrepen de functionele samenhang van de drie subeenheden. Aldus menselijke mutaties (homozygoot of samengesteld) veroorzaakt disfunctioneren van CLC: CLF-1 of CNTFRa, resulteren alle in de zogenaamde zweten koude-geïnduceerde / Crisponi syndroom, een aandoening gekenmerkt door symptomen zoals impairode zuigen en slikken, diverse dysmorfie, temperatuur spikes, en paradoxaal en perfuseren zweten bij lage temperaturen 9-11.
In vitro, de combinatie van CLC en CNTFRa is zowel noodzakelijk als voldoende voor interactie met gp130 / LIFRB en de inductie van signalering in cellen 12. De rol van CLF-1 aan de andere kant is minder duidelijk. Het is niet direct betrokken bij signalering, en is lange tijd beschouwd als een bijlage die vooral dient om de cellulaire secretie van CLC 1 te vergemakkelijken. Echter, de recente bevindingen blijkt dat CLF-1 heeft extra en meer belangrijke functies impliceert zowel de signalering en de omzet van de CLC en CNTFRa. Het blijkt dus dat de CLF-1 bevat drie onafhankelijke bindingsplaatsen: een voor de bekende binding aan CLC; die directe binding aan het CNTFRa medieert; en een derde (hoge affiniteit) site voor interactie met de endocytosereceptor sorLA. Aangezien zowel CLC en CLF-1 lijkt & #160, te richten CNTFRa met een aanzienlijk lagere affiniteit dan de CLC: CLF-1 complex, is het denkbaar dat de CLF-1 (via de CNTFRa-bindingsplaats) bevordert de vereniging van CLC en CNTFRa en vergemakkelijkt daardoor 13 signalering.
CLF-1 interactie met sorLA, het belangrijkste probleem van de presentatie, speelt een heel andere rol. SorLA is één van de vijf type 1 receptoren die de Vps10p-domein receptorfamilie 14 vormen. Het wordt uitgedrukt in verschillende weefsels, maar met name in de hersenen en neuronale weefsels 15. Vergelijkbaar met de andere familieleden sorLA draagt een N-terminale ligand bindende Vps10p-domein, maar daarnaast omvat bovendien andere domein zoals ligandbindende elementen gevonden in leden van de low-density lipoprotein receptor familie 15. De cytoplasmatische staart samenwerkt met verschillende adapter eiwitten, bijvoorbeeld adapter eiwit-1 en -2 en sorLA vervoert efficiënte endocytosis en intracellulair transport sorteren en gebonden eiwitten 16-18. De Vps10p-domein een grote tien-bladed propeller β 19,20, die een aantal niet-gerelateerde liganden zoals CLF-1 (maar met name niet CLC) 13 bindt. De bindingsplaats in CLF-1 is toegankelijk, zelfs na complex formatie met CLC en CNTFRa wat betekent dat sorLA bindt niet alleen gratis CLF-1, maar ook CLC: CLF-1 en de trimere complex CLC: CLF-1: CNTFRa 13. SorLA brengt snelle endocytose van CLF-1 en CLC: CLF-1, maar deze zijn oplosbare eiwitten dat CNTFRa is bevestigd aan het oppervlak membraan door een GPI-anker. De vraag wordt dus als binding van CLC: CLF-1: CNTFRa laat sorLA alles te kunnen internaliseren en daardoor de oppervlakte-membraan expressie van CNTFRa (en de daaropvolgende cellulaire gevoeligheid voor CLC: CLF-1 signaal inductie) te wijzigen en / of de omzet van CNTFRa.
De experimenten in de onderhavige beschrevenrapport werden ontworpen om de volgende vragen te verduidelijken:
Heeft sorLA bemiddelen CLC: CLF-1-afhankelijke downregulatie van oppervlakte-membraan CNTFRa? Om dit te verduidelijken, werd in eerste instantie geprobeerd om de omzet van CNTFRa bepalen (in de afwezigheid en aanwezigheid van sorLA) door middel van metabole etikettering en pulse-chase experimenten zoals beschreven in 21. Pogingen labelen CNTFRa een mengsel van [S 35] cysteine en [S 35] methionine vertoonde slechte opname van radioactiviteit. Dit suggereert een zeer geringe mate van nieuwe synthese, die naar alle waarschijnlijkheid niet compenseren plotseling en aanzienlijk verlies van receptoren zou zijn. Om te bepalen of CNTFRa werd neerwaarts gereguleerd wanneer verbonden via CLC: CLF-1 tot sorLA, werd daarom besloten gewoon te meten (met behulp van Western blotting) de totale cellulaire pool van CNTFRa vóór en na blootstelling aan CLC: CLF-1 - en de resultaten te vergelijken in cellen die al dan niet getransfecteerd metsorLA.
Heeft sorLA richten CNTFRa naar lysosomen? Om deze vraag, de lokalisatie van CNTFRa beantwoorden - geïnternaliseerd via de CLC: CLF-1-gemedieerde binding aan sorLA - werd onderzocht met behulp van immunocytochemie, en labeling met antilichamen gericht CNTFRa en de late-endosome / lysosoom marker Lysosomale-geassocieerde membraaneiwit 1 (LAMP-1). Het experiment werd uitgevoerd op cellen en behandeld als onbehandeld met remmers van lysosomale enzymen. Het idee was natuurlijk dat als CNTFRa werd afgebroken in lysosomen, cellen behandeld met enzym-remmers zou CNTFRa-kleuring zich ophopen in LAMP-1 positieve blaasjes te presenteren, terwijl onbehandelde cellen weinig of geen kleuring voor CNTFRa zou laten zien.
Heeft CNTFRa downregulatie lager de cellulaire respons op CLC: CLF-1 stimulatie? Het trimere complex van CLC, CLF-1 en CNTFRa signalen via de gp130 / LIFRB heterodimeer met de JAK / STAT3pathway. Derhalve het vermogen van cellen om te reageren op CLC: CLF-1 signalering bij downregulatie van CNTFRa werd onderzocht door Western blot detectie en kwantificering van fosfo-STAT3 (pSTAT3) / totaal STAT3 niveau sorLA transfectanten.
Protocol
1. Western Blotting van CNTFRa Lysaten
- Versneld full-length sorLA en Myc-tagged CNTFRa constructen in humane embryonische nier 293 (HEK293) cellen middels pcDNA3.1 / Zeo (-) en pcDNA3.1 / Hyg (-), respectievelijk. Transfecteren de HEK293 cellen met de constructen met een commerciële transfectiereagens volgens merk gebruikt protocol. Selecteer stabiele klonen in medium dat 150 ug / ml Zeocin en / of 500 gg / ml hygromycine B 13 Gold.
- Zaad evenveel HEK293 transfectanten die ofwel CNTFRa-Myc of co-expressie CNTFRa-Myc / sorLA twee 4-well platen zoals getoond in figuur 1. Cultuur van de cellen in Dulbecco Modified Eagle's Medium (DMEM) aangevuld met 10% foetaal runderserum (FBS), 100 U / ml penicilline en 100 ug / ml streptomycine (volledig medium) in een 5% kooldioxide incubator bij 37 ° C.
- Wacht tot de cellen 50-80% confluent.
- Verwijder het medium uit deputten, was eenmaal met Dulbecco fosfaat gebufferde zoutoplossing (DPBS) en voeg vers volledig medium met of zonder (controle) 10 nM CLC: CLF-1 zoals in figuur 1. Incubeer de cellen bij 37 ° C.
- Na 0 en 5 uur incubatie herstellen het medium en het op 4 ° C in 1,5 ml buizen. Voeg dan 1% Triton X-100-lysisbuffer (20 mM Tris-HCl, 10 mM EDTA, pH 8,0) aangevuld met een proteinase inhibitor cocktail aan elk putje (1 min, 4 ° C). Vervolgens brengen de cellysaten aan 1,5 ml buizen (4 ° C).
- Draai de buizen met het medium en cellysaat (3000 x g, 3 min, 4 ° C) en de supernatanten brengen naar 1,5 ml buisjes (4 ° C). Gooi de pellet. Overdracht 5 pi van elke cel lysaat supernatant nieuwe 1,5 ml buizen - gebruiken om het eiwitgehalte later gemeten (stap 1,7). Onmiddellijk voeg reducerende LDS monsterbuffer alle supernatanten en vortex de monsters.
- Gebruik de 5 pi porties aan de prot metenein gehalte in het cellysaat supernatanten onder toepassing van een commerciële eiwit assay volgens het protocol van de fabrikant.
- Verwarm de monsters bij 95 ° C gedurende 5 min.
- Betreft een gelijke hoeveelheid eiwit uit elk monster aan reducerende SDS-PAGE 13 en Western blotting 13 en breng de inhoud van sorLA, β-actine en CNTFRa-Myc in het medium en in de cellysaten met behulp konijnen anti-sorLA 16 (5 gg / ml), muis anti-β-actine (0,4 ug / ml), muis anti-Myc (1 ug / ml) antilichamen en geschikte HRP-gebonden secundaire antilichamen (1: 2000).
- Kwantificeren van de bands door densitometrie volgens het protocol van de fabrikant.
2. Immunocytochemie in combinatie met een mogelijk lysosomale remmers
- Zaad HEK293 cellen die stabiel getransfecteerd met CNTFRa-Myc / sorLA op dekglaasjes in een 4-wells plaat zoals weergegeven in figuur 2. Cultuur van de cellen in volledig medium als hierboven.
- Wacht tot cel samenloop is 20-40%.
- Verwijder het medium uit de putjes en voeg volledig medium met of zonder 50 ug / ml leupeptine en pepstatine A (leu / PEP) (remt lysosomale hydrolasen) aan de cellen zoals aangegeven in figuur 2. Incubeer de cellen bij 37 ° C. Het medium moet worden vervangen elke 6 uur gedurende de volgende 24 uur incubatie.
- Na 24 uur incubatie opnieuw vervangen medium (met of zonder leu / pep) en deze keer voeg 10 nM CLC: CLF-1. Incubeer de cellen bij 37 ° C gedurende 5 uur.
- Was de cellen eenmaal in PBS en bevestig ze in 4% paraformaldehyde, pH 7 gedurende 15 minuten bij kamertemperatuur.
Let op: Paraformaldehyde is zeer giftig, contact met de huid, ogen en slijmvliezen vermijden. Handschoenen en een veiligheidsbril te worden gedragen en oplossingen gemaakt in een zuurkast. - Was de cellen eenmaal in PBS en doorlaatbaar de cellen gedurende 5 minuten bij kamertemperatuur in saponine verdund in PBS (0,5% saponine).
- Verdun geit anti-CNTFRa (1 ug / ml) (met nameniet de muis anti-Myc gebruikt voor Western blotting) en muis anti-LAMP-1 (15 ug / ml) antilichamen in 0,5% saponine en incubeer de cellen met de antilichamen gedurende 2 uur bij kamertemperatuur.
- Was de cellen 4x (5 min) in 0,5% saponine en incubeer de cellen met ezel anti-geit Alexa 488- en ezel anti-muis Alexa 568-geconjugeerde secundaire antilichamen (6 ug / ml) gedurende 2 uur bij kamertemperatuur.
- Was de cellen 4x (5 min) in 0,5% saponine, tweemaal in gedemineraliseerd water (1 min), en monteer de dekglaasjes op microscoopglaasjes middels fixeermiddelen.
- Analyseer het antilichaam-kleuring van de cellen met confocale microscopie met een laser-scanning confocale microscoop met een 63X-C apochromaat water immersie objectief, NA 1,2.
3. Western blot-detectie van het niveau pSTAT3
- Zaad HEK293-cellen sorLA in 4 putjes (waarin endogene niveaus van expressie CNTFRa) zoals getoond in figuur 3. Cultuur van de cellen in volledig medium als hierboven.
- Wacht tot decellen 50-80% confluent.
- Verwijder het medium uit de putjes, na wassen in PBS en voeg vers volledig medium met of zonder 10 nM CLC: CLF-1 aan de cellen, zoals aangegeven in figuur 3. Incubeer de cellen bij 37 ° C gedurende 5 uur.
- Verwijder het medium, was de cellen tweemaal in niet aangevulde DMEM (leeg medium, zonder FBS en antibiotica) en reincubate de cellen gedurende 90 min (37 ° C) in blanco medium.
- Nogmaals, verwijdert het medium door vers medium met lege of zonder 5 nM CLC: CLF-1 (tot STAT3 fosforylatie leiden) zoals aangegeven in figuur 3. Incubeer gedurende 15 minuten bij 37 ° C.
- Verwijder snel het medium en lyseren de cellen (1 min, 4 ° C) door toevoeging van 1% Triton X-100-lysisbuffer (20 mM Tris-HCl, 10 mM EDTA, pH 8,0) aangevuld met een proteinase inhibitor cocktail en een fosfataseremmer cocktail aan elk putje. Vervolgens brengen de cellysaten aan 1,5 ml buizen (4 ° C).
- Overdracht 5 pi of elk supernatant om nieuwe 1,5 ml pijpen - ze gebruiken om het eiwitgehalte later te meten (stap 3.8). Onmiddellijk voeg reducerende LDS monsterbuffer alle supernatanten en vortex de monsters.
- Meet het eiwitgehalte van de 5 pi aliquots met een commerciële eiwit assay volgens het protocol van de fabrikant.
- Ultrasone trillingen elk monster bij kamertemperatuur totdat ze niet meer viskeuze (ca. 1 min) en daarna verhit ze op 95 ° C gedurende 5 min.
- Betreft een gelijke hoeveelheid eiwit uit elk monster aan SDS-PAGE 13 en Western blotting 13 en breng de inhoud van pSTAT3 en totale STAT3 in de cellysaten met behulp konijnen anti-pSTAT3 (1: 2000) en muis anti-STAT3 (1: 1000 ) antilichamen en de geschikte HRP gekoppelde muis en konijn secundaire antilichamen (1: 2000).
- Kwantificeren van de bands door densitometrie volgens het protocol van de fabrikant.
Resultaten
Figuur 1 toont een schematische voorstelling van de mobiele zaaien en CLC: CLF-1 incubatie in protocol 1. Figuur 2 toont een schematische voorstelling van de mobiele zaaien en leu / pep en CLC: CLF-1 incubatie in protocol 2. Figuur 3 toont een schematische voorstelling van de mobiele zaaien en CLC: CLF-1 incubatie- en stimulatie protocol 3. Figuur 4 toont de sorLA-gemedieerde CLC: CLF-1-afhankelijke downregulatie van CNTFRa. Figuur 5 toont de sorLA-gemedieerde endocytose en lysosomale targeting van CNTFRa. Figuur 6 toont de lagere respons op CLC: CLF-1 stimulatie na CNTFRa downregulatie.
Merk op dat banden betekent CNTFRa-Myc vergelijkbare dichtheid bij tijdstip nul, terwijl downregulatie van CNTFRa-Myc blijkt uit de zwakkere band in sorLA transfectanten after 5 h (figuur 4). Figuur 5 laat zien dat CNTFRa-Myc heeft opgelopen in LAMP-1 positieve blaasjes van leu / pep behandelde cellen. Daarentegen is geen accumulatie van CNTFRa-Myc gezien in cellen die niet blootgesteld aan leu / PEP. Dit toont aan dat CNTFRa-Myc wordt gesorteerd naar lysosomen en afgebroken. Zoals blijkt uit figuur 6, is het niveau van pSTAT3 significant verminderd bij pre-gestimuleerde cellen in vergelijking met het niveau in cellen die niet is blootgesteld aan CLC: CLF-1. Dit is in overeenstemming met de waargenomen sorLA-gemedieerde downregulatie van CNTFRa in de pre-gestimuleerde cellen (figuur 4).
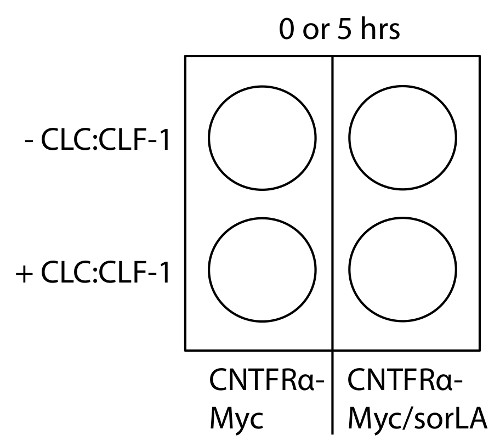
Figuur 1: Schematische weergave van de cel-zaaien en CLC: CLF-1 incubatie in protocol 1. Seed HEK293-CNTFRa-Myc en HEK293-CNTFRa-Myc / sorLA cellen in twee 4-putjes (0 en 5 h) en incubeer cellen met CLC: CLF-1 aangegeven. Klik hier om een grotere versie van deze figuur te bekijken.
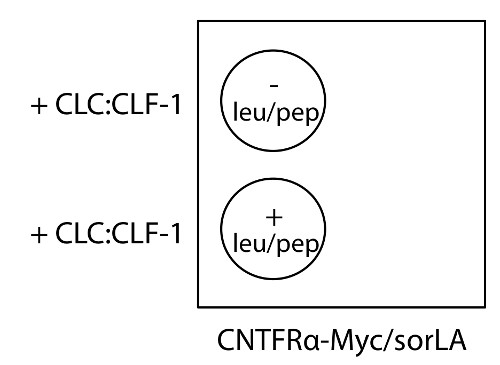
Figuur 2: Schematische weergave van intercellulaire zaaien en leu / pep en CLC: CLF-1 incubatie in protocol 2. Zaad HEK293-CNTFRa-Myc / sorLA cellen op dekglaasjes in een 4-wells plaat en incubeer cellen met of zonder leu / pep en CLC: CLF-1 zoals aangegeven. Klik hier om een grotere versie van deze figuur te bekijken.
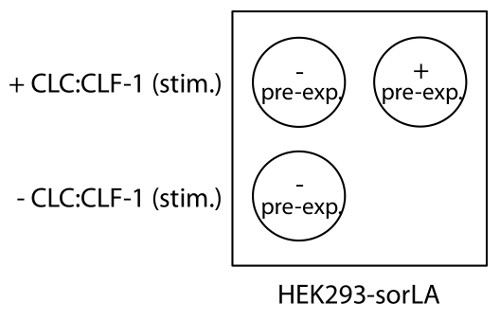
Figuur 3: Schematische weergave van cell-zaaien en CLC: CLF incubatie en stimulatie in protocol 3. Seed HEK293-sorLA cellen in een 4-wells plaat en incubeer cellen met of zonder CLC: (. pre-exp) CLF-1 aan de downregulate CNTFRa gevolgd door CLC: CLF-1 stimulatie (. stim) naar STAT3 fosforylatie te starten zoals aangegeven. Klik hier om een grotere versie van deze figuur te bekijken.
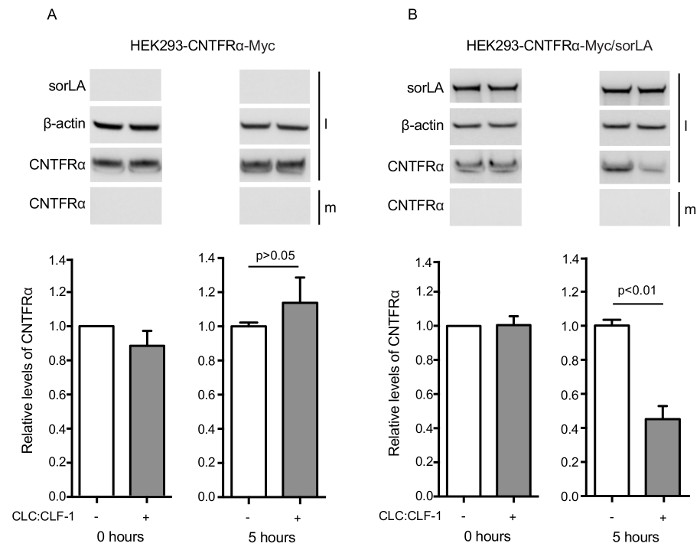
Figuur 4: De resultaten laten zien dat SorLA bemiddelt CLC: CLF-1-afhankelijke downregulatie van CNTFRa. (A) HEK293-CNTFRa-Myc en (B) HEK293-CNTFRa-Myc / sorLA cellen werden geïncubeerd in de afwezigheid (witte kolommen) of aanwezigheid (grijze kolommen) van 10 nM CLC: CLF-1. Na 0 en5 h, werd de incubatie gestopt en de inhoud van CNTFRa-Myc in het medium (m) en de cellysaten (l) werd gedetecteerd door Western blotting en gekwantificeerd met densitometrie. De bovenpanelen vertonen Western blot resultaten van representatieve experimenten en de onderste panelen tonen de waargenomen hoeveelheden CNTFRa-Myc in de cellysaten. De levels worden getoond ten opzichte van de CNTFRa-Myc niveau in de enkele en dubbele transfectanten bij 0 h. Elke kolom vertegenwoordigt gemiddelde ± SEM (n = 3). p-waarden berekend met behulp van t-test. Gereproduceerd na de oorspronkelijke figuur 13. Klik hier om een grotere versie van deze figuur te bekijken.
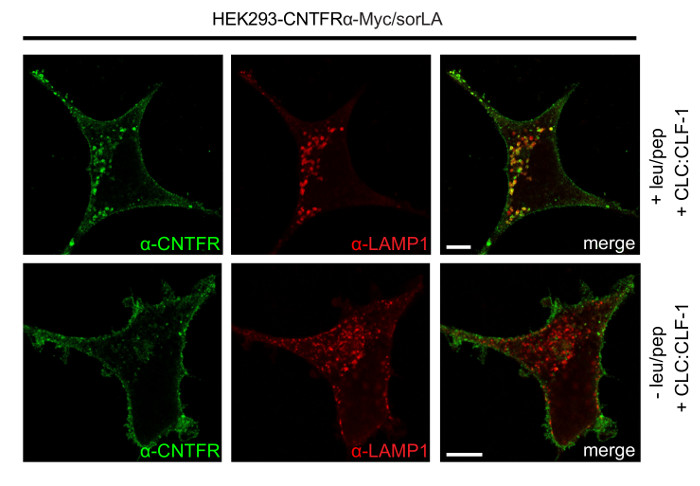
Figuur 5:De resultaten laten zien dat SorLA bemiddelt endocytose en lysosomale targeting van CNTFRa. HEK293-CNTFRa-Myc / sorLA cellen werden behandeld met of zonder leu / pep, geïncubeerd met 10 nM CLC: CLF-1 gedurende 5 uur, gefixeerd en tenslotte gekleurd met anti-CNTFRa en anti-LAMP-1 antilichamen zoals beschreven in protocol 2. Schaal bars: 5 micrometer. Gereproduceerd na de oorspronkelijke figuur 13. Klik hier om een grotere versie van deze figuur te bekijken.
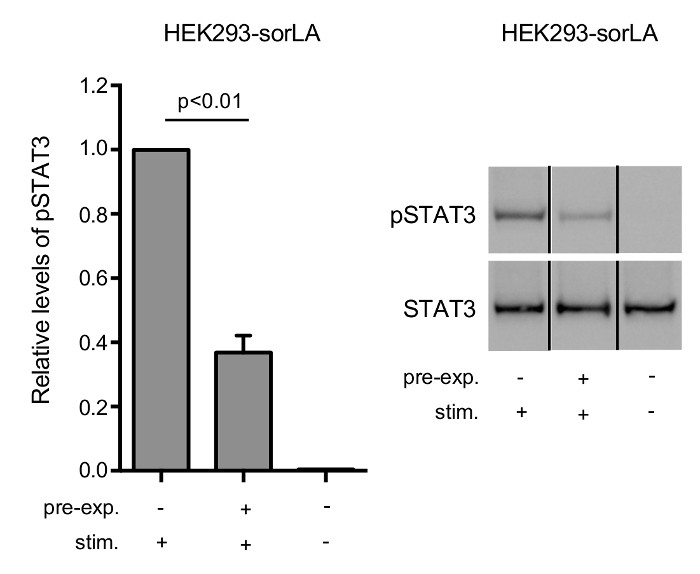
Figuur 6: SorLA gemedieerde downregulatie van CNTFRa gepaard gaat met een verlaagde cellulaire reactie op CLC: CLF-1 stimulatie.
HEK293-sorLA cellen werden vooraf geïncubeerd in de afwezigheid of aanwezigheid van 10 nM CLC: (. Pre-exp) CLF-1 gedurende 5 uur uitgehongerd in blank medium voor 90 min, en gestimuleerd met 5 nM CLC: (. Stim) CLF-1 gedurende 15 min. (Links) De kolommen tonen de relatieve niveaus van pSTAT3 in de cellen. Elke kolom vertegenwoordigt gemiddelde ± SEM (n = 3) ten opzichte van het niveau pSTAT3 cellen gepreïncubeerd in afwezigheid van CLC: CLF-1 maar gestimuleerd met CLC: CLF-1. berekend met t-test p-waarde. (Rechts) De Western blot toont de respons van pSTAT3 en STAT3 verkregen in een representatief experiment. Gereproduceerd na de oorspronkelijke figuur 13. Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
De hier beschreven protocol kan specifiek worden gebruikt om de sorLA-gemedieerde CLC tonen: CLF-1-afhankelijke downregulatie en lysosomale targeting van CNTFRa, alsmede de bijbehorende verzwakte reactie op CLC: CLF-1 stimulatie.
De HEK293 cellijn is zeer geschikt voor dit protocol, aangezien ze slechts een geringe endogene expressie van CNTFRa en sorLA, zijn gemakkelijk te transfecteren, express gp130 / LIFRB, en hebben een grote cel lichaam, dat geschikt is voor immunocytochemie. In theorie elke cellijn met gelijke eigenschappen moeten zo goed werkt.
Het protocol heeft twee kritische stappen. De eerste betreft stap 2,3, waarbij de leu / pep medium worden vervangen ongeveer elke 6 uur gedurende 24 uur. Doet u dit niet kan leiden tot actieve lysosomale enzymen en minder of geen detecteerbare ophoping van eiwitten in de lysosomen. De tweede belangrijke stap (3.4) heeft betrekking op het wassen na pre-incubatie met CLC: CLF-1. Het is imlangrijk om eventuele niet-gebonden ligand te verwijderen, en om de cellen tijd om te herstellen (het vermijden van verdere stimulatie) in unsupplemented DMEM (blank gemiddeld). Dit zal zorgen voor een laag achtergrondniveau van pSTAT3 tijdens de daaropvolgende re-stimulatie met CLC: CLF-1 (stap 3.5).
Met name figuur 6 toont aan dat de cellulaire respons (pSTAT3) daalt parallel met de sorLA-gemedieerde downregulatie van CNTFRa. Er zij evenwel op gewezen, dat hoewel een verminderde respons in overeenstemming met (en bij verwachting) een verlaging van de CNTFRa pool, bewijst dit niet dat de lage CNTFRa expressie alleen al de verminderde cellulaire respons. Aldus verandert - verkregen uit pre-stimulatie of transfectie - kunnen in een van de functionele elementen van de signaleringsroute stroomopwaarts pSTAT3 hebben bijgedragen aan de veranderde respons.
Het basisconcept van het protocol is niet beperkt tot deze bijzonLAR-receptor-systeem. (. Dwz een cellijn, andere antilichamen, andere liganden, etc.) door het modificeren van het protocol kan worden gebruikt om de ligand-geïnduceerde downregulatie van andere receptoren en bepalen - ongeacht sorLA's betrokkenheid. Er moet echter worden opgemerkt dat de analyse van receptor-downregulatie door Western blotting vooral geschikt voor Receptoren bijvoorbeeld GPI-verankerde receptoren, die een trage omzet en een lage nieuwe synthese in niet-gestimuleerde cellen vertonen. Dus in receptoren die een hoge mate van nieuwe synthese-ligand geïnduceerde downregulatie kan worden gecompenseerd door synthese van nieuwe receptoren. Onder deze omstandigheden kan de downregulatie van de receptor zwembad in plaats worden bepaald door middel van metabolisch merken en pulse-chase experimenten beschreven 21. Alternatief gejodeerde antilichamen (bij voorkeur Fc-fragmenten) die niet interfereren met receptor binding kan worden gebruikt om "tag" het ectodomein van het receptof, en de verwachte verlaagde expressie kan vervolgens worden bepaald door radioactieve telling van celpellet en medium.
Om logistieke redenen getransfecteerde we cellen met een construct die een CNTFRa Myc-tag, en in dit protocol een muis anti-Myc antilichaam werd gebruikt voor Western blot-detectie van de receptor. Daarentegen werd een geit anti-CNTFRa antilichaam gebruikt voor immunocytochemie en dubbele labeling als LAMP-1 werd gedetecteerd door een muizenantilichaam - en uiteraard het gebruik van twee primaire muizenantilichamen zou leiden tot niet-specifieke (overlappend) kleuring met secundaire antilichamen. Merk op dat aangezien de geit anti-CNTFRa werkt ook in Western blotting (niet getoond), het protocol kan gemakkelijk worden aangepast en toegepast op cellen die met niet-gecodeerde CNTFRa.
Tenslotte is onlangs aangetoond dat ook de endocytische receptor bindt sortilin CLC: CLF-1 met hoge affiniteit 22. Zo is het denkbaar dat sortilin, zoalssorLA, interconnects naar CLC: CNTFRa via CLF-1 en is in staat om endocytose en lysosomale targeting van CNTFRa ook bemiddelen. Met behulp van sortilin in plaats van sorLA kan het onderhavige protocol worden gebruikt om deze vraag te verduidelijken.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
De auteurs hebben geen erkenningen.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Zeocin | InvivoGen | ant-zn-1 | |
| Hygromycin B Gold | InvivoGen | ant-hg-1 | |
| FuGENE 6 Transfection Reagent | Roche | 11 815 091 001 | |
| 4-well plates (Nunclon Delta Surface) | Thermo Scientific | 176740 | |
| Safe-Lock tubes | Eppendorf | 0030 120.086 | |
| Dulbecco Modified Eagle´s Medium (DMEM) | Lonza | BE12-604F/U1 | |
| Fetal Bovine Serum (FBS) | Thermo Scientific | 10270106 | |
| Penicillin/Streptomycin | Thermo Scientific | 15140122 | |
| Dulbecco Phosphate Buffered Saline (DPBS) | HyClone | SH30028.02 | |
| CLC:CLF-1 | R&D Systems | 1151-CL/CF | |
| Mouse anti-LAMP-1 | DSHP | H4A3 | |
| Rabbit anti-sorLA | Reference 16 | ||
| Mouse anti-b-actin | Sigma | A2228 | |
| Mouse anti-Myc | Genscript | A00704 | |
| Goat anti-CNTFRa | R&D Systems | AF-303 | |
| Rabbit anti-pSTAT3 | Cell signaling Technology | 9145s | |
| Mouse anti-STAT3 | Cell signaling Technology | 9139s | |
| Anti-mouse HRP-linked antibody | Cell signaling Technology | 7076s | |
| Anti-rabbit HRP-linked antibody | Cell signaling Technology | 7074s | |
| Anti-goat HRP-linked antibody | Dako | P0160 | |
| Donkey anti-goat secondary antibody, Alexa Fluor 488 conjugate | Invitrogen | A11055 | |
| Donkey anti-mouse secondary antibody, Alexa Fluor 568 conjugate | Invitrogen | A10037 | |
| Leupeptin | Sigma | L8511-5MG | |
| Pepstatin A | Sigma | P4265-5MG | |
| Triton X-100 | AppliChem | A1388 | |
| Tris-HCl | Merck | 1,082,191,000 | |
| EDTA:Titriplex III | Merck | 1,084,180,250 | |
| cOmplete mini EDTA-free | Roche | 11836170001 | |
| PhosSTOP | Roche | 04 906 837 001 | |
| LDS sample Buffer (4x) | Novex | NP0007 | |
| Bio-Rad Protein Assay | Bio-Rad | 500-0006 | |
| 4% paraformaldehyde (PFA) | VWR | 97,135,000 | |
| Saponin | Sigma | S7900-100G | |
| Mounting Media | Dako | S3023 |
Referenties
- Elson, G. C., et al. CLF associates with CLC to form a functional heteromeric ligand for the CNTF receptor complex. Nat Neurosci. 3 (9), 867-872 (2000).
- Senaldi, G., et al. Novel neurotrophin-1/B cell-stimulating factor-3: a cytokine of the IL-6 family. Proc Natl Acad Sci U S A. 96 (20), 11458-11463 (1999).
- Elson, G. C., et al. Cytokine-like factor-1, a novel soluble protein, shares homology with members of the cytokine type I receptor family. J Immunol. 161 (3), 1371-1379 (1998).
- Lelievre, E., et al. Signaling pathways recruited by the cardiotrophin-like cytokine/cytokine-like factor-1 composite cytokine: specific requirement of the membrane-bound form of ciliary neurotrophic factor receptor alpha component. J Biol Chem. 276 (25), 22476-22484 (2001).
- Zou, X., et al. Neonatal Death in Mice Lacking Cardiotrophin-Like Cytokine (CLC) is Associated with Multifocal Neuronal Hypoplasia. Vet Pathol. 46 (3), 514-519 (2008).
- Forger, N. G., et al. Cardiotrophin-like cytokine/cytokine-like factor 1 is an essential trophic factor for lumbar and facial motoneurons in vivo. J Neurosci. 23 (26), 8854-8858 (2003).
- Alexander, W. S., et al. Suckling defect in mice lacking the soluble haemopoietin receptor NR6. Curr Biol. 9 (11), 605-608 (1999).
- DeChiara, T. M., et al. Mice lacking the CNTF receptor, unlike mice lacking CNTF, exhibit profound motor neuron deficits at birth. Cell. 83 (2), 313-322 (1995).
- Crisponi, L., et al. Crisponi syndrome is caused by mutations in the CRLF1 gene and is allelic to cold-induced sweating syndrome type 1. Am J Hum Genet. 80 (5), 971-981 (2007).
- Crisponi, G. Autosomal recessive disorder with muscle contractions resembling neonatal tetanus, characteristic face, camptodactyly, hyperthermia, and sudden death: a new syndrome. Am J Med Genet. 62 (4), 365-371 (1996).
- Sohar, E., Shoenfeld, Y., Udassin, R., Magazanik, A., Revach, M. Cold-induced profuse sweating on back and chest. A new genetic entity. Lancet. 2 (8099), 1073-1074 (1978).
- Guillet, C., et al. Functionally active fusion protein of the novel composite cytokine CLC/soluble CNTF receptor. Eur J Biochem. 269 (7), 1932-1941 (2002).
- Larsen, J. V., et al. Cytokine-Like Factor 1, an Essential Facilitator of Cardiotrophin-Like Cytokine:Ciliary Neurotrophic Factor Receptor alpha Signaling and sorLA-Mediated Turnover. Mol Cell Biol. 36 (8), 1272-1286 (2016).
- Willnow, T. E., Petersen, C. M., Nykjaer, A. VPS10P-domain receptors - regulators of neuronal viability and function. Nat Rev Neurosci. 9 (12), 899-909 (2008).
- Jacobsen, L., et al. Molecular characterization of a novel human hybrid-type receptor that binds the alpha2-macroglobulin receptor-associated protein. J Biol Chem. 271 (49), 31379-31383 (1996).
- Nielsen, M. S., et al. Sorting by the cytoplasmic domain of the amyloid precursor protein binding receptor SorLA. Mol Cell Biol. 27 (19), 6842-6851 (2007).
- Jacobsen, L., et al. The sorLA cytoplasmic domain interacts with GGA1 and -2 and defines minimum requirements for GGA binding. FEBS Lett. 511 (1-3), 155-158 (2002).
- Klinger, S. C., et al. SorLA regulates the activity of lipoprotein lipase by intracellular trafficking. J Cell Sci. 124 (7), 1095-1105 (2011).
- Kitago, Y., et al. Structural basis for amyloidogenic peptide recognition by sorLA. Nat Struct Mol Biol. 22 (3), 199-206 (2015).
- Quistgaard, E. M., et al. Ligands bind to Sortilin in the tunnel of a ten-bladed beta-propeller domain. Nat Struct Mol Biol. 16 (1), 96-98 (2009).
- Larsen, J. V., et al. Human sorCS1 binds sortilin and hampers its cellular functions. Biochem J. 457 (2), 277-288 (2014).
- Larsen, J. V., et al. Sortilin facilitates signaling of ciliary neurotrophic factor and related helical type 1 cytokines targeting the gp130/leukemia inhibitory factor receptor beta heterodimer. Mol Cell Biol. 30 (17), 4175-4187 (2010).
Herprints en machtigingen
