Live confocale imaging biedt biologen met een krachtig hulpmiddel om de ontwikkeling te bestuderen. Hier presenteren we een gedetailleerd protocol voor de live confocale beeldvorming van de ontwikkeling van Arabidopsis bloemen.
Methodenartikel
Live confocale Imaging van de ontwikkelingslanden Arabidopsis Flowers
In dit artikel
Samenvatting
Samenvatting
De studie van de groei en ontwikkeling van planten is al lang vertrouwd op experimentele technieken met behulp van dode, gefixeerde weefsels en gebrek aan goede cellulaire resolutie. Recente ontwikkelingen in de confocale microscopie, gecombineerd met de ontwikkeling van een groot aantal fluoroforen, hebben deze problemen te overwinnen en opende de mogelijkheid om de expressie van verschillende genen tegelijk te bestuderen, met een goede cellulair resolutie, in levende monsters. Live confocale imaging biedt plantenbiologen met een krachtig hulpmiddel om de ontwikkeling te bestuderen, en is uitgebreid gebruikt om wortelgroei en de vorming van laterale organen op de flanken van de shoot topmeristeem bestuderen. Het is echter niet op grote schaal toegepast op de studie van de ontwikkeling van de bloem, voor een deel te wijten aan de uitdagingen die specifiek zijn voor bloemen, zoals de kelkbladeren die groeien over de bloem meristeem beeldvorming, en filteren de fluorescentie van onderliggende weefsels zijn. Hier presenteren we een gedetailleerd protocol om live confocale beeldvorming uit te voeren op leven, het ontwikkelen van Arabidopsis bloemknoppen, met behulp van een rechtopstaande of een omgekeerde microscoop.
Inleiding
Het grootste deel van de plant lichaam vormt post-embryonaal uit groepen van stamcellen gelegen aan of nabij de tip - of apicale meristemen - van de scheuten en wortels. Alle bovengrondse structuren van de volwassen planten afkomstig van de shoot apicale meristeem (SAM), die continu produceert laterale organen op de flanken: verlaat tijdens de vegetatieve fase en bloem meristemen (FMS) na het overgangen naar de reproductieve fase. FMs beurt ontwikkelen tot bloemen. Terwijl de SAM Arabidopsis produceert laterale organen één tegelijk, in een iteratieve, spiraalpatroon, FMs produceren vier soorten bloemorganen binnen vier kransen, in gedeeltelijk synchroon met meerdere ontwikkelingsprogramma's tegelijk ontrafelen. De genetische netwerken die ten grondslag liggen aan de specificatie van de identiteit van de verschillende bloemen organen zijn gedeeltelijk ontcijferd (voor overzichten, zie referenties 1, 2), maar veel aspecten van de bloem Development, zoals florale organen positionering en het bepalen van grenzen tussen kransen, blijven slecht begrepen.
Vroege moleculair genetische studies van plantenontwikkeling veelal gebruikt technieken zoals in situ hybridisatie en GUS reporters om genexpressie te analyseren. Hoewel deze methoden een schat aan informatie hebben verstrekt en in hoge mate bijgedragen aan ons begrip van de groei van planten en de ontwikkeling van de bloem, zijn er belangrijke beperkingen: ze missen een goede cellulaire resolutie, houden geen rekening met de gemakkelijke waarneming van de expressie patroon van meerdere genen in dezelfde monsters, en belangrijker, kan alleen worden toegepast op dood, gefixeerde weefsels. Recente ontwikkelingen in de confocale microscopie zijn deze beperkingen te overwinnen, en bieden ontwikkelingsstoornissen biologen met een krachtig hulpmiddel om de processen te onderzoeken onderliggende plantmorfogenese. In het bijzonder, confocale microscopie maakt het mogelijk voor de observatie van levende weefsels en organen gedurende hun vorming, dat is critical om volledig te begrijpen een typisch dynamisch proces, zoals de ontwikkeling.
Live confocale beeldvorming is uitgebreid gebruikt om de antenne groei van planten en de productie van laterale organen door SAM analyseren (bijv referenties 3, 4, 5, 6), maar met uitzondering van enkele gevallen (bijvoorbeeld referenties 7, 8, 9, 10), het is niet op grote schaal toegepast op de studie van de ontwikkeling van de bloem. Protocollen voor live-confocale beeldvorming van de SAM beschikbaar is (bv referenties 11, 12), en een goede basis voor de voorstelling van de ontwikkeling van bloemknoppen dat de SAM omringen. Echter, imaging bloemknoppen betreft de specifieke uitdagingen: bijvoorbeeld,bloemknoppen snel groter zijn dan SAM worden en in stadium 4, kelkbladen start voor de FM (stappen zoals beschreven in referentie 13), en dimmen van de fluorescentie van onderliggende weefsels (figuur 2A). Hier bieden we een gedetailleerd protocol waarin wordt uitgelegd hoe om live confocale beeldvorming uit te voeren op de ontwikkeling van Arabidopsis bloemknoppen met behulp van een rechtopstaande of een omgekeerde microscoop en een water dompelen lens. We hebben eerder gepubliceerde dit protocol in referentie 14.
Protocol
1. Media and Dishes Voorbereiding
- Bereid ontleden schotels vult ronde plastic doosjes (circa 6 cm breed, 2 cm diep) tot 0,5 cm met 2% agarose.
- Bereid beeldvorming gerechten.
- Voor een rechtopstaande confocale microscoop, vul rechthoekige kunststof scharnierende dozen (ongeveer 7 cm lang, 4,5 cm breed, 3 cm diep) tot 0,5 cm met beeldmedium (zie paragraaf 1.3, "Imaging medium" Figuur 1F).
- Voor een omgekeerde confocale microscoop: vul kleine petrischaal (ongeveer 3,5 cm breed, 1 cm diep) exact op de rand met beeldmedium (zie paragraaf 1.3, "Imaging medium" Figuur 1G).
- Bereid imaging medium.
- Voor enkel punt beeldvorming gebruik 1% agarose.
- Voor time-lapse experimenten gebruikt apex groeimedium (0,5x Murashige en Skoog basaal zoutmengsel zonder vitaminen, 1% sucrose, 0,8% agarose, pH 5,8 met kalium hydroxide oplossing, aangevuld met vitamine [0.01% myo-inositol, 0,0001% nicotinezuur, 0,0001% pyridoxine hydrochloride, 0,001% thiamine hydrochloride, 0,0002% glycine] en cytokinine [500 nM N6-benzyladenine]) 15.
2. Plant Groei
- Zaaien gesteriliseerde zaden op MS platen (0,5 of 1 x Murashige en Skoog basaal zoutmengsel zonder vitaminen, 0,8% agar, pH 5,8 met kaliumhydroxide-oplossing) met geschikte keuze. Plaats platen staan (16 uur licht) of continu dag 16-22 ° C omstandigheden gedurende twee weken.
- Zaailingen op grond met voldoende afstand om robuuste ontwikkeling mogelijk te maken. Plaats planten in korte dag, 16-22 ° C voorwaarden voor drie weken.
LET OP: Het kweken van planten in de lange dag of continue dag omstandigheden direct na het uitplanten leidt tot voortijdige bloei en bloeiwijzen die minder krachtig, en veel moeilijker te ontleden zijn. Op dezelfde manier, waardoor planten onder korte dag conditionen gedurende meer dan drie weken resulteert in daglengte onafhankelijk bloei en bloeiwijzen minder krachtig zijn. - Transfer planten om lange dag (16 uur licht) of continue dag, 16-22 ° C omstandigheden totdat ze bloem. Shoot toppen zijn het gemakkelijkst te ontleden wanneer de bloeiwijze is 2-10 cm lang.
3. Ontleding van het schieten Apex
- Optioneel: Met behulp van een fijne slijpsteen en een daling van lichte olie, verscherpen tang onder de stereomicroscoop om ze blade-achtig te maken, geen punt-achtig.
- Verwijder siliques, ouder bloemknoppen en secundaire bloeiwijzen uit de primaire bloeiwijze door op de onderkant van de steeltjes met de tang totdat ze breken. Verwijder zoveel bloemen als mogelijk zonder vergroting (figuur 1, vergelijk A en B).
- Behulp van een tang, doordring een verticaal gat in het agarose van een dissectie schotel, onderbroken laatste 0,5 cm van de bloeiwijze en plak deze verticaal in de agarose. De overigebloemknoppen moet boven de agarose oppervlak.
- Vul het imaging schotel met steriel, gedeïoniseerd water, zodat de shoot apex volledig is ondergedompeld. Plaats het ontleden schotel onder de stereomicroscoop en verwijder de opgesloten lucht rond de shoot apex door het creëren waterstralen met 1000 pi pipet (figuur 1, vergelijk C en D).
- Onder de stereomicroscoop Gebruik de tang om bloemknoppen die niet wordt afgebeeld, door aan de basis van de steel of de bovenzijde van de knop totdat de steel breekt (figuur 1E) te verwijderen. Het is belangrijk dat de steeltjes breken netjes bij de kruising met de steel, als overgebleven steeltjes belemmeren de verwijdering van de jonge bloemknoppen.
- Wanneer beeldvorming alleen bloemknoppen fase 5 en jonger (figuur 2A), verwijder het water voordat ontleden stadium 6-8 bloemknoppen. Als imaging bloemknoppen stadium 5 en ouder, ga dan naar kelkblad ablatie (zie paragraaf 5.1). Anders, proCeed naar stap 3.7.
- Behulp van een tang, doorboren een verticaal gat in het midden van een grafisch schotel en plak de apex ontleed rechtop in het medium, zodat alleen de shoot apicale meristeem en omringende bloemknoppen boven het oppervlak van het medium. Afhankelijk van de bloemknop (s) af te beelden, kan het noodzakelijk zijn enigszins kantelen van het monster, zoals bloemknoppen zijn niet noodzakelijk georiënteerd precies zoals de stam (Figuur 2A).
- Ga verder met het kleuren van de steekproef indien nodig. Zo niet vlekken en / of beeldvorming van het monster meteen, voeg water toe en sluit de beeldvorming gerecht om uitdroging te voorkomen. Bij gebruik van een omgekeerde microscoop, plaats de beeldvorming schotel in een doorzichtige plastic doos en sluit deze.

Figuur 1: Voorbereiding van de shoot toppen voor live-confocale beeldvorming. (A - E) Dissectie van eenshoot apex voor de beeldvorming. Bloeiwijze voor (A) en na (B) verwijdering van siliques en ouder bloemen. (C - D) shoot apex ondergedompeld in water in het ontleden schotel met een luchtbel opgesloten in de punt (C) en na verwijdering van de luchtbel (D). (E) Schiet apex in het ontleden schotel, na dissectie van bloemknoppen ouder dan fase 5. (F - G) Uitzicht op uiteinden van scheuten in de beeldvorming schotel, op het podium van een rechtopstaande (F) en omgekeerd (G) confocale microscoop . In (F) een 40X water dompelen lens boven een van de toppen geplaatst, met de punt van de lens ondergedompeld in water. In (G), wordt de shoot apex kop boven de 40X water dompelen lens gepositioneerd met een waterkolom verbinden de afbeeldende medium aan het uiteinde van de lens. De kleinere paneel (F) toont een highaar vergroting uitzicht op de omgeving in de rode rechthoek, met een shoot apex in de beeldvorming medium ingebracht; rode en blauwe lijnen geven het oppervlak van het medium en water resp. (H - I) Voorbeelden van hulpmiddelen naar maat waarmee het toevoegen van meer water op het puntje van het water dompelen lens: een siliconenrubber bus gemaakt van een bougie (H) en een geïmproviseerde bus gemaakt van de vinger van een powderless latex handschoen (G). Schaalbalken = 0,5 cm (A) en (B), 0,1 cm (C) en (D) en 100 urn (E). Dit cijfer werd oorspronkelijk gepubliceerd in referentie 14. Klik hier om een grotere versie van deze afbeelding te bekijken.
4. kleuring
OPMERKING: Celwanden of plasmamembranen kan worden gekleurd met propidium jodide of FM4-64 respectievelijk cellulaire resolutie te bereikentijdens de beeldvorming. Alternatief kan reporter lijnen met fluorescerende eiwitten gelabeld met de plasmamembraan worden 6, 16.
- Verwijdert water uit de beeldvormende schotel, en zorgen voor het oppervlak van het medium droog voorkomen verdunning van de kleurstof.
- Onder de stereomicroscoop toepassing 20-30 pl ofwel 1 mg / ml propidiumjodide-oplossing, en 80 ug / ml FM4-64 oplossing voor de apex ontleed met 10 pi pipet. Zorg ervoor dat het gehele monster is bedekt met kleurstof om een homogene kleuring te garanderen.
- Vlek gedurende 2 min bij gebruik van propidium jodide of 20 min bij gebruik FM4-64.
- Spoel tweemaal met steriele, gedeïoniseerd water.
5. Ablatie Sepal
OPMERKING: In fase 4, kelkblad primordia start voor de FM. Als ze groeien, ze filteren de fluorescentie van onderliggend weefsel, en belemmeren het beeldvormingsproces. Kelkbladeren kan handmatig worden verwijderd met een metalen pen Mounted op een pen-bankschroef of verhinderd te groeien met behulp van laserablatie op nieuwe kelkblad primordia. Alternatief is het in sommige gevallen mutanten zoals apetala1-1, waarbij kelkbladen ontbreken of vervangen door bladachtige organen die de FM bedekken terwijl het centrale deel van de bloem normaal ontwikkelt (figuur 2F) 17 gebruiken.
- Kelkblad ablatie op bloemknoppen stadium 5 en ouder met een naald-bankschroef met een rechte metalen naald (figuur 2, E1-E2)
- Plaats het ontleden schotel met de ontleed apex onder de stereomicroscoop en stel de vergroting op maximum. Dompel de shoot apex in steriel, gedeïoniseerd water, of gebruik een 1000 ui pipet water regelmatig gevolgd op de shoot apex tijdens het ontleden van de kelkbladen.
- Wanneer de pen-bankschroef plaatst de pen boven de abaxiale kelkblad, tangentiaal ten opzichte van de shoot apex. Duw de kelk uit de buurt van de shoot apex totdat het weg breektvan de bloemknop.
- Ga op dezelfde manier met de adaxial kelkblad, maar duw de kelk naar de shoot apex.
- Gaat ook met de laterale kelkbladen, maar plaatst de pen radiaal ten opzichte van de shoot apex en duw de kelkbladen opzij, weg van de bloemknop.
- Dompel de shoot apex in steriel, gedemineraliseerd water voor een paar minuten om uitdroging te voorkomen.
- Laserablatie van kelkblad primordia in stadium 3-4 (figuur 2, C5-D5)
- Plaats de imaging gerecht met het lood, ontleed top van de confocale microscoop podium. Lokaliseren en zich richten op de top als voorbereiding op de foto (zie hoofdstuk 6 "imaging setup").
- Met het laserablatie systeemsoftware, bepalen de ablatie zone, die correspondeert met de top en de punt van de opkomende kelkblad primordia voordat ze beginnen die de bloem meristeem (kenmerkend in stap 3 voor abaxiale en adaxial kelkbladen, en laat stadium 3 / vroege stadium 4 voor het zijdelings sepals).
- Stel laservermogen en verblijftijd passende parameters om voldoende cellen te ablateren, zonder te veel schade toebrengen aan de onderliggende weefsels. Typisch afhankelijk van laserablatie gebruikte, geschikte parameters aanvankelijk moet worden geïdentificeerd door een trial-and-error proces om ervoor te zorgen dat er voldoende cellen zijn verwijderd om de kelk om vervolgens te groeien in de FM voorkomen, zonder dat de rest van de bloem knop. Het gebruik van teveel laservermogen en verblijftijd resulteert in schade aan het hart van de bloem, waardoor de groei en / of overleving. Zodra de juiste parameters zijn geïdentificeerd, kunnen ze worden hergebruikt voor de volgende experimenten.
Opmerking: Als de eerste ablatie onvoldoende blijkt, kan men overgaan tot een tweede ablatie op de volgende dagen (figuur 2, C4 en D2).
6. Imaging Setup
- Gebruik een rechtopstaande microscoop.
- Vul het beeldvormende schaal met de toppen ontleed met steriel, gedeïoniseerd water zodat het oppervlak van het medium bedekt 2,5-5 mm water (Figuur 1F). Volledig onder te dompelen de monsters.
OPMERKING: Bij het afbeelden van een opstaande microscoop kunnen verschillende toppen dezelfde beeldvorming schaal gelegd. Indien het beeldvormingsproces meer dan een uur duurt, propidiumjodide neiging te worden verdund en enkele monsters kunnen opnieuw kleuring voorafgaand aan beeldvorming nodig. - Plaats de beeldvorming schotel op de microscoop podium (Figuur 1F). Verlaag het water dompelen lens en verhogen het podium zodat het uiteinde van de lens dompelt in het water. Ga voorzichtig om te voorkomen dat de ontleed toppen verpletteren of dompel de lens in de beeldvorming medium.
- Indien een luchtbel wordt opgesloten in het uiteinde van de lens, maakt waterstralen met 1000 pi pipet te verwijderen.
- Onder epifluorescentie verlichting, een positie van de ontleed apices in de veldlens met de XY controller. Kijk door de oculairs en de focus op het monster met behulp van de Z-controller. Ga voorzichtig om het monster niet te verpletteren.
- Met behulp van de confocale microscoop software, inzoomen op de bloemknop af te beelden, en ga verder met je monster beeldvorming.
- Vul het beeldvormende schaal met de toppen ontleed met steriel, gedeïoniseerd water zodat het oppervlak van het medium bedekt 2,5-5 mm water (Figuur 1F). Volledig onder te dompelen de monsters.
- Gebruik een omgekeerde microscoop.
- Gebruik een 1000 pi pipet een druppel steriel, gedeïoniseerd water op het uiteinde van de lens.
- Houd de beeldvormende schotel kop en met 1000 pi pipet een druppel steriel, gedeïoniseerd water tot de apex ontleed.
- Plaats de beeldvorming schaal ondersteboven op de microscooptafel (figuur 1G). Ga voorzichtig om te voorkomen dat het monster te verpletteren.
- Onder epifluorescentieverlichting Plaats de ontleed apex over de top van de lens met de XY controller. Met de Z controller kantel de trap totdat het proefmodel druppel water op het puntje van de lens bereikt. Een waterkolom moet vormen betwEen het uiteinde van de lens en het medium.
- Indien de waterkolom niet vormt, wordt voorzichtig een druppel water op het monster met 1000 pi pipet. Voeg geïmproviseerde hulzen aan de lens om meer water aan het uiteinde, die het opzetten en onderhouden van de waterkolom (Figuur 1H en 1I) vergemakkelijkt voegen.
- Onder epifluorescentieverlichting, kijk door het oculair en de focus op het monster met behulp van de Z-controller. Ga voorzichtig om te voorkomen dat het monster te verpletteren.
- Met behulp van de confocale microscoop software, inzoomen op de bloemknop af te beelden, en ga verder met het monster beeldvorming.
- Als het uitvoeren van time-lapse experimenten, giet het water uit de imaging gerecht en sluiten om uitdroging tussen de tijdstippen te voorkomen. Leg de beeldvormende schaal met de monsters staan (16 uur licht) of continu dag 16-22 ° C omstandigheden. Opnieuw vlek monsters voor elk tijdstip.
OPMERKING: Tijdens cellen in developing bloemen organen kan sneller in de bloemmeristeem kloof of twee keer verdelen, cellen elke tweede dag, en cellijnen zijn makkelijk te volgen met tijdstippen om de 24 uur. Echter, als het nodig is, is het mogelijk om de afbeelding van de monsters om de zes uur.
7. Overwegingen betreffende de beeldparameters
OPMERKING: Hoe het opzetten van de beeldvorming parameters hangt sterk af van de confocale systeem gebruikt. Hieronder vindt u suggesties voor een aantal van deze parameters die kunnen worden gebruikt met een confocale microscoop. Voor meer overwegingen op beeldvormingsparameters, zie de discussie sectie en referentie 14.
- Voor de XY resolutie: gebruik maken van 1.024 x 1.024 voor een goede cellulaire resolutie. Alternatief gebruik 512 x 512 tot beeldvorming te reduceren ten koste van de resolutie.
- Voor de Z-resolutie: stel de stapgrootte op 0,5-1,5 urn. Het verlagen van de stap-size verhoogt de Z-resolutie, maar ook de beeldvorming tijd.
- Voor de pinhole: zet de pinhole tot 1-1,5 luchtige eenheden. Verhogen van de pinhole verhoogt de intensiteit van het signaal, maar ook het lawaai van niet-focale vlakken.
8. Visualisatie van Confocale Gegevens
- Zet stilstaande beelden van de tijdstippen van de ontwikkeling van de bloem in een film.
- Open de foto's (in jpeg of tif-formaat) in de software (bijvoorbeeld, Fiji).
- Ga naar Afbeelding> Stacks> Beelden te stapelen. De open beelden worden gegroepeerd in een stapel.
- Als de volgorde van de foto's in de stapel komt niet overeen met de chronologische volgorde, gebruikt u de Stack Sorter plugin (Plugins> Stacks> Stack Sorter) om ze opnieuw te ordenen.
- Om de stapel te zetten in een film, gaat u naar Bestand> Opslaan als> AVI.
Resultaten
Figuur 2 toont verschillende weergaven van confocale Z-stacks levende Arabidopsis bloemknoppen die verschillende fluorescente reporter genen en gekleurd met zowel propidiumjodide (figuur 2, A-G en C5) of FM4-64 (figuur 2, E1-F) aan een duidelijke cellulaire resolutie. Meest confocale systemen zorgen voor het afbeelden van twee fluoroforen met niet-overlappende emissiespectra zoals GFP of YFP nader omschreven met propidiumjodide of FM4-64 (Figuur 2A - 2F). De beste confocale systemen kunnen ook meerdere fluoroforen gescheiden met gedeeltelijk overlappende emissiespectra in dezelfde monsters, zoals GFP en YFP en DsRed en propidium iodide (figuur 2G).
Drie voorbeelden van time-lapse experimenten zijn weergegeven in figuur2 en tonen bloemknoppen normaal ontwikkelende na kelkblad ablatie werd uitgevoerd met hetzij een laserablatie systeem (figuur 2, C1-C5 en D1-D5) of handmatig met een pin-bankschroef en een metalen pen (figuur 2, E1-E2). Merk op dat de bloemknop figuur 2, E1-E2 is een superman-1 mutante planten, daarom vruchtblad primordia niet waargenomen in het midden van de knop in stap 7. Laserablatie opkomende kelkblad primordia van de bloemknop getoond in figuur 2, C1-C5 voorkomt dat deze over de FM, die nog steeds kan worden afgebeeld in stap 5 (figuur 2, C5). Omgekeerd, bij de bloemknop figuur 2, D1-D5, laserablatie alleen vertraagd kelkblad groei, maar kelkbladen uiteindelijk groeiden de meeste FM dekking per stadium 5 (figuur 2, D5 ). Integendeel, als er teveel laservermogen en verblijftijd wordt gebruikt tijdens laser ablatie, schade zich uitbreidt naar het centrale deel van de bloem en de groei beïnvloedt en soms resulteert in de daaropvolgende dood van de gehele bloemknop.
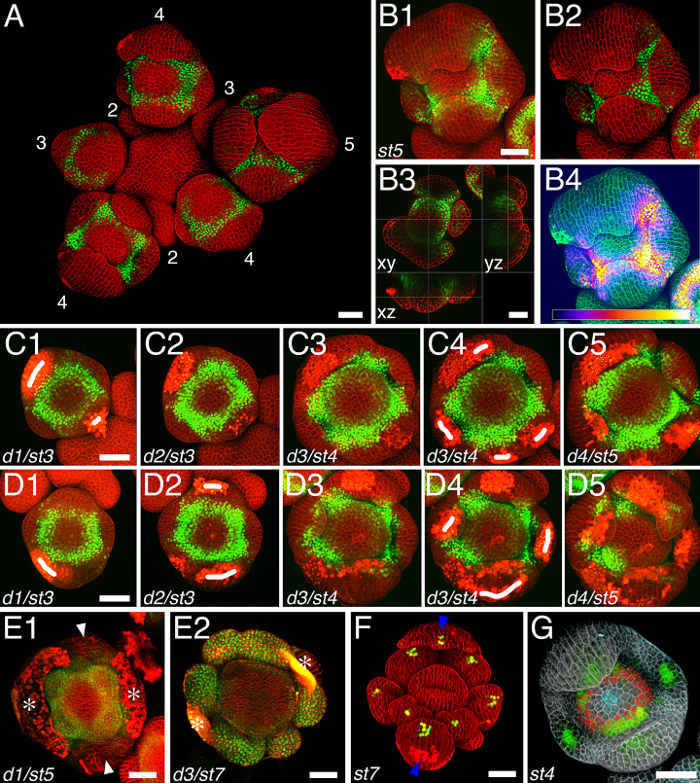
Figuur 2: Visualisatie van confocale Z-stacks van de live bloemknoppen. A en B2 zijn standpunten transparantie; B1 en B4-G maximale intensiteitsprojecties; B3 is een orthogonaal aanzicht segment. (A - E2) bloemen tot expressie Venus reporter voor apetala3 gen (groen); celwanden werden gekleurd met propidiumjodide (rood, met uitzondering van de B4, groen). (A) De bloeiwijze; getallen geven bloemen fasen; kelkbladen in stadium 4 en 5 bloemen filteren de fluorescentie van de reporter Venus, die normaliter forms een ring. Merk op dat sommige bloemknoppen verschijnen gekanteld ten opzichte van de bloeiwijze. (B1 - B4) Vier verschillende weergaven van dezelfde confocale Z-stapel stadium 5 bloemknop: maximale intensiteitsprojecties (B1 en B4) Venus signaalintensiteit gecodeerd pixel intensiteit in de groene (B1) of met vuur kleurcode (B4; kleurcode aan de onderkant van het paneel); transparantie view (B2) en orthogonale plak view (B3, XY, XZ en YZ oriëntatie van de schijfjes wordt in het paneel). (C1 - C5) 4 dagen time-lapse van een individuele bloemknop van trap 3 en trap 5; laserablaties (gemarkeerd als witte kenmerken) uitgevoerd op dag 1 en dag 3 waren voldoende om te voorkomen dat de kelkbladeren bestrijken bij het centrum van de bloemknopvorming in stap 5 (D1 - D5) 4 dagen time-lapse van een individuele bloemknop van stadium3 tot 5 fase; laserablaties uitgevoerd op dag 1, 2 en 3 onvoldoende om te voorkomen dat de kelkbladeren bestrijken bij het centrum van de bloemknop. (E1 - E2) Individuele bloemknop na het handmatig verwijderen van de abaxiaal en adaxial kelkbladeren (E1), en van alle kelkbladeren (E2); witte pijlen duiden resterende kelkbladeren; witte sterren geven littekens voortvloeien uit de verwijdering van de kelkbladen. (F) stap 7 apetala1-1 bloem uiting een DR5-3xVenusN7 reporter 18 (groen); plasmamembranen werden gekleurd met FM4-64 (rood); blauw pijlpunten geven aan het blad-achtige structuren die kelkbladeren vervangen en hebben geen betrekking op de bloemknop. (G) Fase 4 bloemknop het uitdrukken van een fluorescerende GFP reporter voor Dornröschen-LIKE 7 (groen), een Venus reporter voor SUPERMAN (rood) en een DsRed reporter voor CLAVATA3 19 (cyaan); cellenmuren werden gekleurd met propidiumjodide (grijs). d: dag; st: podium. Schaalbalken = 25 urn; schaal identiek B1, B2 en B4, in C1-C5 en D1-D5. Dit cijfer werd gewijzigd van referentie 14. Klik hier om een grotere versie van deze afbeelding te bekijken.
Discussie
Hier bieden we een protocol voor de beeldvorming van leven, de ontwikkeling van Arabidopsis bloemknoppen met een confocale microscoop en een water dompelen lens. Hoewel dit kan worden gedaan met ofwel een rechtop of een omgekeerde microscoop, is het makkelijker en sneller aan de voormalige gebruiken. Het is ook vermeldenswaard dat verschillende confocale systemen aanzienlijk verschillen in termen van snelheid, gevoeligheid, en het vermogen om golflengten te scheiden. De beste confocale microscopen kunnen nu ook het aantal verschillende kanalen (bijvoorbeeld GFP, YFP, DsRed en propidiumjodide Figuur 2G) in dezelfde monsters. Sommige confocale microscopen zijn uitgerust met een spectrale detector, waarbij de fluorescentie van meerdere fluoroforen gelijktijdig kan verzamelen en vervolgens scheiden. Bij gebruik van een gewone detector echter een aantal lasers en filters worden gebruikt voor het exciteren en scheiden de fluorescentie van verschillende fluoroforen. Sommige fluoroforen hebben een volledig verschillende emissiespectra (bijvoorbeeld CFP eend YFP) en gelijktijdig worden afgebeeld. Andere fluoroforen zijn gedeeltelijk overlappende emissiespectra (bijvoorbeeld GFP en YFP), en gewoonlijk moeten apart af te beelden die afbeeldingstijd toeneemt. Beeldvorming sluit fluoroforen ook vereist vaak beperkt hoeveel van het spectrum wordt verzameld voor elk kanaal fluorescentie voorkomen ene fluorofoor lekt naar een ander kanaal. Dit veroorzaakt een verlies aan intensiteit van het opgevangen signaal, dat kan worden gecompenseerd door een toename van laservermogen en versterking. Echter kan langdurige beeldvorming en een hogere laservermogen bleken en / of beschadiging van het monster. Verhoogde laservermogen en / of versterking kan ook toenemen achtergrondgeluid. Optimalisatie van de intensiteit van het signaal, de resolutie en imaging tijd voor elk monster wordt gedaan door middel van een trial-and-error proces, en het gaat om permanente trade-offs.
Dit protocol wordt uitgelegd hoe om live confocale beeldvorming van bloemknoppen te ontwikkelen op de flanken van een ontleed shoot apex uit te voeren. Hetkan worden aangevoerd dat het feit dat de shoot apex niet is verbonden met de rest van de plant en groeit in een medium dat cytokines invloed kunnen zijn op SAM en de ontwikkeling van de bloem. Echter werd dit medium ontworpen empirisch via een trial-and-error proces om de ontleed shoot zorgen apicale meristemen produceren van nieuwe bloemknoppen op de normale plastochron, en dat deze bloemknoppen normaal 15 te ontwikkelen. Tevens laat kelkblad dissectie niet te genexpressie patronen of de ontwikkeling van de rest van de bloem beïnvloeden. Andere protocollen detail hoe levende confocale beeldvorming van de SAM voeren nog aan de rest van de plant (bijvoorbeeld referentie 11). Dergelijke protocollen kunnen worden aangepast aan, en bieden een bruikbaar alternatief voor de beeldvorming van de ontwikkeling van bloemen, in het bijzonder bij het bestuderen-cytokinine-gerelateerde processen. Ze bieden echter verschillende nadelen: de steel verlengt en draait, en verandert de oriëntatie van de bloemknoppen; eennd terwijl het afbeelden van een shoot apex gehecht aan de rest van de plant werkt goed met een rechtopstaande microscoop, is het veel ingewikkelder om dat te doen met een omgekeerde microscoop.
Immersielenzen een betere numerieke apertuur (NA) van "droge" lenzen (dwz lenzen die van het monster worden gescheiden door lucht) en daardoor een fijnere resolutie van het monster, wat essentieel is bij gebruik van een confocale microscoop. Onder toepassing van een water dompelen lens verschaft dus een veel betere NA dan een droge lens, terwijl het voorkomen van de shoot apex uitdrogen tijdens het belichtingsproces. Terwijl glycerine en olie lenzen hebben een nog hogere NA dan water lenzen, ze vereisen het gebruik van een dekglaasje, wat erg onpraktisch met een monster ter grootte van een shoot apex, die ook blijft groeien tijdens de time-lapse experimenten. Gezien de omvang van de monsters (afhankelijk van de florale stadium kan stapels dan 150 um dik), is het ook belangrijk om een lens met een lange werkafstand. We gebruiken meestal 20 of 40X objectief met een NA van 1 en een werkafstand van 1,7-2,5 mm.
Confocale microscoop software biedt verschillende manieren om confocale gegevens te visualiseren, waaronder drie-dimensionale reconstructies (Figuur 2, B1, B2 en B4) en uitzicht op de slice (figuur 2, B3). Terwijl de meest gebruikte drie-dimensionale aanzichten zijn maximale intensiteit projecties van de confocale Z-stacks (Figuur 2, B1 en B4), bepaalde software (bijv Zen en Imaris) bieden ook uitzicht transparantie filtert het signaal van de diepere delen van het monster (Figuur 2, B2), die nuttig kunnen zijn bij het zoeken naar processen plaatsvinden, of genen die tot expressie gebracht in de epidermale laag. Signaalintensiteit kan ofwel worden gecodeerd met een enkele kleur (Figuur 2, B1), met behulp pixel intensity, of met een kleurcode (figuur 2, B4).
Live confocale imaging biedt niet alleen waardevolle kwalitatieve inzichten in de ontwikkeling van de bloem, maar ook biedt potentieel ontwikkelingsstoornissen biologen met een schat aan kwantitatieve gegevens. Verschillende software (bijv Imaris, fiji, MARS-ALT, MorphographX 15, 20, 21) maakt de kwantificering van het aantal of de hoeveelheid cellen die één of meerdere reporters of het expressieniveau van een reportergen in verschillende cellen. Dergelijke software kan ook worden gebruikt om de automatische cel segmentatie uit te voeren, te volgen cellijnen en groei te kwantificeren. Deze verschillende software biedt vergelijkbare instrumenten, maar ook verschilt op vele manieren. MARS-ALT en MorphoGraphX zijn speciaal ontwikkeld voor planten 15, 20, 21, in tegenstelling tot een Imarisnd Fiji. MorphoGraphX staat alleen de segmentatie en analyse van de epidermale laag, terwijl Imaris en MARS-ALT maken de segmentatie en analyse van het gehele monster. Echter, MARS-ALT de voorafgaande beeldvorming van hetzelfde monster vanuit drie verschillende invalshoeken 15 en Imaris vereist slechts een enkele stapel. Toegang tot kwantitatieve informatie is cruciaal voor ons begrip van de ontwikkeling van de bloem te bevorderen.
Openbaarmakingen
De auteur heeft niets te onthullen.
Dankbetuigingen
De auteur wenst te danken Prof. Elliot M. Meyerowitz voor zijn steun, en commentaar op het manuscript, evenals Ann Lavanway aan het Dartmouth College en Dr. Andres Collazo bij de Biological Imaging Facility bij Caltech voor hun hulp bij het oplossen van technische problemen met de Live confocale beeldvorming. werk Nathanaël Prunet wordt ondersteund door de Amerikaanse National Institutes of Health door middel van Grant R01 GM104244 Elliot M. Meyerowitz.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Forceps | Electron Microscopy Sciences | 72701-D | Dumont Style 5 Inox, voor apex dissectie |
| Pin Vise | Ted Pella, Inc. | 13560 | 80 cm lang, voor sepal ablatie |
| Strakke roestvrijstalen naalden | Ted Pella, Inc. | 13561-50 | 0,1 mm diameter, 1,2 cm lang, voor sepal ablatie |
| Ronde plastic dozen | Electron Microscopy Sciences | 64332 | transparant, 6 cm diameter, 2 cm diep, om als dissectiebakken te gebruiken |
| Rechthoekige scharnierende dozen | Durphy Packaging Co. | DG-0730 | transparant, 2-7/8” lang, 2” breed, 1-1/4” diep, om als beeldvormingsbakken te gebruiken met een rechtopstaande microscoop |
| Weefselkweekschalen, Polystyreen, Sterieel | VWR | 25382-064 | transparant, 3,5 cm diameter, 1 cm diep, om als beeldvormingsbakken te gebruiken met een omgekeerde microscoop |
| P10 en P1000 pipetten | met bijbehorende filtertips | ||
| Stereomicroscoop | met een maximale vergroting van 80-90X | ||
| Laser ablatiesysteem | voor sepal ablatie | ||
| Laser scanning confocale microscoopsysteem | |||
| 20 of 40X water-dipping lens | met een NA van 1 en een werkafstand van 1,7-2,5 mm | ||
| Agarose | |||
| Sucrose | |||
| Murashige en Skoog basiszoutmix | Sigma-Aldrich | M5524 | zonder vitaminen |
| Myo-inositol | Sigma-Aldrich | I7508 | vitamine |
| Nicotinezuur | Sigma-Aldrich | N0761 | vitamine |
| Pyridoxine hydrochloride | Sigma-Aldrich | P6280 | vitamine |
| Thiamine hydrochloride | Sigma-Aldrich | T1270 | vitamine |
| Glycine | Sigma-Aldrich | G8790 | vitamine |
| N6-Benzyladenine | Sigma-Aldrich | B3408 | BAP, een cytokinine |
| Propidiumjodide oplossing | Sigma-Aldrich | P4864 | 1 mg/mL oplossing in water, om de celwanden te kleuren |
| FM4-64 | Invitrogen | F34653 | verdun in water tot 80 μg/mL, om de plasmamembranen te kleuren |
Referenties
- Prunet, N., Jack, T. P. Flower Development in Arabidopsis: There Is More to It Than Learning Your ABCs. Methods Mol. Biol. 1110, 3-33 (2014).
- Stewart, D., Graciet, E., Wellmer, F. Molecular and regulatory mechanisms controlling floral organ development. FEBS J. , (2016).
- Heisler, M. G., et al. Patterns of auxin transport and gene expression during primordium development revealed by live imaging of the Arabidopsis inflorescence meristem. Curr. Biol. 15 (21), 1899-1911 (2005).
- Reddy, G. V., Meyerowitz, E. M. Stem-cell homeostasis and growth dynamics can be uncoupled in the Arabidopsis shoot apex. Science. 310 (5748), 663-667 (2005).
- Yadav, R. K., et al. WUSCHEL protein movement mediates stem cell homeostasis in the Arabidopsis shoot apex. Genes & Dev. 25 (19), 2025-2030 (2011).
- Reddy, G. V., Heisler, M. G., Ehrhardt, D. W., Meyerowitz, E. M. Real-time lineage analysis reveals oriented cell divisions associated with morphogenesis at the shoot apex of Arabidopsis thaliana. Development. 131 (17), 4225-4237 (2004).
- Chandler, J. W., Jacobs, B., Cole, M., Comelli, P., Werr, W. DORNROSCHEN-LIKE expression marks Arabidopsis floral organ founder cells and precedes auxin response maxima. Plant Mol. Biol. 76 (1-2), 171-185 (2011).
- Urbanus, S. L., et al. In planta localisation patterns of MADS domain proteins during floral development in Arabidopsis thaliana. BMC Plant Biol. 9, (2009).
- Hong, L., et al. Variable Cell Growth Yields Reproducible OrganDevelopment through Spatiotemporal Averaging. Dev. Cell. 38 (1), 15-32 (2016).
- Roeder, A. H., et al. Variability in the control of cell division underlies sepal epidermal patterning in Arabidopsis thaliana. PLoS Biol. 8 (5), e1000367(2010).
- Heisler, M. G., Ohno, C. Live-imaging of the Arabidopsis inflorescence meristem. Methods Mol. Biol. 1110, 431-440 (2014).
- Tobin, C. J., Meyerowitz, E. M. Real-Time Lineage Analysis to Study Cell Division Orientation in the Arabidopsis Shoot Meristem. Methods Mol. Biol. 1370, 147-167 (2016).
- Smyth, D. R., Bowman, J. L., Meyerowitz, E. M. Early flower development in Arabidopsis. Plant Cell. 2 (8), 755-767 (1990).
- Prunet, N., Jack, T. P., Meyerowitz, E. M. Live confocal imaging of Arabidopsis flower buds. Dev. Biol. , (2016).
- Fernandez, R., et al. Imaging plant growth in 4D: robust tissue reconstruction and lineaging at cell resolution. Nat. Methods. , (2010).
- Cutler, S. R., Ehrhardt, D. W., Griffitts, J. S., Somerville, C. R. Random GFP::cDNA fusions enable visualization of subcellular structures in cells of Arabidopsis at a high frequency. Proc. Natl. Acad. Sci. U S A. 97 (7), 3718-3723 (2000).
- Irish, V. F., Sussex, I. M. Function of the apetala-1 gene during Arabidopsis floral development. Plant Cell. 2 (8), 741-753 (1990).
- Vernoux, T., et al. The auxin signalling network translates dynamic input into robust patterning at the shoot apex. Mol. Systems Biol. 7, 508(2011).
- Zhou, Y., et al. Control of plant stem cell function by conserved interacting transcriptional regulators. Nature. 517 (7534), 377-380 (2015).
- Barbier de Reuille, P., et al. MorphoGraphX: A platform for quantifying morphogenesis in 4D. Elife. 4, 05864(2015).
- Barbier de Reuille, P. B., Robinson, S., Smith, R. S. Quantifying cell shape and gene expression in the shoot apical meristem using MorphoGraphX. Methods Mol. Biol. 1080, 121-134 (2014).
Herprints en machtigingen
