Details worden gepresenteerd over hoe QTL mapping met een genoomkaart op basis van een genoom sequentie kan worden gebruikt om een drug resistentie gen in Toxoplasma gondii te identificeren en hoe dit kan worden gecontroleerd met het CRISPR / Cas9 systeem dat efficiënt een genomisch doel bewerkt, in dit geval de Drug resistentie gen.
Methodenartikel
QTL Mapping en CRISPR / Cas9 Editing om een Drug Resistance Gene te identificeren
In dit artikel
Samenvatting
Samenvatting
Wetenschappelijke kennis is intrinsiek verbonden aan beschikbare technologieën en methoden. In dit artikel worden twee methoden gegeven die toelaten voor het identificeren en verifiëren van een geneesmiddel resistentie gen in de Apicomplexan parasiet Toxoplasma gondii , de methode van kwantitatieve trait locus (QTL) mapping met behulp van een genoomkaart met een hele genoom sequentie (WGS) en de methode Van clusterde regelmatige interspaced korte palindromische herhalingen (CRISPR) / Cas9-gebaseerde genbewerking. De aanpak van QTL mapping maakt het mogelijk om te testen of er een correlatie bestaat tussen een genomische regio (en) en een fenotype. Er zijn twee datasets nodig om een QTL scan te kunnen uitvoeren, een genetische kaart gebaseerd op de nageslacht van een recombinant kruis en een kwantificeerbaar fenotype dat wordt beoordeeld in elk van de nakomelingen van dat kruis. Deze datasets worden dan geformatteerd om compatibel te zijn met R / qtl software die een QTL scan genereert om significante loci te identificeren die gecorreleerd is met het fenotype. Hoewel dit de zoekopdracht aanzienlijk kan verkleinenInkomst van mogelijke kandidaten, QTL's strekken zich over regio's die een aantal genen bevatten waaruit het causaal gen moet worden geïdentificeerd. Het hebben van WGS van de nakomelingen was van cruciaal belang om de causale drug resistentie mutatie op het genniveau te identificeren. Eenmaal geïdentificeerd kan de kandidaat mutatie worden gecontroleerd door genetische manipulatie van geneesmiddelen gevoelige parasieten. De meest eenvoudige en efficiënte methode om T. gondii genetisch te wijzigen is het CRISPR / Cas9-systeem. Dit systeem bestaat uit slechts 2 componenten die beide zijn gecodeerd op een enkel plasmide, een enkelvoudig geleidingsRNA (gRNA) dat een 20 bp sequentie bevat die complementair is aan het genomische doel en het Cas9 endonuclease dat een dubbelstrengs DNA-breuk (DSB) op het doel opwekt, Reparatie van die het mogelijk maakt om sequenties in de pauze plaats in te voeren of te verwijderen. Dit artikel bevat gedetailleerde protocollen om CRISPR / Cas9 gebaseerde genoom bewerkingshulpmiddelen te gebruiken om het gen dat verantwoordelijk is voor sinfungine resistentie te verifiëren en transgene parasieten te bouwen.
Inleiding
Gastheerbereik bepaalt de omvang van de prevalentie van een parasieten. Sommige parasieten hebben zeer specifieke gastheerbehoeften die het gebied beperken waaruit zij zijn gevonden, anderen zijn generalisten. Een dergelijke generalist is Toxoplasma gondii ( T. gondii) . Deze parasiet is wereldwijd gevonden, omdat het alle zoogdieren en veel vogels kan infecteren. Mensen zijn ook vatbaar en er wordt geschat dat ongeveer 1/3 van de wereldwijde bevolking is geïnfecteerd. Gelukkig controleert een robuuste immuunrespons normaal gesproken op de groei van de parasiet, maar in situaties waar het immuunsysteem in gevaar komt, kan de parasiet ongemarkeerd groeien en ziekte veroorzaken, vaak encefalische. Ook kan deze parasiet aangeboren ziekten veroorzaken als vroeger ongeïnfecteerde vrouwen tijdens de zwangerschap geïnfecteerd zijn, omdat ze immuungeheugen hebben om de verspreiding van de parasiet snel te beperken. Bovendien is er een last van oculaire toxoplasmose die kan leiden tot visieverlies 1 . Voor deze reasoNs T. gondii is uitgegroeid tot een focus van studie, en door de vele moleculaire methodes die zijn ontwikkeld voor zijn studie, een model voor Apicomplexan parasieten. Twee methodes die hier worden besproken, zijn de kwantitatieve tract locus (QTL) mapping en clustered regelmatig interspaced korte palindromische herhalingen (CRISPR) / Cas9 genbewerking. QTL mapping en CRISPR / Cas9 editing zijn respectievelijk voorwaartse en omgekeerde genetische benaderingen die in eerdere studies zijn gebruikt om T. gondii virulence genen te identificeren en / of te karakteriseren. Hier worden deze methoden gecombineerd om de functie van een SNF-gen, TgME49_290860, en zijn orthologen (geannoteerd als SNR1 ) 2 te identificeren en te bevestigen.
Hoewel T. gondii een grote verscheidenheid aan intermediaire gastheren kan infecteren, moet het de darmepitheelcellen van een felid doorvoeren en infecteren om de levenscyclus te voltooien. Katten zijn de definitieve gastheren van de parasiet waar de sExieke fasen worden geproduceerd en genetische recombinatie vindt plaats via meiose. Om een QTL studie uit te voeren moet men een genetisch kruis creëren, en in het geval van Toxoplasma betekent dit dat twee verschillende parasietstammen verschillen in een fenotypische eigenschap, de ouderlijke vlekken, door een kat om recombinante nakomelingen te produceren 3 . Voordat de katten worden gevoed, worden de ouderlijke stammen bestand tegen afzonderlijke geneesmiddelen, zodat een efficiëntere identificatie van recombinanten door middel van dubbele drugselectie van de nakomelingen 4 mogelijk is . Voor dit doel zijn drie drugs gebruikt in T. gondii ; Fluorodeoxyribose (FUDR) waarvoor uracil fosforibosyltransferase ( UPRT ) het resistentie gen 5 is , adenosine arabinoside (ARA) waarvoor Adenosine Kinase ( AK ) het resistentie-gen 6 is , en sinfungine (SNF) waarvoor het resistiemene onbekend was 7 . Verscheidene genetische kruisen zijn geweestGecreëerd voor T. gondii , maar alleen de 24 nakomelingen van het ME49-FUDR r X VAND-SNF r kruis werden genotypeerd met behulp van genoom sequentiebepaling (WGS) 8 . Dit heeft de mogelijkheid geopend om het SNF-resistentiegen te gebruiken door het kruis te identificeren en te identificeren, aangezien de VAND-ouder door middel van chemische mutagenese van de geneesmiddel gevoelige VAND (VAND-SNF s ) stam genotypeerd werd en het VAND-referentiegenoom werd sequentieerd onder toepassing van de VAND- SNF s- stam waardoor de identificatie van alle polymorfismen tussen het nageslacht WGS en het VAND-SNF 's referentiegenoom mogelijk is, met inbegrip van de erfelijke VAND-SNF r mutatie die een deel van de nageslacht resistente afkomst heeft gemaakt.
Om het causaal enkel nucleotide polymorfisme (SNP) in het SNF r- nageslacht te identificeren, kunnen verschillende computergebaseerde open bronbronnen worden gebruikt om de data te analyseren. Om de genetische kaart voor de ME49-FUDR r X VAND-SNF r cross de REDHORSE software suite 9 is ontwikkeld die gebruik maakt van WGS-uitlijning van de ouders en de nakomelingen om de genomische posities van genetische crossovers nauwkeurig te detecteren. Deze mapping informatie kan dan gecombineerd worden met de fenotypische data (SNF r in de nageslacht) om een dataset te vormen die compatibel is met het 'qtl' pakket 10 in de R statistische programmeersoftware waar een QTL scan kan worden uitgevoerd om significante loci te correleren met de fenotype. Om het causale SNP in het QTL locus te identificeren, kunnen de WGS-lezingen van de nageslacht individueel uitgelijnd worden aan het sinfungin-gevoelig VAND-genoom met behulp van het Bowtie 2-uitlijningsprogramma 11, waarvan SNP's kunnen worden genoemd met behulp van het VarScan mpileup2snp variant-oproepprogramma 12 . Met behulp van deze SNP's kan de QTL locus vervolgens worden gescand voor polymorfismen die aanwezig zijn in de SNF r, maar nietIn de nageslacht van de SNF. Met het causale SNP geïdentificeerd in het coderende gebied van een gen, kan genetische modificatie van het kandidaat SNF r gen uitgevoerd worden in een SNF s stam om de drug resistentie functie te verifiëren.
Het CRISPR / Cas9 genoom bewerkingssysteem is onlangs opgericht in Toxoplasma 13 , die belangrijke instrumenten heeft toegevoegd voor de verkenning van de complexe biologie van deze parasiet, met name voor genetische studies in niet-laboratorium aangepaste stammen. Door de zeer actieve non-homologous End Joining (NHEJ) activiteit in WT Toxoplasma cellen, is gerichte genoom modificatie moeilijk te bereiken, aangezien exogent geïntroduceerd DNA willekeurig geïntegreerd is in het genoom bij extreem hoge frequentie 14 . Om de succesfrequentie van locus-specifieke modificatie te verhogen, zijn verschillende benaderingen toegepast om de efficiëntie van homologe recombinatie te verhogen en / of te verminderenE NHEJ activiteit 15 , 16 . Een van deze benaderingen is het CRISPR / Cas9-systeem. Vergeleken met andere methoden is het CRISPR / Cas9-systeem efficiënt om site-specifieke wijzigingen in te voeren en is het gemakkelijk om 13 , 17 , 18 te ontwerpen. Daarnaast kan het in elke Toxoplasma stam gebruikt worden zonder extra modificatie aan de parasiet 13 , 19 .
Het CRISPR / Cas9-systeem is afkomstig van het adaptieve immuunsysteem van Streptococcus pyogenes , die het gebruikt om de invasie van mobiele genetische elementen zoals fages 20 , 21 , 22 te verdedigen. Dit systeem maakt gebruik van het RNA-geleid DNA-endonuclease-enzym Cas9 om dubbelstrengs DNA-breuk (DSB) in het doel te introduceren, dat vervolgens wordt herhaaldAfkomstig van de foutgevoelige NHEJ om doelgenen te inactiveren door korte indel mutaties, of door homologie gerichte recombinatie om de target locus precies zoals ontworpen 23 , 24 te wijzigen . De target specificiteit wordt bepaald door een klein RNA molecuul genaamd single guide RNA (gRNA), die een individueel ontworpen 20 nt sequentie bevat die 100% homologie heeft op het doel DNA 22 . Het gRNA-molecuul bevat ook handtekeningen die worden herkend door Cas9, die de nuclease naar de doelplaats leiden, die een speciaal Protospacer-aangrenzend motief bevat (PAM, sequentie is 'NGG') 25 , 26 . Daarom werken het gRNA-molecuul en de PAM-sequentie samen om de Cas9-splitsingsplaats in het genoom te bepalen. Men kan de gRNA-sequentie gemakkelijk veranderen om verschillende sites voor splitsing te targeten.
Toen het CRISPR / Cas9-systeem voor het eerst in Toxop werd ontwikkeldLasma, een enkel plasmide dat het Cas9 nuclease uitdrukt en het gRNA molecuul werd gebruikt om DSB op de targeting site 13 , 17 te introduceren. Het is aangetoond dat het CRISPR / Cas9 systeem de efficiëntie van plaatsspecifieke genoommodificatie drastisch verhoogt, niet alleen door homologe recombinatie maar ook niet-homologe integratie van exogeen DNA 13 . Dit doet dit in wildtype stammen die NHEJ activiteit bevatten. Daarom kan dit systeem in hoofdzakelijk elke Toxoplasma- stam gebruikt worden voor efficiënte genoombewerking. In een typisch experiment worden het doelspecifieke CRISPR-plasmide en het DNA-fragment dat gebruikt wordt om het doel te wijzigen co-transfecteerd in parasieten. Als het DNA-fragment dat gebruikt wordt om het doel te wijzigen, homologe sequenties bevat aan de doellocus, kan homologe recombinatie worden gebruikt om de DSB, die door CRISPR / Cas9 is geïntroduceerd, te repareren om nauwkeurige modificatie van het doel toe te staan. Aan de andere kant, als de intGerukt DNA fragment bevat geen homologe sequentie, het kan nog steeds geïntegreerd worden in de CRISPR / Cas9 targeting site. Deze laatste wordt vaak gebruikt om genen te verstoren door invoeging van selecteerbare markers of complementatie van mutanten op loci die negatieve selectie mogelijk maken 13 . Hier dient de SNR1 locus als voorbeeld om te laten zien hoe CRISPR / Cas9 kan worden gebruikt voor genverstoring en de generatie van transgene parasieten.
Protocol
1. Bepaal SNF r in de nakomelingen van de ME49-FUDR r x VAND-SNF r Kruis
OPMERKING: T. gondii is een verplichte intracellulaire parasiet en de tachyzoiet stadium groeit gemakkelijk in weefselkweek.
- Om de T. gondii parasiet te laten groeien, handhaven ze in samenvloeiende Human Foreskin Fibroblast (HFF) monolagse cultuur die aan T25 flessen wordt gezaaid met Dulbecco's Medium Medium (DMEM) Modified Eagle Medium, aangevuld met 10% Fetal Bovine Serum (FBS) (D10 media) bij 37 ° C C en 5% CO 2 .
OPMERKING: Zie Protocol 1.1 Opmerking in aanvullend bestand 1 . - Om afzonderlijke nageslachtklonen te testen voor sinusgeweerstand, groei elke kloon tot een hoge parasietdichtheid in een T25 HFF kweekfles gedurende 2-3 d, tot de meerderheid van de parasieten de gastheercellen beginnen te lichten.
- Schraap de monolaag met een celschraper en pas de parasietoplossing door een 10 ml spuit / 22 G stompe naald 2-3x tDe gastenscellen laten parasieten vrij. De oplossing kan teruggetrokken worden in de spuit voor meerdere naalddoorgangen.
- Filter de parasietoplossing in een nieuwe conische buis door een membraan met een poriegrootte van 3 μm om HFF-cellen en cellulaire rommel te verwijderen.
- Tel de parasieten op een hemocytometer en bepaal het aantal parasieten per ml.
- Door een pipettor te gebruiken, stuur 2,5 x 10 5 parasieten naar een nieuwe T25 HFF-kolf die D10 media bevat met 0,3 μM werkconcentratie van het sinfungine geneesmiddel.
- Vergroot de parasieten bij 37 ° C en 5% CO 2 voor 7-10 d.
- Score de nakomeling voor het groeifenotype in het geneesmiddel. Let op de monolaag onder een omgekeerde fase-contrastmicroscoop en scoor 0 voor geen groei (gevoelig voor de gevoeligheid), score 1 voor groei en lysis van monolaag
OPMERKING: Zie Protocol 1.8 Opmerking in aanvullend bestand 1 .
2. REen QTL scan van het SNF r fenotype in R / qtl
OPMERKING: Zie Protocol 2 Opmerking in aanvullend bestand 1 .
- Installeer de programmeertaalsoftware R op een lokale computer. Zie 27 .
- Run R en installeer het pakket 'qtl'. Of doe dit vanuit de R GUI interface optie 'Packages-> Installeer pakket (en)' of voer de volgende opdracht uit de opdrachtregel R (het eerste '>' symbool in elk voorbeeld geeft het begin van een opdracht aan, niet te zijn gekopieerd):
> Install.packages ( "qtl")
OPMERKING: Nadat R en het pakket 'qtl' zijn geïnstalleerd, zijn er twee manieren om R / qtl te kunnen uitvoeren, vanuit de opdrachtregel R of met een grafisch gebruikersinterface (GUI) programma genaamd J / qtl 28 : zie 29 om J te downloaden / qtl. Dit protocol geeft de R / qtl command line syntax met af en toe verwijzing naar de equivalente functie in J / qtl. - Laad het pakket 'qtl':
> Bibliotheek (qtl)
OPMERKING: zie protocol 2.3 Opmerking in aanvullend bestand 1 voor datasetformaat en downloads. - Laad het datasetbestand in R / qtl.
- Voor "csv" -formaat (Zie: Gegevensbestand 1):
> SNFR <- read.cross (format = "csv", bestand = "$ PATH / Rqtl-SNFR.csv", genotypes = c ("0", "1"), na.strings = c ("-") , ConvertXdata = FALSE) - Of voor "gary" formaat (zie: Data File 2):
> SNFR <- read.cross (format = "gary", dir = "$ PATH", chridfile = "chrid.txt", mnamesfile = "mname.txt", mapfile = "markerpos.txt", genfile = "genotype. Txt ", phefile =" phenos.txt ", pnamesfile =" phenonames.txt ", convertXdata = FALSE)
Waar $ PATH het directory pad is van het bestand (en) dat de qtl dataset bevat. Bijvoorbeeld: / Gebruikers / HotDiggityDog / QTLfiles
OPMERKING: de bestanden kunnen ook worden geladenEd in J / qtl met de vorige commando's met de optie 'Commentaar of opdracht invoeren', of laad de gegevens met de GUI 'File-> Load Cross Data' optie.
- Voor "csv" -formaat (Zie: Gegevensbestand 1):
- Bereken waarschijnlijkheden voor de kaart:
> SNFR <- calc.genoprob (SNFR, stap = 2.0, off.end = 0.0, error.prob = 1.0E-4, map.function = "haldane", stepwidth = "fixed") - Voer een enkele scan uit met behulp van een binaire verdeling van het sinfungin resistentie fenotype over alle chromosomen:
> SNFR.scan <- scanone (kruis = SNFR, chr = c ("Ia", "Ib", "II", "III", "IV", "V", "VI", "VIIa", "VIIb "," VIII "," IX "," X "," XI "," XII "), feno.col = c (1), model =" binair ", methode =" em ")
OPMERKING: als u het VIR fenotype uitvoert, gebruik dan de 'model =' normale '' distributie optie. - Voer 1000 permutaties uit om de drempelwaarden te berekenen en dan attrIbute de permutaties aan de variabele SNFR.scan:
> SNFR.scan.permutations <- scanone (kruis = SNFR, chr = c ("Ia", "Ib", "II", "III", "IV", "V", "VI", "VIIa" "VII", "VIII", "IX", "X", "XI", "XII"), feno.col = c (1), model = "binair", methode = "em", n.perm = 1000, perm.Xsp = FALSE, verbose = FALSE)
> Attr (SNFR.scan, "pheno.col") <- c (1)
OPMERKING: Stappen 2.5 tot en met 2.7 kunnen in J / qtl worden uitgevoerd met de optie 'Analyse-> Hoofdscanning-> Een QTL Genoom Scan uitvoeren'. - Bepaal de scanresultaten:
> Plot (SNFR.scan, gap = 0, bandcol = "grijs")
OPMERKING: De in J / qtl geproduceerde grafiek is interactief.- Bepaal de scanresultaten voor alleen chromosoom IX, het chromosoom met de hoogste piek:
> Plot (SNFR.scan, chr = c ("IX"), gap = 0, bandcol = "grijs", show.marker.names = TRUE)
- Bepaal de scanresultaten voor alleen chromosoom IX, het chromosoom met de hoogste piek:
- Toon alle markeringsposities en LOD scores uit de single scan:
> SNFR.scan - Toon de drempelresultaten van de permutatietest:
> Samenvatting (SNFR.scan.permutations) - Toon alleen die markers die groter zijn dan de alfa = .05 drempelwaarde (genomen uit de vorige uitvoer):
> SNFR.scan [SNFR.scan $ lod> 2,68,] - Toon de markers met de hoogste LOD score op elk chromosoom:
> Samenvatting (SNFR.scan) - Toon die markers met de maximale LOD score waarde (uit de vorige uitvoer):
> SNFR.scan [SNFR.scan $ lod> = 6,57,]
OPMERKING: Zie Protocol 2.13 Opmerking in aanvullend bestand 1 .
3. Identificeer de oorzakelijk SNF r mutatie met behulp van WGS leest van de nakomelingen
OPMERKING: Zie Protocol 3 Opmerking in aanvullend bestand 1 .
- Uitlijning WGS leest van de individuele nakomelingen naar de SINFUNGIN gevoelige VAND(VAND-SNF s ) ouderlijk genoom.
OPMERKING: Download het VAND referentie genoom (SNF s ) van NCBI Assembly AEYJ00000000.2 en de WGS leest (.sra bestanden) voor de 24 nakomelingen van NCBI SRA PRJNA258152. Download ook de volgende programma's: Bowtie2 11 , NCBI SRA Toolkit, SAMtools 30 , VarScan 12 en MUMMER 31 .- Maak een Bowtie 2 compatibele index van het VAND referentie genoom FASTA bestand met behulp van het bowtie2-build programma, hier de index "VAND" genoemd:
> Bowtie2-build GCA_000224845.2_TGVAND_v2_genomic.fna VAND - Omzetten van de SRA-geformatteerde WGS-bestanden naar FASTQ-bestanden met behulp van fastq-dumpen met de optie --split-files voor gepaarde lezingen (het SRR1555372.sra bestand voor de nakomelingen P1_14VB wordt als voorbeeld gebruikt):
> Fastq-dump --split-bestanden SRR1555372.sra
OPMERKING: Doe dit en alle volgende opdrachten in Protocol 3.1 voor alle 24nakomelingen. - Zorg ervoor dat de WGS leest naar het referentiegenoom met behulp van bowtie2 met output naar een SAM (.sam) bestand en de --end-to-end optie:
> Bowtie2 -x VAND -1 SRR155372_1.fastq -2 SRR1555372_2.fastq -S SRR155372.sam - end-to-end - Zet het .sam bestand om naar een BAM (.bam) bestand:
> Samtools view -bS SRR155372.sam> SRR155372.bam - Sorteer het .bam bestand:
> Samtools soort SRR155372.bam SRR155372.sort - Index het gesorteerd .bam bestand:
> Samtools index SRR155372.sort.bam
- Maak een Bowtie 2 compatibele index van het VAND referentie genoom FASTA bestand met behulp van het bowtie2-build programma, hier de index "VAND" genoemd:
- Bel SNPs voor de nakomelingen met behulp van VarScan
OPMERKING: Zie Protocol 3.2 Opmerking in aanvullend bestand 1 .- Zet alle geïndexeerde BAM (.sort.bam) bestanden om in een pileup geformatteerd bestand met behulp van Samtools mpileup met het referentiebestand VAND genoom, alle nakomelingen .sort.bam bestanden en output naar een bestand genaamd AllProgeny-mpileup.txt:
> Samtools mpileup -f GCA_000224845.2_TGVAND_v2_genomic.fna SRR1555599.Sort.bam SRR1555372.sort.bam SRR1555660.sort.bam SRR1555672.sort.bam SRR1556052.sort.bam SRR1556122.sort.bam SRR1556192.sort.bam SRR1556194.sort.bam SRR1556195.sort.bam SRR1556199.sort.bam SRR1556200. Sort.bam SRR1556202.sort.bam SRR1556203.sort.bam SRR1556274.sort.bam SRR1556276.sort.bam SRR1556278.sort.bam SRR1556395.sort.bam SRR1556396.sort.bam SRR1556397.sort.bam SRR1556398.sort.bam SRR1556399. Sort.bam SRR1556400.sort.bam SRR1556401.sort.bam SRR1556402.sort.bam> AllProgeny-mpileup.txt - Bel alle SNP's met het programma VarScan mpileup2snp met het bestand AllProgeny-mpileup.txt, minimumleesdekking van 5, minimale variantfrequentie over leest van .8, een p-waarde van .01, en output naar een bestandsnaam AllProgeny-SNPs. tekst:
> Java -jar VarScan.jar mpileup2snp AllProgeny-mpileup.txt --min-dekking 5 --min-var-freq .8 --p-waarde .01> AllProgeny-SNPs.txt
OPMERKING: Het bestand AllProgeny-SNPs.txt is een tab-afbakend tekstbestand dat wordt gebruikt in protocol 3.4 om te lokaliserenHet causale SNP.
- Zet alle geïndexeerde BAM (.sort.bam) bestanden om in een pileup geformatteerd bestand met behulp van Samtools mpileup met het referentiebestand VAND genoom, alle nakomelingen .sort.bam bestanden en output naar een bestand genaamd AllProgeny-mpileup.txt:
- Zoek VAND genoom coördinaten die overeenkomen met coördinaten van de ME49 gebaseerde QTL locus
OPMERKING: Zie Protocol 3.3 Opmerking in aanvullend bestand 1 .- Gebruik het MUMmer nucmer programma om het ME49 genoom af te stemmen (beschikbaar voor download van ToxoDB.org 32 ) en het VAND referentie genoom bestand (output gaat naar het out.delta bestand):
> Nucmer ToxoDB-28_TgondiiME49_Genome.fasta GCA_000224845.2_TGVAND_v2_genomic.fna - Gebruik het MUMmer show-coords programma om de coördinaten van de twee genoom-uitlijningen te verkrijgen, output naar een bestand met de naam ME49vsVAND-coords.txt:
> Show-coords out.delta> ME49vsVAND-coords.txt
OPMERKING: het ME49vsVAND-coords.txt bestand kan worden gebruikt om de VAND contigs en posities te vinden die overeenstemmen met de QTL locus; Markers MV359 tot MV366 gelegen op ME49 chromosoom IX tussen 3.187.537 en 4,202.258 bp. Er zijn twee VAND contigs die de overeenkomst overschrijdenOntelbare QTL locus; KN044604.1: 657.441-1 bp en KN042501.1: 430.910-41.870 bp (beide contigs uitlijnen naar het ME49 chromosoom).
- Gebruik het MUMmer nucmer programma om het ME49 genoom af te stemmen (beschikbaar voor download van ToxoDB.org 32 ) en het VAND referentie genoom bestand (output gaat naar het out.delta bestand):
- Bepaal nakomelingen SNP's die zich in de QTL locus bevinden voor SNP's die alleen in de SNF r- nageslacht zijn geërfd
OPMERKING: Zie Protocol 3.4 Opmerking in aanvullend bestand 1 .- Beoordeel Gegevensbestand 3 om de causale mutatie in de QTL locus te identificeren. Scan de gegevens voor een patroon waar de SNF r- nakomeling een SNP heeft en de SNF 's niet (haalbaar omdat nageslacht-SNP's werden verkregen in vergelijking met het referentiegenoom van het VAND-SNF). Dit zou slechts in één positie met dit patroon moeten leiden, positie 348130 op VAND contig KN042501.1.
- Zie rij 6604 in Data File 3 ( Afbeelding 3 ).
OPMERKING: Zie Protocol 3.4.2 Opmerking in aanvullend bestand 1 .
4. Verificatie van geïdentificeerde hits door CRISPR / Cas9-Gemedieerde geninactivatie.
OPMERKING: Om de causale SNP te identificeren die is geïdentificeerd door QTL mapping en WGS SNP analyse, moeten de bijbehorende genetische veranderingen worden gemaakt op een achtergrond van WT SNF en het daaruit voortvloeiende fenotype. In het geval van sinusgeweer, resulteert de verantwoordelijke mutatie in de inactivatie van het SNR1 gen door vroegtijdige beëindiging 2 . Daarom kan verstoring van SNR1 worden gebruikt voor bevestiging. Hier wordt een gedetailleerd protocol verstrekt voor het gebruik van CRISPR / Cas9 geïnduceerde indelmutaties om SNR1 te verstoren, om zijn betrokkenheid bij sinfungine resistentie te demonstreren ( Figuur 4 ).
- SNR1 specifieke CRISPR plasmide constructie
OPMERKING: Zie Protocol 4.1 Opmerking in aanvullend bestand 1 om plasmiden en kaarten te verkrijgen.- Verkrijg de genomische sequentie voor het doelgen ( SNR1 , TGME49_290860) van ToxoDB 32 .
- Gebruik online tools zoals E-CRISP 33 om specifieke specifieke gRNA's te ontwerpen. Sluit de PAM-sequentie (NGG) niet in de gRNA in.
OPMERKING: Zie protocol 4.1.2 Opmerking in aanvullend bestand 1 . - Synthesize primers om het doelspecifieke CRISPR plasmide te construeren.
- Volgens het ontwerp uit stap 4.1.2, synthetiseren twee primers om het UPRT targeting gRNA in het oorspronkelijke CRISPR plasmide te veranderen in de geselecteerde gRNA sequentie door plaatsgerichte mutagenese.
OPMERKING: De sequenties van deze twee primers zijn als volgt: gRNA-Fw: NNNNNNNNNNNNNNNNNNNNNNGTTTTAGAGCTAGAAATAGC (N20 is de doelspecifieke gRNA sequentie) en gRNA-Rv: AACTTGACATCCCCATTTAC 2 .
- Volgens het ontwerp uit stap 4.1.2, synthetiseren twee primers om het UPRT targeting gRNA in het oorspronkelijke CRISPR plasmide te veranderen in de geselecteerde gRNA sequentie door plaatsgerichte mutagenese.
- Voer de site-gerichte mutagenese reacties uit.
- Met behulp van het UPRT- targeting CRISPR-plasmide (pSAG1 :: CAS9-U6 :: sgUPRT) als sjabloon en de bovenstaande twee primers, voeren site-gerichte mutagenese reactiesVolgens de instructies van de fabrikant.
OPMERKING: Gebruik de volgende cyclische condities voor PCR: 98 ° C gedurende 1 minuut, gevolgd door 25 cycli van 98 ° C gedurende 10 s, 55 ° C gedurende 30 minuten en 72 ° C, gevolgd door een laatste verlenging gedurende 2 minuten Bij 72 ° C.
- Met behulp van het UPRT- targeting CRISPR-plasmide (pSAG1 :: CAS9-U6 :: sgUPRT) als sjabloon en de bovenstaande twee primers, voeren site-gerichte mutagenese reactiesVolgens de instructies van de fabrikant.
- Transformeer de mutageneseproducten die de GOI-specifieke CRISPR-plasmiden bevatten aan bevoegde E. coli- cellen door chemische transformatie volgens het protocol van de leverancier (zie tabellen van materialen ). Groei de transformanten op lysogeenbouillon (LB) platen die ampicilline (100 μg / ml) bij 37 ° C bevatten. Vervolgens kies 2-4 klonen en groei ze individueel in 5 ml LB medium aangevuld met 100 μg / ml ampicilline gedurende 12-16 uur.
- Extract plasmiden uit de culturen met behulp van een DNA isolatie kit en analyseer ze door DNA gel elektroforese om de grootte van de plasmiden te controleren (de verwachte plasmide grootte is 9674 bp, gebruik het originele CRISPR plasmide als controle-). Gebruik de M13-Rev primer (5'-CAGGAAACAGCTATGACC) om de plasmiden te sequenteren om de doelspecifieke gRNA-sequentie te bevestigen.
- Zodra positieve klonen zijn geïdentificeerd, bewaar beide plasmide-DNA bij -20 ° C en bijbehorende bacteriële cultuur bij -80 ° C voor toekomstig gebruik.
OPMERKING: Het CRISPR-plasmide dat gebruikt wordt voor transfectie moet opgelost worden in gedeïoniseerd water en de concentratie bepaald door spectrofotometrie of een alternatieve methode.
- Zodra positieve klonen zijn geïdentificeerd, bewaar beide plasmide-DNA bij -20 ° C en bijbehorende bacteriële cultuur bij -80 ° C voor toekomstig gebruik.
- Extract plasmiden uit de culturen met behulp van een DNA isolatie kit en analyseer ze door DNA gel elektroforese om de grootte van de plasmiden te controleren (de verwachte plasmide grootte is 9674 bp, gebruik het originele CRISPR plasmide als controle-). Gebruik de M13-Rev primer (5'-CAGGAAACAGCTATGACC) om de plasmiden te sequenteren om de doelspecifieke gRNA-sequentie te bevestigen.
- Parasietransfectie.
OPMERKING: Algemene methoden voor het cultiveren van T. gondii in HFF-cellen in D10-medium zijn eerder beschreven 34 .- Twee tot drie dagen voor transfectie, voeg voldoende parasieten toe aan een T25-fles met een confluente HFF-celmonolaag (0,5-1 x 10⁶ voor type 1-stammen, 1-2 x 10 6 voor andere stammen) om 70-80% HFF-cel te bereiken Lysis binnen 2-3 d.
- DERZOEKNe de cultuur onder een omgekeerde fase contrastmicroscoop, wanneer de HFF monolaag 70-80% is gelicht door de parasieten. Verwijder het medium met een pipet voorzichtig en wass de cellen uit het kolfoppervlak met 5 ml cytomix buffer (120 mM KCl, 0,15 mM CaCl2, 10 mM K2 HPO4 / KH2P04 pH = 7,6, 25 mM HEPES, 2 MM EDTA, 5 mM MgCl2, pH = 7,6). Vervolgens de parasietoplossing overbrengen naar een 15 ml conische buis.
OPMERKING: Zie Protocol 4.2.2 Opmerking in aanvullend bestand 1 . - Pas de parasietoplossing door een 10 ml spuit / 22 G stompe naald 2-3x.
- Filter de parasietoplossing in een nieuwe conische buis door een membraan met een poriegrootte van 3 μm om HFF-cellen en cellulaire rommel te verwijderen.
- Pellet de gefilterde parasieten door centrifugeren bij 400 xg gedurende 10 minuten.
- Giet de supernatant af en doe de gepelleteerde parasieten opnieuw met 10 ml cytomix-buffer, neem een 10 μL-aliquot op hetVersmelt de parasietconcentratie met een hemocytometer en pellet de rest door centrifugeren bij 400 x g gedurende 10 minuten.
- Verwijder supernatant en resuspendeer de pellet in cytomix buffer om een dichtheid van 4 x 10 7 parasieten / ml te verkrijgen.
- In een 4 mm kloofcuvette meng 250-300 μL parasietoplossing (1-1,3 x 10 7 parasieten) met 7,5 μg CRISPR plasmide, 6 μL ATP (100 mM) en 6 μL glutathion (GSH) (250 mM).
- Elektroporeer de parasieten 35 . Inclusief een aparte elektroporatie als een negatieve controle waarin een CRISPR-plasmide elders richt, zoals het UPRT- targeting CRIPSR-plasmide.
OPMERKING: De instellingen voor elektroporatie zijn afhankelijk van het apparaat. Voor de elektroporator die in de Materialen staat, gebruik de 4 mm-gapcuvetten. Het volgende protocol wordt aanbevolen: 1.700 V, 176 μs pulslengte, 2 pulsen met 100 ms interval.
- Bepaal de frequentie van de ontbrekende resistaNa CRISPR targeting.
- Zaad HFF-cellen aan dekglazen geplaatst in 24-putjes platen 3-4 d voor elektroporatie, zodat ze confluent zijn tegen de tijd om transfectie uit te voeren in 4.2.
- Trypsineer de HFF-cellen uit één samenvloeiende T25-fles en voeg vervolgens 12 ml D10-medium toe en meng goed.
- Voeg een deklaag aan elke put van een 24-putjesplaat en doseer 500 μL HFF-celoplossing aan elke put. Incubeer de plaat bij 37 ° C voor 3 4 d om de cellen te laten groeien tot confluent.
OPMERKING: Cellen uit een T25-fles zijn voldoende om zaad een 24-putjesplaat te geven. - Voeg 50 μL elektroporate parasietoplossing van stap 4.2.9 in een putje met een 24-putjesplaat met een deklaag die met confluente HFF-cellen wordt gecoördineerd. Breng de rest van de elektroporate parasietoplossing over in een T25-fles die met confluente HFF-cellen wordt gecoördineerd.
- Bepaal de efficiëntie van transfectie.
- Groei de cellen in de 24-putjesplaat gedurende 24 uurEn fixeer vervolgens de cellen (gastheercellen en parasieten) met 500 μl 4% formaldehyde om de expressie van Cas9-GFP door immunofluorescerende analyse (IFA) te controleren.
- Probeer de cellen met een anti-GFP antilichaam en een Toxoplasma specifiek antilichaam (zoals anti-TgALD) om de totale parasieten te labelen. Zie het antilichaam productblad voor de aanbevolen verdunning (meestal is 1: 1.000 voldoende voor IFA's). Als de antilichamen ongeconjugeerd zijn, gebruik dan twee verschillende secundaire antilichamen die zijn geconjugeerd met fluorescerende kleurstoffen om de primaire antilichamen te labelen.
- Let op de gelabelde cellen op een fluorescerende microscoop met filters die geschikt zijn voor de secundaire fluorescerende kleurstoffen. Verkrijg transfectie efficiëntie door het aantal GFP positieve parasieten te verdelen door het aantal totale parasieten.
OPMERKING: De twee antilichamen die gebruikt worden voor IFA zouden afkomstig zijn uit twee verschillende gastheersoorten, bijvoorbeeld door gebruik te maken van de combinatie van anti-GFP anti-GFP en konijn anti-TgALD.
- Bepaal de fVereiste van verdovingsweerstand bij getransfecteerde parasieten.
- Voor de getransfecteerde parasieten die in T25 flessen worden gekweekt, groeien ze voor 2-3 d tot natuurlijke uitkomst. Verzamel dan de parasieten, stompe naaldlichtcellen om intracellulaire parasieten vrij te maken en ze door filtratie te zuiveren door membranen met poriegrootte van 3 μm. Tel de parasieten met een hemocytometer om de dichtheid te schatten.
- Voeg gezuiverde parasieten toe in 6-putjes platen die met confluente HFF-cellen zaaien: voor de eerste rij (3 putjes) voeg 200 parasieten / put toe en groei ze in regelmatig D10 medium (2 ml / putje); Voeg voor de tweede rij 5000 parasieten / put toe en groei ze in D10 medium met 0,3 μM sinfungine.
- Zet de platen in een 5% CO 2 incubator en laat de parasieten bij 37 ° C 8-10 d groeien zonder verstoring om plaques te laten vormen. Bevestig de monsters met 70% ethanol (2 ml / putje) en vlek de monolaag met 0,1% kristalviolet (2 ml / putje). Was de putjes met water om te visualiserenDe plaques (clear zones) gevormd door parasieten groei.
OPMERKING: De negatieve controle moet op dezelfde manier verwerkt worden naast elkaar.
- Bereken de snelheid van CRISPR geïnduceerde sinfungine resistentie.
- Verkrijg het gemiddelde getal (X) van plaques van putten die geen geneesmiddel bevatten en bereken de parasiet levensvatbaarheid als X / 200. Verkrijg het gemiddelde getal (Y) van plaques uit putten die sinfungine bevatten om de snelheid van CRISPR-geïnduceerde sinfungine resistentie als volgt te berekenen:
Tabel van CRISPR geïnduceerde weerstand = 200 × Y / (5000 × X × transfectie-efficiëntie)
OPMERKING: Transfectie-efficiëntie is verkregen uit 4.3.2.
- Verkrijg het gemiddelde getal (X) van plaques van putten die geen geneesmiddel bevatten en bereken de parasiet levensvatbaarheid als X / 200. Verkrijg het gemiddelde getal (Y) van plaques uit putten die sinfungine bevatten om de snelheid van CRISPR-geïnduceerde sinfungine resistentie als volgt te berekenen:
- Zaad HFF-cellen aan dekglazen geplaatst in 24-putjes platen 3-4 d voor elektroporatie, zodat ze confluent zijn tegen de tijd om transfectie uit te voeren in 4.2.
- Onderzoek de indel mutaties geïnduceerd door CRISPR / Cas9
- Groei de geëxproporeerde parasieten uit sectie 4.2.9 in een T25-fles die met HFF-cellen is gekneed gedurende 2 d bij 37 ° C. Vervolgens vervang het medium met 5 ml D10 medium dat 0,3 μM sinfungine bevat (selectiemedium).
- Bewaar de parasieten in selectiemedium voor minstens 3 passages tot het resistente pool stabiel wordt (aangegeven door de afwezigheid van parasietgroei in de negatieve controlegroep, maar robuuste parasietgroei in de experimentele groep).
- Subclone het zenfungin resistente pool om klonale stammen te verkrijgen.
- Verzamel versuitgezette parasieten, zuiver door 3 μm membraanfiltratie en subklone in 96-putjes platen die met confluente HFF-cellen zaaien in 150 μl D10-medium. Vergroot de subcloning culturen in een CO 2 incubator bij 37 ° C voor 7 - 10 d zonder de platen te storen.
OPMERKING: Zie Protocol 4.4.2.1 Opmerking in het aanvullende bestand 1 .
- Verzamel versuitgezette parasieten, zuiver door 3 μm membraanfiltratie en subklone in 96-putjes platen die met confluente HFF-cellen zaaien in 150 μl D10-medium. Vergroot de subcloning culturen in een CO 2 incubator bij 37 ° C voor 7 - 10 d zonder de platen te storen.
- Controleer de 96-putjesplaten onder een omgekeerde fase-contrastmicroscoop om te zoeken naar putten die slechts één plaque bevatten. Merk dergelijke bronnen en breng vervolgens de cellen van elke put naar 24-putjes platen die met HFF-cellen gesneden zijn met behulp van een pipet.
- Wanneer 80-90% van de HFF-cellen in een put worden gelicht, oogst u de parasieten (ongeveer 500 μl) en passeer 50 μL parasietoplossing naar een nieuwe put om de spanning te behouden. Gebruik de rest (≈450 μL) om genomisch DNA te extraheren voor PCR amplificatie.
- Voor de genomische DNA-isolatie van het SNF- r- kloon pelleten de parasieten (kleine hoeveelheden HFF-celverontreiniging tolerant) bij 1000 xg gedurende 10 minuten. Was de gepelleteerde parasieten eens met fosfaatgebufferde zoutoplossing (PBS) en pellet ze opnieuw. Isoleren genomisch DNA uit gepelleteerde cellen met behulp van een commerciele kit of door kokend te maken. Resuspendeer parasieten in 50-100 μL PBS.
OPMERKING: Voer PCR uit om een fragment van het SNR1 gen te verkrijgen voor sequencing. Gebruik de volgende primers om het SNR1 locus 2 : SNR1-Amp-Fw: 5 'CCGACCACAA CAATTTTC en SNR1-Amp-Rv: 5'GACGTGATTCACTTTTTTACAGACAGAC te amplificeren. Gebruik hoogwaardige DNA-polymerasen. Versterk de WT locus voor controle doeleinden.
- Voor de genomische DNA-isolatie van het SNF- r- kloon pelleten de parasieten (kleine hoeveelheden HFF-celverontreiniging tolerant) bij 1000 xg gedurende 10 minuten. Was de gepelleteerde parasieten eens met fosfaatgebufferde zoutoplossing (PBS) en pellet ze opnieuw. Isoleren genomisch DNA uit gepelleteerde cellen met behulp van een commerciele kit of door kokend te maken. Resuspendeer parasieten in 50-100 μL PBS.
- Voer tHij PCR met 20 μl reactievolume en rijd het met het volgende programma: 98 ° C gedurende 1 min, gevolgd door 30 cycli van 98 ° C gedurende 10 s, 55 ° C gedurende 30 s en 72 ° C gedurende 2,5 min, gevolgd door Laatste verlenging gedurende 2 minuten bij 72 ° C.
OPMERKING: Volg de PCR-producten op met de volgende primers: SNR1-Seq1: 5 'GCC ACA TGC TTT AGC GTG, SNR1-Seq2: 5' TCC TCT CCA TCA CGG GTT GG, SNR1-Seq3: 5'GCA AGA GCC GCG TGA CG , SNR1-Seq4: 5 'CTC TCC CGC GGT CGA G, SNR1-Seq5: 5'GCA CCG TCC GCA AGC en SNR1-Seq6: 5'CGG GAA GGT GAA TCG TTC TTC. - Vergelijk de sequenties van SNR1 gen van sinten-resistente mutanten met die van de WT-stam met behulp van een sequentie-alignment tool.
OPMERKING: Zie aanvullend bestand 2 protocol 5 voor details over het gebruik van negatieve selectie op het SNR1 locus voor genetische complementatie of transgene stamconstructie .
- Groei de geëxproporeerde parasieten uit sectie 4.2.9 in een T25-fles die met HFF-cellen is gekneed gedurende 2 d bij 37 ° C. Vervolgens vervang het medium met 5 ml D10 medium dat 0,3 μM sinfungine bevat (selectiemedium).
Resultaten
Dit artikel schetst in detail verschillende methoden die achtereenvolgens gebruikt kunnen worden om een gen dat verantwoordelijk is voor resistentie tegen resistentie ( figuur 1 ) te identificeren. De 24 nageslacht van het ME49-FUDR r X VAND-SNF r kruis werd beoordeeld op resistentie tegen de drugseinfungin zoals beschreven in Protocol 1. Met behulp van de genetische kaart en het SNF r fenotype van de nakomelingen werd een QTL scan uitgevoerd in R / Qtl - Protocol 2 ( Figuur 2 ). Dit resulteerde in een significante piek op chromosoom IX dat ongeveer 1 Mbp bedroeg. Het is in deze regio dat het causale mutatie zich bevindt.
Om de causale mutatie te identificeren, leest WGS van de nakomelingen die zijn afgestemd op het referentiegenoom van het VAND-SNF met Bowtie2 - Protocol 3.1, werden SNPs genaamd VarScan mpileup2snp - Protocol 3.2 en de QTL locus in het VAND genoom werd geïdentificeerd met behulp van MUMmer - ProtocOl 3.3. Nageslacht SNP's binnen de QTL locus werden geëxtraheerd en gescand voor een patroon waar de SNF r nageslacht een SNP heeft en de SNF 's niet, wat haalbaar is omdat nageslacht SNP's werden verkregen in vergelijking met het referentiegenoom van het VAND-SNF s ( Figuur 3 ) . Slechts één SNP komt overeen met dit patroon dat resulteert in een vroegtijdige codon in een vermoedelijk aminozuurtransportgener gen genaamd SNR1 .
Bevestiging dat SNR1 het SNF r weerstand gen is, werd uitgevoerd met behulp van het CRISPR / Cas9 systeem. Een nieuw CRISPR / Cas9 plasmide dat is ontworpen voor T. gondii genbewerking werd gemaakt met een gRNA dat het SNR1- gen richtte in de buurt van de SNF r- mutatie die in de nakomelingen werd geïdentificeerd - Protocol 4 ( Figuur 4A ). Het SNR1- targetende CRISPR / Cas9 plasmide werd geëproporeerd in een SNF s WT parasiet stam en resistente mutanten werden verkregen wanneer cultusGewijd in 0,3 μM sinfungine. Er werden geen SNF r parasieten verkregen bij elektroporatie met het UPRT targeting CRISPR / Cas9 plasmide. Verscheidene SNF r CRISPR mutanten werden gekloneerd en de regio rond het SNR1 gRNA doel werd sequentiebepalkt. Elke mutant had een indel dat de coderende sequentie van het SNR1- gen verstoorde ( Figuur 4B ). Deze methode kan ook gebruikt worden om een targeting construct in de SNR1 locus te plaatsen via NHEJ ( Figuur 5), of door HR ( Figuur 6 ) - Aanvullend Bestand 2 .
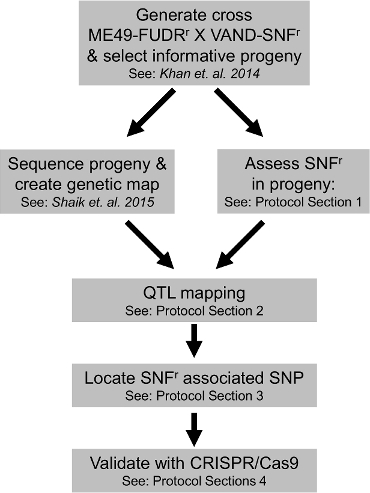
Figuur 1: Schematische werkstroom voor experimenten in de protocollen. De belangrijkste stappen bij het identificeren en bevestigen van het SNF r- gen met behulp van het ME49-FUDR r X VAND-SNF r kruis worden getoond met verwijzing naar de desbetreffende protocollen die zijn omschreven in tZijn artikel. Klik hier om een grotere versie van deze figuur te bekijken.
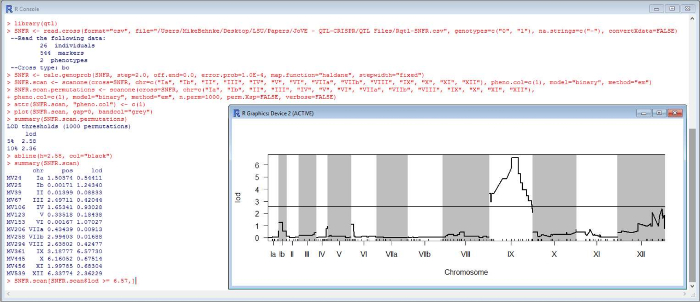
Figuur 2: R / qtl Commando's om QTL Scan op het SNF r Phenotype uit te voeren. De opdrachten zoals beschreven in Protocol 2 werden uitgevoerd in R met behulp van het qtl-pakket. Representatieve opdrachten en plot worden getoond. Klik hier om een grotere versie van deze figuur te bekijken.
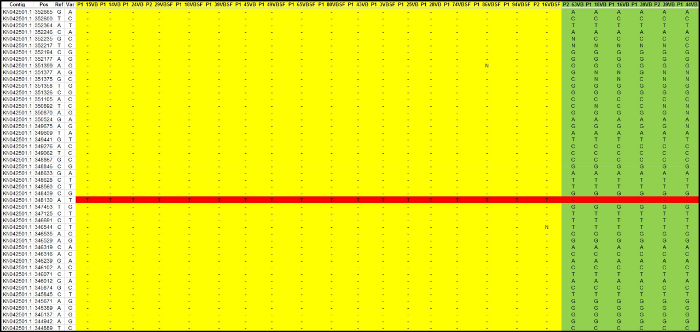
Figuur 3: Plaatsing van het oorzakelijk SNP. De nakomelingen die WGS leest, werden afgestemd op het referentiegenoom van het VAND-SNF met Bowtie 2, SNPs werden met VarScan genaamd en de corresponderende Ing VAND QTL locus geïdentificeerd met MUMmer. SNP's in de QTL locus werden geïmporteerd in een spreadsheet en het causale SNP werd geïdentificeerd. SNF r nageslacht (geel), SNF 's nageslacht (groen), SNF r SNP (rood) (zie Gegevensbestand 3 ). Klik hier om een grotere versie van deze figuur te bekijken.
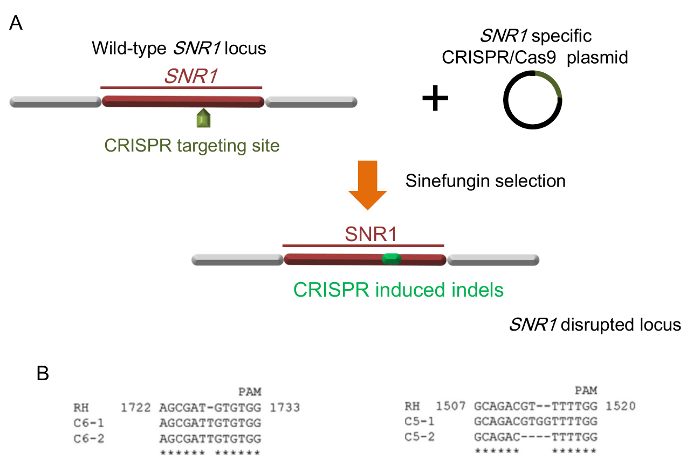
Figuur 4: Bevestiging van SNR1 als SNF gen met CRISPR / Cas9. ( A ) CRISPR / Cas9 geïnduceerde indel mutaties (groen) in de SNR1 locus. ( B ) Representatieve indelen in SNR1 veroorzaakt door twee verschillende SNR1 specifieke CRISPR plasmiden (respectievelijk C5 en C6). RH is de WT stam en C5 en C6 zijn SNF r mutanten. (B is uit referentie genomenS = "xref"> 2). Klik hier om een grotere versie van deze figuur te bekijken.
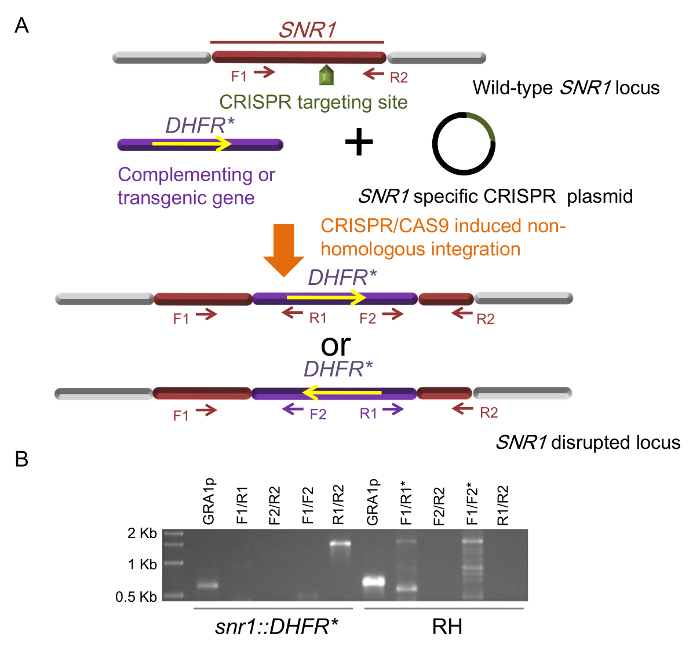
Figuur 5. Insertieve Mutagenese met behulp van CRISPR / Cas9. ( A ) Invoeging van complementaire of transgene genen in het SNR1 locus door CRISPR / Cas9 gemedieerde site-specifieke integratie. Twee mogelijke oriëntaties van het ingevoegde DHFR * mini-gen en de primers gebruikt voor identificatie, F1 / 2 en R1 / 2 vertegenwoordigen de primingplaatsen van oligo's die in diagnostische PCR's worden gebruikt. ( B ) Diagnostische PCR's van een snr1 :: DHFR * kloon, RH wordt gebruikt als een WT controle. PCR van de GRA1p is opgenomen als een controle die de kwaliteit van genomisch DNA controleert als sjablonen. Sterretjes geven rijstroken aan met onspecifieke banden (figuur 5B is uit verwijzing genomenCe 2 ). Klik hier om een grotere versie van deze figuur te bekijken.
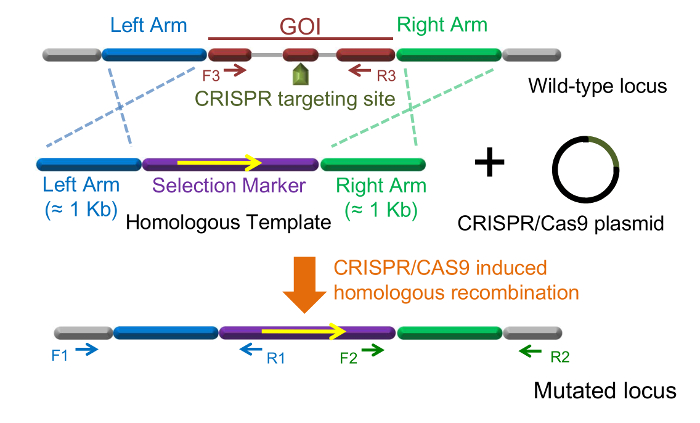
Figuur 6: Gene Knockout met CRISPR / Cas9. Een klassiek ontwerp voor CRISPR / Cas9 gemedieerde homologe genvervanging in T. gondii . De oriëntatie van ingevoegd transgeen is in dit geval opgelost. F1 / R1, F2 / R2 en F3 / R3 vertegenwoordigen de primingplaatsen van oligo's die in diagnostische PCR's worden gebruikt. Klik hier om een grotere versie van deze figuur te bekijken.
Gegevensbestand 1: ME49-FUDR r X VAND-SNF r Kruisbestand fOf gebruik in R / qtl, "csv" Format. Een .csv-bestand dat in R / qtl kan worden geladen met de optie = "csv". Klik hier om dit bestand te downloaden.
Gegevensbestand 2: (ctrl txt, genotype txt, markerpos.txt, mname.txt, phenonames.txt en phenos.txt). ME49-FUDR r X VAND-SNF r Kruisbestanden voor gebruik in R / qtl, "gary" Format. Zes .txt bestanden die kunnen worden geladen in R / qtl met de optie = "gary" optie. Klik hier om dit bestand te downloaden.
Gegevensbestand 3. Spreadsheet met nageslacht SNP's over de SNF r QTL Locus. Bevat één werkblad met de nageslacht SNPs, en een tweede werkblad met de fenotypische gegevens van de ouders en nageslacht van het kruis. Klik hier om dit bestand te downloaden.
Aanvullend Bestand 1: Aanvullende Protocol Details. Klik hier om dit bestand te downloaden.
Aanvullend Bestand 2: Protocol 5 - Gebruik van Negatieve Selectie op de SNR1 Locus voor Genetische Complementatie of Transgene Stamconstructie . Klik hier om dit bestand te downloaden.
Discussie
Deze protocollen presenteren verschillende methoden die, wanneer gecombineerd, de identificatie van een geneesmiddelweerstandgen in T. gondii mogelijk maken . Twee in het bijzonder waren integraal voor het project, de relatief gekruide methode van QTL mapping en de recent ontwikkelde methode van CRISPR / Cas9 gen editing. Lander en Botstein publiceerden hun invloedrijke papier in 1989 en tonen QTL-mapping die genetische loci met fenotypen 36 correleren. Meer recent in 2012 beschreef Dounda en Charpentier het CRISPR / Cas9-bewerkingssysteem in Streptococcus pyogenes 22 die snel in verschillende modellen werd aangepast als een genetisch instrument, waaronder T. gondii 13 , 17 . Beide methoden waren hier nuttig, waar QTL-mapping de locus definieerde die de resistentiemutatie van de drug bevat die uiteindelijk werd geïdentificeerd met behulp van WGS-gebaseerde SNP-detectie, en CRISPR / Cas9-editing leverde mij de Ans om te bevestigen dat SNR1 het genotype drug resistentie gen is.
De ME49-FUDR r X VAND-SNF r kruis 8 werd oorspronkelijk ontwikkeld om een virulentie fenotype 19 te ondervragen, maar de ouderlijke stammen bleken ook een additioneel fenotypisch verschil te hebben waarvoor het causaal gen niet bekend was, de ontstekingsweerstand in de VAND-ouder. Dit wijst op een voordeel van kruisen doordat ze opnieuw kunnen worden herhaald wanneer er extra fenotypische verschillen in de ouders worden waargenomen. Dit was het geval voor een ander Toxoplasma kruis, type 2 x type 3, waar meerdere genen betrokken bij virulentie werden gevonden door meerdere fenotypes 37 , 38 , 39 , 40 te mappen. Tot op heden zijn vier verschillende T. gondii crosses beschreven en gebruikt om genen die verantwoordelijk zijn voor fenotypen te plannenSs = "xref"> 8 , 37 , 41 , 42 , die alle mogelijkheden hebben om opnieuw te gebruiken om nieuwe fenotypes te plannen waarvoor de genetische basis onbekend is. Langs deze lijnen zijn de genen voor 62 T. gondii stammen die de bekende wereldwijde genetische diversiteit vertegenwoordigen, gehersequentieerd 43 . Er kunnen nieuwe kruisingen worden gemaakt van dit zwembad voor stammen die verschillen in interessante fenotypen. Het hebben van de voordelen van QTL-mapping is uitgesproken, dat het genereren van een kruis geen kleine onderneming is. Er zijn andere methoden die kunnen worden gebruikt om causale genen te identificeren. Een krachtige techniek maakt gebruik van chemische mutagenese om mutanten te creëren die voor fenotypen kunnen worden gescreend. Om het causale gen te vinden kunnen mutanten complementair zijn met kosmide bibliotheken 44 of genoom resequencing methoden kunnen worden gebruikt om de causale mutatie 45 te vinden . Voor moZie hiervoor twee JoVE-artikelen van Coleman et al. En Walwyn et al. Dat beschrijven deze benaderingen 46 , 47 .
Veel van de stappen die leiden tot de identificatie van de causale SNF r mutatie (Protocols 2 en 3) zijn gebaseerd op berekeningsmethoden die worden uitgevoerd met software die vrij beschikbaar is voor academisch gebruik. Gedetailleerde commando's voor elke stap worden verstrekt en als de run met de juiste bestanden wordt uitgevoerd, kan de gebruiker de datasets die nodig zijn om de causale SNF r SNP te vinden opnieuw maken. Houd er rekening mee dat sommige van de syntaxis in de commando's verwijzen naar bestandsnamen of directorystructuur ($ PATH) die kan worden aangepast aan de gebruikers voorkeur. Hoewel de commando's die hier gegeven worden, zeker niet uitwerken hoe u een kruis kunt analyseren met QTL-analyse en WGS-gebaseerde SNP-identificatie, zijn ze uitgebreid genoeg om het experiment te herhalen dat in dit artikel wordt beschreven en moet de gebruiker worden m Erts bekend zijn met hoe deze benaderingen worden gebruikt in een stap voor stap mode.
Hoewel QTL mapping en WGS sequentie gebaseerde SNP detectie voldoende waren om een kandidaat SNF r gen te identificeren, zijn aanvullende experimenten nodig om zijn rol in drug resistentie te bevestigen. Dit kan overtuigend getoond worden door middel van genafbreking of knock-out technieken, die beide kunnen worden bereikt met behulp van CRISPR / Cas9 genbewerking. Gedetailleerde methoden voor het gebruik van CRISPR / Cas9 om indel mutaties te genereren of transgene constructen in een doelgen in T. gondii in te voeren, worden gegeven. De targeting specificiteit die CRISPR / Cas9 biedt, verhoogt de efficiëntie van genbewerking over traditionele methodes. Ook deze verhoogde efficiëntie heeft het mogelijk gemaakt om niet-laboratorium aangepaste stammen te gebruiken voor genetische studies die eerder moeilijk waren om 13 te wijzigen. Alhoewel CRISPR / Cas9 in zijn kinderschool al is gebruikt om genverstoringen te veroorzakenLass = "xref"> 2 , 13 , 17 , 18 , 48 , 49 , merk genen 17 en maak gene knockouts 16 , 19 , 50 , 51 , 52 , 53 , 54 in T. gondii , veelbelovend om een handig hulpmiddel te zijn Voor veel andere studies in de toekomst.
De ontdekking dat de SNR1- inactivatie leidt tot sinfungine resistentie maakt de SNR1 locus een veelbelovende plaats voor transgene insertie of genetische complementatie. Om het succes van het gebruik van CRISPR / Cas9 gemedieerde gen targeting te optimaliseren om de integratie van transgen in het SNR1 locus te leiden, dienen de volgende aspecten te worden overwogenRood tijdens het experimentele ontwerp. Ten eerste wordt een selectiemarkering aanbevolen om in het transgene constructie opgenomen te worden om de efficiëntie van de spanconstructie te verhogen. Als er een selectie marker is opgenomen, kunnen zowel positieve als negatieve selectie worden gebruikt, waardoor bijna 100% van de dubbel geselecteerde parasieten transgenic zijn met de GOI die op de SNR1 locus is geïntegreerd. Als het transgene construct echter geen aanvullende selecteerbare eigenschappen bevat en afhankelijk is van negatieve selectie op het SNR1 locus, hangt het efficiëntie van succesvolle transgenese grotendeels af van de efficiëntie van cotransfectie van het CRISPR-plasmide en het transgene construct.
Ten tweede, hoewel CRISPR / Cas9 gemedieerde site-specifieke integratie van een niet-homologe DNA-fragment vaak gebruikt wordt voor complementatie en transgenese, moet opgemerkt worden dat de oriëntatie van insertie niet kan worden gewaarborgd in zulke gevallen als beide richtingen mogelijk zijn. Dit kan problemen veroorzakenMs voor sommige toepassingen. Bijvoorbeeld, om een mutant aan te vullen met verschillende gen allelen, is het moeilijk om ervoor te zorgen dat alle allelen in dezelfde oriëntatie worden ingevoegd, en afwijkingen in oriëntatie kunnen expressieverschillen veroorzaken. Voor dit type applicatie worden DNA-constructies met sequenties die homologe zijn aan de SNR1 locus, aanbevolen, die de juiste integratie oriëntatie zullen aandrijven ( Figuur 6 ).
Ten derde, tijdens transfectie, is de verhouding tussen het CRISPR-plasmide en het transgene DNA-molecuul kritisch voor succesvolle transgene stamconstructie. Deze verhouding moet worden aangepast volgens de selectie strategieën. De volgende richtlijnen worden aanbevolen: 1) Als het transgene construct een geneesmiddelbestendige merker bevat en het bijbehorende geneesmiddel is de enige selectie die wordt gebruikt om transgene parasieten te genereren, dwz sinfungine wordt niet gebruikt, wordt de voorgestelde molverhouding tussen het transgene construct en het CRISPR-plasmaId is 1: 5. Het gebruik van meer CRISPR-plasmide verhoogt in dit geval de kans dat parasieten die het transgene construct ontvangen, ook het CRISPR-plasmide ontvangen. Daarom zijn de medicijnbestendige parasieten waarschijnlijker de markering op de CRISPR-targeting site geplaatst. Als de verhouding omgekeerd wordt, krijgen de meeste parasieten die het transgene construct ontvangen, het CRISPR-plasmide niet. Als gevolg daarvan krijgen de overgrote meerderheid van geneesmiddelbestendige parasieten het transgene construct door willekeurige integratie die niet verband houdt met CRISPR / CAS9-gemedieerde plaatsspecifieke insertie. 2) Als het transgene construct een geneesmiddelbestendige merker bevat en het overeenkomstige geneesmiddel wordt gebruikt samen met sinfungine om transgene parasieten te selecteren, is de voorgestelde molverhouding tussen het transgene construct en het CRISPR-plasmide 1: 1. Deze strategie biedt de hoogste efficiëntie van transgene stamconstructie. 3) Als het transgene construct geen selecteerbare maker bevat, vertrouwt u op negatieve selectieDoor alleen sinfungine om transgene parasieten te verkrijgen, is de voorgestelde molverhouding tussen het transgene construct en het CRISPR-plasmide 5: 1. De reden voor dit ontwerp is hetzelfde als in de eerste richtlijn hierboven. Aangezien zowel pyrimethamine als sinfungine werden toegepast voor selectie in protocol 5, werd de verhouding tussen DHFR * mini-gen en het SNR1- targetende CRISPR-plasmide ingesteld op 1: 1.
Samen hebben de hier beschreven methodes een detailniveau dat niet mogelijk was in de originele publicatie die SNR1 2 identificeerde. Deze protocollen; Specifiek, de syntax van de opdrachtregel, de opeenvolgende indeling van de gebruikte programma's en het gebruik van CRISPR / Cas9 dienen toekomstige inspanningen te helpen om nieuwe genen die verantwoordelijk zijn voor fenotypes te identificeren.
Openbaarmakingen
De auteurs verklaren dat ze geen concurrerende financiële belangen hebben.
Dankbetuigingen
We willen graag L. David Sibley en Asis Khan bedanken voor hun bijdrage aan de oorspronkelijke publicatie waarop deze protocollen zijn gebaseerd. Dit werk werd gefinancierd door National Institutes of Health subsidie AI108721.
Materialen
```html
```
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| T25 flasks | Corning | 430639 | |
| Human Foreskin Fibroblasts (HFF) | ATCC | SCRC-1041 | |
| T. gondii ME49 strain | ATCC | 50840 | |
| T. gondiiVAND strain | ATCC | PRA-344 | |
| DMEM (No Sodium Bicarbonate) | Life Sciences | 12800017 | |
| Sodium Bicarbonate | Sigma Aldrich | S5761 | |
| HEPES | Sigma Aldrich | H3375 | |
| Fetal Bovine Serum (FBS) Premium Grade | VWR International | 97068-085 | |
| L-Glutamine 200 mM | Sigma Aldrich | G7513 | |
| Gentamicin (10 mg/mL) | Life Technologies | 15710064 | |
| Cell Scraper for Flasks | VWR International | 10062-904 | |
| Syringe 10 mL | BD | 309604 | |
| Blunt needles 22 G x 1" | BRICO Products | BN2210 | |
| Nuclepore Filter 3.0 µm, 25 mm | GE Healthcare | 110612 | |
| Swin-Lok Filter Holder 25 mm | GE Healthcare | 420200 | |
| Hemacytometer | Propper MFG | 90001 | |
| Sinefungin | Enzo Life Sciences | 380-070-M001 | |
| R | The R Foundation | https://www.r-project.org/ | |
| J/qtl | The Churchill Group | http://churchill.jax.org/software/jqtl.shtml | |
| Bowtie2 | John Hopkins University | http://bowtie-bio.sourceforge.net/bowtie2/index.shtml | |
| NCBI SRA Toolkit | NCBI | http://www.ncbi.nlm.nih.gov/Traces/sra/?view=toolkit_doc | |
| SAMtools | Wellcome Trust Sanger Institute | http://www.htslib.org/ | |
| VarScan | Washington University, St Louis | http://varscan.sourceforge.net/ | |
| MUMmer | JCVI & Univ Hamburg | http://mummer.sourceforge.net/ | |
| pSAG1::CAS9-U6::sgUPRT | Addgene | Plasmid #54467 | T. gondii CRISPR plasmid to cut the UPRT gene |
| pSAG1::CAS9-U6::sg290860-6 | Addgene | Plasmid #59855 | T. gondii CRISPR plasmid to cut the TG*_290860 SNR1 gene |
| pUPRT::DHFR-D | Addgene | Plasmid #58528 | Template for DHFR* mini gene |
| Q5 Site-Directed Mutagenesis Kit | New England Biolabs | E0552S | |
| QIAprep Spin Miniprep Kit | QIAGEN | 27106 | |
| NanoDrop 2000 | Thermo Scientific | ND-2000 | |
| LB Broth | Fisher Scientific | DF0446-07-5 | |
| Potassium chloride | Sigma Aldrich | P9541 | |
| Calcium chloride | Sigma Aldrich | 746495 | |
| Potassium phosphate monobasic | Sigma Aldrich | P9791 | |
| Potassium phosphate dibasic | Sigma Aldrich | P5504 | |
| EDTA | Sigma Aldrich | E5134 | |
| Magnesium chloride | Sigma Aldrich | M1028 | |
| Adenosine triposhpate (ATP) | Sigma Aldrich | A6419 | |
| L-glutathione (GSH) | Sigma Aldrich | G4251 | |
| ECM 830 Electroporation System | BTX | 45-0002 | |
| Electroporation Cuvette 4 mm | Harvard Apparatus | 45-0126 | |
| Crytal Violet | Alfa Aesar | B21932-14 | |
| 6-well TC plate | Corning | 353046 | |
| 24-well TC plate | Corning | 353935 | |
| Cover glass 12 mm round | VWR International | 89015-724 | |
| 96-well TC plate | Corning | 353075 | |
| Gibson Assembly Cloning Kit (Multi-fragment) | New England Biolabs | E5510S | |
| Q5 High-Fidelity Polymerase | New England Biolabs | M0491S | |
| Pyrimethamine | TCI AMERICA | P2037-1G | Gebruik voorzichtigheid bij het gebruik van pyrimethamine-resistente parasieten - zie Protocol |
Referenties
- Dubey, J. P. The history of Toxoplasma gondii--the first 100 years. J Eukaryot Microbiol. 55 (6), 467-475 (2008).
- Behnke, M. S., Khan, A., Sibley, L. D. Genetic Mapping Reveals that Sinefungin Resistance in Toxoplasma gondii Is Controlled by a Putative Amino Acid Transporter Locus That Can Be Used as a Negative Selectable Marker. Eukaryot Cell. 14 (2), 140-148 (2015).
- Dubey, J. P. History of the discovery of the life cycle of Toxoplasma gondii. Int J Parasitol. 39 (8), 877-882 (2009).
- Pfefferkorn, L. C., Pfefferkorn, E. R. Toxoplasma gondii: genetic recombination between drug resistant mutants. Exp Parasitol. 50 (3), 305-316 (1980).
- Donald, R. G., Roos, D. S. Insertional mutagenesis and marker rescue in a protozoan parasite: cloning of the uracil phosphoribosyltransferase locus from Toxoplasma gondii. Proc Natl Acad Sci U S A. 92 (12), 5749-5753 (1995).
- Sullivan, W. J. Jr Insertional tagging of at least two loci associated with resistance to adenine arabinoside in Toxoplasma gondii, and cloning of the adenosine kinase locus. Mol Biochem Parasitol. 103 (1), 1-14 (1999).
- Khan, A. Composite genome map and recombination parameters derived from three archetypal lineages of Toxoplasma gondii. Nucleic Acids Res. 33 (9), 2980-2992 (2005).
- Khan, A. NextGen sequencing reveals short double crossovers contribute disproportionately to genetic diversity in Toxoplasma gondii. BMC Genomics. 15 (1), 1168(2014).
- Shaik, J. S., Khan, A., Beverley, S. M., Sibley, L. REDHORSE-REcombination and Double crossover detection in Haploid Organisms using next-geneRation SEquencing data. BMC Genomics. 16 (1), 133(2015).
- Arends, D., Prins, P., Jansen, R. C., Broman, K. W. R/qtl: high-throughput multiple QTL mapping. Bioinformatics. 26 (23), 2990-2992 (2010).
- Langmead, B., Salzberg, S. L. Fast gapped-read alignment with Bowtie 2. Nat Methods. 9 (4), 357-359 (2012).
- Koboldt, D. C. VarScan 2: somatic mutation and copy number alteration discovery in cancer by exome sequencing. Genome Res. 22 (3), 568-576 (2012).
- Shen, B., Brown, K. M., Lee, T. D., Sibley, L. D. Efficient gene disruption in diverse strains of Toxoplasma gondii using CRISPR/CAS9. MBio. 5 (3), e01114(2014).
- Fox, B. A., Ristuccia, J. G., Gigley, J. P., Bzik, D. J. Efficient gene replacements in Toxoplasma gondii strains deficient for nonhomologous end joining. Eukaryot Cell. 8 (4), 520-529 (2009).
- Huynh, M. H., Carruthers, V. B. Tagging of endogenous genes in a Toxoplasma gondii strain lacking Ku80. Eukaryot Cell. 8 (4), 530-539 (2009).
- Wang, J. L. The Past, Present, and Future of Genetic Manipulation in Toxoplasma gondii. Trends Parasitol. , (2016).
- Sidik, S. M., Hackett, C. G., Tran, F., Westwood, N. J., Lourido, S. Efficient genome engineering of Toxoplasma gondii using CRISPR/Cas9. PLoS One. 9 (6), e100450(2014).
- Sugi, T., Kato, K., Weiss, L. M. An improved method for introducing site-directed point mutation into the Toxoplasma gondii genome using CRISPR/Cas9. Parasitol Int. , (2016).
- Behnke, M. S. Rhoptry Proteins ROP5 and ROP18 Are Major Murine Virulence Factors in Genetically Divergent South American Strains of Toxoplasma gondii. PLoS Genet. 11 (8), e1005434(2015).
- Barrangou, R. CRISPR provides acquired resistance against viruses in prokaryotes. Science. 315 (5819), 1709-1712 (2007).
- Garneau, J. E. The CRISPR/Cas bacterial immune system cleaves bacteriophage and plasmid DNA. Nature. 468, 67-71 (2010).
- Jinek, M. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 337 (6096), 816-821 (2012).
- Cong, L. Multiplex genome engineering using CRISPR/Cas systems. Science. 339 (6121), 819-823 (2013).
- Mali, P. RNA-guided human genome engineering via Cas9. Science. 339 (6121), 823-826 (2013).
- Jiang, F., Zhou, K., Ma, L., Gressel, S., Doudna, J. A. STRUCTURAL BIOLOGY. A Cas9-guide RNA complex preorganized for target DNA recognition. Science. 348 (6242), 1477-1481 (2015).
- Nishimasu, H. Crystal Structure of Staphylococcus aureus Cas9. Cell. 162 (5), 1113-1126 (2015).
- The R Project for Statistical Computing. , Available from: https://www.r-project.org (2016).
- Smith, R., Sheppard, K., DiPetrillo, K., Churchill, G. Quantitative trait locus analysis using J/qtl. Methods Mol Biol. 573, 175-188 (2009).
- The Churchill Group. , J/qtl. http://churchill.jax.org/software/jqtl.shtml (2013).
- Li, H. The Sequence Alignment/Map format and SAMtools. Bioinformatics. 25 (16), 2078-2079 (2009).
- Kurtz, S. Versatile and open software for comparing large genomes. Genome Biol. 5 (2), (2004).
- Gajria, B. ToxoDB: an integrated Toxoplasma gondii database resource. Nucleic Acids Res. 36 (Database issue), D553-D556 (2008).
- Heigwer, F., Kerr, G., Boutros, M. E-CRISP: fast CRISPR target site identification. Nat Methods. 11 (2), 122-123 (2014).
- Roos, D. S. Molecular genetic tools for the identification and analysis of drug targets in Toxoplasma gondii. Curr Top Microbiol Immunol. 219, 247-259 (1996).
- Soldati, D., Boothroyd, J. C. Transient transfection and expression in the obligate intracellular parasite Toxoplasma gondii. Science. 260 (5106), 349-352 (1993).
- Lander, E. S., Botstein, D. Mapping mendelian factors underlying quantitative traits using RFLP linkage maps. Genetics. 121 (1), 185-199 (1989).
- Saeij, J. P. Polymorphic secreted kinases are key virulence factors in toxoplasmosis. Science. 314 (5806), 1780-1783 (2006).
- Saeij, J. P. Toxoplasma co-opts host gene expression by injection of a polymorphic kinase homologue. Nature. 445 (7125), 324-327 (2007).
- Rosowski, E. E. Strain-specific activation of the NF-kappaB pathway by GRA15, a novel Toxoplasma gondii dense granule protein. J Exp Med. 208 (1), 195-212 (2011).
- Reese, M. L., Zeiner, G. M., Saeij, J. P., Boothroyd, J. C., Boyle, J. P. Polymorphic family of injected pseudokinases is paramount in Toxoplasma virulence. Proc Natl Acad Sci U S A. 108 (23), 9625-9630 (2011).
- Taylor, S. A secreted serine-threonine kinase determines virulence in the eukaryotic pathogen Toxoplasma gondii. Science. 314 (5806), 1776-1780 (2006).
- Behnke, M. S. Virulence differences in Toxoplasma mediated by amplification of a family of polymorphic pseudokinases. Proc Natl Acad Sci U S A. 108 (23), 9631-9636 (2011).
- Lorenzi, H. Local admixture of amplified and diversified secreted pathogenesis determinants shapes mosaic Toxoplasma gondii genomes. Nat Commun. 7, 10147(2016).
- Gubbels, M. J. Forward genetic analysis of the apicomplexan cell division cycle in Toxoplasma gondii. PLoS Pathog. 4 (2), e36(2008).
- Farrell, A. A DOC2 protein identified by mutational profiling is essential for apicomplexan parasite exocytosis. Science. 335 (6065), 218-221 (2012).
- Coleman, B. I., Gubbels, M. J. A genetic screen to isolate Toxoplasma gondii host-cell egress mutants. J Vis Exp. (60), (2012).
- Walwyn, O. Forward genetics screens using macrophages to identify Toxoplasma gondii genes important for resistance to IFN-gamma-dependent cell autonomous immunity. J Vis Exp. (97), (2015).
- Rugarabamu, G., Marq, J. B., Guerin, A., Lebrun, M., Soldati-Favre, D. Distinct contribution of Toxoplasma gondii rhomboid proteases 4 and 5 to micronemal protein protease 1 activity during invasion. Mol Microbiol. 97 (2), 244-262 (2015).
- Varberg, J. M., Padgett, L. R., Arrizabalaga, G., Sullivan, W. J. Jr TgATAT-Mediated alpha-Tubulin Acetylation Is Required for Division of the Protozoan Parasite Toxoplasma gondii. mSphere. 1 (1), (2016).
- Zheng, J., Jia, H., Zheng, Y. Knockout of leucine aminopeptidase in Toxoplasma gondii using CRISPR/Cas9. Int J Parasitol. 45 (2-3), 141-148 (2015).
- Long, S., Wang, Q., Sibley, L. D. Analysis of Noncanonical Calcium-Dependent Protein Kinases in Toxoplasma gondii by Targeted Gene Deletion Using CRISPR/Cas9. Infect Immun. 84 (5), 1262-1273 (2016).
- Wang, K. Identification of Novel O-Linked Glycosylated Toxoplasma Proteins by Vicia villosa Lectin Chromatography. PLoS One. 11 (3), e0150561(2016).
- Yang, M., Zheng, J., Jia, H., Song, M. Functional characterization of X-prolyl aminopeptidase from Toxoplasma gondii. Parasitology. , 1-7 (2016).
- Zhang, W. Analysis of the virulence determination mechanisms in a local Toxoplasma strain (T.gHB1) isolated from central China. Parasitol Res. , (2016).
Herprints en machtigingen
