Een protocol voor de studie van desensibilisatie en gevoeligheid herstel van rivierkreeft fotoreceptoren als een functie van de circadiane tijd wordt gepresenteerd.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Desensibilisatie en herstel van de kleurplaatjes bij de afgifte van een licht stimulus
In dit artikel
Samenvatting
Samenvatting
Een methode voor het bestuderen van desensibilisatie en herstel van rivierkreeft fotoreceptoren wordt gepresenteerd. We voerden intracellulaire elektrische opnames van fotoreceptor cellen in geïsoleerde oogsprieten met behulp van de discontinue single-elektrode-geschakelde voltage-clamp configuratie. Ten eerste, met een scheermesje maakten we een opening in het rughoorn vlies om toegang te krijgen tot het netvlies. Daarna, we ingebracht een glaselektrode door de opening, en gepenetreerd een cel zoals gerapporteerd door de opname van een negatief potentieel. Membraanpotentiaal werd geklemd op het rust potentieel van de photoreceptor en er werd een licht puls toegepast om stromingen te activeren. Ten slotte werd het twee Light-Flash protocol gebruikt om de huidige desensibilisatie en het herstel te meten. De eerste lichtflits activeert, na een vertragingsperiode, de transductie Ionische stroom, die na het bereiken van een piek amplitude vervalt naar een ongevoelig staat; de tweede flitser, toegepast met wisselende tijdsintervallen, beoordeelt de toestand van de lichtgeactiveerde conductiviteit. Om de lichtopgewekt stroom te karakteriseren, werden drie parameters gemeten: 1) latentie (de tijd die is verstreken tussen de lichtflits levering en het moment waarop de stroom 10% van de maximale waarde bereikt); 2) piekstroom; en 3) desensibilisatie tijdconstante (exponentiële tijdconstante van de huidige verval fase). Alle parameters worden beïnvloed door de eerste puls.
Om te kwantificeren herstel van desensibilisatie, de verhouding P2/P1 werd gebruikt versus tijd tussen pulsen. P1 is de piekstroom die wordt opgeroepen door de eerste licht puls, en P2 is de piekstroom die wordt opgeroepen door de tweede puls. Deze gegevens werden op een som van exponentiële functies gemonteerd. Tot slot, deze metingen werden uitgevoerd als functie van de circadiane tijd.
Inleiding
Om als een visuele stimulans te worden beschouwd, moet licht dat de ogen bereikt, worden opgenomen in een elektrisch signaal. Vandaar, in alle visuele organismen, licht activeert een transductie Ion-Current, die op zijn beurt produceert een verandering in het membraan potentieel van fotoreceptor cellen, de zogenaamde receptor potentieel. Hierdoor is de lichtgevoeligheid van het oog voornamelijk afhankelijk van de toestand van de licht geactiveerde geleiding, die ofwel beschikbaar is om te worden geactiveerd of ongevoelig.
In rivierkreeft photoreceptors activeert licht een langzame, voorbijgaande, Ionische stroom1. Bij verlichting ontstaat de transductie stroom na een vertraging of latentie voordat het maximum bereikt wordt; daarna vervalt het, als de transductie kanalen vallen in een ongevoelig toestand waarin ze niet reageren op verdere licht stimulus2. Dat is, licht, in aanvulling op het activeren van de transductie huidige verantwoordelijk van het gezichtsvermogen, ook induceert een voorbijgaande verlagen van de gevoeligheid van fotoreceptor cellen. Desensibilisatie kan een algemeen beschermingsmechanisme vormen tegen overmatige blootstelling aan een adequate stimulans. De gevoeligheid van het oog voor licht wordt hersteld naarmate de transductie geleiding herstelt van desensibilisatie.
Intracellulaire opname is een nuttige techniek voor het meten van elektrische activiteit van prikkelbaar cellen3,4,5,6,7,8. Hoewel de intracellulaire opname minder frequent is geworden met de opkomst van de patch-clamp techniek9, het is nog steeds een gemakkelijke benadering wanneer cellen moeilijk te isoleren zijn, of een geometrie presenteren die de vorming van de pleister-span Giga-Seals moeilijk maakt (d.w.z.afdichtingen of nauwe contacten tussen de patch-elektrode en membranen met elektrische weerstand van de orde van 109Ohm). Voorbeelden van deze laatste zijn spermacellen10 en de fotoreceptor cellen hierin bestudeerd. In onze ervaring zijn Procambarus clarkii fotoreceptoren moeilijk te isoleren en te behouden in de primaire cultuur; Daarnaast zijn het dunne hengels die het moeilijk maken om de Giga-Seal vorming te realiseren. In intracellulaire opnames wordt een scherpe elektrode gevorderd in een cel die door het omringende weefsel op zijn plaats wordt gehouden. De elektrode wordt geknipt door de High-Speed schakelcircuits van de versterker, zodat de stroom wordt bemonsterd tussen Spanningspulsen. Deze modus staat bekend als discontinu spannings klem met één elektrode (dSEVC-modus)11. De hoge weerstand (kleine opening) van de elektrode belemmert de diffusie-uitwisseling tussen de cel en de pipet oplossingen, wat een minimale verstoring van de intracellulaire milieu3oplevert. Een mogelijk nadeel van deze techniek is dat elektrode invoeging een niet-selectieve lekstroom kan opleveren; Daarom moet worden gezorgd om opname uit cellen te voorkomen waarbij de grootte van de lekstroom de beoogde metingen4,12kan verstoren.
Hierin gebruiken we geïsoleerde rivierkreeft om desensibilisatie en herstel van de lichtgeactiveerde ionconductiviteit te beoordelen door intracellulaire elektrische opnames van fotoreceptor cellen onder spannings klem condities uit te voeren.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Opmerking: de experimenten voldoen aan de wetten van de dierenbescherming van Mexico.
1. experimentele opstelling
- Algemene verbindingen
- Verbind de versterker met een geschikte computer via een analoog-naar-digitaal converter en gebruik een oscilloscoop om het experiment te monitoren (Figuur 1).
- Sluit de fotostimulator aan op de A/D-conversie.
- Opname kamer
- Plaats de opname kamer bovenop een anti-vibratie tafel en lokaliseer deze in een kooi van Faraday.
Opmerking: dit voorkomt mechanische trillingen en elektrische ruis die de opname kunnen beïnvloeden. Onze Faraday kooi was gemaakt van verduisterd gaas. Een zelfgemaakte, 2 mL, acryl opname kamer wordt gebruikt (Figuur 2). - Bereid de badoplossing om de bereiding levend te houden13: 205 mm NaCl; 5 mM KCl; 2 mM MgSO4; 13 mM CaCl2; 5 mM Hepes-NaOH, pH 7,3.
Opmerking: de oplossing bevat geen dextrose of een borrelende door 95% O2,5% co2 mengsel, omdat de experimentele procedure kort genoeg is om beschadiging door de elektrische opname te detecteren (zie stap 4.2.3 voor volledigheid).
- Plaats de opname kamer bovenop een anti-vibratie tafel en lokaliseer deze in een kooi van Faraday.
- Elektroden
- Gebruik een chloride-gecoate zilver draad-elektrode als referentie-elektrode
Opmerking: zilverchloride coating is nodig om de elektrode reactie mogelijk te maken: AgCl (s) + e−↔ AG (s) + cl-. - Zand een zilver draad (dikte ~ 1 mm, lengte ~ 10 cm) met een fijne kwaliteit Emery papier om het oppervlak te reinigen.
- Spoel de zilver draad af met gedestilleerd water.
- Dompel de schone zilver draad onder in een 4-6% natriumhypochloriet oplossing (NaClO) tot deze donker wordt (ongeveer 20 min).
- Gebruik dunne glazen pipetten gevuld met een elektrolytoplossing (2,7 M KCl) als de intracellulaire elektrode.
- Trek een glazen capillaire buis (inwendige diameter ≈ 1 mm) met een micro-pipet trekker om een dunne punt te verkrijgen met een kleine opening (0,01-0,1 μm)14.
- Vul het getrokken capillaire glas met een 2,7 M KCl-oplossing. Vul het eerst met capillariteit (dompel de pipetpunt onder in de 2,7 M KCl-oplossing) en vul de helft van de pipet met een fijne injectienaald. Tik indien nodig op de elektrode pipet om luchtbellen te elimineren.
- Sluit de elektrode aan op de houder. Sluit de houder met de versterker aan op de Hoofdtrap van de versterker. Plaats de elektrodehouder-Head stage met een stabiele 3-D micro manipulator. Verlaag de elektrode totdat de badoplossing de punt bedekt.
Opmerking: de elektrode moet een verticale oriëntatie
- Gebruik een chloride-gecoate zilver draad-elektrode als referentie-elektrode
- Selecteer de Bridge-modus van de versterker (in het modus gedeelte van de versterker, druk op de Bridge-knop) en meet de elektrode weerstand. Zorg ervoor dat de weerstand ongeveer 50 MΩ11is.
Opmerking: deze elektrode grootte maakt een goede elektrische opname met beperkte schade aan de cel mogelijk. - Null de offset stroom en compenseren capacitieve transiënten met behulp van de positie knop in de sectie spanning klem van de versterker, en de capaciteit neutralisatie knop in micro-elektrode 1 sectie van de versterker.
- Superfusion-systeem
- Giet de badoplossing (stap 1.2.2) in een geschikte recipiënt (een serum fles van 250 mL) en sluit deze aan op een irrigatie slangenset (3,2 mm inwendige diameter), waardoor de opname kamer wordt aangesloten. Gebruik een zwaartekrachtgestuurd superfusie systeem. Reguleren van de stroomsnelheid tot ~ 0,5 mL/s.
- Sluit de kamer aan op een zuiginrichting. Het zuigsysteem van de oplossing zo regelen dat het totale volume van de opname kamer niet varieert. Gebruik een vacuümpomp voor afzuiging.
Opmerking: een constant volume in de opname kamer is belangrijk om de verdwaalde capaciteit constant te houden gedurende het experiment.
2. biologisch materiaal
Let op: gebruik volwassen krabben vissen P. clarkii (7-10 cm lang) in de intermolt fase van onduidelijke seks.
- Circadiane tijd
- Een maand voorafgaand aan de experimenten, onderhouden 100 krabben vissen onder een 12-h licht/12-h donkere cyclus15 (wit licht, 2,4 kW/m2).
Opmerking: een maand is voldoende tijd om de rivierkreeft te synchroniseren. - Bepaal de circadiane tijd van de rivierkreeft populatie door het beoordelen van de amplitude van electroretinogrammen van vijf willekeurig gekozen dieren15.
NB: 0 h circadiane tijd (CT 0) geeft het begin van een subjectieve dag aan, d.w.z.de tijd gedurende welke een organisme normaalgesproken actief is16,17,18,19 (Figuur 3). De rivierkreeft is een nachtdier, dus onder een 12-h licht/12-h donkere cyclus, het is actief tijdens de donkere fase.
- Een maand voorafgaand aan de experimenten, onderhouden 100 krabben vissen onder een 12-h licht/12-h donkere cyclus15 (wit licht, 2,4 kW/m2).
- Eyestalk isolatie procedure
- Op de gewenste circadiane tijd, anesthetiseer een geselecteerde rivierkreeft door onderdompeling in kraanwater bij 0-4 ° c, gedurende 15 minuten.
- Door middel van een fijne schaar, loskoppelen van de eyestalk van de basis.
- Toegang tot het netvlies met behulp van een scheermesje om een opening te maken (~ 1-mm2) in het rughoorn vlies.
- Plaats de eyestalk in het midden van de opname kamer (het gat bedekt met siliconen) met de toegang tot het netvlies op de bovenkant van de kamer.
- Houd de eyestalk gedurende 20 minuten onder constante duisternis.
Opmerking: 20 min is voldoende tijd voor de fotoreceptor cel volledig donker aangepast.
3. photoreceptor impaling
- Zet de micro-elektrode en de lengteas van de eyestalk zo parallel dat de micro-elektrode gecentreerd is voor toegang tot het netvlies. Gebruik een stereoscopische Microscoop (10X) om de apparaten in de juiste configuratie te plaatsen.
- Bewaak het spanningsverschil tussen de referentie-en opname-elektroden door de bridge mode11 van de versterker te selecteren.
- Verlaag de elektrode in het bad en plaats deze vervolgens recht over het netvlies.
- Beweeg de Microscoop weg en Positioneer de fotostimulator-lamp parallel aan de lengteas van de eyestalk.
Opmerking: de afstand tussen de lamp en de superfusion kamer is ongeveer 15 cm. - Verlaag de micro-elektrode langzaam tot er een plotselinge spanningsdaling wordt gedetecteerd.
Opmerking: een spanningsdaling van rond − 50 mV geeft de impalement van een gezonde fotoreceptor-cel aan. - Lever een test lichtflits (wit licht, 7,2 kW/m2, 10 μs duur) om de receptor potentiaal van de photoreceptor op te nemen.
Opmerking: de receptor potentiaal van de photoreceptor is een depolariserende potentiaal van 10-15 mV amplitude en 300 MS duur (Figuur 4).
4. elektrische opname
- Zorg ervoor dat de fotomoreceptor cellen volledig zijn aangepast aan donkere omstandigheden (zie stap 2,3).
- Lever elke 2 min een testflits. Automatiseer de tijd tussen flitsen door te kiezen voor een adequate waarde (120 s) van "time between episodes" in de Data Acquisition software.
Opmerking: 2 min is de noodzakelijke tijd om het totale herstel van de stromen die aan de elektrische respons van de photoreceptor zijn toe te staan. - Bewaken van de rust membraan potentieel, evenals de amplitude en de duur van de receptor potentiaal. Stel dat de fotoreceptor volledig is aangepast zodra het membraanpotentiaal, amplitude, en de duur van de receptor potentiaal onveranderd blijven. Eyestalks die voorheen gedurende 20 minuten onder constante duisternis bleven (stap 2,3), vervolledigen hun aanpassing in ongeveer 5 minuten.
- Stop met het stimuleren van de cel 2 minuten voor het opnemen van de licht-opgewekt stroom.
- Lever elke 2 min een testflits. Automatiseer de tijd tussen flitsen door te kiezen voor een adequate waarde (120 s) van "time between episodes" in de Data Acquisition software.
- Huidige opname
- Klem de spanning op de gemeten rust membraanpotentiaal waarde van de cel door "vasthoud amplitude" te selecteren in de software voor gegevensverzameling (in golfvorm op het analoge uitgangskanaal gedeelte).
- Selecteer de dSEVC-modus van de versterker. Selecteer in het gedeelte mode van de versterker de SEVC-knop en schakel de hendel naar de Discont SEVC-positie.
- Stel de Schakelsnelheid in op 500-1000 Hz (met behulp van de snelheidsknop van de versterker), zoals bepaald door de snelheid van de elektrode11.
- Lever een lichtflits en observeer de opgeroepen ionen instroom.
Let op: dit is de licht-opgewekt of transductie stroom (Figuur 5). - Keer terug naar de Bridge-modus op de versterker en noteer een receptor potentiaal door een lichtflits te sturen (zie rubriek 3). Zorg ervoor dat de fotoreceptor-cel volledig is aangepast aan donkere omstandigheden. Meet de receptor potentiaal karakteristieken (amplitude en duur) en vergelijk met de eerste metingen. Stel dat de gespietst fotoreceptor cel een gezonde cel is als ze dezelfde kenmerken hebben.
Opmerking: na eyestalk ablatie, biologische voorbereiding is levensvatbaar tijdens de volgende 2 h.
- Two Pulse Protocol: meet het herstel van desensibilisatie met een twee Light-Flash protocol.
Opmerking: de twee Light-Flash protocol is vergelijkbaar met de standaard twee-Pulse voltage protocol gebruikt voor het meten van herstel van inactivatie van spanning-gated kanalen20. De eerste lichtflits veroorzaakt een tijdelijke verandering in de gevoeligheid van de fotoreceptor-cel en de tweede flitser evalueert de toestand van de lichtgeactiveerde conductiviteit.- Lever een paar lichtflitsen. Pas de tweede flitser toe na een gewenst tijdsinterval (van 300 MS tot 2 min).
- Digitaliseer de stromen bij 10 KHz sampling met de Data Acquisition software en sla de gegevens op voor off-line analyse11.
Opmerking: een tabel met de configuratiewaarden van de software is opgenomen als aanvullend materiaal.
5. gegevensanalyse
- Kinetiek van de lichtopgewekt stroom
- Meet drie huidige parameters: activerings latentie L, de tijd die is verstreken vanaf de lichtflits levering tot de stroom 10% van de maximale amplitude bereikt (Figuur 5); piek-of maximale stroom amplitude Ip; en desensibilisatie tijdconstante T. meet de desensibilisatie tijdconstante (Τ) door de huidige verval fase aan te passen aan:

waar, A =-I (t = 0) een positieve constante is (Figuur 5).
- Meet drie huidige parameters: activerings latentie L, de tijd die is verstreken vanaf de lichtflits levering tot de stroom 10% van de maximale amplitude bereikt (Figuur 5); piek-of maximale stroom amplitude Ip; en desensibilisatie tijdconstante T. meet de desensibilisatie tijdconstante (Τ) door de huidige verval fase aan te passen aan:
- Desensibilisatie en herstel
Opmerking: herstel van desensibilisatie werd beoordeeld als de ratio p2/p1, waarbij p1 de relevante parameter is (L, Ip, of T) van de Controlestroom, en p2 de corresponderende parameter van de tweede teststroom.- Plot p2/p1 (ofwel L, Ip, of T) als een functie van de tijd tussen pulsen.
- Afhankelijk van de parameter past u de punten van elk plot aan:
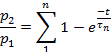
of om: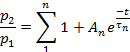
- Gebruik een geschikte statistische test om het aantal exponentiële termen te bepalen dat nodig is om aan de experimentele gegevens te voldoen.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Ten eerste wordt een representatieve receptor potentiaal van rivierkreeft fotoreceptor cellen verkregen (Figuur 4). Daarna werd een test lichtflits aangebracht om de licht transductie stroom te activeren (Figuur 5). De kationische transductie-stroom1 wordt na een vertraging geactiveerd, waarbij een maximale bereikt en daarna langzaam daalt in een absorberende ongevoelig toestand van waaruit het langzaam he...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
De rivierkreeft heeft bewezen een uitstekend model te zijn vanwege zijn vermogen om te overleven onder niet-natuurlijke omstandigheden. Er is gemakkelijke toegang tot in vivo en in vitro elektrofysiologische analyses. Daarnaast zijn schaaldieren een gunstige groep voor neurobiologisch onderzoek op het gebied van vergelijkende chronobiologie21.
In dit document wordt de studie van desensitisatie en herstel van de lichtgeactiveerde transductie-stroom van ...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
We hebben niets te onthullen.
Dankbetuigingen
Dit werk werd gesteund door DGAPA-UNAM IN224616-RN224616 Grant. De auteurs willen Mrs. Josefina Bolado, hoofd van de afdeling wetenschappelijke papier vertalingen, van de División de onderzoekt aan de Facultad de Medicina, UNAM, bedanken voor het bewerken van de Engelstalige versie van dit manuscript.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Axoclamp2A | Axon Instruments Inc | Versterker | |
| Digidata 1200 Interface | Axon Instruments Inc | Digitizer | |
| Oscilloscope TDS430A | Tektronix | Analoge Oscilloscoop | |
| Photostimulator PS33 Plus | Grass | Lamp | |
| Puller PC-100 | Narishige | Micropipet Puller | |
| Puller P-97 | Sutter Instruments | Micropipet Puller | |
| Glass Capillary Tube Kimax-51 | Kimble Products | 34502 | 0.8, 1.10, 100 mm |
| HS-2 Headstage | Axon Instruments Inc | Headstage | |
| Micromanipulator MX-4 | Narishige | Mechanische Micromanipulator | |
| Stereoscopisch Microscoop | Zeiss | Microscoop | |
| pClamp | Axon Instruments Inc | Data acquisitie software voor digidata 1200 interface | |
| Clampfit | Axon Instruments, Inc | Analyse software gekoppeld aan pClamp | |
| Origin | OriginLab Corp. | Data analyse en grafische software | |
| Natriumchloride | Sigma | S7653 | >99.5% |
| Kaliumchloride | Sigma | P-9333 | Minimum 99% |
| Magnesiumsulfaat | Sigma | M7506 | Minimum 99.5% |
| Calciumchloride | Sigma | C5080 | Minimum 99.0% |
| Hepes | Sigma | H7523 | >99.5% |
| Natriumhydroxide | Sigma | S8045 | 98.00% |
| Natriumhypochlorietoplossing | Sigma | 425044 | Beschikbaar chloor, 10-15% |
Referenties
- Barriga-Montoya, C., Gómez-Lagunas, F., Fuentes-Pardo, B. Effect of pigment dispersing hormone on the electrical activity of crayfish visual photoreceptors during the 24-h cycle. Comp. Biochem. Physiol. A Comp. Physiol. 157 (4), 338-345 (2010).
- Barriga-Montoya, C., de la O-Martínez, A., Fuentes-Pardo, B., Gómez-Lagunas, F. Desensitization and recovery of crayfish photoreceptors. Dependency on circadian time, and pigment-dispersing hormone. Comp. Biochem. Physiol. A Comp. Physiol. 203, 297-303 (2017).
- Wickenden, A. D. Overview of electrophysiological techniques. Curr. protoc. pharmacol. 11, 1-17 (2014).
- Brette, R., Destexhe, A. Intracellular recording. Handbook of Neural Activity Measurement. , 44-91 (2012).
- Cummins, D., Goldsmith, T. H. Cellular identification of the violet receptor in the crayfish eye. J. Comp. Physiol. 142 (2), 199-202 (1981).
- Eguchi, E. Rhabdom structure and receptor potentials in single crayfish retinular cells. J. Cell and Comp. Physiol. 66, 411-430 (1965).
- Nosaki, H. Electrophysiological study of color encoding in the compound eye of crayfish, Procambarus clarkii. Z. vergl. Physiologie. 64 (3), 318-323 (1969).
- Miller, C. S., Glantz, R. M. Visual adaptation modulates a potassium conductance in retinular cells of the crayfish. Vis Neurosci. 17 (3), 353-368 (2000).
- Hamill, O. P., Marty, A., Neher, E., Sakmann, B., Sigworth, F. J. Improved patch-clamp techniques for high-resolution current recording from cells and cell-free membrane patches. Pflugers Arch. 391 (2), 85-100 (1981).
- Lishko, P., Clapham, D. E., Navarro, B., Kirichok, Y. Sperm patch-clamp. Methods Enzymol. 525, 59-79 (2013).
- Finkel, A. Axoclamp-2A microelectrode clamp theory and operation. Axon Instruments, Inc. , (1990).
- Single-channel recording. Sakmann, B. , Springer Science & Business Media. (2013).
- Van Harreveld, A. A physiological solution for freshwater crustacea. Proc. Soc. Exp. Biol. Med. 34 (4), 428-432 (1936).
- Oesterle, A. pipette cookbook. , Sutter Instruments. Novato, CA. 97(2008).
- Fuentes-Pardo, B., Ramos-Carvajal, J. The phase response curve of electroretinographic circadian rhythm of crayfish. Comp. Biochem. Physiol. A Comp. Physiol. 74 (3), 711-714 (1983).
- Pace-Schott, E. F., Hobson, J. A. The neurobiology of sleep: genetics, cellular physiology and subcortical networks. Nat. Rev. Neurosci. 3 (8), 591-605 (2002).
- Pittendrigh, C. S. On the mechanism of the entrainment of a circadian rhythm by light cycles. Circadian Clocks. Aschoff, J. , North Holland, Amsterdam. 277-297 (1965).
- Pittendrigh, C. S. Circadian systems: entrainment. Handbook Behavioral Neurobiology Biological Rhythms. Aschoff, J. , Plenum, New York. 94-124 (1981).
- Vitaterna, M. H., Takahashi, J. S., Turek, F. W. Overview of circadian rhythms. Alcohol Res. Health. 25 (2), 85-93 (2001).
- Hille, B. Ion channels of excitable membranes. 507, Sinauer. Sunderland, MA. (2001).
- Dircksen, H., Strauss, J. Circadian clocks in crustaceans: identified neuronal and cellular systems. Front Biosci. 15, 1040-1074 (2010).
- Terakita, A., Hariyama, T., Tsukahara, Y., Katsukura, Y., Tashiro, H. Interaction of GTP-binding protein Gq with photoactivated rhodopsin in the photoreceptor membranes of crayfish. FEBS Lett. 330, 197-200 (1993).
- Terakita, A., Takahama, H., Hariyama, T., Suzuki, T., Tsukahara, Y. Light regulated localization of the beta-subunit of Gq-type G-protein in the crayfish photoreceptors. J Comp Physiol A. 183 (4), 411-417 (1998).
- Terakita, A., Takahama, H., Tamotsu, S., Suzuki, T., Hariyama, T., Tsukahara, Y. Light-modulated subcellular localization of the alpha-subunit of GTP-binding protein Gq in crayfish photoreceptors. Vis Neurosci. 13 (3), 539-547 (1996).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
