Lange termijn studies zijn essentieel voor het begrip van het proces van evolutie en de mechanismen van aanpassing. In het algemeen, vereisen deze studies verplichtingen buiten de levensduur van onderzoekers. Hier is een krachtige methode beschreven die dramatisch state-of-the-art gegevensverzameling voorschotten voor het genereren van de longitudinale gegevens in natuurlijke systemen.
Methodenartikel
Opstanding van slapende Daphnia magna: Protocol en toepassingen
In dit artikel
Samenvatting
Samenvatting
Langetermijnstudies inschakelen de identificatie van eco-evolutionaire processen die over langere tijd plaatsvinden. Daarnaast bieden ze belangrijke empirische gegevens die kunnen worden gebruikt in de predictieve modellering te voorspellen van evolutionaire reacties van natuurlijke ecosystemen op toekomstige veranderingen in het milieu. Met uitzondering van een paar uitzonderlijke gevallen zijn op lange termijn studies echter schaars vanwege logistieke problemen met de toegang tot tijdelijke monsters. Temporal dynamics worden vaak bestudeerd in het laboratorium of in gecontroleerde mesokosmosstudie experimenten met uitzonderlijke studies die de evolutie van natuurlijke populaties in het wild te reconstrueren.
Hier, wordt een standaard gebruiksprocedure (SOP) verstrekt aan doen herleven of herrijzen slapende Daphnia magna, een wijdverbreide zoöplankton keystone soorten in aquatische ecosystemen, om dramatisch de collectie van de state-of-the-art longitudinale gegevens in natuurlijke systemen. Het gebied van de ecologie van de opstanding werd in 1999 gedefinieerd door Kerfoot en collega's, hoewel de eerste pogingen tot broedeieren diapausing zoöplankton eieren dateren uit de late jaren 1980. Sinds de Kerfoot rudimentaire papier, is de methodologie van het zoöplankton soorten resurrecting steeds vaker toegepast, hoewel doorgegeven tussen laboratoria alleen via directe kennisoverdracht. Hier, een SOP wordt beschreven waarmee een stapsgewijze protocol op de praktijk van slapende Daphnia magna resurrecting eieren.
Twee belangrijke studies worden verstrekt die de fitness reactie van Daphnia magna populaties te doen herleven opwarming van de aarde is gemeten, inspelend op de mogelijkheid te bestuderen van historische en moderne populaties in dezelfde instellingen. Ten slotte, de toepassing van de technologieën van de volgende generatie sequencing naar nieuw leven ingeblazen of nog slapende fases wordt besproken. Deze technologieën bieden ongekende macht in de ontrafeling van de processen en mechanismen van de evolutie als toegepast op bevolkingsgroepen die hebben ervaren veranderingen in selectiedruk na verloop van tijd.
Inleiding
Lange termijn studies zijn cruciaal voor het begrip van de ecologische en evolutionaire processen in de natuur en bij de beoordeling van hoe soorten inspelen en aanhouden gedurende milieuveranderingen1. Dit komt doordat eco-evolutionaire processen verschillende generaties gebeuren en veranderingen in het milieu over lange tijd omspant optreden. Bovendien zorgen de langetermijnstudies empirische sleutelgegevens die de nauwkeurigheid van predictieve modellering verbeteren te voorspellen van evolutionaire reacties van natuurlijke ecosystemen op veranderingen in het milieu2. De nauwkeurigheid van deze modellen is cruciaal voor de uitvoering van beheer en de instandhouding strategieën voor het behoud van biodiversiteit en ecosysteemdiensten.
Met uitzondering van een paar uitzonderlijke gevallen (bijvoorbeeld, Galapagos Darwin vinken3 en algen4) zijn op de lange termijn studies grotendeels beperkt tot de soorten met korte generatietijd die kan worden gekweekt in het laboratorium5,6 , 7 , 8. Vandaar, de versterking van de dynamiek van de evolutionaire processen blijven ongrijpbaar. Vanwege logistieke problemen met de toegang tot tijdelijke monsters, empirische gegevens vaker worden bestudeerd in een ruimtelijke dan in een temporele context en temporele eco-evolutionaire processen zijn afgeleid of gemodelleerd van ruimtelijke gegevens. Deze benadering staat bekend als 'ruimte-voor-tijd' vervanging9, waarbij ruimte is aangenomen als een surrogaat te bestuderen van de temporele evolutionaire dynamiek. De belangrijkste beperking van de vervanging van 'ruimte-voor-tijd' is dat de tarieven van aanpassing op verschillende ruimtelijke schalen van temporele variatie in dezelfde populatie verschillen; Vandaar, zijn gevolgtrekkingen gebaseerd op vervanging van tijd met ruimte vooringenomen10.
Een krachtig alternatief waarmee het bestuderen van evolutionaire dynamiek in natuurlijke ecosystemen na verloop van tijd is de analyse van ecologische en genetische veranderingen in soort slapende fases11produceren. Deze slapende fases accumuleren tot formulier gelaagde biologische archieven die nauwkeurig gedateerd kunnen worden en paleolimnologically12,13gekenmerkt. Nog belangrijker is, kunnen deze slapende fases worden gereanimeerd en gebruikt in laboratoriumexperimenten, waar hun evolutionaire reactie op veranderingen in het milieu kan rechtstreeks gemeten worden. Historische populaties kunnen worden concurreerden tegen moderne geëvolueerd nazaten fitness wijzigingen en de functie van genen in stap met milieuveranderingen14,15,16in ontwikkeling te gaan studeren.
Slapende fases zijn zaden, cysten, sporen en ei banken. Hoewel de eerste studies over slapende eieren gereanimeerd dateert uit de late jaren 198017, en een handvol studies deze techniek in de vroege jaren 199018,19toegepast hebben, is het gebied van opstanding ecologie formeel geweest opgericht door het baanbrekende document uit Kerfoot en collega's in 199920. Deze praktijk heeft toegepast voornamelijk in paleolimnological reconstructies van zoetwater soorten17,21,22. Een SOP is echter nog niet beschikbaar. Hier, wordt een stapsgewijze beschrijving van het protocol van de opstanding toegepast op slapende eieren zoöplankton soorten Daphnia magna geleverd, door de bemonstering van sediment aan de oprichting van klonen culturen van hatchlings. Stappen van de SOP die zijn gemakkelijk overdraagbaar naar andere soorten Daphnia, evenals stappen waarvoor aanvullende optimalisatie, kunnen worden besproken.
Daphnia worden zoetwater zooplankters aanwezig in de meeste lotic habitats23 . Daphnia -soorten zijn ofwel obligate ongeslachtelijke of cyclische parthenogens. D. magna is een cyclische parthenogen die klonaal onder gunstige omgevingsfactoren24 reproduceert. Als milieu-omstandigheden verslechteren, mannelijke productie vindt en seksuele recombinatie leidt tot de vorming van bevruchte eieren die worden ingevoerd door een staat van ruststadia beschermd tegen het milieu een zaak van de chitine ephippium genoemd. Een deel van deze slapende eieren uitkomen wanneer gunstige omgevingsfactoren terugkeert. Een groot deel van de slapende ei-bank heeft echter nooit een kans om uitkomen en dus biologische archieven na verloop van tijd opbouwen. Slapende fases blijven begraven in de sedimenten van meren en vijvers en over langere tijd voor de studie van evolutionaire dynamiek kunnen worden opgewekt. Omdat slapende eieren van D. magna het resultaat van seksuele recombinatie zijn, zijn ze een goede vertegenwoordiging van de natuurlijke genetische diversiteit van de soorten25. Bovendien kunnen ze via klonen reproductie in het laboratorium worden gehandhaafd. Deze kenmerken geven het unieke voordeel van isogene modelorganismen, met behoud van de natuurlijke genetische diversiteit.
Twee belangrijke studies worden voorgesteld om aan te tonen van de voordelen van direct vergelijken historische en moderne afstammelingen van dezelfde populatie van D. magna milieu selectiedruk ervaren na verloop van tijd. D. magna exemplaren werden herrezen uit Lake Ring (Denemarken), een ondiep (5 m diepte, oppervlakte 22 ha) gemengde vijver die heeft ervaren een toename in gemiddelde temperatuur en hittegolven ontstaan na verloop van tijd. D. magna (sub) populaties werden opgewekt langs deze tijdelijke gradiënt 60 jaar (1960 – 2005) en studeerde voor het onderzoek naar de evolutionaire reactie op temperatuur opwarming van de aarde. In de eerste studie in een gemeenschappelijke tuin experiment, werden veranderingen in de fitness-linked levensgeschiedenis eigenschappen gemeten in reactie op een stijging van de temperatuur van + 6 ° C, in overeenstemming met de voorspellingen van het Intergouvernementele Panel voor klimaatverandering voor de komende 100 jaar 26. in de tweede studie, een mesokosmosstudie experiment werd gebruikt voor het meten van de concurrerende capaciteiten van de drie (sub) bevolking onder de opwarming van de aarde. Deze combinatie experimenten tonen aan dat alle levensgeschiedenis eigenschappen en populaties in aanwezigheid van de opwarming van de aarde als de enige stress, Toon van een hoog niveau van plasticiteit en gelijke concurrerende capaciteiten hebben. Deze bevindingen stellen voor dat opwarming van de aarde als een interne stress geen significante fitness kosten, ten minste in de bevolking legt hier bestudeerd.
Protocol
De volgende SOP biedt een stapsgewijze beschrijving van het protocol dat wordt gebruikt om te doen herleven van Daphnia magna slapende eieren, met inbegrip van een gedetailleerde beschrijving van de bemonstering, isolatie van ephippia uit het sediment en oprichting van klonen culturen ( Figuur 1).

Figuur 1: stapsgewijze handleiding voor de opstanding van Daphnia magna. Sediment van een zoetwater-biotoop (A) is bemonsterd met een zuiger-corer (B). De kern van sediment (C) wordt gesegmenteerd in incrementele lagen van 1 of 0.5 cm (D). Elke laag van sediment wordt opgeslagen in een monster zip-lock zak (E) in donkere en koude omstandigheden (4 ° C). Elke laag van sediment wordt gewogen en gezeefd met behulp van geologische zeven (1 mm en 125 µm maaswijdten, F). Witte achtergrond laden worden gebruikt voor het isoleren van Daphnia magna ephippia (G). Gepelde slapende eieren (H) zijn overgebracht naar petrischalen en blootgesteld aan licht en temperatuur stimuli voor het opwekken van broedeieren. Hatchlings worden overgebracht om te scheiden van de potten (ik) om vast te stellen isoclonal lijnen. Klik hier voor een grotere versie van dit cijfer.
1. de bemonstering van Sediment kernen
- Monster sedimenten van meren en vijvers met behulp van een zuiger-corer. Dit protocol gebruikt Big Ben27, een buis van de kern van ongeveer 1,5 m in lengte met een interne buis diameter van 14 cm. de Big Ben bestaat uit een zuiger op een touw en een corer hoofd, waarop staven zijn aangesloten om de buis in het sediment. Een kern-catcher helpt de steun van de buis van de kern als het vol van sediment. Om de diepte van het sediment, een kader houdt de kern buis rechtop en stationaire, en een gemodificeerde fles jack wordt gebruikt voor het duwen van de zuiger naar boven tijdens het extrusieproces (aanvullende Video 1).
- Voor ondiepe vijvers van minder dan 1 m in de diepte, gebruikt u een plexiglas zwaartekracht corer van niet meer dan 6 cm, diameter handmatig in het sediment geduwd.
- Voor diepe meren (> 6 m diepte), Livingston zuiger corers28 of één-station Griffith sediment corers met de steun van een verankerde ponton boot gebruiken. De Livingstone-achtige station staaf zuiger corer kan worden gebruikt in water tot ongeveer 30 m diep te verzamelen voor opeenvolgende één-meter stations van zachte geconsolideerde lake sediment. De één-station Griffith corer bestaat uit een eenvoudige maar krachtige kern hoofd die standaard polycarbonaat buizen met Livingstone station staven verbindt. De corers worden geduwd in het sediment met de stangen en een zuiger levert de zuigkracht die nodig zijn voor het herstel van sediment (Figuur 2).
- Voor ophalen continue, storingsvrije kernen, gebruikt u vibracoring. Deze corers werken op een verscheidenheid van waterdiepte en core monsters van verschillende lengtes, afhankelijk van sediment lithologie kunnen ophalen. Lage amplitude trillingen die wordt overgebracht van het hoofd van de vibracore naar beneden via de bijgevoegde vat of core tube liquefies sedimenten, waardoor het vat van de kern is aangesloten op de vibracore-eenheid om in de sedimenten vloeibaar te doordringen. Sommige vibracorers zijn kleine, lichtgewicht en draagbaar, anderen zijn grote zware eenheden die alleen kunnen worden ingezet vanaf grote schepen. De keuze van de corers hangt af van de lithologie van sediment.
- Snijd de kern horizontaal in incrementele lagen van 1 cm of minder gebruik van een platte metalen oppervlak (aanvullende Video 1). Sediment corers zoals hier gebruikt die zijn ontworpen om het verminderen van hydrostatische druk op extrusie, vermindering van de verstoring van de lagen van het sediment. Wanneer andere corers worden gebruikt, kan de buitenste schil van elke laag van sediment worden verwijderd met een cookie-cutter soort mes te beperken van verontreiniging onder lagen.
- Elke laag van sediment in een aparte bemonsteringszak (aanvullende Video 1) verzamelen en opslaan in donker en koud (4 ° C) voorwaarden.
- Een minimum van 5 g van sediment verzamelen uit alle lagen voor radiometrische datering. Radiometrische datering is een gangbaar protocol voor een gedetailleerde beschrijving van de dating test, verwijzen naar bestaande publicaties12,13.

Figuur 2: Cartoon van de zuiger ontkernen procedure. Zuiger corer, een holle buis met een interne glijdende zegel (de zuiger), die een zwakke vacuüm produceert. Als de zuiger het sediment-water-interface raakt, het gewicht duwt het kern-vat in het sediment en het vacuüm veroorzaakt het sediment worden gevulde te betreden en de buis omhoog zonder verstoring van de lagen van het sediment. Klik hier voor een grotere versie van dit cijfer.
2. zeven van Sediment lagen
- Met behulp van een precisie-schaal, weeg elke laag van sediment voor toekomstig gebruik. Gebruik de oppervlakte en gewicht voor het berekenen van de dichtheid van de soorten in het meer.
- Zeef elke laag van sediment met behulp van twee geologische zeven opgestapeld op de top van elkaar. De eerste zeef heeft een maaswijdte van 1 mm en klei, grote ongewervelden en zwevende deeltjes, zoals zaden, planten en insecten, scheidt van de rest van het sediment. De tweede zeef heeft een maaswijdte van 125 µm en D. manga ephippia en kleine korrels gescheiden van de rest van het sediment (aanvullende Video 2).
-
Kleine porties van de sediment breuk verzameld op de maaswijdte van de zeef 125 µm overbrengen in de lade van een witte achtergrond. Afhankelijk van het type sediment, kunnen kleinere of grotere hoeveelheden van sediment overgedragen worden op elk moment.
- Toevoegen van kleine hoeveelheden (tot 200 mL) van medium aan het Dienblad van de bemonstering witte resuspendeer de overgedragen sediment breuk te vergemakkelijken oog spotten van ephippia (Figuur 3). Het medium waarmee het sediment resuspendeer kunnen dechlorinated leidingwater, boorgat water, COMBO29of ADaM medium (Aachener Daphnien)30. De term 'medium' zal hierna worden gebruikt om te verwijzen naar een of alle vermelde oplossingen.

Figuur 3: Daphnia magna ephippium. Slapende Daphnia magna eieren onmiddellijk na het uitpakken van gegevenspakketten verstaan. De ephippium (A), het binnenste ei membraan (B) en de slapende eieren (C) staan. Schaal bar = 500 µm.
3. uitpakken van Ephippia en broedeieren
- Met een wegwerp Pipet van Pasteur of microdissection Tang te gebruiken, de individuele ephippia overdracht aan petrischalen gevuld met 10 mL van medium. Gebruik op zijn minst een petrischaal per laag van sediment.
- Onder een stereo microscoop, decapsulate elke ephippia via microdissection pincet dwingt open het geval van chitine (aanvullende Video 3). Verwijder de rust ei binnenste membraan tactvol, aandacht te besteden aan de eieren, niet te verstoren en overbrengen naar de petrischaal gevuld met medium met behulp van een precisiepipet Pasteur. Uitpakken van gegevenspakketten verstaan verhoogt broedeieren succes in D. magna; maar, het kan niet verplicht worden of het kan zijn uitdagend voor andere Daphnia -soorten produceren kleinere ephippia.
- De gepelde eieren tot een volledige spectrum lange dag fotoperiode licht (licht: donker 16:8) en de hoge temperatuur (20 ± 1 ° C) voor het opwekken van broedeieren bloot in een gecontroleerde temperatuur apparaat (incubator) of kamer. Broedeieren plaatsvindt tussen 48 uur en enkele weken (tot vier; Aanvullende Video 4). Bij ontbreken van uitpakken van gegevenspakketten verstaan, rechtstreeks bloot de ephippia naar broedeieren van prikkels (lang fotoperiode daglicht (16:8 licht: donker) en hoge temperatuur (20 ± 1 ° C)).
4. vaststelling van Isoclonal lijnen van Daphnia magna
- Vast isoclonal regels uit één hatchlings door overdracht van individuele D. magna van stap 3.3 te scheiden van de potten gevuld met 200 mL medium gebruik een wegwerp Pipet van Pasteur. Elk individu is genetisch verschillend is, wordt het resultaat van seksuele recombinatie.
- Handhaven isoclonal regels voor onbepaalde tijd in voorraad voorwaarden bestaande uit 10 ± 1 ° C 16:8 licht: donker regime, gevoed wekelijks met 0,2 mg C/L van Chlorella vulgaris of andere groene algen (bv Scenedesmus obliquus). Het vernieuwen van het medium elke derde week. Voorraad omstandigheden kunnen veranderen met temperatuur, voeding regimes, en soorten.
5. belangrijke Studies
Opmerking: Een beschrijving van twee belangrijke studies wordt gegeven in welke wederopgestane D.magna (sub) populaties uit de sedimentaire archief van Lake Ring (Denemarken) worden gebruikt voor het beoordelen van de evolutionaire reactie op opwarming van de aarde. Drie (sub) populaties werden opgewekt uit de volgende perioden: 1960-1970, 1970-1985, en > 1999. D. magna broedeieren succes uit de sedimentaire archief varieerde van 11 tot 58% (Figuur 4). Uit de hatchlings verkregen uit elke timeperiod, werd een willekeurige deelverzameling gekozen voor de twee belangrijke studies die hier worden beschreven. Deze studies waren bedoeld om te beoordelen of (sub) bevolking opgewekt uit verschillende perioden langs het verloop van de temperatuur verschillen in fitness-linked levensgeschiedenis traits (5.1) bleek, en of ze hadden verschillende concurrerende capaciteiten (5.2) na blootstelling aan de opwarming van de aarde.

Figuur 4: broedeieren van succes in een sedimentaire archief van Lake Ring bemonsterd. Het percentage succesvolle hatchlings langs de sedimentaire archief van Lake Ring gebruikt in de belangrijkste studies. Klik hier voor een grotere versie van dit cijfer.
-
Gemeenschappelijke tuin experimenten
- Tien hatchlings per (sub) bevolking uit voorraadculturen overbrengen in gemeenschappelijke tuin voorwaarden: 16 ° C; lange fotoperiode (16:8 licht: donker regeling); dagelijks feed met 0,8 mg C/L van Chlorella vulgarisen vernieuwen medium elke tweede dag. Het handhaven van de hatchlings in gemeenschappelijke tuin voorwaarden voor ten minste twee generaties (ca. 45 dagen). Gemeenschappelijke tuin voorwaarden verminderen van inmenging van de maternale effect en reproductie onder hatchlings synchroniseren.
- Bij de introductie van de tweede broedsel in het brood kamer, overbrengen in volwassen vrouwtjes uit de tweede generatie 500 mL potten gevuld met medium totdat ze het tweede broedsel van jonge exemplaren vrijgeeft.
- Willekeurig overdracht van individuele juvenielen van 24-48 h, geboren uit het tweede broedsel van de tweede generatie, tot 100 mL potten gevuld met medium en blootgesteld aan de volgende proefomstandigheden: 18 ° C (huidige temperatuur in het meer) en 24 ° C (opwarming van de aarde, temperatuur verwacht door de IPCC 26 voor de komende 100 jaar), 16:8 licht: donker regime, en feed dagelijkse 0,8 mg C/L van de Chlorellavulgaris.
- Op elke proefdieren, meet u de grootte op de vervaldag met een stereomicroscoop als de afstand tussen het hoofd en de basis van de staart wervelkolom (Figuur 5). Fotograferen van elk dier en vervolgens analyseren de grootte met behulp van een geschikte afbeelding software.
- Meten van de leeftijd op de vervaldatum: de dag waarin eieren worden waargenomen voor de eerste keer in de brood zaal.
- Meten van het sterftecijfer: het aantal uitgestorven individuen tijdens het experiment.
- Meten van de vruchtbaarheid: het totale aantal nakomelingen uitgebracht in eerste en tweede klonale reproductie.
- Het meten van de bevolkingsgroei, geschat met behulp van de Euler vergelijking (1):
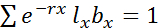 (1)
Waar lx het aandeel van overleven op leeftijd x is, is bx het aantal pasgeborenen geproduceerd per overlevende persoon op leeftijd x, en r is de intrinsieke groeisnelheid van de natuurlijke aangroei. - Statistische analyses met behulp van commercieel verkrijgbare software uit te voeren. Hier kunt R31 plot reactie normen (fenotypische expressie van een enkele genotype omgevingen) voor elke eigenschap levensgeschiedenis, met behulp van het ggplot2-pakket. Bereken sterftecijfers per bevolking via survival analyse (R pakket rms; https://cran.r-project.org/web/packages/rms/rms.pdf). Ten slotte, het uitvoeren van een variantieanalyse (ANOVA, tabel 2) in R31 om te beoordelen of het effect van temperatuur op eigenschappen kan worden verklaard door de evolutie (verschillen tussen populaties), plasticiteit (reactie op behandeling), of de evolutie van plasticiteit (bevolking x behandeling).
-
Competitie experiment
- Tien hatchlings per bevolking uit voorraadculturen overbrengen in gemeenschappelijke tuin voorwaarden: 20 ° C, lange fotoperiode (16:8 licht: donker regeling), dagelijks met 0,8 mg C/L van Chlorella vulgaris, voeden en vernieuwen medium elke tweede dag. Handhaven van gemeenschappelijke tuin voorwaarden voor ten minste twee generaties (ca. 45 dagen) om interferentie van maternale effecten.
- Willekeurig toewijzen vijf jonge exemplaren van 24 tot 48 uur van het tweede broedsel van de tweede generatie van elke hatchling aan experimentele mesocosms (20 L kunststof aquaria gevuld met medium), in triplicates, bij een dichtheid van 10 dieren/L.
- De mesocosms tot 24 ° C, 16:8 L:D regime, bloot en dagelijks te voeden met 0,8 mg C/L van de Chlorellavulgaris in een gecontroleerde temperatuur kamer of een incubator voor een minimum van vier weken (> 3 klonale generaties).
- Ruiming elke mesokosmosstudie wekelijks, vernieuwen van 10% van het medium voor de simulatie van de dynamiek van een bevolking die Daphnia in de natuurlijke omgeving tegenkomen. Opleggen ruimen door het verwijderen van een bekend volume van medium en dieren van elke aquarium (1.2 L in dit geval), en door het vervangen van de gedode volume met verse medium. Start het ruimingsbeleid regime nadat de proefdieren geslachtsrijp (dag 10).
- Genieten aan het einde van de vierde week, 32 dieren uit elke mesokosmosstudie te beoordelen van verschuivingen in de samenstelling van de genotypische ten opzichte van de oorspronkelijke entmateriaal.
- Plaats van individuele Daphnia in microcentrifuge buizen en verwijderen van de overtollige vloeistof met behulp van een pipet van Pasteur.
- Flash bevriezen afzonderlijke buizen in vloeibare stikstof en winkel bij-80 ° C.
- Pak genomic DNA uit enkele individuen met behulp van de beschikbare protocollen en volgens de instructies van de fabrikant.
- Het geëxtraheerde DNA met behulp van een aantal genetische merkers voldoende voor een unieke multilocus genotype per hatchling versterken. Hier, werden 8 microsatellites, gerangschikt in een enkele multiplex (M01, tabel 1) gebruikt na vastgestelde protocollen32,33.
- Genotype versterkt fragmenten over een fragment analyzer.
- Fragment analyse uitvoeren met een commerciële en vrij beschikbare software met behulp van een geschikte grootte-standaard.
- Beoordelen genotypische samenstelling aan het einde van het experiment door genotypering de 32 personen met een set van microsatelliet loci als beschreven33, en het berekenen van de frequentie van elk genotype aan het einde van het experiment in vergelijking met de aanvankelijke entmateriaal.

Figuur 5: volwassen vrouwtje Daphnia magna. Volwassen vrouwelijke Daphnia magna met ongeslachtelijke eieren in de brood zaal. De afstand tussen het hoofd en de basis van de wervelkolom van de staart wordt gebruikt om de grootte van het dier te meten. De rode lijnen geven de grootte metingen. Schaal bar = 500 µm.
Resultaten
Empirische gegevens op lange termijn zijn cruciaal voor het begrip van evolutionaire dynamiek en persistentie van natuurlijke populaties. Dergelijke gegevens zijn over het algemeen uitdagend te verkrijgen vanwege logistieke problemen bij de toegang tot tijdelijke monsters en de eis van het plegen van verzameling van gegevens op lange termijn. In de twee belangrijke studies die hier gepresenteerd, wordt empirisch bewijs van de reactie op de temperatuur van een centrale zooplankter in zoetwater ecosystemen verstrekt over evolutionaire tijden. Deze optie is ingeschakeld door het gebruik van gelaagde slapende ei banken die de gelegenheid bieden om te studeren van de reactie van historische populaties en hun moderne nakomelingen op milieudruk in gemeenschappelijke experimentele instellingen.
Gemeenschappelijke tuin experiment
De gemeenschappelijke tuin experiment toonde aan dat alle eigenschappen van de levensgeschiedenis gereageerd op temperatuur (Figuur 6 en Figuur 7). De ANOVA-analyse kwam naar voren dat alle (sub) populaties reageren op temperatuur via plasticiteit (tabel 2), met uitzondering van sterfte, die niet reageert. Bewijs van evolutionaire veranderingen (verschillen tussen (sub) bevolking) werd waargenomen alleen in bevolkingsgroei (tabel 2), die aanzienlijk verhoogd in twee van de drie (sub) risicopopulaties-24 ° C (Figuur 6).

Figuur 6: gemeenschappelijke tuin experiment. Reactie normen voor levensgeschiedenis traits (fecundity, grootte en leeftijd op de vervaldag) en bevolkingsgroei (r) worden weergegeven voor elke (sub) bevolking onder temperatuur opwarming van de aarde (24 ° C) in vergelijking tot de gemeenschappelijke tuin en de huidige regeling van de temperatuur (18 ° C). De bevolkingsgroei 'r' is berekend aan de hand van de Euler-vergelijking (1). Betrouwbaarheidsintervallen worden weergegeven. (Sub) populaties zijn kleur gecodeerd: (i) blauw: 1960-1970; (ii) groen: 1970-1985; (iii) rood: > 1999. Klik hier voor een grotere versie van dit cijfer.

Figuur 7: sterfte. Sterftecijfers per (sub) bevolking (1960-1970; 1970-1985; > 1999) worden weergegeven onder de opwarming van de aarde (24 ° C) in vergelijking tot moderne temperatuur regimes (18 ° C). Klik hier voor een grotere versie van dit cijfer.
Mesokosmosstudie experiment
Na vier weken van de selectie, vertegenwoordigd door de opwarming van de aarde bij 24 ° C, de frequentie van de drie (sub) populaties veranderde niet aanzienlijk (χ2 = 0,55, P = 0.76) in vergelijking met de aanvankelijke entmateriaal (Figuur 8). Onder de 30 genotypen geënt in het mesokosmosstudie experiment, was de meerderheid geïdentificeerd na vier weken van de selectie (Figuur 9). Specifiek, werden 70% van de geënte genotypen teruggewonnen, compatibel met Poissonian verwachting van het herstellen van ten minste één vertegenwoordiger van elk genotype in een monster van 32 personen.

Figuur 8: competitie experiment - bevolking frequentie. Bevolking-gemiddeld mediaan en kwartielen (25th en 75th), wordt ook weergegeven voor de drie (sub) bevolking van D. magna na vier weken van de selectie in mesokosmosstudie competitie experimenten (24 ° C), in vergelijking met een eerste gelijke frequentie ( het begin). (Sub) populaties zijn kleur gecodeerd zoals aangegeven in Figuur 6. Klik hier voor een grotere versie van dit cijfer.

Figuur 9: competitie experiment - genotype frequentie. Genotype frequenties — gemiddeld mediaan en kwartielen (25th en 75th) worden na vier weken van blootstelling aan opwarming van de aarde (24 ° C) in vergelijking met een eerste gelijke frequentie van genotypen (stippellijn) weergegeven. Namen op de x-as zijn de geënte genotypen ID, gegroepeerd per (sub) bevolking (blauw, 1960-1970; groen, 1970-1985; rood, > 1999). Klik hier voor een grotere versie van dit cijfer.
| Locus | EEN | Groottewaaier (bp) | Inleidingen (5' - 3') | Kleurstof label | Herhaal motief | TM | |
| B008 | HQ234154 | 150-170 | F: TGGGATCACAACGTTACACAA | VIC | (TC) 9 | 56 | |
| R: GCTGCTCGAGTCCTGAAATC | |||||||
| B030 | HQ234160 | 154 – 172 | F: CCAGCACACAAAGACGAA | HUISDIER | (GA) 11 | 56 | |
| R: ACCATTTCTCTCCCCCAACT | |||||||
| B045 | HQ234168 | 118-126 | F: GCTCATCATCCCTCTGCTTC | NED | (TG) 8 | 56 | |
| R: ATAGTTTCAGCAACGCGTCA | |||||||
| B050 | HQ234170 | 234-248 | F: TTTCAAAAATCGCTCCCATC | 6FAM | (GAA) 6 | 56 | |
| R: TATGGCGTGGAATGTTTCAG | |||||||
| B064 | HQ234172 | 135-151 | F: CTCCTTAGCAACCGAATCCA | 6FAM | (TC) 8 | 56 | |
| R: CAAACGCGTTCGATTAAAGA | |||||||
| B074 | HQ234174 | 196-204 | F: TCTTTCAGCGCACAATGAAT | NED | (GT) 9 | 56 | |
| R: TGTGTTCCTTGTCAACTGTCG | |||||||
| B096 | HQ234181 | 234-240 | F: GGATCTGGCAGGAAGTGGTA | VIC | (AC) 15 | 56 | |
| R: TTGAACCACGTCGAGGATTT | |||||||
| B107 | HQ234184 | 250-274 | F: GGGGTGAAGCATCAAAGAAA | HUISDIER | (CT) 8 | 56 | |
| R: TGTGACCAGGATAAGAGAAGAGG | |||||||
Tabel 1: microsatelliet multiplex. Het NCBI toetreding nummer (AN), de multiplex informatie met de PCR primer sequenties, de groottewaaier van PCR, het herhaald motief, de kleurstof gebruikt voor het label die de voorwaartse primer en de onthardende temperatuur (Tm) worden weergegeven.
| Pop groeitempo op jaarbasis (r) | DF | F | P | |
| Evolutie (Pop) | 2 | 30.309 | < 0,001 | |
| Plasticiteit (Temp) | 1 | 531.546 | < 0,001 | |
| Evol. Plasticiteit (Pop x Temp) | 2 | 65.137 | < 0,001 | |
| Sterfte | DF | F | P | |
| Evolutie (Pop) | 2 | 2.234 | 0.1162 | |
| Plasticiteit (Temp) | 1 | 2.679 | 0.1071 | |
| Evol. Plasticiteit (Pop x Temp) | 2 | 1.8657 | 0.164 | |
| Vruchtbaarheid | DF | F | P | |
| Evolutie (Pop) | 2 | 1.8852 | 0.1633 | |
| Plasticiteit (Temp) | 1 | 6.8934 | 0.0117 | |
| Evol. Plasticiteit (Pop x Temp) | 2 | 1.6511 | 0.203 | |
| Grootte op de vervaldatum | DF | F | P | |
| Evolutie (Pop) | 2 | 0.211 | 0.8106 | |
| Plasticiteit (Temp) | 1 | 11.1361 | 0.0017 | |
| Evol. Plasticiteit (Pop x Temp) | 2 | 0.6586 | 0.5225 | |
| Leeftijd op de vervaldatum | DF | F | P | |
| Evolutie (Pop) | 2 | 0.7811 | 0.4637 | |
| Plasticiteit (Temp) | 1 | 8.0764 | 0.0066 | |
| Evol. Plasticiteit (Pop x Temp) | 2 | 0.088 | 0.9159 | |
Tabel 2: variantie-analyse (ANOVA). Variantie-analyse testen of wijzigingen in de eigenschappen van de levensgeschiedenis en bevolkingsgroei van de opgestane (sub) bevolking blootgesteld aan opwarming van de aarde worden toegelicht door evolutionaire aanpassing (populaties), plasticiteit (temperatuur behandeling), en hun interactie term (evolutie van plasticiteit). Significant p-waarden (p< 0.05) zijn vetgedrukt.
Aanvullende Video 1: bemonstering van sediment kernen. Het gebruik van een Big Ben-corer wordt weergegeven. Big Ben is een buis van de kern van ongeveer 1,5 m in lengte met een interne buis diameter van 14 cm. Het bestaat uit een zuiger op een touw en een corer hoofd, waarop staven zijn aangesloten om de buis in het sediment. Een kern-catcher wordt gebruikt ter ondersteuning van de kern-buis die wordt gedistribueerd vanaf een klein schip. De zuiger is omlaag in het sediment geduwd door de gravitationele druk. Een kader wordt gebruikt ter ondersteuning van de kern-buis tijdens het extrusieproces uitgevoerd met behulp van een gemodificeerde fles jack dat de zuiger naar boven duwt. Elke laag van sediment is op een platte metalen oppervlak ingezameld en zijn overgedragen aan transparante monsternemingszakken voor lange termijn opslag [donker en koud (4 ° C) voorwaarden]. Klik hier om dit bestand te downloaden.
Aanvullende Video 2: Sediment zeven. Het nodige materiaal voor conventioneel-het zeven sediment is een precisie-schaal, witte bemonstering dienbladen en geologische zeven. Van elke laag van sediment, worden ten minste 5 g bewaard voor radiometrische datering. De rest van het sediment wordt gebruikt voor het isoleren van ephippia. Het sediment is gezeefd door twee geologische zeven, één met 1 mm en een tweede met 125 µm maaswijdte, gestapeld bovenop elkaar. Medium wordt gegoten op de 1 mm maaswijdte van de zeef om klei, grote ongewervelden, en zwevende deeltjes te scheiden. Medium gegoten op de tweede zeef met maaswijdte van 125 µm scheidt D. magna ephippia en kleine deeltjes. Aliquots van sediment worden vervolgens overgedragen aan een lade wit bemonstering. D. magna ephippia zijn gespot door oog in de lade van de witte achtergrond. Ephippia van elke laag worden verzameld in aparte petrischalen. Klik hier om dit bestand te downloaden.
Aanvullende Video 3: uitpakken van gegevenspakketten verstaan. Onder een stereomicroscoop, D. magna ephippia worden geopend met een microdissection Tang door druk uit te oefenen op de rug van de chitine-zaak. Het binnenste ei membraan tactvol verwijderd en eieren zachtjes te rusten met een pipet van Pasteur overgebracht naar een petrischaal met 10 mL van medium. Klik hier om dit bestand te downloaden.
Aanvullende Video 4: broedeieren. Na blootstelling aan een lange fotoperiode en 20 ° C hervat embryo-ontwikkeling tussen 48 uur en paar weken. Wanneer de ontwikkeling voltooid is, de embryo's breek vrij van de eierschaal en vrij zwemmen in het medium. Klik hier om dit bestand te downloaden.
Discussie
Als gevolg van de hoge thermische geleidbaarheid van het water, zoetwater ecosystemen zijn op hoger risico van verlies aan biodiversiteit dan terrestrische ecosystemen in het gezicht van wereldwijde opwarming van de aarde34. Het is daarom essentieel zijn voor het begrijpen van de reactie van keystone soorten in deze ecosystemen en identificeren van coping-mechanismen om te overleven van thermische stress. Het begrip van deze mechanismen op soorten en communautair niveau kunt voorspellen hoe soorten zijn beïnvloed door de wereldwijde opwarming van de aarde en hoe het effect op de afzonderlijke soorten cascades stroomt aan andere trofische niveaus. Uiteindelijk maakt begrijpen van mechanismen voor reacties op mondiale opwarming van de aarde de identificatie van saneringsstrategieën te verzachten extincties.
De casestudy's die hier gepresenteerd blijkt dat de reactie van D. magna op temperatuurstijging pervasively is bemiddeld door plasticiteit in levensgeschiedenis trekken en dat antwoord op de temperatuurverhoging van de alleen geen duidelijk fitness kosten legt, althans in de bevolking studeerde hier. Hoge plasticiteit in levensgeschiedenis eigenschappen wordt ondersteund door niet-significante verschillen in concurrerende capaciteiten van de bevolking van de (sub) in het bijzijn van de opwarming van de aarde. Langerlopende competitie experimenten op meerdere populaties kunnen echter nodig zijn om te generaliseren van deze bevindingen.
Opstanding van slapende fasen biedt een ongekende resource om te studeren Adaptatiemechanismen en trajecten voor een soort evolution t/m10van de tijd. Zoöplankton soorten profiteren van een snelle generatietijd (ongeveer 2 weken), en de levensvatbaarheid van slapende fases, waarmee een voorouder te concurreren headtohead tegen eigen nakomelingen, of om 'replay' evolutie die vanaf verschillende afgelopen Staten begint. Opstanding ecologie in wezen in staat stelt het onderzoek of een bepaalde evolutionaire uitkomst is afhankelijk van een voorafgaande gebeurtenis. De identificatie van de genetische elementen van evolutie is momenteel mogelijk in laboratoriumexperimenten met behulp van micro-organismen waarvoor 'voorouderlijke lijnen' zijn bevroren en gereanimeerd voor vergelijkende analyse met hun geëvolueerd afstammeling6. Een van de belangrijkste beperkingen van het werken met laboratorium organismen is echter dat de "voorouderlijke staat" een reeds verschoven basislijn is. De studie van slapende stadia kunt de bemonstering van specimens van tijd vóór elk evenement van de stress (bijv., ongerepte milieuomstandigheden) en voor het meten van de evolutionaire trajecten van milieu onverstoorde naar verschillende afgelopen Staten tot de moderne tijd. In de afgelopen jaren heeft de studie van DNA polymorfisme in opgestane of nog slapende zoöplankton fasen belangrijk inzicht in afgelopen demografische en adaptieve processen die hebben bijgedragen aan de genetische samenstelling van de huidige populaties14 , 16 , 25 , 33 , 35 , 36. met de hogere toegankelijkheid van hoge-doorvoer sequencing technologieën, het genoom en de transcriptome opgestane of nog slapende fasen kunnen worden sequenced en het type en aantal genetische veranderingen in het evoluerende populaties opgebouwde tijd gemeten.
De opstanding SOP hier gepresenteerd heeft belangrijke toepassingen op het gebied van multi-omics op twee niveaus. Multi-omics-technologieën kunnen worden toegepast op de opgestane specimens, waardoor een uitputtende analyse van de moleculaire elementen die betrokken zijn bij adaptieve reacties op milieu selectiedruk. Daarnaast kunnen omics-technologieën worden toegepast op gepelde maar nog slapende fases. Tot dusver heeft de toepassing van hoge-doorvoer sequencing technologieën tot rust stadia beperkt gebleven door de eis van een grote hoeveelheid uitgangsmateriaal. Deze beperkingen worden opgeheven37. Met de verlaging eisen voor uitgangsmateriaal en vooruitgang in nanofluidics, hele genoom sequencing (WGS) is nu mogelijk uit zo weinig als 1 ng of een paar pg materiële38te starten. Het gebruik van hele genoom versterking (WGA) en hele transcriptome versterking (WTA) technieken, waardoor de verrijking van DNA en RNA van zeer kleine hoeveelheden weefsel, heeft een revolutie teweeggebracht in zowel de medische als de metagenomics39,40 onderzoek41. Deze technologieën toegepast op gepelde slapende eieren kunnen de overschrijding van de beperkingen die zijn gekoppeld aan de levensvatbaarheid van slapende fases en de onderzoeken van de langere termijnen (bijvoorbeeld, eeuwen).
De opstanding van ongewervelde gemeenschappen produceren rust stadia kunt de uitlijning van communautaire geschiedenissen met bekende veranderingen in de natuurlijke landschappen, of veranderingen in het milieu afgeleid uit analyses van de sedimenten orsoils2. De analyse van de Gemeenschap veranderingen in reactie op veranderingen in het milieu biedt ons de mogelijkheid om te kwantificeren van eco-evolutionaire feedback42 die aanzienlijke gevolgen hebben voor de bevolking persistentie43, trofische interacties44 , communautaire vergadering45, en veranderingen in het ecosysteem functies en diensten46. Ten slotte, accurate voorspellingen over biologische reacties op veranderingen in het milieu staan bij de bescherming van biodiversiteit47. Huidige voorspellende modellen zijn onjuist in dit opzicht, omdat ze niet rekening account belangrijke biologische mechanismen zoals demografie, verspreiding, evolutie en soorten interacties. Begrijpen hoe deze processen veranderen na verloop van tijd en met behulp van deze informatie als een prior in verwachte modellering zal verbeteren ons vermogen om te voorspellen van soorten en Gemeenschap persistentie in het gezicht van milieu wijzigen2.
De toepassing van het hier gepresenteerde SOP is niet zonder problemen. De belangrijkste beperking van resurrecting slapende fases is de behoefte aan gespecialiseerde apparatuur voor de bemonstering. Bovendien, vereist het hele proces, van sediment zeven tot oprichting van de culturen van het klonen, aanzienlijke hands-on tijd.
Enkele van de stappen van de SOP hier gepresenteerd zijn gemakkelijk overdraagbaar naar andere Daphnia -soorten. Dit zijn: bemonstering, oprichting van klonen lijnen en experimenteel design. Andere stappen van het SOP kunnen echter verdere optimalisatie afgestemd op de soort bestudeerde. Uitpakken van gegevenspakketten verstaan wordt vaak toegepast voor D. magna specimens to improve succes van broedeieren. Echter, deze aanpak mogelijk niet geschikt voor kleinere exemplaren. Broedeieren van prikkels kan ook verschillen tussen soorten48 en conspecific specimen49. Vandaar, een ad hoc- optimalisatie van de broedeieren stappen van de SOP kan worden vereist vóór toepassingen voor andere schaaldieren. Hoewel het succes van de broedeieren van de bevolking van de D. magna herrezen uit Lake Ring (30,5% over de sedimentaire archief) in overeenstemming met de eerdere resultaten49, varieert broedeieren succes met de staat van instandhouding van het sediment, de soorten 50,51, en de geografische oorsprong van het sediment48. Toekomstige studies over de mechanismen die ingang en progressie door de fasen van de diapauze regelen is vereist voor het identificeren van de optimale broedeieren prikkels op maat van verschillende soorten.
Tenslotte, de achtergrond van kennis van de studie-systeem, met name de aanwezigheid van de soorten van belang na verloop van tijd is aan te raden. Dit kan worden bereikt via de historische records. Als historische gegevens niet beschikbaar zijn, is bemonstering en screening van de oppervlakte lagen van het sediment lake vóór de bemonstering van de kern het raadzaam, hoewel zij informatie alleen over de meest recente geschiedenis verschaffen kan.
Openbaarmakingen
De auteurs hebben niets te onthullen
Dankbetuigingen
Dit werk werd gesteund door de NERC hoogtepunten subsidie (NE/N016777/1). Ensis Ltd, wetenschappelijke milieudiensten, Environmental Change Research Centre, University College London bemonsterd en gedateerd van de kern van het sediment.
Materialen
```html
```
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| sampling bags | Fisher Scientific | 11542783 | Sampling bag revolve round wires closure system and safety tabs steriele polyethyleen met schrijfoppervlak helder 89µm dikte 140mm x 229mm, 720mL Fisherbrand |
| piston corer | ENSIS ltd | na | Lange, zware buis die in de zee, het meer of de vijverbodem wordt geplungd om monsters van modder en sediment te extraheren. Zuigerkerners hebben een variabele diameter en zijn over het algemeen van PVC |
| precision scale | Veritas-M124A | TLP-50 | Analytische balans |
| geological sieve | UKGE limited | SV7521 | Geologische zeef van 200 mm diameter - 1 mm maas |
| geological sieve | UKGE limited | SV7525 | Geologische zeef van 200 mm diameter - 0,125 mm maas |
| white sampling tray | nhbs | http://www.nhbs.com/title/view/159614?ad_id=1509 | Standaard multifunctionele labbakjes |
| pasteur pipette | Globe Scientific inc. | 138020B | Transferpipet, 1,7mL, Algemeen Gebruik, 87mm, Bulb Draw - 0,9mL |
| stereo microscope | nikon | smz800 | Microscoop met vergrotingsbereik 1x -8x gekoppeld aan een camerabedieningseenheid |
| petri dish | EduLab | 153-533 | Steriele kunststof petrischaal met een diameter van 90 mm |
| glass jars | compak | Round Jam Jars 4oz | 100 mL potten |
| glass jars | compak | Atum Jars/ Bonta Jar 10oz | 200 mL potten |
| glass jars | bottlecompanysouth | 500ml Food Jam Jar With Twist Off Lid | 500 mL potten |
| statistical software R | https://cran.r-project.org/ | na | Gratis online GNU taal en omgeving voor statistische berekening en grafiek |
| microdissection forceps | Fisher Scientific | 41122405 | Fijne punt roestvrijstalen pincetten voor microdissecties |
| image software | https://imagej.nih.gov/ij/index.html | na | Open source ImageJ beeldverwerkingstoolkit geschreven in Java |
| mesocosm | amazon | na | Nobby Fauna-Box III, 41 x 23 x 29 cm, 20,0 liter |
| mirocentrifuge tubes | Sigma_Aldrick - Merck | Z606340 | Premium microcentrifugebuisjes van 1,5 mL |
| AGENCOURT DNAdvance | Beckman Coulter | A48705 | DNA-extractiekit |
| size standard | Thermo Fisher Scientific | 4322682 | LIZ500 - Groottenorm compatibel met ABI-sequencers |
| ABI3032 sequencer | ABI | na | Sequencer gebruikt om fragmentanalyse of Sanger-sequencing uit te voeren |
Referenties
- Lindenmayer, D. B., et al. Value of long-term ecological studies. Austral Ecol. 37 (7), 745-757 (2012).
- Orsini, L., et al. The evolutionary time machine: using dormant propagules to forecast how populations can adapt to changing environments. TREE. 28, 274-282 (2013).
- Grant, P. R., Grant, B. R. Unpredictable evolution in a 30- year study of Darwin's finches. Science. 296, 707-711 (2002).
- Lohbeck, K. T., Riebesell, U., Reusch, T. B. H. Adaptive evolution of a key phytoplankton species to ocean acidification. Nature Biosci. 5, 346-351 (2012).
- Barrick, J. E., et al. Genome evolution and adaptation in a long-term experiment with Escherichia coli. Nature. 461 (7268), 1243-1247 (2009).
- Barrick, J. E., Lenki, R. Genome dynamics during experimental evolution. Nat Rev Genet. 14, 827-839 (2013).
- Blount, Z. D., Barrick, J. E., Davidson, C. J., Lenski, R. E. Genomic analysis of a key innovation in an experimental Escherichia coli population. Nature. 489 (7417), 513-518 (2012).
- Kawecki, T. J., et al. Experimental evolution. TREE. 27, 547-560 (2012).
- Fukami, T., Wardle, D. A. Long-term ecological dynamics: reciprocal insights from natural and anthropogenic gradients. P Roy Soc B-Biol Sci. 272, 2105-2115 (2005).
- Merila, J., Hendry, A. P. Climate change, adaptation, and phenotypic plasticity: the problem and the evidence. Evol Appl. 7 (1), 1-14 (2014).
- Evans, M. E., Dennehy, J. J. Germ banking: bet-hedging and variable release from egg and seed dormancy. Q Rev Biol. 80 (4), 431-451 (2005).
- Appleby, P. G. Chronostratigraphic techniques in recent sediments. 1, Kluwer Academic Publisher. (2001).
- Appleby, P. G., et al. PB-210 dating by low background gamma-counting. Hydrobiologia. 143, 21-27 (1986).
- Bidle, K. D., Lee, S. H., Marchant, D. R., Falkowski, P. G. Fossil genes and microbes in the oldest ice on Earth. PNAS. 104, 13455-13460 (2007).
- Geerts, A. N., et al. Rapid evolution of thermal tolerance in the water flea Daphnia. Nat Clim Change. 5, 665-668 (2015).
- Jansen, M., et al. Thermal tolerance in the keystone species Daphnia magna-a candidate gene and an outlier analysis approach. Mol Ecol. 26 (8), 2291-2305 (2017).
- Hairston, N. G. Jr, De Stasio, B. T. Jr Rate of evolution slowed by a dormant propagule pool. Nature. 336, 239-242 (1988).
- Hairston, N. G. Jr, et al. Lake ecosystems: Rapid evolution revealed by dormant eggs. Nature. 401, 446(1999).
- Weider, L. J., Lampert, W., Wessel, M., Colbourne, J. K., Limburg, P. Long-term genetic shifts in a microcrustacean egg bank associated with anthropogenic changes in the Lake Constance ecosystem. Proc. R. Soc. Lond. B. 264, 1613-1618 (1997).
- Kerfoot, W. C., Robbins, J. A., Weider, L. J. A new approach to historical reconstruction: Combining descriptive and experimental paleolimnology. Limnol Oceanogr. 44 (5), 1232-1247 (1999).
- Cousyn, C., et al. Rapid, local adaptation of zooplankton behavior to changes in predation pressure in the absence of neutral genetic changes. PNAS. 98, 6256-6260 (2001).
- Decaestecker, E., et al. Host-parasite Red Queen dynamics archived in pond sediment. Nature. 450, 870-874 (2007).
- Miner, B. E., De Meester, L., Pfrender, M. E., Lampert, W., Hairston, N. G. Linking genes to communities and ecosystems: Daphnia as an ecogenomic model. P Roy Soc B-Biol Sci. 279 (1735), 1873-1882 (2012).
- Ebert, D. Ecology, epidemiology, and evolution of parasitism in Daphnia. , National Library of Medicine (US), National Center for Biotechnology. (2005).
- Orsini, L., et al. Temporal genetic stability in natural populations of the waterflea Daphnia magna in response to strong selection pressure. Mol Ecol. 25, 6024-6038 (2016).
- IPCC. Summary for policymakers. , Cambridge, United Kingdom and New York, NY, USA. 1-32 (2014).
- Patmore, I. R., et al. Big Ben: a new wide-bore piston corer for multi-proxy palaeolimnology. J Paleolimnol. 51 (1), 79-86 (2014).
- Wright, H. E. Jr A square-rod piston sampler for lake sediments. J Sedimentary Petrology. 37, 975-976 (1967).
- Kilham, S. S., Kreeger, D. A., Lynn, S. G., Goulden, C. E., Herrera, L. COMBO: a defined freshwater culture medium for algae and zooplankton. Hydrobiologia. 377, 147-159 (1998).
- Klüttgen, B., Kuntz, N. orbert, Ratte, H. T. Combined effects of 3,4-dichloroaniune and food concentration on life-table data of two related cladocerans, Daphnia magna and Ceriodaphnia quadrangula. Chemosphere. 32, 2015-2028 (1996).
- R: A language and environment for statistical computing. , Vienna, Austria. (2017).
- Jansen, B., Geldof, S., De Meester, L., Orsini, L. Isolation and characterization of microsatellite markers in the waterflea Daphnia magna. Mol Ecol Res. 11, 418-421 (2011).
- Orsini, L., Spanier, K. I., De Meester, L. Genomic signature of natural and anthropogenic stress in wild populations of the waterflea Daphnia magna: validation in space, time and experimental evolution. Mol Ecol. 21, 2160-2175 (2012).
- Verberk, W. C. E. P., et al. Does oxygen limit thermal tolerance in arthropods? A critical review of current evidence. Comp Biochem Physiol A Mol Integr Physiol. 192, 64-78 (2016).
- Frisch, D., et al. A millennial-scale chronicle of evolutionary responses to cultural eutrophication in Daphnia. Ecol Lett. 17 (3), 360-368 (2014).
- Yashina, S., et al. Regeneration of whole fertile plants from 30,000-y-old fruit tissue buried in Siberian permafrost. PNAS. 109, 4008-4013 (2012).
- Southam, A. D., Weber, R. J. M., Engel, J., Jones, M. R., Viant, M. R. A complete workflow for high-resolution spectral-stitching nanoelectrospray direct-infusion mass-spectrometry-based metabolomics and lipidomics. Nat Protoc. 12 (2), 310-328 (2017).
- Rhodes, J., Beale, M. A., Fisher, M. C. Illuminating Choices for Library Prep: A Comparison of Library Preparation Methods for Whole Genome Sequencing of Cryptococcus neoformans Using Illumina HiSeq. Plos One. 9 (11), (2014).
- Baym, M., et al. Inexpensive Multiplexed Library Preparation for Megabase-Sized Genomes. Plos One. 10 (5), 6(2015).
- Bourcy, C. F. A., et al. A Quantitative Comparison of Single-Cell Whole Genome Amplification Methods. Plos One. 9 (8), (2014).
- Hasmats, J., et al. Assessment of whole genome amplification for sequence capture and massively parallel sequencing. PLoS One. 9 (1), e84785(2014).
- Becks, L., Ellner, S. P., Jones, L. E., Hairston, N. G. Jr The functional genomics of an eco-evolutionary feedback loop: linking gene expression, trait evolution, and community dynamics. Ecol Lett. 15 (5), 492-501 (2012).
- Ellner, S. P., Geber, M. A., Hairston, N. G. Does rapid evolution matter? Measuring the rate of contemporary evolution and its impacts on ecological dynamics. Ecol Lett. 14 (6), 603-614 (2011).
- Yoshida, T., Jones, L. E., Ellner, S. P., Fussmann, G. F., Hairston, N. G. Jr Rapid evolution drives ecological dynamics in a predator-prey system. Nature. 424 (6946), 303-306 (2003).
- Urban, M., et al. The evolutionary ecology of metacommunities. TREE. 23, 311-317 (2008).
- Dokulil, M. T. Eutrophication: Causes, Consequences and Control. , Springer. Netherlands. 81-88 (2014).
- Urban, M. C., et al. Improving the forecast for biodiversity under climate change. Science. 353 (6304), (2016).
- Schwartz, S. S., Hebert, P. D. N. Methods for the activation of the resting eggs of Daphnia. Freshwater Biol. 17, 373-379 (1987).
- Vanderkerhove, J., et al. Hatching of cladoceran resting eggs: temperature and photoperiod. Freshwater Biol. 50, 96-104 (2005).
- Caceres, C. E. Temporal variation, dormancy, and coexistence: a field test of the storage effect. PNAS. 94 (17), 9171-9175 (1997).
- Caceres, C. E. Interspecific variation in the abundance, production, and emergence of Daphnia diapausing eggs. Ecology. 79 (5), 1699-1710 (1998).
Herprints en machtigingen
