De architectuur van eiwitcomplexen is essentieel voor hun functie. Diverse massaspectrometrische technieken combineren bewezen krachtige te bestuderen van hun vergadering. Wij bieden protocollen voor chemische dwarsbinding en inheemse massaspectrometrie en laten zien hoe deze complementaire technieken helpen ophelderen van de architectuur van multi subeenheid eiwit assemblages.
Methodenartikel
Chemische dwarsbinding en massaspectrometrie van Intact eiwitcomplexen te bestuderen de architectuur van multi subeenheid eiwit assembly's combineren
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Eiwitten interactie met hun liganden voor vorm-actieve en dynamische samenstellen die verschillende cellulaire functies uitvoeren. Deze interacties ophelderen is daarom van fundamenteel belang voor het begrijpen van cellulaire processen. Zijn dynamische assemblages echter veel eiwitcomplexen en zijn niet toegankelijk door conventionele structurele technieken. Massaspectrometrie draagt bij aan het structurele onderzoek van deze vergaderingen, en met name de combinatie van diverse massaspectrometrische technieken levert waardevolle inzichten in hun structurele regeling.
In dit artikel beschrijven we de toepassing en de combinatie van twee complementaire massaspectrometrische technieken, namelijk chemische dwarsbinding gekoppeld aan massaspectrometrie en inheemse Spectrometrie van de massa. Chemische dwarsbinding betekent de covalente binding van aminozuren in de nabijheid met behulp van chemische reagentia. Na de spijsvertering met proteasen, kruislings gekoppelde di-peptiden zijn geïdentificeerd door massaspectrometrie en eiwit interacties sites zijn ontdekt. Native Spectrometrie van de massa is aan de andere kant de analyse van intacte eiwitten assemblages in de gasfase van een massaspectrometer. Het openbaart eiwit stoichiometries evenals eiwitten en ligand interacties. Beide technieken leveren daarom aanvullende informatie over de structuur van het eiwit-ligand verzamelingen en hun combinatie bewezen krachtige in eerdere studies.
Inleiding
Het structurele onderzoek van eiwit assembly's is bijzonder belangrijk voor het begrijpen van cellulaire processen geworden. Bijgevolg, veel, technieken zijn ontwikkeld en verbeterd in structurele biologie1. Deze technieken zijn echter soms beperkt in hun toepassing als gevolg van de heterogeniteit van de eiwitcomplexen onderzochte, grootte en flexibiliteit. Massaspectrometrie kan omgaan met deze uitdagingen en daarom, naar voren gekomen als een krachtig instrument in structurele biologie2,,3,,4,5. Het grootste voordeel van de Spectrometrie van de massa, is echter de mogelijkheid om proteïnen zelfs in complexe en heterogene mengsels6ondubbelzinnig te identificeren. Te dien einde eiwitten zijn meestal verteerd met endoproteinases en het resulterende mengsel van peptide is gescheiden door vloeistofchromatografie en rechtstreeks in de massaspectrometer geëlueerd. Peptide massa's worden vervolgens vastgesteld en voorloper ionen zijn geselecteerd voor verdere versnippering van de peptiden. Eiwitten worden vervolgens geïdentificeerd door zoeken peptide en overeenkomstige fragment massa's tegen een bekend database. Deze procedure kunt niet alleen de identificatie van peptiden/eiwitten maar ook hun posttranslationele modificaties die leiden tot een massale verschuiving van de voorloper van peptiden en de uitvoering van de wijziging7fragment-ionen. Sommige van de vele technieken in structurele massaspectrometrie zijn gebaseerd op dit principe4,8. Bijvoorbeeld, voet labeling technieken zoals waterstof: deuterium exchange9,10, chemische labeling strategieën11,12, of hydroxyl radicaal afdrukken13,14 , geven inzicht in de oppervlakte toegankelijkheid van de eiwitten onder bepaalde voorwaarden.
Een andere techniek is (chemische) dwarsbinding waarbij de covalente binding van aminozuren in de nabijheid door hun functionele groepen. Hiervoor zijn chemische reagentia, UV-gevechts reagentia of aminozuren werknemer15,16. Na de cross-linking, de eiwitten zijn meestal gehydrolyseerd met proteasen en kruislings gekoppelde di-peptiden zijn geanalyseerd door vloeibare chromatografie-gekoppelde massaspectrometrie. De identificatie van producten van de cross-linking door database zoeken, echter, vereist het gebruik van gespecialiseerde software die aaneenschakelen peptide reeksen van verschillende eiwitten en uiteenlopende regio's17,18,19. Het gebruik van chemische cross-linkers heeft het voordeel dat het kan worden gebruikt om bijna elk eiwit complex van belang en vereist geen opneming van UV-gevechts aminozuren, die alleen bereikt kan worden als uiting van de proteïne van belang in de cellen van de gastheer. Als zodanig, dwarsbinding is een veelzijdig instrument en werd met succes werkzaam in vele structurele studies van zelfs grote eiwit assemblages20.
De Spectrometrie van de massa van intact eiwitcomplexen (soms genoemd 'native' massaspectrometrie), aan de andere kant, omvat de analyse van intacte eiwitten en eiwitcomplexen zonder hydrolyse in peptiden. Het openbaart samenstelling, heterogeniteit stoichiometrie, topologie en subeenheid interacties van eiwit complexen21,22. In combinatie met ion mobiliteit kunt inheemse massaspectrometrie verder bepaling van hun conformatie23,24. Dit maakt het een krachtig hulpmiddel voor het structurele onderzoek van eiwitcomplexen, die moeilijk te beoordelen door conventionele structurele technieken. Native massaspectrometrie vereist echter analyse buffers, die niet-covalente eiwitinteractie tijdens electrospray ionisatie handhaven. Dit wordt meestal bereikt met behulp van waterige, vluchtige buffers zoals ammonium acetaat25. Daarnaast, zijn instrument wijzigingen noodzakelijk om te voorkomen dat dissociatie tijdens de overdracht in de gasfase van de massaspectrometer26. Op deze wijze wordt toegepast, werden veel (grote) eiwitcomplexen geanalyseerd. Indrukwekkende voorbeelden zijn de studies van intact ribosomen27, ATP synthases28of virussen29.
De combinatie van inheemse Spectrometrie van de massa en dwarsbinding bijzonder succesvol in eerdere studies gebleken. Bijvoorbeeld, de stoichiometries van de Chaperon complexen, met inbegrip van een onverwachte Hsp70 dimeer, kon worden verkregen uit experimenten van de Spectrometrie van de massa van de intact eiwitcomplexen, terwijl chemische dwarsbinding geopenbaard de regelingen van de eiwitten in de assembly's30,31. In een andere studie, werden de effecten van posttranslationele modificaties op een intact ATP-synthase complex bestudeerd. Native massaspectrometrie verschaft inzicht in de complexe eiwitstabiliteit in de aanwezigheid of afwezigheid van fosforylering of acetylation32,33. Een vergelijkende cross-linking strategie34 bleek vervolgens conformationele wijzigingen van het eiwit complex onder de verschillende omstandigheden.
Hier bieden wij de protocollen voor eiwit identificatie door massaspectrometrie (chemische) dwarsbinding en inheemse massaspectrometrie, met inbegrip van data-analyse en interpretatie (Figuur 1). De combinatie van aanvullende resultaten verkregen uit deze methoden met behulp van twee goed gekarakteriseerd eiwitcomplexen is aangetoond dat35. Ons protocol kan worden toegepast op elke proteïne-assemblage die kan worden gezuiverd op bepaalde zuiverheid en concentratie. De aanpak is in sommige gevallen beperkt door data-analyse van gegevens, dat wil zeggen, de grootte van de database dwarsbinding werkzaam, die bepaalt dat de vereiste zoekruimte en tijd. Daarnaast handmatige validatie van geïdentificeerde cross-links wordt vaak vereist en verder beperkt de uitvoer. Native massaspectrometrie wordt meestal beperkt door de kwaliteit van de steekproef, bijvoorbeeld, buffers en adducten gebruikt tijdens de reiniging en de mogelijkheid om te wisselen ze door waterige en vluchtige buffers. Eiwitcomplexen gezuiverd voor structurele analyse meestal wel de vereiste voor succesvolle analyse met onze protocollen kwaliteit.
Protocol
1. de zuivering van eiwitcomplexen
- Eiwit complex volgens geoptimaliseerde standaardprotocollen voor te bereiden.
Opmerking: Het protocol is hier gedemonstreerd met de RvB1/B2 complex van Chaetomium thermophilum en de carbamoylfosfaat fosfaat synthase (CPS) van Escherichia coli. RvB1/B2 en CPS werden gezuiverd als beschreven36,37. Elk eiwit complex vereist een individuele zuivering-protocol. Het protocol dienovereenkomstig aanpassen. Amine-vrije buffers zoals-fosfaatgebufferde zoutoplossing (PBS) of 2-[4-(2-hydroxyethyl)piperazin-1-yl]ethanesulfonic zuur (HEPES) moeten worden gebruikt voor chemische dwarsbinding. Vervang de buffer tijdens het zuiveringsproces ongehinderd indien mogelijk.
Let op: Niet van toepassing methoden of reagentia die de inheemse vergadering van het eiwit complex verstoren.
2. massa spectrometrie gebaseerde eiwit identificatie
-
De gelelektroforese van het
Opmerking: Er zijn verschillende gel systemen beschikbaar en ieder laboratorium zijn eigen setup gebruikt. Passen de voorwaarden volgens het systeem van de gel. Draag handschoenen en laboratoriumjas in het gehele protocol zoals keratines tot de meest voorkomende verontreinigingen in massaspectrometrische analyse behoren.- 7.5 µL 4 x monster buffer en 3 µL 10 x reductiemiddel (eindconcentratie 50 mM dithiothreitol (DTT)) toepassen op 20 µL eiwitSteekproef. Gebruik 10 µM CPS of 2,5 µM RvB1/B2. Spin down voor 1 min bij 16,200 × g en hitte gedurende 10 minuten bij 70 ° C.
Opmerking: Wanneer de vereiste hoeveelheden en de temperatuur van de verwarming met behulp van een verschillende gel systeem aanpassen. - Bereid een kleurovergang gel van 4-12% voor elektroforese. Verdun de lopende buffer 20 keer met water en vul de elektroforese kamer. Gebruik 2-(N-morfolino) ethanesulfonic zuur (MES) buffer voor eiwitten van kleinere molecuulgewicht (2-200 kDa) en 3-(N-morfolino) propanesulfonic zuur (MOPS) buffer voor grotere proteïnen (14-200 kDa). Voeg 0,5 mL antioxidant aan de binnenkamer.
Opmerking: Gebruik een verschillende gel systeem wanneer lopende buffer en de gel volgens fabrikant protocollen voorbereiden. - Laden van een geschikte eiwit marker (vooraf gebeitst, onbevlekt, verschillende moleculaire maten) in de eerste Holte en laadt de eiwitsteekproeven in de resterende Holten.
- Aparte eiwitten voor 35 min (MES) of 50 min (MOPS) bij 200 V.
Opmerking: De elektroforese tijden en spanning voor verschillende gel systemen aanpassen. - Om de vlek de eiwit-bands, breng de gel in een gel kleuring vak en bedek de gel met een watergedragen Coomassie kleurstofoplossing. Incubeer 's nachts en bij kamertemperatuur op een horizontale gel shaker.
- Destain de gel door de kleurstofoplossing vervangen door water. Herhaal deze stap meerdere keren (ongeveer 3 - 5 keer), totdat de gel achtergrond wordt duidelijk weergegeven.
- 7.5 µL 4 x monster buffer en 3 µL 10 x reductiemiddel (eindconcentratie 50 mM dithiothreitol (DTT)) toepassen op 20 µL eiwitSteekproef. Gebruik 10 µM CPS of 2,5 µM RvB1/B2. Spin down voor 1 min bij 16,200 × g en hitte gedurende 10 minuten bij 70 ° C.
-
In-gel spijsvertering
Opmerking: Om besmetting te voorkomen, HPLC rang oplosmiddelen in het gehele protocol spijsvertering en voor alle volgende stappen (d.w.z., massaspectrometrische analyse) gebruiken. Alle oplossingen voorafgaand aan gebruik en filtraat water en ammoniak bicarbonaat voor te bereiden.- Knip de eiwit-bands die worden gevisualiseerd door blauwe Coomassie vlek uit de gel met behulp van een scalpel. Zorgvuldig de bands van de eiwitten in kleine stukjes gesneden van ongeveer 1 mm × 1 mm. Spoel de scalpel met water tussen verschillende eiwit bands. Wassen van de bands gel met water en acetonitril (ACN).
- Dissulfide bindingen met DTT verminderen, cysteïne residuen met iodoacetamide alkylate en verteren proteïnen met trypsine zoals eerder beschreven38; meestal wordt een enzym: eiwitten ratio van 1:20 tot 1:100 gebruikt. 100 mM Ammoniumbicarbonaat tijdens de spijsvertering-protocol gebruiken.
- Uittreksel peptiden in twee stappen.
- Eerst de gel stukken met Ammoniumbicarbonaat en ACN Incubeer en verzamelen het supernatant peptide bevattende. Ten tweede, Incubeer de gel stukken met 5% (v/v) mierenzuur en ACN. Incubeer gedurende 15 minuten staan bij elke stap. Combineer beide supernatant. Droog de uitgepakte peptiden door verdamping van de oplosmiddelen in een vacuüm centrifuge.
Opmerking: Gedroogde peptiden kunnen worden opgeslagen bij-20 ° C voor enkele maanden.
- Eerst de gel stukken met Ammoniumbicarbonaat en ACN Incubeer en verzamelen het supernatant peptide bevattende. Ten tweede, Incubeer de gel stukken met 5% (v/v) mierenzuur en ACN. Incubeer gedurende 15 minuten staan bij elke stap. Combineer beide supernatant. Droog de uitgepakte peptiden door verdamping van de oplosmiddelen in een vacuüm centrifuge.
-
Vloeibare chromatografie-gekoppelde massaspectrometrie
- Los de gedroogde peptiden in 2% mierenzuur van ACN/0.1%. Los de peptiden in een ultrasoonapparaat bad voor 2-3 min en spin naar beneden in een centrifuge bij 16,200 x g voor 30 min. overdracht de monsters in autosampler flesjes.
Opmerking: Het volume volgens het bedrag van het eiwit. Voor goed gekleurd Coomassie bands gebruiken we 20 µL. - 5 µL van het monster tot de nano-LC-MS/MS-systeem met behulp van de autosampler injecteren. Laden van de peptide mengsel op een reversed-phase C18 pre kolom (C18 150 µm I.D., 2 cm, poriëngrootte 5 µm) concentreren de peptiden online te desalt.
- Gebruik van mierenzuur van 0,1% (v/v) mobiele fase A en mierenzuur van 80% ACN/0.1% (v/v) als mobiele fase B. aparte de peptiden in een reversed-phase C18 analytische kolom (C18, 75 µm I.D., 50 cm, 3 µm poriegrootte) met behulp van een helling van 4-80% B (met 0,1% mierenzuur) bij 300 nL / min meer dan 65 min.
Opmerking: Een nanospray ion bron wordt geëlueerd peptiden overbrengen naar de massaspectrometer gebruikt. - (Normaal) MS gebruiksvoorwaarden: spuiten spanning van 1.6 kV; capillaire temperatuur van 250 ° C; de energie van de genormaliseerde botsing van 30. De massaspectrometer in gegevens-afhankelijke modus werken.
- Verwerven van de MS-spectra in de massale analyzer (bijvoorbeeld, orbitrap) (m/z 350−1, 600) met een resolutie van 70.000 en een automatische gain control doelwit van 3 x 10⁻⁶. Selecteer 20 van de meest intense ionen voor HCD fragmentatie bij een automatische gain control target van 1 x 10,5. Dynamisch geselecteerde uitsluiten eerder ionen voor 30 s. uitsluiten afzonderlijk betalen zowel ionen als ionen met onbekende kosten staat.
Opmerking: Interne kalibratie van de massaspectra werd uitgevoerd met behulp van de sluis massa optie39.
- Los de gedroogde peptiden in 2% mierenzuur van ACN/0.1%. Los de peptiden in een ultrasoonapparaat bad voor 2-3 min en spin naar beneden in een centrifuge bij 16,200 x g voor 30 min. overdracht de monsters in autosampler flesjes.
-
Database zoeken
Opmerking: Is er verschillende software beschikbaar voor het zoeken van de database. MaxQuant40, bijvoorbeeld, is vrij beschikbaar.- .Raw-bestanden converteren naar .mgf-bestanden met behulp van een pXtract conversietool (http://pfind.ict.ac.cn/downloads.html).
- Database te doorzoeken met behulp van de typische zoekparameters: Database, swissprot; Peptide massa tolerantie, 10 ppm; fragment massa tolerantie, 0.5 Da; enzym, trypsine; gemiste decollete sites, 2; variabele wijzigingen, carbamidomethylation (cysteïne) en oxidatie (methionine).
Opmerking: De zoekparameters volgens de experimentele instellingen wijzigen. - Inspecteer het zoekresultaat database. Evalueren van de eiwit-score, aantal peptiden geïdentificeerd, peptide scores en massale nauwkeurigheid; de reeks dekking geeft als resultaat de dekking van de eiwitten geïdentificeerd.
Opmerking: Elke zoekmachine heeft zijn individuele scoren algoritme. Evalueren van de peptide scoring systeem door de kwaliteit van de tandem massaspectra waargenomen. De belangrijkste signalen van een goede spectrum moeten worden weergegeven (volledige) ion serie om te controleren of de geïdentificeerde peptide. De peptide-score is meestal op basis van waarschijnlijkheid, dat wil zeggen, de peptide-score is een maat voor hoe waarschijnlijk de geïdentificeerde peptide-volgorde komt overeen met de verkregen spectrum. De eiwit-score is meestal afgeleid van peptide scores en wordt gebruikt voor het rangschikken van een proteïne in een lijst van geïdentificeerde eiwitten.
3. massaspectrometrie van Intact eiwitcomplexen (Native massaspectrometrie)
- Voorbereiding van goud beklede vervuilers electrospray ionisatie
- Gebruik een micropipet trekker te bereiden nanoflow vervuilers van glas haarvaten zoals eerder beschreven25,41. Borosilicaat haarvaten met een binnendiameter van 0.78 mm gebruiken.
Opmerking: Door het veranderen van de parameters voor het trekken van de naald, de vorm en de grootte kunnen worden gewijzigd en aangepast voor het monster. Haarvaten met verschillende innerlijke diameter en muur dikte zijn beschikbaar. - Coat de haarvaten glas met geleidend materiaal (bijvoorbeeld, goud of palladium); het gebruik van een sputter coater genereren een gouden plasma is gebruikelijk. Volg de instructies van de fabrikant voor het verkrijgen van goede kwaliteit coating.
Opmerking: De coating moet voldoende genoeg om een stabiele spray bij de toepassing van gemeenschappelijke capillaire spanningen (zie hieronder).
- Gebruik een micropipet trekker te bereiden nanoflow vervuilers van glas haarvaten zoals eerder beschreven25,41. Borosilicaat haarvaten met een binnendiameter van 0.78 mm gebruiken.
- Bereiding van de monsters voor inheemse massaspectrometrie
Opmerking: Zouten, detergenten of grote hoeveelheden glycerol zijn niet compatibel met electrospray ionisatie. Daarom is de zuivering buffer uitgewisseld via een vluchtige, waterige buffer. 200 mM ammoniumacetaat wordt vaak gebruikt. Grootte uitsluiting spin kolommen of ultrafiltratie apparaten gebruiken voor uitwisseling van de buffer. In sommige gevallen kan complexe stabiliteits- of activiteit worden beïnvloed door buffer uitwisseling. Zorgvuldig evalueren van de massaspectra en controleren van de activiteit van het complex. Cofactoren of additieven aan de buffer analyse, desgewenst toevoegen.- Kolomsgewijs grootte uitsluiting spin voor snelle buffer uitwisseling. Verwijder de opslag buffer door centrifugeren bij 1.000 x g en 4 ° C voor 1 min. negeren de stroom door. Spoel driemaal door toevoeging van 500 µL 200 mM ammoniumacetaat, gevolgd door centrifugeren. Laden 20 µL van het eiwit monster op de kolom en de centrifuge op 1.000 x g- en 4 ° C voor 4 min.
Opmerking: De concentratie van het eiwit complex moet 1-10 µM. De procedure kan worden herhaald als niet-vluchtige componenten nog de analyse verstoren. - Concentreren de eiwitSteekproef te wisselen van de buffer in hetzelfde experiment centrifugaal filters gebruiken. Gebruik een membraan van de filtratie van porie grootte 50% kleiner dan de grootte van de eiwitten geanalyseerd.
- Breng de eiwitSteekproef in de filtratie apparaat en 200 mM ammoniumacetaat toe te voegen. Spin down bij 15.000 x g en negeren de stroom door. 200 mM ammoniumacetaat toevoegen en herhaalt u het centrifugeren. Herhaal deze stap meerdere keren. Volg de instructies van de fabrikant voor centrifugeren snelheid. Uitvoeren van het centrifugeren bij 4 ° C.
Let op: Membraaneiwitten hebben de neiging te precipiteren op het membraan van het filter-apparaat.
- Breng de eiwitSteekproef in de filtratie apparaat en 200 mM ammoniumacetaat toe te voegen. Spin down bij 15.000 x g en negeren de stroom door. 200 mM ammoniumacetaat toevoegen en herhaalt u het centrifugeren. Herhaal deze stap meerdere keren. Volg de instructies van de fabrikant voor centrifugeren snelheid. Uitvoeren van het centrifugeren bij 4 ° C.
- Kolomsgewijs grootte uitsluiting spin voor snelle buffer uitwisseling. Verwijder de opslag buffer door centrifugeren bij 1.000 x g en 4 ° C voor 1 min. negeren de stroom door. Spoel driemaal door toevoeging van 500 µL 200 mM ammoniumacetaat, gevolgd door centrifugeren. Laden 20 µL van het eiwit monster op de kolom en de centrifuge op 1.000 x g- en 4 ° C voor 4 min.
- Massaspectrometrische analyse van intacte eiwitcomplexen
Opmerking: Er zijn verschillende soorten massaspectrometers van verschillende fabrikanten, die kunnen worden gewijzigd voor inheemse massaspectrometrie, bijvoorbeeld, vierpolige time-of-flight (Q-ToF) massaspectrometers of orbitrap massaspectrometers. Het protocol hieronder beschreven werd uitgevoerd op een instrument van het Q-ToF.- Schakel een capillair goud beklede in de capillaire houder en vul het capillair met 1-4 µL van eiwitSteekproef. Open het puntje van de naald met een pincet.
- Sluit de capillaire houder met de nano-electrospray-bron en de positie van de capillaire aanpassen. Plaats het uiteinde van het capillair aan 0,5-1,5 cm tot de opening van de kegel. 80-150 L/h nanoflow gas om te starten van de spray en aanpassen van de gasstroom te handhaven van een stabiel spray te gebruiken.
- Stel parameters in de tune-pagina van het instrument van het Q-ToF. Typische begin voorwaarden zijn: capillaire spanning, 1,50 kV; kegel spanning, 80 V; RF-lens 1 energie, 80 V; botsing energie, 20 V; diafragma 3, 13,6 V. wijzigen deze parameters worden gebruikt voor het verkrijgen van goede massaspectra. Start de verwerving door te klikken op de knop "verwerven" en combineren van zo veel scans mogelijk bij het verkrijgen van een goede massaspectrum.
Opmerking: We raden ten minste 100 scans te combineren.
- Tandem Spectrometrie van de massa van intact eiwitcomplexen
- Verwerven de massaspectrum zoals hierboven (punt 3.3 protocol) beschreven. Kies een ion van de voorloper van een eiwit complex.
- Veranderen van MS in MS/MS modus in het bestand van de overname. De MS/MS selectie ingesteld op de voorloper van de massa.
- Start de overname op lage botsing energie. Combineren van verschillende scans (ongeveer 20 scannen) om te controleren of de selectie van de juiste voorloper massa. Verhoog de energie van de botsing totdat het eiwit complex distantieert. Het verkrijgen van een goede massaspectrum combineren ten minste 500 scans.
Opmerking: Gestripte complexen hebben soms lage intensiteit. Het combineren van zo veel scans mogelijk kan de resolutie en signal-to-noise verhouding toenemen.
- In-oplossing dissociatie van intact eiwitcomplexen
Opmerking: Extra om inzicht te krijgen in eiwit interacties binnen de eiwitcomplexen, in-oplossing dissociatie kan worden uitgevoerd.- Bereiden de eiwitSteekproef zoals hierboven (punt 3.2) beschreven. Oplosmiddelen aan de eiwitSteekproef toevoegen of wijzigen van de pH te distantiëren van intact complexen in sub complexen. Typische oplosmiddelen zijn methanol, isopropanol en ACN; de pH van ammoniumacetaat wijzigen door toevoeging van azijnzuur of ammoniakoplossing. Verwerven massaspectra zoals hierboven (afdelingen 3.3 en 3.4) beschreven.
- Variëren de hoeveelheid oplosmiddel of het pH bereik voor het genereren van verschillende sub complexen. Typisch, de hoeveelheid oplosmiddel is 5-50% (eindconcentratie) en een typische pH bereik is 4-9. Beginnen met een lage concentratie oplosmiddel (5%) of lichte veranderingen in de pH en het verwerven van een massaspectrum (zie punt 3.3).
- Verhogen van de hoeveelheid oplosmiddel of wijzigen van de stapsgewijze pH tot sub complexen worden gegenereerd in de oplossing. Verwerven van massaspectra om sub complexen te analyseren.
- Kalibreren van gegevens
Opmerking: De verkregen massaspectra worden gekalibreerd extern met behulp van Cesium jodide (CsI) oplossing.- Los 100 mg CsI in 1 mL water.
- Verwerven van een massaspectrum van CsI. De botsing energie verkrijgen van clusters van de CsI over hetzelfde bereik als het eiwit complex m/z geanalyseerd boven variëren.
Let op: CsI snel precipitaten op het puntje van de emitter en vervuilt de kegel. Verwerven zoveel als nodig is om te winnen een voldoende spectrum scant. Verwijder de emitter uit de bron als u klaar bent. - Maak een bestand van de kalibratie met behulp van de verworven massaspectrum en een referentiebestand CsI.
- Kalibratie van toepassing op de verkregen massaspectra.
Let op: Kalibratie van massaspectra mogelijk een permanente verandering van de ruwe gegevens. Als niet-gekalibreerd spectra nodig zijn, moet u een back-up van het bestand.
- Dataverwerking en -analyse
Opmerking: Er zijn vele vrij-beschikbare softwaretools voor data-analyse van inheemse massaspectra; bijvoorbeeld, Massign42 of UniDec43. Het protocol hieronder beschrijft handmatige data-analyse met behulp van instrument software, evenals het gebruik van Massign voor complexe monsters. Deze software is geschikt voor de analyse van complexe massaspectra. Volg de online aanwijzingen voor gebruik van het programma (http://massign.chem.ox.ac.uk/).- Voor data-analyse, vlotte spectra door smoothing parameters aan te passen. Centroid spectra door parameters aan te passen. Berekenen van complexe massa's van twee aangrenzende pieken van het eiwit complex' piek envelop gebruikend de hulpmiddelen van de software van de instrument.
Let op: Ook intensieve smoothing gegevensverlies (b.v., verlies van afhankelijke liganden) kan veroorzaken. - Voor analyse met Massign42, een lijst van de piek voor de massaspectrum te genereren. Linearize gegevenspunten van het spectrum en glad. Gebruik de verschillende softwarehulpmiddelen toewijzen van eiwitcomplexen, complexe samenstelling berekenen of simuleren van complexe piek enveloppen.
- Voor data-analyse, vlotte spectra door smoothing parameters aan te passen. Centroid spectra door parameters aan te passen. Berekenen van complexe massa's van twee aangrenzende pieken van het eiwit complex' piek envelop gebruikend de hulpmiddelen van de software van de instrument.
4. chemische dwarsbinding Coupled met massaspectrometrie
Opmerking: Er zijn talrijke cross-linking strategieën beschikbaar. Hier beschrijven we het gebruik van de Bis (sulfosuccinimidyl) suberate (BS3), een amine-reactieve cross-linker die is gebruikt bij het bestuderen van eiwit-eiwitinteractie.
- Los 1.43 mg BS3 in 100 µL water voor te bereiden van een stamoplossing van 25 mM.
Opmerking: Andere reagentia zoals disuccinimidyl suberate (DSS), zijn niet oplosbaar in water en worden meestal opgelost in dimethylsulfoxide (DMSO). Sommige cross-linkers zijn ook beschikbaar in zware vormen van het ionenpaar-label. Opneming van zware stabiele isotopen produceert piek paren van kruislings gekoppelde di-peptiden in MS-spectra, waarmee tijdens de evaluatie van de gegevens. Waarbij met behulp van differentieel Label cross-linkers, worden stamoplossingen van beide varianten voorbereid en gemengd 1:1.
Let op: Om te voorkomen dat de dissociatie van het eiwitcomplexen door DMSO, een sterk geconcentreerde stamoplossing is voorbereid en verdund met water of buffer vóór de cross-linking reactie. - BS3 toevoegen aan het eiwit complex. Gebruik van wisselende hoeveelheden BS3 variërend van 0.5-5 mM tot het identificeren van de optimale cross-linker concentratie. Incubeer de mengsels van de reactie bij 25 ° C gedurende 1 uur in een thermomixer. Gebruiken van 4-12% helling gels en uitvoeren van SDS-pagina om te evalueren van de cross-linking resultaten (Zie Figuur 2 voor een voorbeeld).
Opmerking: Optimale concentratie van BS3 wordt bereikt wanneer hoger moleculair gewicht eiwit banden, die niet zichtbaar in het besturingselement niet-kruis-unit linked zijn, worden verkregen tijdens de SDS-pagina terwijl één subeenheden nog steeds zichtbaar (Figuur 2 zijn). - Herhaal de cross-linking reactie met de optimale BS3-concentratie. Incubeer de mengsels van de reactie bij 25 ° C gedurende 1 uur in een thermomixer.
Opmerking: Sommige eiwitcomplexen zijn niet stabiel bij kamertemperatuur. De cross-linking reactie kan ook worden uitgevoerd op het ijs; echter, de reactie tijd moet worden aangepast. -
Het doven van de cross-linking reactie door toevoeging van amine buffer (bijvoorbeeld50-100 mM Tris buffer, pH 7.5, eindconcentratie) of uitvoeren van ethanol neerslag als u wilt verwijderen van alle resterende cross-linking reagens.
- Water of buffer toevoegen aan het reactiemengsel tot een eindvolume van 200 µL. toevoegen 600 µL ijskoude ethanol en 20 µL 3 M Natriumacetaat, pH 5.3. Meng en Incubeer bij-20 ° C voor 2 h of 's nachts.
Opmerking: U kunt ook de eiwitten kunnen worden neergeslagen bij 80 ° C gedurende 30 minuten of in vloeibare stikstof. - Spin down bij 16,200 x g en 4 ° C gedurende 30 min. Verwijder voorzichtig het supernatant.
- Wassen van de pellet met 1 mL ijskoud 80% (v/v) ethanol. Spin down bij 16,200 x g en 4 ° C gedurende 30 min. Verwijder voorzichtig het supernatant. Droog de pellet in een vacuüm centrifuge.
- Water of buffer toevoegen aan het reactiemengsel tot een eindvolume van 200 µL. toevoegen 600 µL ijskoude ethanol en 20 µL 3 M Natriumacetaat, pH 5.3. Meng en Incubeer bij-20 ° C voor 2 h of 's nachts.
- SDS-pagina van de kruiselings gekoppelde eiwitten uit te voeren. Snijd de gel bands en verteren de eiwit in-gel zoals hierboven (punten 2.1 en 2.2) beschreven.
Opmerking: In-oplossing spijsvertering kan ook worden uitgevoerd, echter het vereist meestal extra scheiding stappen (bijvoorbeeld, chromatografie van de uitsluiting van de grootte van de verteerd peptides). -
Vloeibare chromatografie-gekoppelde massaspectrometrie uitvoeren zoals hierboven (punt 2.3) beschreven. Kruislings gekoppelde peptiden zijn meestal lage overvloedige, gelden de volgende variaties voor de massaspectrometrische analyse te verhogen van analytische diepte van het kruislings gekoppelde monster.
- Langere hellingen gebruiken tijdens vloeistofchromatografie scheiding (bijvoorbeeld90 min in plaats van 65 min, zie boven).
- De dubbel geladen peptiden uitsluiten HCD fragmentatie.
Opmerking: Dubbel geladen peptiden zijn meestal intra-Cross-Country-linked peptiden ("lus peptiden" of "type 1" cross-links). - Bij het gebruik van differentieel Label cross-linking reagentia, gebruikt u de optie "piek plukken" tijdens de analyse, dat wil zeggen, HCD versnippering door de aanwezigheid van piek paren van gedefinieerde massa verschil in de massaspectra wordt geactiveerd.
Opmerking: De "piek plukken" optie mogelijk niet beschikbaar op elke massa spectrometer.
- Gebruik pLink software18 voor de identificatie van kruislings gekoppelde di-peptiden. Geminimaliseerde databanken gebruiken voor identificatie. Typische zoekparameters zijn: instrument spectra, HCD; enzym, trypsine; Max. gemiste decollete sites, 3; variabele wijzigingen, oxidatie (methionine) en carbamidomethylation (cysteïne); cross-linker, BS3; min. peptide lengte, 4; Max. Peptide lengte, 100; min. peptide massa, 400 Da; Max. Peptide massa, 10.000 Da; FDR, 1%.
Opmerking: Bij gebruik van differentieel aangeduid als cross-linkers, de massale stijging veroorzaakt door de linker dient te worden geconfigureerd. Er is ook andere gebruikte software voor kruislings gekoppelde identificatie, bijvoorbeeld, xQuest17, MassMatrix19of XlinkX15. - De database zoekresultaten evalueren door de kwaliteit van fragmentatie spectra. Aanvaardbaar spectra van cross-links moeten ion serie van beide peptides (ten minste 4 aangrenzende ionen) bij een redelijke signal-to-noise verhouding worden weergegeven.
Opmerking: Wanneer met behulp van differentieel Label cross-linking reagentia, piek paren in MS-spectra kunnen worden gebruikt als een extra kwaliteitscontrole. - Indien nodig, visualiseer de cross-linking resultaten in Eiwit-interactienetwerken met behulp van software-instrumenten (b.v., XVis, XiNET). Gebruik bar percelen of cirkelvormige percelen voor visualisatie eiwitinteractie.
Opmerking: Beide softwaretools zijn vrij beschikbaar op een webserver. Volg de gedetailleerde instructies op de respectievelijke websites (https://xvis.genzentrum.lmu.de/ en http://crosslinkviewer.org/).
Resultaten
De structuuranalyse van eiwitten en de zij vormen complexen is van fundamenteel belang voor het begrijpen van hun functie. Massaspectrometrie bijdraagt aanzienlijk aan de structurele onderzoek in dat het kan worden toegepast op bijna elk complex van belang ongeacht grootte of proeven van heterogeniteit. We illustreren het protocol met behulp van twee goed gekarakteriseerd eiwitcomplexen; Ten eerste, de hetero-dodecamer RvB1/B2 van C. thermophilum en ten tweede, de hetero-octameric CPS complex van E. coli.
Voor het eerst, we de onderdelen van de eiwitten van de twee complexen geïdentificeerd. Voor dit, de eiwitten werden gescheiden door SDS-PAGE (Figuur 2) en gel bands werden gesneden van de gel. Na-gel vertering van de eiwitten, de peptide mengsel werd geanalyseerd door vloeibare chromatografie-coupled Spectrometrie van de massa en peptide en fragment massa's werden onderworpen aan database zoeken. Na deze workflow, we geïdentificeerd alle eiwit subeenheden van de twee complexen met hoge vertrouwen, dat wil zeggen, een groot aantal peptiden met redelijke peptide scores werd waargenomen oplevert van de dekking van de hoge sequentie voor alle eiwit subeenheden (tabel 1 ).
Wij vervolgens de intact RvB1/B2 complexe geanalyseerd door inheemse massaspectrometrie (figuur 3A). De massaspectrum bleek twee soorten, één op ongeveer 8000 m/z en een andere soort op ongeveer 11.000-12.000 m/z. De berekende massa's voor deze soorten komen overeen met de hexameer (RvB1)3(RvB2)3 ring (ongeveer 310 kDa) en de dodecameric dubbel-ring (RvB1)6(RvB2)6 (ongeveer 620 kDa). Beide serie van de peak Toon twee populaties; Deze zijn afkomstig uit een mengsel van Zijne-gelabeld en niet-gecodeerde RvB2 subeenheden in de complexen. Een kristalstructuur voor de RvB1/B2 complex was eerder verkregen36 en toont de rangschikking van de dubbele-ring (figuur 3B). De inheemse massaspectrum bevestigt derhalve de stoichiometrie van de intact dodecamer en bovendien blijkt een stabiele sub complex. Bovendien, worden co-existing populaties geïdentificeerd.
Om te identificeren eiwit interactie sites in de RvB1/B2-complex, wij chemisch kruiselings gekoppelde het gezuiverde complex met BS3 cross-linker. We eerst de hoeveelheid BS3 getitreerd tijdens de cross-linking reactie te bepalen van de optimale concentratie. BS3 is amine-specifieke covalent Verwijzigingen lysine zijketens alsmede de N-termini van eiwitten. De cross-linking reactie werd gevolgd door SDS-PAGE (figuur 2A). De niet-cross-unit linked complex toonde subeenheden van zowel RvB1 als RvB2. BS3 toe te voegen aan het reactiemengsel veroorzaakt covalente koppeling van de eiwitten resulterend in eiwit bands op hoger molecuulgewicht. De gel SDS toont dat stijgende hoeveelheden BS3 hogere bedragen kruislings gekoppelde soorten opleveren, terwijl niet-kruis-unit linked eiwit subeenheden worden beperkt. Vervolgens gesneden van de eiwit-bands uit de gel en het protocol moeten eiwit interactie sites hierboven gevolgd. Het spectrum van een voorbeeld van een kruislings gekoppelde di-peptide wordt weergegeven (Figuur 3 c). Het spectrum toont beide bevestiging van deze interactie eiwit peptiden reeks y-ion. In totaal, verkregen we 14 eiwitinteractie, met inbegrip van vier cross-links tussen subeenheden RvB1 en RvB2 en twee cross-links tussen twee kopieën van RvB2 (tabel 2). De resultaten van BS3 dwarsbinding worden gevisualiseerd in een netwerk met interactie (figuur 3D) tonen intra moleculaire interacties, alsmede de interacties tussen de verschillende subeenheden. Intra moleculaire cross-links suggereren dat zowel RvB1 als RvB2 subeenheden op een manier vouwen dat de N - en C-terminaal domeinen in de nabijheid zijn. Opmerking, dat intra moleculaire interacties van Inter moleculaire interacties van de dezelfde subeenheid in dit geval kunnen niet worden onderscheiden. Inter moleculaire cross-links tussen de twee subeenheden werden ook waargenomen. Hiervan kunnen twee inter moleculaire cross-links tussen RvB1 en RvB2 worden gevisualiseerd in de structuur het valideren van de cross-linking aanpak. De andere Inter moleculaire cross-links bevinden zich in flexibele loops, die niet zijn opgenomen in de kristalstructuur. Wij ook twee cross-links in RvB2 met de dezelfde peptide-sequenties geïdentificeerd. Deze cross-links kunnen ondubbelzinnig als inter moleculaire zoals zij afkomstig van twee exemplaren van hetzelfde eiwit (figuur 3D zijn moeten) worden ingedeeld. Onze cross-linking experimenten onthullen eiwit interactie plaatsen binnen het complex, maar ook binnen de eiwit subeenheden biedt inzichten in hun structurele regeling kan ook worden bevestigd door de bestaande kristalstructuur (figuur 3B).
De tweede eiwit complex dat we studeerde was CPS. De inheemse massaspectrum (figuur 4A) onthuld drie eiwitcomplexen tussen de 6000 en 12.000 m/z. Het grootste complex van 640 kDa komt overeen met de intact hetero-octamer. De kleinere complexen vertegenwoordigen twee sub complexen; het dimeer van de kleine en grote CPS subeenheden (160 kDa) en een hetero-tetrameer met twee kopieën van elke subeenheid (320 kDa). Deze sub complexen leveren eerste inzichten in de eiwit-vergadering; dat wil zeggen, de grote en kleine subeenheden staan in direct contact (zoals geopenbaard door de hetero-dimeer) en de tetrameer wellicht een product van twee Dimeren. Om te krijgen meer informatie over de structurele regeling in de complexe intact CPS, we tandem massaspectrometrie (MS/MS) van de hetero-octamer en de hetero-tetrameer uitgevoerd. In beide gevallen, de kleine subeenheid losgekoppeld van de voorloper suggereren dat de kleine subeenheid is gelegen in de periferie van de vergadering (figuur 4B). Inderdaad, de kleine subeenheid is perifere in de beschikbare kristal structuur (figuur 4C)44.
Chemische dwarsbinding met behulp van de BS3 cross-linker werd ook uitgevoerd. Met behulp van steeds grotere hoeveelheden, werd de covalente binding van de CPS subeenheden verbeterd. Na vertering van de eiwitten en analyse van de peptiden zoals hierboven beschreven, zijn veel eiwit interacties binnen de grote subeenheid en één kruislings gekoppelde in de kleine subeenheid verkregen (tabel 2). Bovendien, vergelijkbaar met de complexe RvB1/B2, vonden we twee inter moleculaire cross-links tussen twee kopieën van de grote subeenheid van de CPS. Deze cross-links plaats de twee grote subeenheden tegenover elkaar aan de zijkanten van hun C-terminal. In een eerdere studie, structurele Spectrometrie van de massa en computationele modellering35, combineren wij drie extra interacties in de grote subeenheid die waarschijnlijk afkomstig van de interface van twee exemplaren van de grote subeenheid gevalideerd zijn door geïdentificeerd de kristalstructuur en de verkregen model (figuur 4C en tabel 2). Deze interacties kunnen de rangschikking van de CPS-kern complex bestaande uit vier grote subeenheden. Echter werden geen Inter subeenheid cross-links tussen de kleine en de grote subeenheden waargenomen. Door de inspectie van de beschikbare kristalstructuur (figuur 4C), blijkt dat het oppervlak van de interactie tussen het tetramere kern van het complex, bestaande uit de grote subeenheid, en de perifere kleine subeenheden erg klein is, wat kan verklaren de afwezigheid van Inter subeenheid interacties. Dit wordt bevestigd door inheemse massaspectrometrie, waaruit bleek dat de kleine subeenheid gemakkelijk van de meest waarschijnlijk te wijten aan een kleine bindende interface intact complexen distantieert. Niettemin laten eiwitinteractie in de CPS complexe combinatie van chemische dwarsbinding en inheemse massaspectrometrie afleiden van hun structurele regeling (Figuur 4 d).
Samen genomen, kunt de combinatie van inheemse Spectrometrie van de massa en chemische dwarsbinding in combinatie met massaspectrometrische identificatie van kruislings gekoppelde peptides, reconstitutie van de structurele regeling van beide voorbeeld complexen. Terwijl chemische dwarsbinding geopenbaard regeling van de subeenheden van eiwit, bijvoorbeeld de interactie tussen RvB1 en RvB2 of binnen het tetramere kern van CPS, Spectrometrie van de massa van de inheemse proteïne stoichiometries van de intact complexen geleverd en voorkomende subcomplexes. In het geval van CPS, waarvoor geen Inter moleculaire interacties tussen de twee subeenheden kon worden waargenomen door chemische dwarsbinding, suggereert inheemse massaspectrometrie dat elke grote subeenheid met een kleine subeenheid (Figuur 4 d samenwerkt). De Spectrometrie van de massa van de tandem voorgesteld de perifere ligging van de kleine subeenheid in het complex en een kleine interface tussen beide subeenheden.
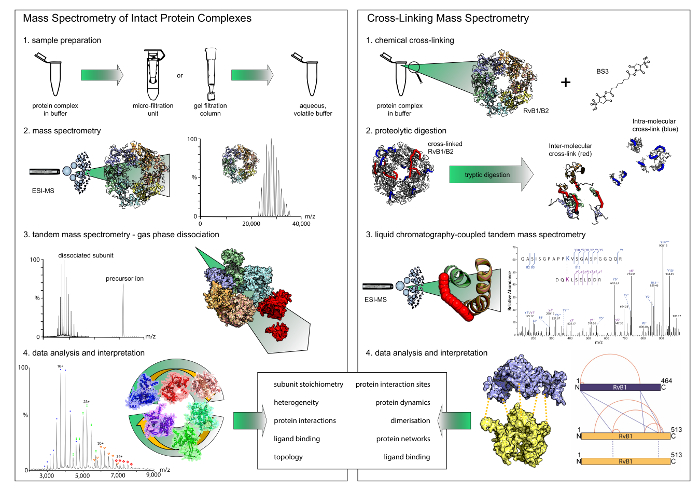
Figuur 1: Workflow van inheemse Spectrometrie van de massa en dwarsbinding. Beide technieken leveren aanvullende resultaten. Hoewel inheemse massaspectrometrie stoichiometries en interactie modules onthult, geeft dwarsbinding inzicht in de eiwit interactie sites binnen de complexen. Merk op dat chemische dwarsbinding alleen binaire interacties onthult. (A) de eerste stap in native massaspectrometrie is buffer uitwisseling naar een buffer van het vluchtige en waterige met filter eenheden of gel filtratie kolommen. De Spectrometrie van de massa van de intact eiwitcomplexen dan openbaart hun stoichiometrie. In tandem massaspectrometrie experimenten, worden perifere subeenheden losgekoppeld. (B) voor chemische dwarsbinding, is het eiwit complex geïncubeerd met een cross-linking reagens. De kruislings gekoppelde eiwitten zijn vervolgens verteerd in peptiden die worden vervolgens geanalyseerd door vloeibare chromatografie-gekoppelde massaspectrometrie. Klik hier voor een grotere versie van dit cijfer.

Figuur 2: SDS-pagina van kruiselings gekoppelde RvB1/B2 (A) en CPS (B) complexen. (A) 2,5 µM RvB1/B2 werden geladen per rijstrook van de gel. De concentratie van BS3 was gevarieerd. Non-cross-linked RvB1/B2 toont de twee eiwitten subeenheden op ongeveer 50 kDa. Toevoeging van BS3 veroorzaakt covalente koppeling van de eiwit-subeenheden resulterend in eiwit bands op hoger molecuulgewicht. Het bedrag van kruislings gekoppelde soorten wordt verhoogd met hogere BS3 concentraties. Optimale cross-linking omstandigheden zijn gemarkeerde (rood). (B) 10 µM CPS werden geladen per rijstrook van de gel. De grote (90 kDa) en kleine (40 kDa) CPS subeenheden worden verkregen. Toevoeging van BS3 veroorzaakt covalente koppeling van de eiwit-subeenheden resulterend in eiwit bands op hoger molecuulgewicht. Optimale cross-linking omstandigheden zijn gemarkeerde (rood). Klik hier voor een grotere versie van dit cijfer.

Figuur 3: Native Spectrometrie van de massa en chemische dwarsbinding RvB1/B2 complexe. (A) de inheemse massaspectrum onthult twee soorten RvB1/B2; de intacte dodecamer (d.w.z., (RvB1)6(RvB2)6) op ongeveer 11.000 tot 12,000 m/z en de hexameer ring (RvB1)3(RvB2)3 op ongeveer 8000 m/z. Beide soorten tonen twee populaties die voortvloeien uit zijn-gelabeld en niet-gecodeerde RvB2. Het spectrum is gewijzigd van35. (B) het kristal structuur van RvB1/B2 blijkt (VOB-ID 4WVY). Wisselende RvB1 en RvB2 vormen subeenheden twee hexameer ringen. (C) fragmentatie spectrum van een kruislings gekoppelde di-peptide. De N-terminus van RvB1 was kruislings gekoppelde met K23 van RvB1 y-ion serie werden verkregen voor beide peptides (rood en cyaan). (D) Intra - en intersite - protein interacties verkregen in het complex van de RvB1/B2. Intra-Cross-Country-links worden weergegeven in het rood, inter-cross-links in blauw worden weergegeven. De insert toont twee inter moleculaire cross-links tussen RvB1 en RvB2 subeenheden die kunnen worden gevisualiseerd in de kristalstructuur (groen, insert). Interacties die afkomstig van twee exemplaren van de RvB2 zijn worden weergegeven als blauwe stippellijnen. Klik hier voor een grotere versie van dit cijfer.

Figuur 4: Native Spectrometrie van de massa en chemische cross-linking van CPS. (A) de inheemse massaspectrum van CPS toont drie complexen. De hetero-dimeer (160 kDa), hetero-tetrameer (320 kDa) en de hetero-octamer (640 kDa). Het spectrum is gewijzigd van35. (B) Tandem Spectrometrie van de massa van het tetramere en octameric CPS complexe geopenbaarde dissociatie van de kleine subeenheid van de CPS. (C) het kristal structuur van CPS wordt weergegeven (VOB-ID 1BXR). De grote subeenheden vormen een tetramere kern en de kleine subeenheden bevinden zich in de periferie van het complex. Inter moleculaire cross-links tussen twee kopieën van de grote subeenheid staan (groen). (D) de interacties van de grote en kleine CPS subeenheden. Native Spectrometrie van de massa geopenbaard subcomplexes en stelt een perifere ligging van de kleine subeenheid. Chemische cross-links aanwijzingen omtrent in het tetramere kern van CPS. Klik hier voor een grotere versie van dit cijfer.
Tabel 1: Database zoekresultaten. De eiwitten werden geïdentificeerd door vloeibare chromatografie-gekoppelde massaspectrometrie en de database te zoeken. De namen van eiwit, toetreding nummer, omschrijving alsmede eiwit massa krijgen. De eiwit-score, aantal waargenomen spectra per eiwit, en het aantal waargenomen peptide reeksen zijn opgenomen. De vijf peptiden met hoogste mascotte peptiden scores staan voor elke subeenheid van het eiwit. Klik hier om dit bestand te downloaden.
Tabel 2: Cross-links waargenomen in RvB1/B2 en CPS. De subeenheden van de complexen en de kruiselings gekoppelde residuen worden gegeven. Het soort kruislings gekoppelde (intra - of inter moleculaire) werd geopenbaard uit overlappende peptide reeksen of een eerdere studie35. Klik hier om dit bestand te downloaden.
Discussie
Protocollen zijn voorzien van massa spectrometrie gebaseerde structuuranalyse van multi subeenheid eiwitcomplexen. De twee technieken, beschreven in het protocol, meestal aanvullende resultaten en zijn zeer geschikt inzichten te krijgen in de structurele regelingen binnen eiwit (-ligand) complexen die moeilijk te bestuderen door conventionele structurele technieken. Native massaspectrometrie levert inzicht in eiwit stoichiometries evenals eiwitinteractie door het analyseren van subcomplexes en stabiele interactie modules. Cross-linking, aan de andere kant, levert informatie op directe contact sites. Afhankelijk van de cross-linker gebruikt, een zekere flexibiliteit kan of moet worden opgenomen in de analyse.
De meegeleverde protocollen zijn in het algemeen gemakkelijk uit te voeren en niet tijdrovend. Het gehele protocol kan worden uitgevoerd binnen een week en kan worden toegepast op vrijwel alle eiwitcomplexen, hoewel, een bepaalde hoeveelheid het eiwit complex vereist is voor succesvolle analyse. Bereiding van de monsters is eenvoudig en vereist geen specifiek gezuiverde eiwitcomplexen. Één gemeenschappelijke pitfall is echter een besmetting van het monster tijdens de bereiding van de monsters voor de massa spectrometrie gebaseerde eiwit identificatie. Deze verontreinigingen in de meeste gevallen omvatten keratines, die afkomstig van stof, huid of haar zijn. Daarom, extra zorg zoals het dragen van handschoenen en Labjassen, filtrating waterige buffers, en het gebruik van hoge zuiverheid oplosmiddelen moeten worden genomen tijdens de bereiding van de monsters voor de massa spectrometrie gebaseerde eiwit identificatie. Andere contaminerende eiwitten zoals chaperones zijn meestal geïntroduceerd tijdens EiwitReiniging, bijvoorbeeldbij het gebruik van affiniteit tags. In deze gevallen moet eiwitreiniging worden verbeterd, bijvoorbeeld door het verhogen van wassen stappen. In ieder geval eiwit verontreinigingen in de steekproef tijdens de database zoeken gemakkelijk worden geïdentificeerd door het weglaten van de taxonomie-filter (dat wil zeggen, zoeken tegen proteïnen van alle soorten). Als slechts een paar peptiden in acht worden genomen (d.w.z., de dekking van een laag eiwitgehalte kan worden verkregen), ook al voldoende monster beschikbaar is, kan het nodig zijn om te gebruiken een verschillende proteïnase tijdens de vertering. In het algemeen levert trypsine een voldoende aantal peptiden; echter in sommige gevallen zoals membraaneiwitten of membraan domeinen van eiwitten, het aantal al decollete sites wordt verminderd en andere enzymen gericht op hydrofobe aminozuren zijn een betere keuze.
Op het gebied van instrumentatie is een bijzonder gewijzigde instrument vereist voor inheemse massaspectrometrie die beweert van niet-covalente interacties tijdens de overdracht in de gas-fase. Instrument verschillende bijgekomen, waaronder Q-ToF en orbitrap instrumenten. Terwijl gemodificeerde Q-ToF massaspectrometers commercieel beschikbaar zijn voor native massaspectrometrie sinds verscheidene jaren, de laatste pas onlangs zijn geïntroduceerd en in de meeste gevallen vereisen gespecialiseerde wijziging45. Echter de toepassing van hoge resolutie instrumenten mogen studeren binding van meerdere liganden en hun kwantificering46,47 en is veelbelovend voor toekomstige toepassingen.
Als u wilt identificeren kruislings gekoppelde di-peptiden door vloeibare chromatografie-gekoppelde massaspectrometrie, kunnen standaardprocedures met enkele wijzigingen worden toegepast. Echter, de database zoeken is de beperkende factor als gespecialiseerde software kan zelden omgaan met grote databases en verminderde databases met de eiwit subeenheden van de complexen zijn vereist. Recente studies gebruikt massa spectrometrie-cleavable cross-linkers eiwitinteractie in hele cel lysates48,49richt. Het gebruik van chemische cross-linkers dat in tandem massaspectrometrie experimenten meestal fragment levert lineaire peptiden (gewijzigd door de cross-linker), die kunnen worden geïdentificeerd door verdere versplintering en database zoeken van lineaire peptiden, en dit vermindert zoektijd en computationele zoekruimte. Echter, voor het uitvoeren van deze experimenten, een massale analysator van ion trap of een hybride massaspectrometer met een ion trap is vereist. In het algemeen, zijn vals-positieven zijn een belangrijke kwestie, massaspectra van kruislings gekoppelde peptiden vaak gevalideerd handmatig door de kwaliteit van hun fragment spectra die gegevens analyse tijd enorm uitbreidt. Het ontwikkelen van robuuste scoren systemen die kunnen worden toegepast zonder verdere validatiestappen derhalve potentiële toekomstige toepassingen zijn. Unidirectioneel om data-analyse en het aantal vals-positieven te verminderen was de introductie van valse ontdekking tarief berekeningen en de toepassing ervan op datasets50dwarsbinding.
In het algemeen, de hier beschreven technieken kunnen worden aangevuld met verdere massaspectrometrie technieken (bijvoorbeeldcovalente labelen) te verhogen van de output van de analyse. Andere aanpassingen en verbeteringen van de protocollen kunnen gemakkelijk worden geïmplementeerd. Als zodanig ontrafelt vergelijkende cross-linking34 conformationele veranderingen in de vergadering van de eiwitten. Verdere ontwikkelingen in de inheemse massaspectrometrie toestaan tegenwoordig de analyse van membraan eiwitten51,52 en hun interacties met lipiden28,52,53,,54 . Nieuwe ontwikkelingen van high-resolution massaspectrometers voor inheemse massaspectrometrie hebben uitgebreid de toepassing en ligand bindende, bijvoorbeeld, binding van lipiden aan membraaneiwitten, kunnen nu worden opgenomen in de analyse45, 46. in combinatie met computationele modellering benaderingen, kunnen deze technieken leveren structurele modellen van verschillende resolutie55. Als geen kristalstructuren beschikbaar voor de intact complexe of één subeenheden zijn, kan massaspectrometrie leveren eerste inzichten in eiwit interacties en de topologie van het onbekende complex. Afhankelijk van de gebruikte technieken en de verkregen resultaten, kunnen met een lage resolutie modellen van het onbekende complex worden verkregen van56,57,58. Als kristalstructuren of homologie modellen beschikbaar zijn, kan de structuurgegevens van massaspectrometrie ontvangen zelfs in de buurt van-native modellen59opleveren.
In vergelijking met andere structurele technieken, massaspectrometrie heeft het voordeel dat het vereist lage monster bedragen, kan omgaan met heterogene monsters en is van toepassing op eiwitcomplexen van onbeperkte grootte. Verder, staat massaspectrometrie het onderzoek van dynamische eiwit systemen. Verschillende bevolkingsgroepen van het eiwit of eiwit complex die bestaan in oplossing meestal samen worden geanalyseerd en daarom, in tegenstelling tot met andere structurele technieken waarvoor selectie van bepaalde bevolkingsgroepen, alle conformaties worden gehandhaafd tijdens analyse en zijn verifieerbare in één experiment. Kwantitatieve cross-linking benaderingen werden onlangs geïntroduceerde34,60,,61 en zijn veelbelovend voor toekomstige toepassingen beschrijven conformationele wijzigingen onder verschillende omstandigheden.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Wij danken onze collega's voor nuttige discussies. Wij danken ook Ilme Schlichting en Karl-Peter Hopfner voor het verstrekken van eiwitcomplexen. Wij erkennen dat financiering uit het federale ministerie voor onderwijs en onderzoek (goedgekeurd, ZIK programma, 03Z22HN22), de Europese regionale ontwikkelingsfondsen (EFRE, ZS/2016/04/78115) en de MLU Halle-Wittenberg C.S. en financiering van de Wellcome Trust (109854/658 Z/15/Z) naar A.P.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Chemicals, Reagents, Consumables | |||
| 2-[4-(2-hydroxyethyl)piperazin-1-yl]ethanesulfonic acid (HEPES) | Sigma Aldrich | H4034 | buffer |
| Acetic acid | Sigma Aldrich | 695092 | pH |
| Acetonitrile Optima LC/MS | Fisher Chemicals | A955-1 | solvent |
| Amicon Ultra centrifugal devices (different MWCO) | Millipore | bijv. UFC500396 | buffer exchange, concentration |
| Ammonium acetate solution | Sigma Aldrich | A2706 | native MS |
| Ammonium bicarbonate | Sigma Aldrich | 9830 | in-gel digestion |
| Ammonium solution | Sigma Aldrich | 9859 | pH |
| Bis(Sulfosuccinimidyl)suberate-d0 (BS3-d0) | Thermo Scientific | 21590 | cross-linker |
| Bis(Sulfosuccinimidyl)suberate-d4 (BS3-d4) | Thermo Scientific | 21595 | cross-linker |
| Caesium iodide | Sigma Aldrich | 203033 | calibration |
| Calcium chloride | Sigma Aldrich | C5670 | in-gel digestion |
| Capillaries (1.0 OD × 0.78 ID × 100 L mm) | Harvard Apparatus | 30-0038 | native MS |
| Disuccinimidyl suberate (DSS) | Thermo Scientific | 21655 | cross-linker |
| DL-Dithiothreitol | Sigma Aldrich | D5545 | in-gel digestion |
| DMSO (dimethyl sulfoxide) | Sigma Aldrich | D8418 | solvent |
| Ethanol | Fisher Chemicals | BP2818 | solvent |
| Formic acid Optima LC/MS | Fisher Chemicals | A117-50 | solvent supplement |
| Instant Blue Coomassie staining solution | expedeon | ISB1L | staining solution for gel electrophoresis |
| Invitrogen NuPAGE 4-12% Bis-Tris gels (1 mm, 10 well) | life technologies | NP0323BOX | gel electrophoresis |
| Iodoacetamide | Sigma Aldrich | I1149 | In-gel digestion |
| Isopropyl alcohol, HPLC grade | Fisher Chemicals | P750717 | solvent |
| Methanol | Fisher Chemicals | A456-212 | solvent |
| Micro BioSpin 6 columns | BioRad | 732-6222 | buffer exchange |
| NuPAGE Antioxidant | invitrogen | NP0005 | running buffer, gel electrophoresis |
| NuPAGE LDS Sample Buffer (4 ×) | invitrogen | NP0007 | sample loading buffer (non-reducing) for gel electrophoresis |
| NuPAGE MES SDS Running buffer | life technologies | NP0001 | gel electrophoresis |
| NuPAGE MOPS SDS Running buffer | life technologies | NP0001 | gel electrophoresis |
| NuPAGE Sample Reducing Agent (10 ×) | invitrogen | NP0004 | reducing Agent for gel electrophoresis |
| PBS - phosphate buffered saline | Sigma Aldrich | P4417 | buffer |
| SeeBlue Plus2 Prestained Standard Protein Marker | invitrogen | LC5925 | prestained Protein Marker for gel electrophoresis |
| Sodium acetate | Sigma Aldrich | S2889 | ethanol precipitation |
| Tris(hydroxymethyl)aminomethane (Tris) | Sigma Aldrich | 252859 | buffer |
| Trypsin | Sigma Aldrich | TRYPSEQ-RO (11418475001) | in-gel digestion |
| Vivaspin centrifugal devices (different MWCO) | Sartorius | bijv. VS0101 | buffer exchange, concentration |
| Water for HPLC | Sigma Aldrich | 270733-2.5L-M | solvent |
| Name | Company | Catalog Number | Comments |
| Instruments | |||
| Centrifuge Heraeus Fresco 21, bench-top centrifuge | Thermo Scientific | 75002425 | |
| Flaming / Brown Micropipette puller Model P-1000 | Sutter Instruments | P-1000 | |
| Gelelectrophoresis chamber Xcell SureLock MiniCell | Invitrogen | EI0001 | |
| Gold Coater Quorum Q150R S | Quorum Technologies Ltd. | Q150RS | |
| Horizontal gel shaker Rotamax 120 T | Heidolph Instruments | 544-41200-00 | |
| Q-TOF Ultima mass spectrometer, MS Vision high mass upgrade | Waters (Micromass) | - | |
| reversed-phase C18 analytical column Acclaim PepMap (C18, 75 mm I.D., 50 cm, 3 mm pore size) | Thermo Scientific | 164570 | |
| reversed-phase C18 pre-column (C18, 150 mm I.D., 2 cm, 5 mm pore size) | Thermo Scientific | 164213 | |
| scalpel | Fisher Scientifc | 10463989 | |
| SpeedVac SPD121P vacuum centrifuge | Thermo Scientific | SPD121DP-230 | |
| Thermomixer C | Eppendorf | 5382000015 | |
| Tweezers AA | Sigma Aldrich | Z680184-1EA | |
| Ultrasonic cleaner USC-TH, sonication bath | VWR | 142-0084 | |
| UltiMate Dionex 3000 nano-LC system, coupled to Q-Exactive plus hybrid mass spectrometer (nano-ESI source) | Thermo Scientific | 0726030+ | |
| Name | Company | Catalog Number | Comments |
| Software, Software Tools, Database search | |||
| Mascot | www.matrixscience.com | ||
| Massign | http://massign.chem.ox.ac.uk | ||
| MassLynx | Micromass | ||
| MassMatrix | Xu, H. J Proteome Res. 9 (2010) | ||
| MaxQuant | Cox, J. Nat. Biotechn. 26 (2008) | ||
| pLink | Yang, B. Nat Methods 9 (2012) | ||
| pXtract conversion tool | http://pfind.ict.ac.cn/downloads.html | ||
| UniDec | Marty, M.T. Anal. Chem. 87 (2015) | ||
| XCalibur | Thermo Scientific | ||
| XiNET | http://crosslinkviewer.org | ||
| XLinkX | Liu, F. Curr Op Struct Biol 35 (2015 |
Referenties
- Campbell, I. D. Timeline: the march of structural biology. Nat Rev Mol Cell Biol. 3 (5), 377-381 (2002).
- Liko, I., Allison, T. M., Hopper, J. T., Robinson, C. V. Mass spectrometry guided structural biology. Curr Opin Struct Biol. 40, 136-144 (2016).
- Robinson, C. V. From molecular chaperones to membrane motors: through the lens of a mass spectrometrist. Biochem Soc Trans. 45 (1), 251-260 (2017).
- Lossl, P., van de Waterbeemd, M., Heck, A. J. The diverse and expanding role of mass spectrometry in structural and molecular biology. EMBO J. 35 (24), 2634-2657 (2016).
- Wang, L., Chance, M. R. Protein Footprinting Comes of Age: Mass Spectrometry for Biophysical Structure Assessment. Mol Cell Proteomics. 16 (5), 706-716 (2017).
- Steen, H., Mann, M. The ABC's (and XYZ's) of peptide sequencing. Nat Rev Mol Cell Biol. 5 (9), 699-711 (2004).
- Olsen, J. V., Mann, M. Status of large-scale analysis of post-translational modifications by mass spectrometry. Mol Cell Proteomics. 12 (12), 3444-3452 (2013).
- Schmidt, C., Robinson, C. V. Dynamic protein ligand interactions--insights from MS. FEBS J. 281 (8), 1950-1964 (2014).
- Marcsisin, S. R., Engen, J. R. Hydrogen exchange mass spectrometry: what is it and what can it tell us? Anal Bioanal Chem. 397 (3), 967-972 (2010).
- Zhang, Z., Smith, D. L. Determination of amide hydrogen exchange by mass spectrometry: a new tool for protein structure elucidation. Protein Sci. 2 (4), 522-531 (1993).
- Leitner, A., Lindner, W. Current chemical tagging strategies for proteome analysis by mass spectrometry. J Chromatogr B Analyt Technol Biomed Life Sci. 813 (1-2), 1-26 (2004).
- Leitner, A., Lindner, W. Chemistry meets proteomics: the use of chemical tagging reactions for MS-based proteomics. Proteomics. 6 (20), 5418-5434 (2006).
- Kiselar, J. G., Chance, M. R. Future directions of structural mass spectrometry using hydroxyl radical footprinting. J Mass Spectrom. 45 (12), 1373-1382 (2010).
- Xu, G., Chance, M. R. Hydroxyl radical-mediated modification of proteins as probes for structural proteomics. Chem Rev. 107 (8), 3514-3543 (2007).
- Liu, F., Heck, A. J. Interrogating the architecture of protein assemblies and protein interaction networks by cross-linking mass spectrometry. Curr Opin Struct Biol. 35, 100-108 (2015).
- Rappsilber, J. The beginning of a beautiful friendship: cross-linking/mass spectrometry and modelling of proteins and multi-protein complexes. J Struct Biol. 173 (3), 530-540 (2011).
- Rinner, O., et al. Identification of cross-linked peptides from large sequence databases. Nat Methods. 5 (4), 315-318 (2008).
- Yang, B., et al. Identification of cross-linked peptides from complex samples. Nat Methods. 9 (9), 904-906 (2012).
- Xu, H., Hsu, P. H., Zhang, L., Tsai, M. D., Freitas, M. A. Database search algorithm for identification of intact cross-links in proteins and peptides using tandem mass spectrometry. J Proteome Res. 9 (7), 3384-3393 (2010).
- Leitner, A., Faini, M., Stengel, F., Aebersold, R. Crosslinking and Mass Spectrometry: An Integrated Technology to Understand the Structure and Function of Molecular Machines. Trends Biochem Sci. 41 (1), 20-32 (2016).
- Heck, A. J. Native mass spectrometry: a bridge between interactomics and structural biology. Nat Methods. 5 (11), 927-933 (2008).
- Sharon, M., Robinson, C. V. The role of mass spectrometry in structure elucidation of dynamic protein complexes. Annu Rev Biochem. 76, 167-193 (2007).
- Goth, M., Pagel, K. Ion mobility-mass spectrometry as a tool to investigate protein-ligand interactions. Anal Bioanal Chem. , (2017).
- Uetrecht, C., Rose, R. J., van Duijn, E., Lorenzen, K., Heck, A. J. Ion mobility mass spectrometry of proteins and protein assemblies. Chem Soc Rev. 39 (5), 1633-1655 (2010).
- Hernandez, H., Robinson, C. V. Determining the stoichiometry and interactions of macromolecular assemblies from mass spectrometry. Nat Protoc. 2 (3), 715-726 (2007).
- Sobott, F., Hernandez, H., McCammon, M. G., Tito, M. A., Robinson, C. V. A tandem mass spectrometer for improved transmission and analysis of large macromolecular assemblies. Anal Chem. 74 (6), 1402-1407 (2002).
- Rostom, A. A., et al. Detection and selective dissociation of intact ribosomes in a mass spectrometer. Proc Natl Acad Sci U S A. 97 (10), 5185-5190 (2000).
- Zhou, M., et al. Mass spectrometry of intact V-type ATPases reveals bound lipids and the effects of nucleotide binding. Science. 334 (6054), 380-385 (2011).
- Uetrecht, C., et al. High-resolution mass spectrometry of viral assemblies: molecular composition and stability of dimorphic hepatitis B virus capsids. Proc Natl Acad Sci U S A. 105 (27), 9216-9220 (2008).
- Morgner, N., et al. Hsp70 forms antiparallel dimers stabilized by post-translational modifications to position clients for transfer to Hsp90. Cell Rep. 11 (5), 759-769 (2015).
- Schmidt, C., Beilsten-Edmands, V., Robinson, C. V. The joining of the Hsp90 and Hsp70 chaperone cycles yields transient interactions and stable intermediates: insights from mass spectrometry. Oncotarget. 6 (21), 18276-18281 (2015).
- Schmidt, C., Beilsten-Edmands, V., Mohammed, S., Robinson, C. V. Acetylation and phosphorylation control both local and global stability of the chloroplast F1 ATP synthase. Sci Rep. 7, 44068(2017).
- Schmidt, C., et al. Comparative cross-linking and mass spectrometry of an intact F-type ATPase suggest a role for phosphorylation. Nat Commun. 4, 1985(2013).
- Schmidt, C., Robinson, C. V. A comparative cross-linking strategy to probe conformational changes in protein complexes. Nat Protoc. 9 (9), 2224-2236 (2014).
- Schmidt, C., et al. Surface Accessibility and Dynamics of Macromolecular Assemblies Probed by Covalent Labeling Mass Spectrometry and Integrative Modeling. Anal Chem. 89 (3), 1459-1468 (2017).
- Lakomek, K., Stoehr, G., Tosi, A., Schmailzl, M., Hopfner, K. P. Structural basis for dodecameric assembly states and conformational plasticity of the full-length AAA+ ATPases Rvb1 · Rvb2. Structure. 23 (3), 483-495 (2015).
- Mareya, S. M., Raushel, F. M. A molecular wedge for triggering the amidotransferase activity of carbamoyl phosphate synthetase. Biochemistry. 33 (10), 2945-2950 (1994).
- Shevchenko, A., Wilm, M., Vorm, O., Mann, M. Mass spectrometric sequencing of proteins silver-stained polyacrylamide gels. Anal Chem. 68 (5), 850-858 (1996).
- Olsen, J. V., et al. Parts per million mass accuracy on an Orbitrap mass spectrometer via lock mass injection into a C-trap. Mol Cell Proteomics. 4 (12), 2010-2021 (2005).
- Cox, J., Mann, M. MaxQuant enables high peptide identification rates, individualized p.p.b.-range mass accuracies and proteome-wide protein quantification. Nat Biotechnol. 26 (12), 1367-1372 (2008).
- Kirshenbaum, N., Michaelevski, I., Sharon, M. Analyzing large protein complexes by structural mass spectrometry. J Vis Exp. (40), (2010).
- Morgner, N., Robinson, C. V. Massign: an assignment strategy for maximizing information from the mass spectra of heterogeneous protein assemblies. Anal Chem. 84 (6), 2939-2948 (2012).
- Marty, M. T., et al. Bayesian deconvolution of mass and ion mobility spectra: from binary interactions to polydisperse ensembles. Anal Chem. 87 (8), 4370-4376 (2015).
- Thoden, J. B., Wesenberg, G., Raushel, F. M., Holden, H. M. Carbamoyl phosphate synthetase: closure of the B-domain as a result of nucleotide binding. Biochemistry. 38 (8), 2347-2357 (1999).
- Rose, R. J., Damoc, E., Denisov, E., Makarov, A., Heck, A. J. High-sensitivity Orbitrap mass analysis of intact macromolecular assemblies. Nat Methods. 9 (11), 1084-1086 (2012).
- Gault, J., et al. High-resolution mass spectrometry of small molecules bound to membrane proteins. Nat Methods. 13 (4), 333-336 (2016).
- Mehmood, S., et al. Mass spectrometry captures off-target drug binding and provides mechanistic insights into the human metalloprotease ZMPSTE24. Nat Chem. 8 (12), 1152-1158 (2016).
- Kaake, R. M., et al. A new in vivo cross-linking mass spectrometry platform to define protein-protein interactions in living cells. Mol Cell Proteomics. 13 (12), 3533-3543 (2014).
- Liu, F., Rijkers, D. T., Post, H., Heck, A. J. Proteome-wide profiling of protein assemblies by cross-linking mass spectrometry. Nat Methods. 12 (12), 1179-1184 (2015).
- Walzthoeni, T., et al. False discovery rate estimation for cross-linked peptides identified by mass spectrometry. Nat Methods. 9 (9), 901-903 (2012).
- Barrera, N. P., Di Bartolo, N., Booth, P. J., Robinson, C. V. Micelles protect membrane complexes from solution to vacuum. Science. 321 (5886), 243-246 (2008).
- Barrera, N. P., et al. Mass spectrometry of membrane transporters reveals subunit stoichiometry and interactions. Nat Methods. 6 (8), 585-587 (2009).
- Laganowsky, A., et al. Membrane proteins bind lipids selectively to modulate their structure and function. Nature. 510 (7503), 172-175 (2014).
- Marcoux, J., et al. Mass spectrometry reveals synergistic effects of nucleotides, lipids, and drugs binding to a multidrug resistance efflux pump. Proc Natl Acad Sci U S A. 110 (24), 9704-9709 (2013).
- Politis, A., Schmidt, C. Structural characterisation of medically relevant protein assemblies by integrating mass spectrometry with computational modelling. J Proteomics. , (2017).
- Hall, Z., Politis, A., Robinson, C. V. Structural modeling of heteromeric protein complexes from disassembly pathways and ion mobility-mass spectrometry. Structure. 20 (9), 1596-1609 (2012).
- Pukala, T. L., et al. Subunit architecture of multiprotein assemblies determined using restraints from gas-phase measurements. Structure. 17 (9), 1235-1243 (2009).
- Politis, A., et al. Topological models of heteromeric protein assemblies from mass spectrometry: application to the yeast eIF3:eIF5 complex. Chem Biol. 22 (1), 117-128 (2015).
- Politis, A., et al. A mass spectrometry-based hybrid method for structural modeling of protein complexes. Nat Methods. 11 (4), 403-406 (2014).
- Fischer, L., Chen, Z. A., Rappsilber, J. Quantitative cross-linking/mass spectrometry using isotope-labelled cross-linkers. J Proteomics. 88, 120-128 (2013).
- Yu, C., et al. Developing a Multiplexed Quantitative Cross-Linking Mass Spectrometry Platform for Comparative Structural Analysis of Protein Complexes. Anal Chem. 88 (20), 10301-10308 (2016).
Herprints en machtigingen
