Hier presenteren we twee ultrasnelle protocollen voor reconstructie van membraaneiwitten in fusogenic proteoliposomes, en de fusie van dergelijke proteoliposomes met doel lipide bilayers voor wasmiddel-gratis bezorging van deze membraaneiwitten binnen de postfusion dubbelgelaagde. De combinatie van deze benaderingen kan snel en gemakkelijk-gecontroleerde vergadering van complexe multi-component membraan systemen.
Methodenartikel
Wasmiddel-vrije ultrasnelle reconstitutie van membraaneiwitten in lipide-Bilayers met behulp van Fusogenic aanvullende geladen Proteoliposomes.
In dit artikel
Samenvatting
Samenvatting
Wasmiddelen zijn onmisbaar voor de levering van membraaneiwitten in 30-100 nm kleine unilamellar blaasjes, terwijl de meer complexe, grotere model lipide bilayers zijn minder compatibel met detergenten.
Hier beschrijven we een strategie voor het omzeilen van deze fundamentele beperking met behulp van fusogenic tegengesteld geladen liposomen rekening houdend met een membraan eiwit van belang. Fusie tussen dergelijke blaasjes optreedt binnen 5 min in een lage Ionische sterkte buffer. Positief geladen fusogenic liposomen kunnen worden gebruikt als eenvoudige shuttle vectoren voor wasmiddel-gratis levering van membraaneiwitten in biomimetische doel lipide bilayers, die zijn negatief geladen. Ook laten we zien hoe membraaneiwitten reconstrueren in fusogenic proteoliposomes met een snel 30-min-protocol.
De combinatie van deze twee benaderingen, wij laten zien dat een snelle montage van een elektron vervoersketen, bestaande uit twee membraaneiwitten van E. coli, een primaire proton pomp bo3-oxidase en F-1F-o ATP-synthase, in membranen van blaasjes van verschillende grootte, variërend van 0.1 tot > 10 micron, evenals de ATP productie door deze keten.
Inleiding
Functionalization van kunstmatige lipide bilayers met membraaneiwitten is een belangrijke stap in de assemblage van membraan modelsystemen. Het eenvoudigste model, proteoliposomes (PL), bestaat uit kleine (30-200 nm diameter) unilamellar blaasjes (SUV), ook genaamd liposomen, met eiwitten geïntegreerd in hun membranen. PL traditioneel worden gevormd in twee stappen1. Eerste, voorgevormde SUV worden vermengd met een membraan eiwit van belang en een wasmiddel met een concentratie boven de kritische micel concentratie (CMC). Ten tweede, het wasmiddel wordt verwijderd met verschillende dialyse, "bio-kralen" of gel filtratie technieken, waardoor de eiwitten in het membraan. De laatste benadering is veel sneller (~ 30 min1) en daarom beter voor reconstructie van kwetsbare en gevoelige membraaneiwitten, terwijl de eerste twee benaderingen worden beperkt door wasmiddel verwijdering snelheid, die vele uren duurt en kan leiden tot een aanzienlijk verlies van activiteit en verlies van de structurele integriteit van de eiwitten. Functionalization van grotere blaasjes (grote unilamellar blaasjes, LUV, tot 1 µm) door deze aanpak is moeilijker, als het blaasje na verwijdering van het wasmiddel wordt verkleind en het is niet mogelijk voor de gigantische unilamellar blaasjes (GUV, > 1 µm), zoals ze zijn gedestabiliseerd door detergentia (maar zie Johnson et al. 2 voor langzame 2D-kristallisatie van membraaneiwitten in grote bilayers). Alternatieve benaderingen voor GUV membraan functionalization3,4,5 bestaan maar moeizaam, tijdrovend zijn en vereisen nog enkele wasmiddel bij concentraties onder CMC. Meer complexe of kwetsbare lipide modellen (bijvoorbeeld Droplet Hydrogel Bilayers6 en7van de 3D printbare Droplet Interface dubbelgelaagde gebaseerde artificiële weefsels) tolereren niet detergentia. Snel opkomende synthetische biologie toepassingen8,afhankelijk9,10 kritisch functionalization van dergelijke complexe membraan structuren. Daarom is een gemakkelijke en robuuste methode waardoor snel en zachte bezorging van membraaneiwitten binnen de doelgroep kwetsbare bilayers hoogst gezocht in het veld.
Alternatief, wasmiddel-vrije eiwit leveringsmethode is vesikel fusion, waar interactie blaasjes membranen verenigen in de intacte postfusion dubbelgelaagde, terwijl hun intravesicular waterige inhoud krijgen gemengd, zonder wordt vrijgegeven in de externe milieu. Vesikel fusion is ingeschakeld en gedreven door conformationele herschikkingen binnen de complementaire fusogenic agenten (Sommige eiwitten11,12 en peptiden13 of speciaal gemodificeerde DNA14) gelegen in het contact met bilayers, of Coulombic interacties tussen lipiden-bilayers gevormd van complementair geladen kationische en anionische lipiden15,16, of kationische bilayers en negatief geladen eiwitten17.
De voormalige aanpak vereist de aanwezigheid van fusogenic agentia in de interactie membranen voorafgaand aan de fusie, is relatief traag (~ 30 min tot half-maximaal fusion12,18), maar kan worden toegepast op zowel natuurlijke als kunstmatige membranen.
Een voordeel van de aanpak met behulp van fusogenic lipiden (Figuur 1) is dat het in staat veel sneller membraan fusion (~ 1 min stelt tot half-maximum, en 5-10 min tot het einde van de reactie). Bovendien, kan de omvang van de fusie worden gecontroleerd door i) een makkelijk te formuleren van de relatieve inhoud van geladen lipiden in fusogenic de bilayers, en ii) ionogene en in het algemeen, osmotische kracht van de reactie medium (zouten op boven 50 mM, en, bijvoorbeeld, sacharose15 worden weergegeven om te stoppen met fusion), of een combinatie van beide. Om te beginnen fusion, zijn tegengesteld geladen fusogenic blaasjes gemengd in een laag (gewoonlijk 10-20 mM zout) Ionische sterkte medium voor 5-10 min. Een relatieve nadeel van de methode is dat kationische lipiden een negatief effect op de functionaliteit van membraaneiwitten in kationische proteoliposomes voorafgaand aan de fusie, vooral in lage Ionische sterkte uitoefenen kunnen, maar dit effect omkeerbaar en verholpen door een natuurlijke is lipide samenstelling van de post fusie membraan en de terugkeer naar het normale Ionische sterkte medium.
Protocol
1. bereiding van fusogenic SUV en LUV
-
Voorbereiding van fusogenic lipide mengsel
- Bereiden van stamoplossingen van neutrale, kationische anionogene en fluorescerende lipiden in chloroform bij 25-50 mg/mL (bijvoorbeeld, neutrale DOPC (1,2-dioleoyl-sn-glycero-3-phosphocholine), kationische ethyl-PC (1,2- dimyristoleoyl-sn-glycero-3-ethylphosphocholine), anionogene POPA (1-palmitoyl-2-oleoyl-sn-glycero-3-phosphate), en fluorescerende cholesteryl-Bodipy-FL12, respectievelijk) door weging van de juiste hoeveelheid droge lipiden en hen oplost in 100% chloroform (Let op! Doe dit onder een zuurkast), of verdunnen van verkrijgbare chloroform voorraden van lipiden met chloroform.
Opmerking: Zowel natuurlijke lipide extracten en zuivere synthetische lipiden kunnen worden gebruikt en vergelijkbare resultaten tonen. - Mix 2,5 mg een kationische en 2,5 mg een neutrale lipide in chloroform voorraad (1.1.1) in een glazen ampul.
Opmerking: Deze stap levert 5 mg van kationische lipide mengsel in chloroform, met 50% gewicht Fractie van kationische lipiden. Wanneer nodig, 0,5% gewicht breuk van een fluorescerende lipide aan het mengsel toevoegen. - Meng 1 mg anionogene en 4 mg van neutrale lipiden in chloroform voorraden (1.1.1) in een glazen ampul. Dit geeft 5 mg van anionactieve lipide mengsel met 20% gewicht Fractie van anionactieve lipiden.
- Chloroform onder een stroom van stikstof om te vormen van een dunne laag van droge lipide verdampen.
- Verwijder de resterende chloroform onder drukvermindering gedurende 10 minuten.
Opmerking: Traditioneel deze stap duurt veel langer (1-12 h), maar we vonden dat een langere behandeling geen duidelijke verbetering biedt in de koppeling van de eigenschappen van een SUV. - Hydrateer de droge lipide-film door toevoeging van 0,5 mL buffer A (100 mM KCl, 1 mM MgCl2, 50 mM MOPS, pH 7.4) aan elke flacon en waardoor ze staan bij kamertemperatuur voor 30 min, waarna vortex totdat de lipide-film volledig los van het glasoppervlak en b is ecomes een homogene lipide schorsing. Dit moet nemen over 20-40 s.
- Bereiden van stamoplossingen van neutrale, kationische anionogene en fluorescerende lipiden in chloroform bij 25-50 mg/mL (bijvoorbeeld, neutrale DOPC (1,2-dioleoyl-sn-glycero-3-phosphocholine), kationische ethyl-PC (1,2- dimyristoleoyl-sn-glycero-3-ethylphosphocholine), anionogene POPA (1-palmitoyl-2-oleoyl-sn-glycero-3-phosphate), en fluorescerende cholesteryl-Bodipy-FL12, respectievelijk) door weging van de juiste hoeveelheid droge lipiden en hen oplost in 100% chloroform (Let op! Doe dit onder een zuurkast), of verdunnen van verkrijgbare chloroform voorraden van lipiden met chloroform.
-
Vorming van de SUV en LUV door extrusie
- Monteren van een extrusie-systeem (Zie de Tabel van materialen) met twee 1 mL spuiten met behulp van een polycarbonaat-filter met een van de volgende porie maten: 100 of 200 nm aan formulier SUV, en 400 of 800 nm aan formulier LUV.
- Spoel de suspensie van lipide in een spuit.
- Geef de diepte van de opschorting door het door het filter 21 keer, zoals elders18,19.
Opmerking: Een oneven aantal passages is nodig om het minimaliseren van de overdracht in het vesikel oplossing van grote lipide bosjes vast aan de zijde van de filter naar de oorspronkelijke lipide schorsing. - Pipetteer vesikel oplossing in 1,5 mL microcentrifuge buizen.
2. vorming van Fusogenic GUV door omgekeerde emulsie methode
Opmerking: Deze procedure wordt geïllustreerd in Figuur 2.
-
Bereiding van lipide-in-olie-oplossing
- Meng een voorraad van chloroform (zie stap 1.1.1) van een neutrale lipide (2 mg) en een anionogene lipide (0.5 mg) met 1 mL hexadecaan in 1.5-mL microcentrifuge buis.
- Verdampen chloroform uit het mengsel onder voortdurend mengen en verwarming bij 80 ° C gedurende 30 minuten de buis open te houden. Sluit de buis en laat afkoelen tot kamertemperatuur.
-
Vorming van een lipide enkelgelaagde op het raakvlak van lipide-in-olie/waterige buffer
- Plaats 200 µL van het lipide-in-olie-oplossing op de top van 0,5 mL buffer B (20 mM KCl, 0.1 mM MgCl2, 10 mM MOPS pH 7.4) in een centrifugebuis 1,5 mL. Opmerking de bolle vorm van de fase-scheiding grens als gevolg van oppervlaktespanning wanverhouding tussen de olie en de waterige buffer (figuur 2A).
- Wacht tot de grens van de scheiding fase worden afgevlakt, die is een indicatie van lipide enkelgelaagde vorming op het. Dit duurt meestal 30-60 min bij kamertemperatuur.
-
Voorbereiding van een water-in-olie emulsie
- Bereiden van een oplossing van een in water oplosbare niet-ionogene polysaccharide in buffer B, met een dichtheid hoger dan de dichtheid van water (bijvoorbeeld 15% densiteitgradiënt-400 (w/v), met dichtheid 1.05 g/mL)
Opmerking: Eventueel kan men fluorescente in water oplosbare kleurstoffen toevoegen aan de buffer voor betere visualisatie van GUV, en eventuele andere gewenste waterige inhoud van de GUVs. - 0,5 µL van het bovenstaande mengsel een aparte 1.5-mL centrifugebuis met 100 µL van de lipide-in-olie-oplossing van 2.1.2 overbrengen.
- Bewerk ultrasone trillingen ten (44 kHz op 14 W) het mengsel voor 30 s in een ultrasone waterbad. Dan, krachtig vortex voor 45 min om te vormen van een water-in-olie emulsie, waar elke druppel zal worden bekleed door een lipide enkelgelaagde (figuur 2B).
- Bereiden van een oplossing van een in water oplosbare niet-ionogene polysaccharide in buffer B, met een dichtheid hoger dan de dichtheid van water (bijvoorbeeld 15% densiteitgradiënt-400 (w/v), met dichtheid 1.05 g/mL)
-
Omzetting van de water-in-olie emulsie in GUV
- De resulterende emulsie plaats op de top van het lipide-in-olie/waterige interface en centrifugeer onmiddellijk de buis in een tafelblad centrifuge op 10.000 x g gedurende 2 minuten. De resulterende pellet van GUV moet duidelijk zichtbaar (figuur 2C).
- De buis tot 4 ° C in een koelkast te stollen van het lipide-in-olie mengsel afkoelen (figuur 2D, hexadecaan stolt minder dan 18 ° C), verwijder voorzichtig bevroren olie, en dan trekken de waterige fase.
Opmerking: Om olie verwijdering bevriezen een draad in de vorm van een anker gebogen werd gebruikt. - Resuspendeer de pellet GUV in 50 µL van verse buffer B, overdracht naar een verse buis, en onder een fluorescentie Microscoop met behulp van een 100 X olie onderdompeling doelstelling (figuur 2E) te inspecteren.
3. toezicht vesikel Fusion met kobalt-calceïne methode
-
Voorbereiding van een gel-filtratie zwaartekracht kolom.
- Geniet van een gel-filtratie-hars (bijvoorbeeld superfijne sephadex G-50) ~ 10 g in 100 mL gedeïoniseerd water en laat 's nachts zwellen.
- Pak 3 mL van de hars in een wegwerp plastic zwaartekracht stroom kolom, wassen met ultrazuiver water en equilibreer met buffer C (100 mM KCl, 10 mM MOPS, pH 7.4) bij kamertemperatuur.
-
Voorbereiding van de SUV+ of SUV0 geladen met kobalt-calceïne.
- Bereid een oplossing met calceïne 1 mM, 1 mM CoCl2, 98 mM NaCl, 10 mM MOPS, dan brengen pH aan 7.4.
Opmerking: De essentie van de methode is dat die gratis fluorescerende calceïne vormt een niet-fluorescerende complex met Co2 +. Wordt het fluorescerende opnieuw op toevoeging van EDTA, welke met hogere affiniteit voor Co2 +, verdringt calceïne van het kobalt-calceïne complex (figuur 3A). - Voeg 500 µL van deze oplossing naar een droge film van kationische of neutrale lipiden voorbereid zoals beschreven in punt 1.1.
- Bereiden van 100 nm SUV door extrusie zoals beschreven in 1.2.
- Pellet geëxtrudeerde SUV bij 1.000.000 x g gedurende 20 min in een tafelblad ultracentrifuge en resuspendeer in 1 mL buffer C. Herhaal pillering en resuspensie driemaal; 0,6 mL buffer C voor de laatste resuspensie gebruiken.
Opmerking: Deze stappen verwijdert u allermeest naar de externe kobalt-calceïne. - Verwijder de resterende externe kobalt-calceïne door SUV passeren een wegwerp zwaartekracht-flow kolom geladen met de gel-filtratie-hars geëquilibreerd met buffer C zoals beschreven voor stap 3.1.2.
Opmerking: We doorgaans negeren van het eerste deel van de milliliter van de doorstroming en verzamelen de tweede milliliter, waarin externe kobalt-calceïne gratis SUV.
- Bereid een oplossing met calceïne 1 mM, 1 mM CoCl2, 98 mM NaCl, 10 mM MOPS, dan brengen pH aan 7.4.
-
Voorbereiding van SUV- geladen met EDTA
- Bereid de oplossing van 10 mM EDTA, 80 mM NaCl, 10 mM MOPS, pH 7.4.
- Voeg 500 µL van deze oplossing naar een droge film van anionactieve lipiden voorbereid zoals beschreven in punt 1.1.
- Bereiden SUV- door extrusie zoals beschreven in 1.2.
- Pellet en resuspendeer SUV- , zoals beschreven in 3.2.4.
- Verwijder de resterende EDTA door SUV- door de gel-filtratie-kolom zoals beschreven in de punten 3.2.5.
-
Voorbereiding van de SUV voor fusion
- Verdun SUV0, SUV+en SUV- met buffer D (1 mM MOPS, pH 7.4) aangevuld met 0,2 mM CoCl2 en de gewenste concentratie van KCl. gebruik 5 µL van elke soort SUV per 1 mL buffer overleden
- Laat het mengsel gedurende ten minste 1 uur inwerken.
Opmerking: Deze stap zal het minimaliseren van het achtergrondniveau van de fluorescentie door het blokkeren van calceïne dat oppervlak is gebonden aan SUV+.
-
Vesikel fusion
- Fusie reactie door 1 mL SUV+ of SUV0 te vermengen met 1 mL van de SUV− (verdund in buffer D zoals hierboven beschreven) start in een cuvet van 2 mL fluorimeter en monitor verhoging van fluorescentie calceïne met behulp van 480 nm excitatie en 510 nm emissie (Figuur 3B).
- Wacht totdat de reactie bij de voltooiing.
- Toevoegen van een mengsel van wasmiddel Triton X-100 en EDTA (eindconcentratie van 0,05% en 7 mM, respectievelijk) vrijgeven calceïne uit blaasjes en verkrijgen van het signaal maximale fluorescentie.
- Het bepalen van de omvang van de fusion gedefinieerd als het percentage van het signaal van de maximale fluorescentie na de wasmiddel toevoeging zoals aangegeven in Figuur 3 c.
4. snelle reconstitutie van membraaneiwitten in Fusogenic Proteoliposomes
Opmerking: Deze procedure wordt geïllustreerd in figuur 4A.
- Bereiden van een zwaartekracht stroom kolom met de gel-filtratie-hars zoals beschreven in 3.1 en equilibreer het met buffer A bij kamertemperatuur.
Opmerking: Alle verdere manipulaties moeten gebeuren strikt op ≤ 4 ° C, tenzij anders aangegeven, om te minimaliseren van verlies van eiwit activiteit. - Concentratie van het gezuiverde membraan eiwit tot 0,7 mg/mL aanpassen door verdunning van het met de dezelfde extractie buffer die wordt gebruikt voor isolatie van de eiwit.
- Mix-140 µL van het eiwit met 300 µL van voorgevormde SUV, 160 µL buffer A en 60 µL van 10% cholate in Buffer A; Dit geeft 1:30 eiwit: lipide gewichtsverhouding in een eindvolume van 660 µL.
- Schud het mengsel zachtjes op een rockende platform voor 15 min.
Opmerking: De volgende stappen kunnen worden gedaan bij kamertemperatuur. - Laat het mengsel door de gel-filtratie hars, en het verzamelen van troebel breuken met proteoliposomes.
- Pellet proteoliposomes met een tafelblad ultracentrifuge bij 400.000 x g gedurende 15 minuten.
- Verwijder het supernatant die niet-gereconstitueerd eiwitten bevatten, en resuspendeer de pellet in 1 mL verse buffer A.
- Bepaal het eiwitgehalte in PL en het supernatant met behulp van de methode Amido-zwart20.
- Bepalen het rendement van reconstitutie, welke meestal rond 50-70%.
Opmerking: Stappen 4.6-4.8 kunnen eventueel worden vervangen door het passeren van PL oplossing door 1 mL Ni-NTA hars verpakt in een wegwerp zwaartekracht kolom en gewassen met Buffer A zoals beschreven in 3.1.2. Dergelijke doorgeven worden gescheiden niet-gereconstitueerd eiwit, dat bij voorkeur zullen worden gebonden aan de hars, uit PL, meest waarvan zal worden in de doorstroming.
5. functionele effectiviteitstesten eiwit in Proteoliposomes
Opmerking: Beide eiwitten gebruikt in deze studie zijn krachtige proton pompen, die H+ in proteoliposomes bij toevoeging van hun substraten pompen (co-enzym Q-1 voor bo3-oxidase en ATP voor F-1Fo, respectievelijk), dus bouw een proton verloop over het membraan (ΔpH). In geval van succesvolle co reconstitutie door fusie, kan dergelijke verzuring worden waargenomen als een afname van de fluorescentie van een sonde van de pH-gevoelige ACMA (9-Amino-6-Chloro-2-Methoxyacridine)12,15, die routinematig voor dergelijke taken gebruikt is ( Figuur 4B -C). Bovendien substraat-specifieke activiteit van de eiwitten (co-enzym Q1 oxidatie door bo3-oxidase22 en ATP-hydrolyse door F1Fo23,24) kan worden gecontroleerd spectrophotometrically met behulp van verschillende methoden. Hier tonen we ATP hydrolyse-activiteit van F1Fo PL met behulp van een ATP regenereren assay (Figuur 4 d), waar twee enzymen (pyruvaat kinase (PK) en lactaat dehydrogenase (LDH) handhaving van een constante concentratie van ATP als volgt. PK recycleert ATP door het omzetten van ADP geproduceerd door F1Fo terug in ATP ten koste van zijn substraat phosphoenolpyruvate (PEP). Pyruvaat, dat een product van deze reactie is, wordt omgezet in melkzuur door LDH ten koste van NADH, de oxidatie van die kan worden gecontroleerd als minderen optische dichtheid bij 340 nm.
-
Voorbereiding van chemische stoffen
- Bereiden 1 mM ACMA voorraad in ethanol.
- Een 1 mM voorraad van nigericin (of elke andere uncoupler) in ethanol te bereiden.
- Bereiden van 25 mM co-enzym Q1 voorraad in ethanol, en 1 M DTT voorraad in buffer A.
- Bereiden van een voorraad van 100 mM ATP in Buffer A en breng de pH op 7.4.
- Bereiden van voorraden van ATP regenereren systeemonderdelen in Buffer A: 100 mM PEP, 1 mM NADH en oplossingen van PK en LDH bij concentratie van ~ 500-1000 eenheden/mL.
-
Co-enzym Q1 oxidatie-gedreven proton pompen door bo3-oxidase PL
- Voeg 20 µL van PL naar een fluorimeter Cuvet met 2 mL buffer A in aanwezigheid van 0,5 µM ACMA en wachten tot stabiel signaal met 430 nm excitatie en 515 nm emissie.
- Voeg toe 40 µM co-enzym Q1 aan de cuvette.
- Initiëren proton pompen door toevoeging van 2 mM DTT aan PL (figuur 4B).
Opmerking: DTT vermindert geoxideerde co-enzym Q1 en maakt het beschikbaar voor bo3-oxidase. - Verdrijven gevormde ΔpH door toevoeging van 2 µM uncoupler (bijvoorbeeld nigericin). ACMA fluorescentie signaal moet snel terugkeren naar bijna het oorspronkelijke niveau.
Opmerking: Er mag geen ACMA blussen na toevoeging van het substraat, als de uncoupler in eerste instantie in het reactiemengsel aanwezig is.
-
ATP hydrolyse-gedreven proton pompen door F1FoPL
- Voeg 40 µL van PL naar een fluorimeter cuvette zoals beschreven in punt 5.2.
- Initiëren proton pompen door het toevoegen van 0,2 mM ATP aan PL (figuur 4C).
- Verdrijven ΔpH zoals beschreven in 5.2.4.
-
ATP-hydrolyse door F1FoPL, en het stimuleren van de uncoupler
- Voeg 40 µL van PL naar een spectrofotometer Cuvet met 2 mL buffer A, met 1 mM ATP, 0,2 mM NADH, 2 mM PEP, en 15 µL van PK en LDH.
- Volg de reactie door het meten van de extinctie daling van NADH bij 340 nm. 2 µM uncoupler toevoegen 3-4 min later aan de cuvette vrij te geven van de tegendruk van de ΔpH op de ATP-hydrolyse. De reactiesnelheid moet onmiddellijk verhogen.
Opmerking: PL gepasseerd Ni-NTA hars zoals beschreven in 4.10 Demonstreer de sterkste stimulatie door de uncoupler (Figuur 4 d, rode trace), terwijl het eluaat zullen nauwelijks gestimuleerd (blauwe trace).
6. het testen van invloed van lipide milieu en Ionische sterkte op functionaliteit van membraaneiwitten in Fusogenic Proteoliposomes
- Beoordelen proton pompen door 40 µL van PL+, PL- en PL0 met ACMA blussen test in 2 mL buffer D aangevuld met 1 mM MgCl2 en 20 (Figuur 5, deelvenster A) of 100 mM KCl (deelvenster B) zoals beschreven in 5.2 of 5.3 (Figuur 5 rode, zwarte en blauwe sporen).
- Zekering 40 µL van PL+ met dezelfde hoeveelheid LUV- in 2 mL zuiver buffer D aangevuld met 20 mM KCl, en test voor ACMA blussen (groene trace).
- Controle experimenten zoals in stap 2 uitvoert door het mengen van, bijvoorbeeld, laden PL en SUV van hetzelfde (grijze trace).
Opmerking: Proton pompen moet worden verbeterd door postfusion PL.
7. levering van membraaneiwitten in LUV en GUV door Fusogenic Proteoliposomes
- Zekering 50 µL van PL+ met 50 µL van 800 nm LUV- in 1 mL buffer D aangevuld met 1 mM MgCl2en 20 mM KCl voor 5 min.
- De blaasjes bij 6.000 x g gedurende 5 min pellet en negeren supernatant met spoorverontreiniging PL+. Resuspendeer de pellet in 1 mL buffer D aangevuld met 1 mM MgCl2 en 100 mM KCl, en herhaal pillering en resuspending twee keer meer.
- ACMA assay blussen, zoals beschreven in 5.2 of 5.4 uitvoeren
- Voer controle experimenten, zoals in de stappen 1-3, met behulp van combinaties van aanvullende geladen blaasjes in hoge zout (200 mM KCl), niet-fusogenic blaasjes en loze LUV- zonder PL+.
Opmerking: Proton pompen door postfusion LUV moet alleen wordt ontdekt als complementair geladen blaasjes werden gebruikt zoals weergegeven in Figuur 6.
8. assemblage van elektronentransport keten van afzonderlijke onderdelen in de membranen van LUV en GUV en ATP-productie door deze keten.
Opmerking: Een schematische voorstelling van deze procedure wordt geïllustreerd in figuur 7A. ATP geproduceerd in dit experiment zal worden geregistreerd door het luciferine-luciferase systeem, wanneer de omzetting van gesynthetiseerde ATP in pyrofosfaat en AMP door luciferase wordt gevolgd door licht emissie geregistreerd met een luminometer. Het is raadzaam om met behulp van een single-buis-luminometer, in plaats van het minder gevoelig microplate-luminometers.
- Mix 3 µL van bo3-oxidase PL+ en 5 µL van F1Fo PL+ gevormd zoals beschreven in sectie 4.
- Zekering hen met 3 µL van LUV of GUV- (gevormd zoals beschreven in sectie 2) in 800 µL van buffer D aangevuld met 20 mM KCl en 1 mM MgCl2 voor 5 min.
- KCl en MOPS wordt met behulp van hoge concentratie voorraden, toevoegen aan de definitieve concentratie van 100 mM en 50 mM aan de postfusion membranen.
Opmerking: In geval van post fusie LUV, deze stap wordt voorkomen dat hun zwelling als gevolg van de verschuiving van de osmotische tussen de externe (buffer A) en de intravesicular (buffer D) concentratie zouten.- Eventueel de postfusion membranen pellet zoals beschreven in 7.2 te scheiden spoorverontreiniging SUV+en resuspendeer de pellet in 800 µL van buffer A.
- Bereiden van 200 µL van een luciferine-luciferase-ADP cocktail met 400 µM ADP, 50 µM luciferine en 2,5 µg luciferase in buffer A
- De cocktail toevoegen aan het postfusion mengsel van Step8.3.
- Voeg toe 40 µM van geoxideerd co-enzym Q1en energization van de postfusion membranen trigger door bo3-oxidase door toevoeging van 2 mM DTT. 1 min wachten.
- Starten van de ATP-synthese door toevoeging van 5 mM kalium fosfaat (KPik, pH 7.4) aan energiek blaasjes en detecteren van de ATP productie met een luminometer (figuur 7B). De reactie van ~ 3 min lopen.
TOELICHTING: ATP synthese reactie opbrengsten gedurende 5-7 minuten tot uitputting van zuurstof verbruikt door bo3-oxidase en luciferase. - ATP-norm (0.5 nmol ATP) aan het reactiemengsel tweemaal toevoegen. Maatregel ATP geproduceerd.
- Het werkelijke bedrag van ATP geproduceerd in de reactie door het verdelen van het signaal van de ATP synthese reactie door de ATP referentie standaardsignaal verkrijgen. Pas deze waarde aan het totale bedrag van F1Fo gebruikt in de reactie, en ten slotte express het tempo van de ATP-synthese in µmol ATP / (mg F1Fo* min).
Resultaten
Het gebruik van fusogenic aanvullende geladen proteoliposomes voor snelle wasmiddel-gratis levering van membraaneiwitten in doel dubbelgelaagde membranen omvat drie stappen (Figuur 1): A, vorming van fusogenic SUV uit lipide-mengsels met hoog inhoud van geladen lipiden; deze SUV kan optioneel belast een intravesicular; B, omzetting van fusogenic SUV in PL met behulp van onze snelle membraan eiwit reconstitutie; C, fusie van fusogenic PL met doel bilayers in lage-zout medium, gevolgd door toevoeging van hoge zout om te stoppen met de fusie-reactie. In het geval van grote blaasjes (D), een beter strategie is het leveren van membraan eiwit in de anionogene doel dubbelgelaagde, waardoor een betere omgeving van het lipide voor activiteit van membraaneiwitten (zie verder in de tekst).
Het protocol van de vorming van GUV met omgekeerde emulsie methode is gemarkeerd in detail in Figuur 2. Wij bij voorkeur gebruik van hexadecaan in het lipide-olie mengsel te wijten aan de relatief hoge vriestemperatuur (18 ° C), waarmee gemakkelijk verwijderen van gestolde olie na GUV pillering.
Figuur 3 toont vesikel fusion kobalt-calceïne-EDTA methode. Fusion is gezien alleen als complementaire geladen blaasjes worden gebruikt in laag zout buffers, terwijl de hogere concentraties van zout (> 50 mM14) of het gebruik van niet-fusogenic blaasjes tonen geen fusie.
Deze snelle protocol van reconstitutie van membraaneiwitten in fusogenic SUV wordt geïllustreerd in figuur 4A. Met behulp van dit protocol, we laten zien snel reconstitutie van primaire proton pomp bo3-oxidase en F1Fo ATP-synthase in PL, en beoordeling van hun specifieke activiteiten in deze membranen. Het is belangrijk te vermelden dat het rendement van eiwit reconstitutie is niet afhankelijk van de lading van een lipide gebruikt15 en ongeveer 50-75 is %25,12, en dat na reconstitutie in PL, het eiwit kan worden opgeslagen voor ten minste drie dagen, zelfs bij kamertemperatuur zonder duidelijk verlies van eiwit activiteit. Deze procedure biedt ook unidirectionele oriëntatie van ATP-synthase, waar meer dan 95% daarvan de hydrofiele groep F1 gericht naar buiten15,26 heeft.
Figuur 5 blijkt dat de proton pompen activiteit van F1Fo (a-Panel) en bo3-oxidase (deelvenster B) in kationische lipiden is verminderd en gevoelig voor lage Ionische sterkte, in vergelijking met anionogene en neutrale lipide milieu, maar Dit effect is opgevangen in postfusion membranen na het smelten van PL+ met anionogene LUV-.
Figuur 6 toont aan de levering van F1Fo ATP-synthase in membranen van grote blaasjes. In dit experiment, PL+ en 800 nm LUV- waren gesmolten in 20 mM KCl gedurende 5 minuten, en het reactieproduct was Ingehuld Schakel al PL+, geresuspendeerde en vehiculumcontrolegroep proton pompen. Control-experimenten toonde geen proton pompen wanneer LUV0 in plaats daarvan van LUV- werden gebruikt in de fusie-reactie (zwarte sporen) of lege LUV- alleen werden getest (blauwe trace).
Snelle montage van een goed functionerende elektronentransport keten in de membranen van grote blaasjes door middel van fusogenic PL is afgebeeld in Figuur 7. We gebruikten F1Fo SUV+ en bo3 SUV+ voor fusion met 800 nm LUV-, en de ATP productie door deze keten in de postfusion vesikels aangetoond door sequentieel toevoeging van co-enzym Q1 en DTT om te activeren membranen en vervolgens toe te voegen fosfaat te activeren van de ATP-synthese door F1Fo.
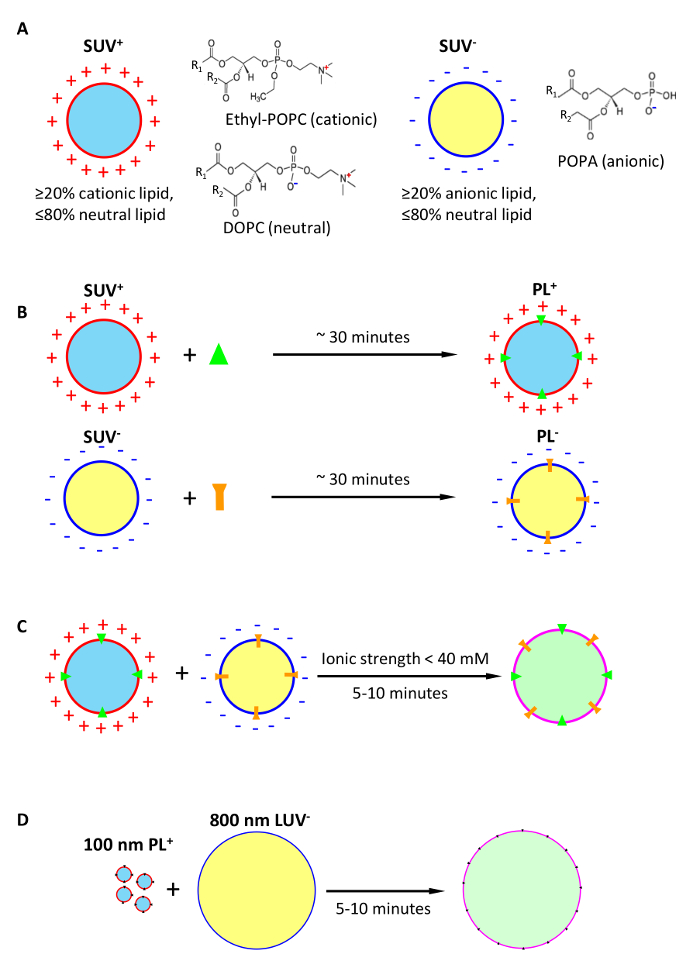
Figuur 1: conceptie van ultrasnelle wasmiddel-gratis levering van membraaneiwitten in doel lipide bilayers via fusie van unilamellar blaasjes gevormd door complementaire geladen lipiden. (A) vorming van kationische en anionische fusogenic kleine unilamellar blaasjes (SUV+, SUV-) optioneel geladen met intravesicular lading. (B) conversie van fusogenic SUV in fusogenic proteoliposomes (PL) door reconstitutie van membraaneiwitten. (C) wasmiddel-gratis levering van membraaneiwitten in postfusion membranen met fusogenic PL. (D) voorkeur strategie voor levering van membraaneiwitten in membranen van grote blaasjes, geïllustreerd door de fusie tussen 100 nm PL+ en 800 nm LUV-. Klik hier voor een grotere versie van dit cijfer.
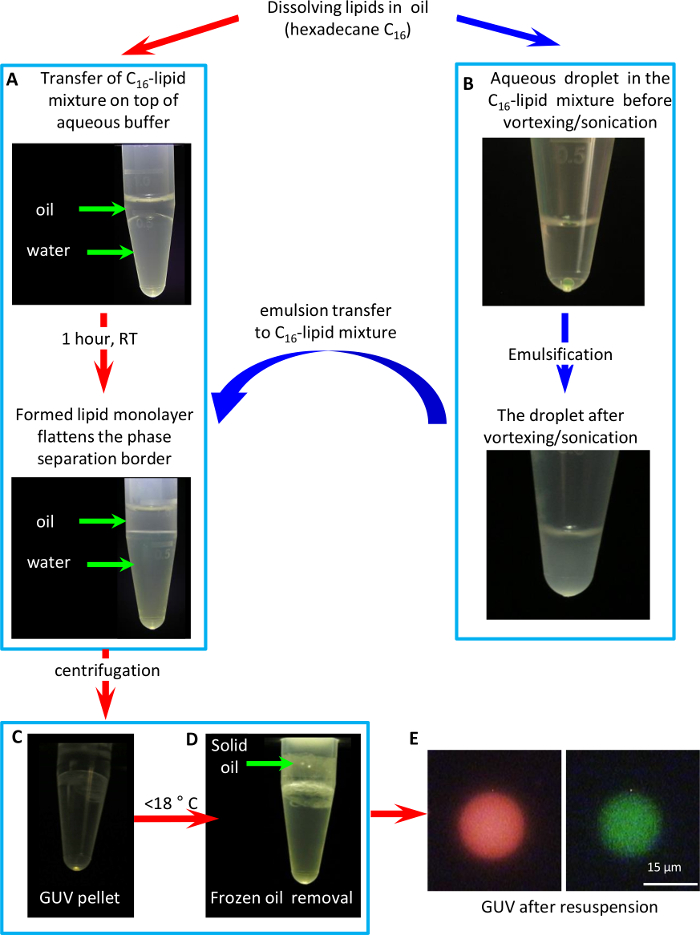
Figuur 2: GUV vorming protocol met een omgekeerde emulsie methode. (A) vorming van een lipide enkelgelaagde op de grens tussen de olie-lipide-mengsel en het water. (B) vorming van een omgekeerde emulsie (water-in-olie). (C) GUV vorming door het passeren van de emulsie via de olie-water-grens door middel van centrifugeren. (D) koeling van de tube hieronder < 18 ° C tot stollen en het verwijderen van de olie. (E) A fluorescent microscopie afbeelding van een GUV met fluorescerende lipide (1% gewicht breuk cholesteryl-Bodipy-FL12) in haar membraan (groen) en een polar fluorophore (1 mM Sulforhodamine 101) in het vesikel lumen (rood). Klik hier voor een grotere versie van dit cijfer.
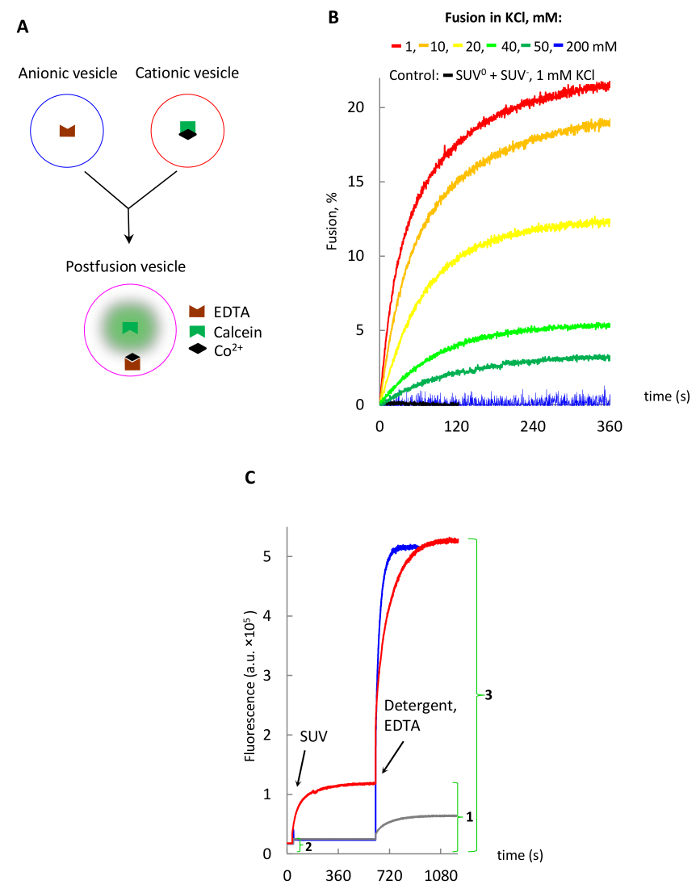
Figuur 3: lipide blaasjes fusion studeerde bij de methode kobalt-calceïne-EDTA. (A) schema van de methode, waar gratis calceïne wordt vrijgelaten uit een niet-fluorescerende kobalt-calceïne complex door EDTA. (B) Fusion van SUV in verschillende concentraties van de KCl. (C) versie van de intravesicular calceïne door toevoeging van EDTA en Triton X-100 wasmiddel te postfusion blaasjes in B komt te staan, zoals beschreven in de tekst. De omvang van de fusie (%) voor rode tracering wordt berekend door het signaal maximale achtergrond-gecorrigeerde fusion (1 - 2) door de achtergrond-gecorrigeerde maximale signaal na de release van ingekapselde calceïne (3-2) en te vermenigvuldigen met 100. Klik hier voor een grotere versie van dit cijfer.
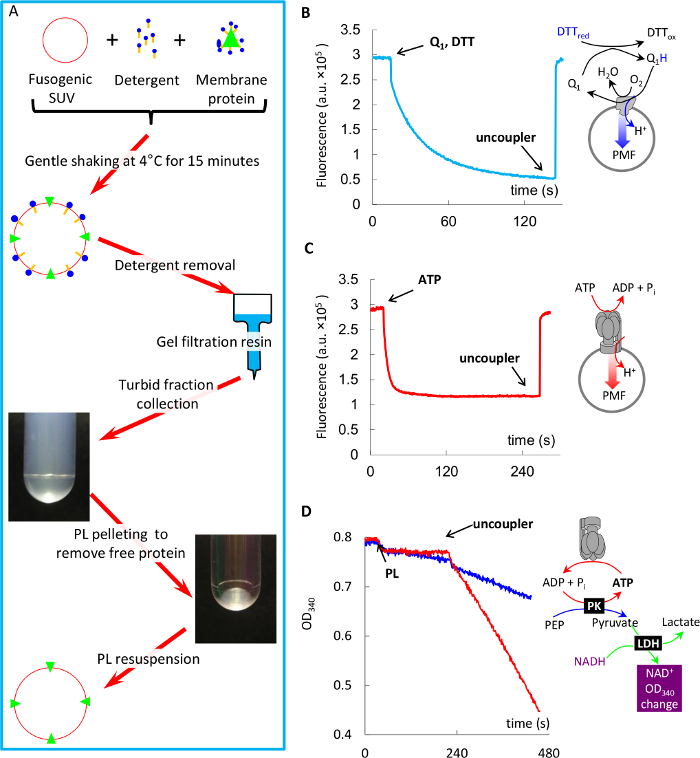
Figuur 4: Ultrasnelle reconstitutie van bo3-oxidase en F1Fo in fusogenic proteoliposomes en eiwit activiteit metingen in dergelijke proteoliposomes. (A) schema van de reconstitutie-protocol. (B) co-enzym Q1 oxidatie gedreven proton pompen door bo3-oxidase in PL gemeten met ACMA blussen (uitgelegd in tekst). (C) ATP hydrolyse-gedreven proton pompen door F1Fo in PL gemeten met ACMA blussen (uitgelegd in tekst). (D) ATP-hydrolyse door F1Fo in PL gemeten met ATP-regenereren systeem (uitgelegd in tekst), en het stimuleren van de uncoupler. Klik hier voor een grotere versie van dit cijfer.
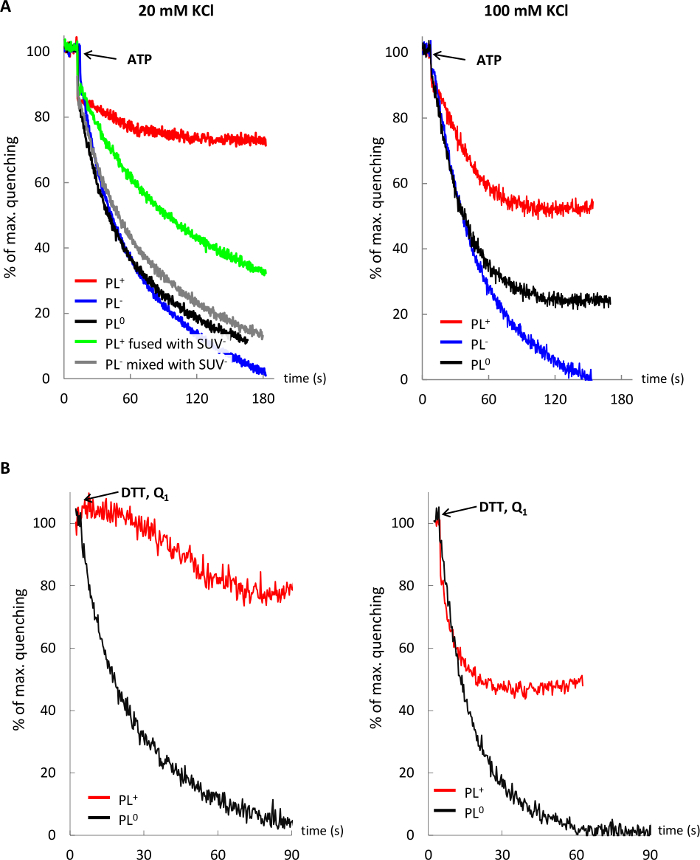
Figuur 5: invloed van de lipide milieu en Ionische sterkte op activiteit van membraaneiwitten. Proton pompen door F1Fo (A) en bo3-oxidase (B) in kationische PL (rode trace), anionogene PL (blauwe trace), neutrale PL (zwarte sporen) en kationogene PL gefuseerd met anionogene LUV (groene trace) in 20 en 100 mM (trace) KCl. Control grijs) wordt geen wijziging in de proton pompen door F-1Fo PL- bij mengen met SUV-. Klik hier voor een grotere versie van dit cijfer.
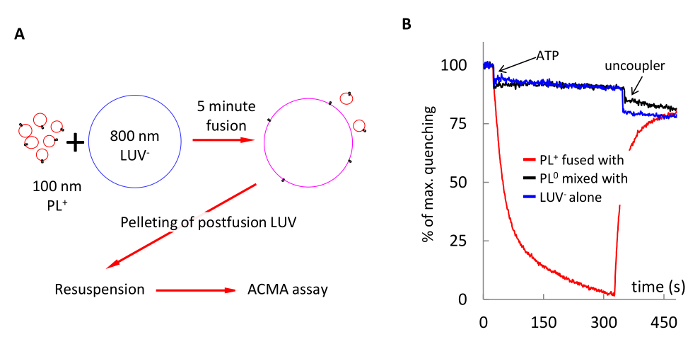
Figuur 6: Levering van F1Fo ATP-synthase in membranen van 800 nm LUV- via fusie met PL+. (A) Schematische voorstelling van het experiment: PL+ en 800 nm LUV- waren gesmolten in 1 mM MOPS (pH 7.4), 1 mM MgCl2, 20 mM KCl voor 5 min, Ingehuld Schakel al PL en geresuspendeerde in de dezelfde buffer. (B) Proton pompen door de postfusion LUV (rode trace). Control-experimenten toonde geen ACMA blussen wanneer PL0 waren gemengd met LUV- (zwarte sporen), of lege LUV- alleen werden getest (blauwe trace). Klik hier voor een grotere versie van dit cijfer.
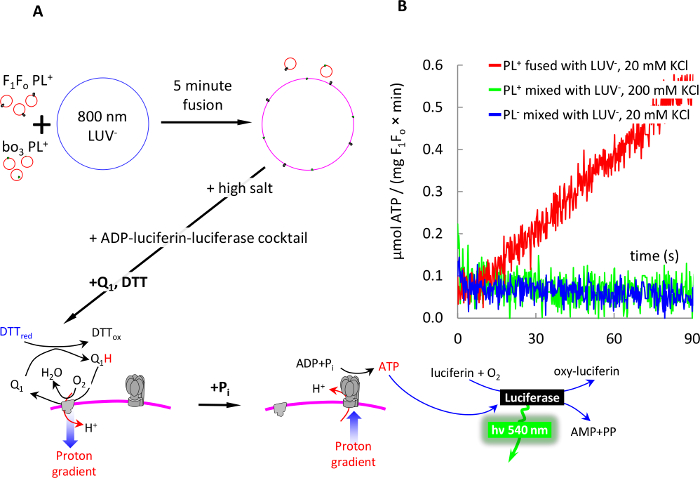
Figuur 7: 5-min wasmiddel-gratis montage van een keten van elektronentransport in membranen van 800 nm LUV- via fusie met PL+. (A) Schematische voorstelling van het experiment: 100 nm F1Fo PL+ en 100 nm bo3-oxidase PL+ waren gesmolten met LUV-, zoals beschreven in Figuur 6. Fusion werd tegengehouden door het toevoegen van KCl en MOPS tot 100 en 50 mM, respectievelijk. De membranen werden vermengd met ADP-luciferine-luciferase cocktail en energiek door toevoeging van DTT en Q1, zoals beschreven in de tekst. ATP productie werd ingeleid door toevoeging van 1 mM-fosfaat (Pik) en gecontroleerde real time met luciferine-luciferase systeem zoals beschreven in de tekst. (B) ATP-synthese door postfusion blaasjes (rode trace). Control-experimenten toonde geen ATP-productie bij PL+ waren gemengd met LUV- in hoog zout (grijs), of PL0 waren gemengd met LUV- (zwart). ATP synthese tarief werd berekend zoals uitgelegd in de tekst (in stappen van 8,8-8,9). Klik hier voor een grotere versie van dit cijfer.
Discussie
De volgende paar kwesties moeten worden overwogen voor het succes van deze experimentele aanpak:
Keuze voor proteoliposomes- en het doeldomein bilayers kosteloos lipide: Kationogene lipiden zijn niet gevonden in de natuur, terwijl anionogene lipiden overvloedig in biologische membranen bereiken zijn, bijvoorbeeld, ~ 25, 35 en 20% in de binnenste membraan van E. coli, plasmamembraan van gist S. cerevisiaeen innerlijke mitochondriale membranen van vele soorten, respectievelijk27,28,29. Het zou redelijk te verwachten dat de functionaliteit van membraaneiwitten in PL+ kan worden beïnvloed door de kracht van een positieve lading van het dubbelgelaagde, die op zijn beurt van een relatieve inhoud van kationische lipide in de dubbelgelaagde en externe Ionische afhangen zou sterkte. Het is daarom belangrijk om te pakken experimenteel in hoeverre functionaliteit van membraaneiwitten van belang zou afhangen van de lading van het kationische lipide-milieu. Hier, laten we zien dat zowel F1Fo ATP synthase en bo3-oxidase zijn gevoelig voor kationogene lipide milieu, maar we erin geslaagd te moduleren en dit effect door eerste plaatsen van de eiwitten in PL+ en leveren ze in de omgekeerde volgorde anionogene aanvaarding van bilayers, en vervolgens toename van de Ionische sterkte van het medium van de reactie na fusie is voltooid.
Keuze van een bepaalde kationische lipide: De meeste commercieel beschikbare kationische lipiden zijn van niet-triglyceride aard; Daarom moet een potentiële kandidaat-lipide worden getest op compatibiliteit met membraaneiwitten van belang. Eerder vonden we15 die de ATP-synthase gebruikt in deze studie toonde dat de beste prestaties in PL+ gevormd van ethyl-PC, die heeft de hoogste structurele gelijkenis met de natuurlijke triglyceride lipiden, terwijl in de DOTAP (niet-triglyceride lipide) PL+ dit eiwit was minder actief.
Blaasje fusion testen: Ware vesikel fusion (wanneer intravesicular vloeibare inhoud mengen) moet worden onderscheiden van tussenliggende hemi-fusion Staten, als blaasjes zonder hun waterige inhoud mengen met elkaar houden, maar gemakkelijk inhoud van hun externe of beide lipide mengen folders30. In geval van suboptimaal lipide mengsels of bepaalde voorwaarden, blaasjes ook laten zien dat uitgesproken vloeibare inhoud lekkage tijdens fusion31. Minimale concentraties van geladen lipiden in fusogenic mengsels waar fusion inschakelen moeten experimenteel worden gevonden voor elke soort lipide, maar in het algemeen, het komt voor dat membranen met minder dan 10% betalen lipiden niet-fusogenic 32worden weergegeven.
Terwijl fusogenic SUV in aanwezigheid van multi-valent ionen vormen, is het belangrijk niet te mengen tegengesteld geladen componenten, zoals dit onmiddellijke samendoen en aggregatie van lipiden door deze ionen veroorzaken kan. Bijvoorbeeld, terwijl de voorbereiding SUV van het kobalt-calceïne-EDTA-methode, is het belangrijk om te voorkomen dat een mengsel van kationische lipide mengen met EDTA ter voorkoming van verstopping van het filter polycarbonaat door geklonterd componenten.
Het is ook belangrijk om te vermelden dat de kobalt-calceïne-EDTA-methode, terwijl het zeer gevoelige en geschikt voor real-time fusion monitoring, nog steeds dat de omvang van de fusie wegens 1 onderschatten kan) zelf blussen van fluorescentie gratis calceïne binnen postfusion blaasjes, die naar verwachting bereiken van 1 mM, terwijl de zelf blussen drempel is gemeld dat ongeveer 20 µM33, en 2) oppervlakte-gebonden kobalt-calceïne, die gebonden aan SUV+ blijft zelfs na het passeren van de gel-filtratie-hars en de kleuren van blaasjes tot een fel oranje kleur, terwijl SUV0 hebben een bleke oranje kleur. Merk ook op dat release van de afhankelijke kobalt-calceïne op toevoeging van wasmiddel Triton X-100 in aanwezigheid van EDTA veel sterkere signalen voor SUV+ (Figuur 3 c, rode trace) dan SUV0 (grijs trace genereert).
Vooruitzichten: We verwachten dat de snelle benaderingen die hier beschreven aanzienlijk kunnen vergemakkelijken en versnellen van de assemblage van complexe membranen voor de behoeften van de opkomende synthetische biologie toepassingen. Onze membraan eiwit reconstitutie protocol duurt slechts een half uur voor de reconstructie van breekbaar Groot membraaneiwitten bekend te zijn gevoelig voor langdurige dialyse gebaseerde reconstitutie technieken, terwijl deze aanpak fusogenic slechts 5-10 min duurt te leveren dergelijke eiwitten in grote lipide bilayers. Hier tonen we de voordelen van deze benaderingen door het manipuleren van E. coli F1Fo ATP synthase, die een voorbeeld van een fragiele eiwit is. Het bestaat uit 23 subeenheden en is gekend om zijn integriteit gemakkelijk verliezen indien blootgesteld aan suboptimaal voorwaarden (bijvoorbeeld warmte) tijdens/na de solubilisatie, maar wordt gebruikt in deze procedures, het eiwit toont reproducibly hoogactieve in proton pompen.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Auteurs zijn dankbaar aan Robert Gennis van Universiteit van Illinois en Christoph von Ballmoos van de Universiteit van Bern voor het verstrekken van een plasmide en een soort uitspreken bo3-oxidase. Het project werd gesteund door BBSRC BB/L01985X/1 verlenen aan R.I. en R.B.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| DOPC neutraal lipid | Avanti Lipids | 850375 | |
| POPA anionisch lipid | Avanti Lipids | 840857 | |
| E-PC kationisch lipid | Avanti Lipids | 890704 | |
| Cholesteryl-Bodipy-FL12 | Thermofisher | C3927MP | |
| Sephadex G-50, Super Fine | Sigma | G5050 | |
| Ficoll 400, Type 400-DL | Sigma | F8016 | |
| ACMA | Sigma | A5806 | |
| Nigericin | Sigma | N7143 | |
| ATP | Sigma | A26209 | |
| Q1 | Sigma | C7956 | |
| DTT | Sigma | D0632 | |
| PEP | Sigma | 860077 | |
| NADH | Sigma | N8129 | |
| PK | Sigma | P9136-1KU | |
| LDH | Sigma | L1254-1KU | |
| Luciferin | Sigma | L6882 | |
| Luciferase | Sigma/Roche | 10411523001 | |
| Calcein | Insight Biotechnology | sc-202090 | |
| CoCl2 | Sigma | C8661 | |
| EDTA | Sigma | E6758 | |
| Sulforhodamine 101 | Sigma | S7635 | |
| Extrusiesysteem | Avanti Extruder | ||
| Single tube luminometer, model Sirius L | Titertek Berthold | ||
| Polycarbonaat filter, D19 mm | Sigma, Whatman NucleporeTrack-Etched Membranes | WHA800309, WHA800284 | 100 of 200 nm om SUV te vormen, en 400 of 800 nm voor LUV |
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
| Buffers gebruikt in het artikel | |||
| Buffer A | 100 mM KCl, 50 mM MOPS pH 7.4, 1 mM MgCl2 | ||
| Buffer B | 20 mM KCl, 10 mM MOPS pH 7.4, 0.1 mM MgCl2 | ||
| Buffer C | 100 mM KCl, 10 mM MOPS pH 7.4 | ||
| Buffer D | 1 mM MOPS pH 7.4 Verschillende concentraties KCl |
Referenties
- Rigaud, J. L., Levy, D. Reconstitution of membrane proteins into liposomes. Liposomes, Pt B. 372, 65-86 (2003).
- Johnson, M., et al. Two-dimensional crystallization of membrane proteins by reconstitution through dialysis. Methods Mol Biol. 955 (31-58), 31(2013).
- Dezi, M., et al. Detergent-mediated incorporation of transmembrane proteins in giant unilamellar vesicles with controlled physiological contents. Proc Nat Acad Sci U S A. 110 (18), 7276-7281 (2013).
- Girard, P., et al. A new method for the reconstitution of membrane proteins into giant unilamellar vesicles. Biophys J. 87 (1), 419-429 (2004).
- Angelova, M., et al. Preparation of Giant Vesicles by External Ac Electric-Fields - Kinetics and Applications. Trends in Colloid and Interface Science Vi. 89, 127-131 (1992).
- Leptihn, S., et al. Constructing droplet interface bilayers from the contact of aqueous droplets in oil. Nature Protocols. 8 (6), 1048-1057 (2013).
- Villar, G., Graham, A. D., Bayley, H. A Tissue-Like Printed Material. Science. 340 (6128), 48-52 (2013).
- Khalil, A. S., Collins, J. J. Synthetic biology: applications come of age. Nat Rev Genet. 11 (5), 367-379 (2010).
- Smith, M. T., Wilding, K. M., Hunt, J. M., Bennett, A. M., Bundy, B. C. The emerging age of cell-free synthetic biology. FEBS Lett. 588 (17), 2755-2761 (2014).
- Church, G., et al. Realizing the potential of synthetic biology. Nat Rev Mol Cell Biol. 15 (4), 289-294 (2014).
- Gao, Y., et al. Single reconstituted neuronal SNARE complexes zipper in three distinct stages. Science. 337 (6100), 1340-1343 (2012).
- Nordlund, G., Brzezinski, P., von Ballmoos, C. SNARE-fusion mediated insertion of membrane proteins into native and artificial membranes. Nat Commun. 5, 4303(2014).
- Decout, A., et al. Enhanced efficiency of a targeted fusogenic peptide. Biochimica Et Biophysica Acta-Biomembranes. 1372 (1), 102-116 (1998).
- Chan, Y. H., van Lengerich, B., Boxer, S. G. Effects of linker sequences on vesicle fusion mediated by lipid-anchored DNA oligonucleotides. Proc Natl Acad Sci U S A. 106 (4), 979-984 (2009).
- Ishmukhametov, R. R., Russell, A. N., Berry, R. M. A modular platform for one-step assembly of multi-component membrane systems by fusion of charged proteoliposomes. Nat Commun. 7, 13025(2016).
- Biner, O., et al. Delivery of membrane proteins into small and giant unilamellar vesicles by charge-mediated fusion. FEBS Lett. 590 (14), 2051-2062 (2016).
- Bian, T., et al. Direct detection of SERCA calcium transport and small-molecule inhibition in giant unilamellar vesicles. Biochem Biophys Res Commun. 481 (3-4), 206-211 (2016).
- Schuette, C. G., et al. Determinants of liposome fusion mediated by synaptic SNARE proteins. Proc Natl Acad Sci U S A. 101 (9), 2858-2863 (2004).
- Spencer, A. C., Torre, P., Mansy, S. S. The encapsulation of cell-free transcription and translation machinery in vesicles for the construction of cellular mimics. J Vis Exp. (80), e51304(2013).
- Verchere, A., et al. In vitro investigation of the MexAB efflux pump from Pseudomonas aeruginosa. J Vis Exp. (84), e50894(2014).
- Kaplan, R. S., Pedersen, P. L. Determination of Microgram Quantities of Protein in the Presence of Milligram Levels of Lipid with Amido Black B-10. Analytical Biochemistry. 150 (1), 97-104 (1985).
- Rumbley, J., et al. One-step purification of histidine-tagged cytochrome bo3 from Escherichia coli and demonstration that associated quinone is not required for the structural integrity of the oxidase. Biochim Biophys Acta. 1340 (1), 131-142 (1997).
- Taussky, H. H., Shorr, E. A Microcolorimetric Method for the Determination of Inorganic Phosphorus. Journal of Biological Chemistry. 202 (2), 675-685 (1953).
- Galkin, M. A., Ishmukhametov, R. R., Vik, S. B. A functionally inactive, cold-stabilized form of the Escherichia coli F1Fo ATP synthase. Biochimica Et Biophysica Acta-Bioenergetics. 1757 (3), 206-214 (2006).
- Ishmukhametov, R. R., Galkin, M. A., Vik, S. B. Ultrafast purification and reconstitution of His-tagged cysteine-less Escherichia coli F1Fo ATP synthase. Biochim Biophys Acta. 1706 (1-2), 110-116 (2005).
- Wiedenmann, A., Dimroth, P., von Ballmoos, C. Deltapsi and DeltapH are equivalent driving forces for proton transport through isolated F(0) complexes of ATP synthases. Biochim Biophys Acta. 1777 (10), 1301-1310 (2008).
- Morein, S., et al. Wild-type Escherichia coli cells regulate the membrane lipid composition in a "window" between gel and non-lamellar structures. J Biol Chem. 271 (12), 6801-6809 (1996).
- Zinser, E., et al. Phospholipid synthesis and lipid composition of subcellular membranes in the unicellular eukaryote Saccharomyces cerevisiae. J Bacteriol. 173 (6), 2026-2034 (1991).
- Daum, G., Vance, J. E. Import of lipids into mitochondria. Prog Lipid Res. 36 (2-3), 103-130 (1997).
- Pantazatos, D. P., MacDonald, R. C. Directly observed membrane fusion between oppositely charged phospholipid bilayers. J Membr Biol. 170 (1), 27-38 (1999).
- Pantazatos, D. P., Pantazatos, S. P., MacDonald, R. C. Bilayer mixing, fusion, and lysis following the interaction of populations of cationic and anionic phospholipid bilayer vesicles. J Membr Biol. 194 (2), 129-139 (2003).
- Sunami, T., et al. Detection of association and fusion of giant vesicles using a fluorescence-activated cell sorter. Langmuir. 26 (19), 15098-15103 (2010).
- Memoli, A., et al. Effects of surfactants on the spectral behaviour of calcein (II): a method of evaluation. J Pharm Biomed Anal. 19 (3-4), 627-632 (1999).
Herprints en machtigingen
