Hier beschrijven we een protocol om te verkrijgen van de lipide druppel index (LD index) om te bestuderen van de dynamiek van triacylglycerolen in cellen gekweekt in high-throughput experimenten. De LD index bepaling is een gemakkelijke en betrouwbare methode die gebruikmaakt van BODIPY 493/503. Deze test hoeft niet dispendious lipide extractie of microscopie analyse.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Lipide Index bepaling door vloeibare fluorescentie herstel in de schimmel pathogeen Ustilago Maydis
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Het artikel toont hoe de uitvoering van de LD-index bepaling, die is een gevoelige microplate-test om te bepalen van de accumulatie van triacylglycerolen (TAGs) in lipide druppels (LDs). LD index wordt verkregen zonder lipide extractie. Het staat voor het meten van de LDs inhoud in high-throughput experimenten onder verschillende omstandigheden zoals de groei in de rijke of stikstof uitgeput media. Hoewel de methode werd voor het eerst tot de studie van het metabolisme van de druppel lipide in Saccharomyces cerevisiae, het met succes op de lange Ustilago maydis toegepast werdbeschreven. Interessant, en omdat LDs organellen fylogenetisch bewaard in eukaryote cellen zijn, de methode kan worden toegepast op een groot aantal cellen, uit gist aan zoogdiercellen. De LD-index is gebaseerd op de kwantitatieve analyse van vloeibare fluorescentie, herstel (LFR) van de BODIPY 493/503 blussen omstandigheden, door de toevoeging van cellen vast met formaldehyde. Kalium jodium wordt gebruikt als een fluorescentie-quencher. De verhouding tussen de fluorescentie en de optische dichtheid hellingen heet LD index. Hellingen zijn berekend op basis van de rechte lijnen verkregen wanneer BODIPY fluorescentie en optische dichtheid bij 600 nm (OD600) wordt afgezet tegen de toevoeging van de steekproef. Optimale kwaliteit komt tot uiting door correlatie coëfficiënten gelijk of boven 0.9 (r ≥ 0.9). Meerdere monsters kunnen gelijktijdig worden gelezen als het kan worden uitgevoerd in een microplate. Aangezien BODIPY 493/503 een lipofiele fluorescerende kleurstof die partities in de lipide druppels is, kan het worden gebruikt in vele soorten cellen die zich ophopen van LDs.
Inleiding
Lipide druppels (LDs) zijn alomtegenwoordige intracellulaire vet organen bestaat uit een kern in neutrale lipiden, voornamelijk TAGs en plantensterolen esters (SE). De kern is omgeven door een monolayer van fosfolipiden die met eiwitten zoals perilipin en enzymen die betrokken zijn bij de synthese van neutrale lipiden, zoals de diacylglycerol acyl-transferase, acetyl-CoA carboxylase en acyl-CoA synthase1 samenwerkt. Als gevolg van het dynamische gedrag bevat de fosfolipide enkelgelaagde ook triacylglycerol lipasen die gehydrolyseerd TAGs en SE2. Afhankelijk van het celtype en organisme, opgeslagen neutrale lipiden kunnen worden gebruikt voor het genereren van energie, of synthetiseren fosfolipiden en signalering moleculen. In gist en andere schimmels, de inhoud van LDs verandert in reactie op variaties in de stikstof/koolstofverhouding in de cultuur-media, die aangeeft dat de beschikbaarheid van de verminderde stikstof de sleutel wellicht tot het verhogen van de neutrale lipide productie3,4 ,5. De productie van grote hoeveelheden van TAGs in gist heeft een potentiële gebruik in biotechnologie als bron van biobrandstoffen en in de voedingsindustrie. Sommige opgeslagen lipiden bevatten hoge verhoudingen van meervoudig onverzadigde vetzuren zoals omega 3 en omega 6, met voeding en dieet belang 6,7,8,9,10 , 11. LDs van zoogdiercellen, met inbegrip van menselijke cellen, ook TAGs en cholesterol esters daarvan bevatten. De fosfolipide enkelgelaagde interageert met de homologe zoogdieren van de eiwitten in de gist LDs beschreven, en een extra eiwit, perilipin, die afwezig is in S. cerevisiae12. Een voorgestelde rol voor de fosfolipide enkelgelaagde en de bijbehorende eiwitten is te stabiliseren van de LDS-structuur en de interactie van LDs met organellen als mitochondriën, endoplasmatisch reticulum en peroxisomen vacuolen, voornamelijk voor lipide uitwisseling 13,14. Interessant is dat bij de mens lijken LDs te worden betrokken bij aandoeningen zoals diabetes type 2, atherosclerose, steatohepatitis en coronaire hart-en vaatziekten, waarin sprake is van een toename van hun nummer 15,16,17 . Sommige soorten virussen LDs gebruiken als platformen te monteren de virionen 2,18,19.
Als gevolg van de gevolgen van de LDs in menselijke pathologieën en hun potentiële biotechnologische gebruik is de exacte experimentele bepaling van de formatie van de LDs een belangrijke taak. Dit artikel beschrijft een betrouwbare test gebaseerd op het herstel van de fluorescentie (LFR) van BODIPY 493/503 (4, 4-difluoro-1, 3, 5, 7, 8-pentamethyl-4-bora-3a, 4a-diaza-s-indacene), om een relatieve waarde van de inhoud van neutrale lipiden in cellen. Met deze test is het mogelijk om te volgen de dynamiek van de accumulatie van neutrale lipiden in schimmels zoals U. maydis en S. cerevisiae, en ook in zoogdiercellen, zonder de noodzaak van lipide extractie 20. De methode werd toegepast voor de eerste keer in S. cerevisiae te identificeren van het eiwit phosphatases en kinases betrokken bij de regulering van lipide metabolisme. Dit was mogelijk zonder lipide extractie of eiwit zuivering21,22. LFR is ook gebruikt om de dynamiek van de LDS-formatie in peritoneale macrofagen23. Het gebruik van BODIPY 493/503 heeft enkele voordelen ten opzichte van andere neutrale lipide kleurstoffen Nile rood. BODIPY 493/503 is zeer specifiek voor neutrale lipiden en heeft een smalle emissiespectrum, vergemakkelijken de simultane detectie van de signalen van kleurstoffen zoals rode fluorescerende eiwit of Mito-tracker, wanneer de monsters worden geanalyseerd door confocale microscopie. Helaas, BODIPY 493/503 is gevoelig voor photobleaching, maar dit proces kan worden vermeden door het gebruik van een antiquenching-reagens tijdens blootstelling aan licht24.
Voor het uitvoeren van de bepaling van de LFR in gistcellen, ze zijn gekweekt onder de gewenste voeding voorwaarden en aliquots op verschillende tijdstippen zijn ingetrokken. Vervolgens worden cellen bevestigd met formaldehyde, die de integriteit van LDs behoudt maandenlang wanneer cellen worden opgeslagen bij 4 ° C. Andere technieken van fixatie moeten worden vermeden, vooral die met behulp van methanol of koude aceton, aangezien zij tot de afbraak van de LDs binnen de cellen24 leiden. Voor het meten van de LD-index, zijn formaldehyde-vaste cellen opgehangen in water te verkrijgen van een bepaalde concentratie. Vervolgens worden deze toegevoegd aan een oplossing met de fluorophore BODIPY 493/503 uitgeblust door KI, en wanneer de fluorophore de cel invoert en aan de LDs koppelt, er is een herstel van de fluorescentie. Gelijktijdige op de fluorescentie-meting (485 nm/510 nm), de concentratie van cellen wordt gekwantificeerd door het meten van de extinctie op 600 nm. Elk monster wordt vier keer gelezen door latere 5 µL aliquots van een formaldehyde-vaste celsuspensie goed aan hetzelfde toe te voegen. Spaties van fluorescentie en absorptie zijn vóór de toevoeging van cellen verkregen. De kwaliteit van de fluorescentie en de extinctie gegevens worden geëvalueerd aan de hand van de lineariteit van de metingen: als r < 0.9, gegevens worden verwijderd. De r-waarde is belangrijk omdat in principe de intensiteit van de fluorescentie een lineaire respons aan toenemende concentraties van de cel produceren moet. Als de cel concentratie te hoog, is de lineariteit verloren. De assay LFR biedt een snelle, eenvoudige en goedkope methode om te selecteren van het gewenste fenotype LD in high-throughput experimenten. Na het selecteren van de gewenste voorwaarden, kan de inhoud van de LD van afzonderlijke cellen worden bestudeerd door confocale microscopie, met behulp van dezelfde formaldehyde-vaste cellen gekleurd met BODIPY, een afbeelding van de LDs in de cel. Hun TAGs en SE inhoud kunnen nu verder worden geanalyseerd door Dunnelaagchromatografie.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
1. bereiding van Buffers en oplossingen
- Ter voorbereiding van 1 L fosfaat gebufferde zoutoplossing (PBS, pH 7), Los 8 g NaCl, 0.2 g van KCl, 1,44 g nb2HPO4, 0,24 g van KH2PO4 in 800 mL distillated water. Breng de pH op 7.0 met HCl, en voeg vervolgens water voor een eindvolume van 1 L. PBS kan worden gemaakt als een 10 x stockoplossing en bewaard bij kamertemperatuur.
- Ter voorbereiding van 10 mL van de vaststelling van de oplossing, voeg 1 mL van 37% formaldehyde 9 ml PBS te bereiken een eindconcentratie van 3,7%. Bereid deze oplossing vlak voor gebruik.
Let op: Gebruik handschoenen om de formaldehyde-oplossing. - Ter voorbereiding van het blussen-oplossing (500 mM), Los 8.3 g KI in 100 mL gedestilleerd water. Deze oplossing vóór gebruik voor te bereiden en op te slaan bij kamertemperatuur.
- Los 10 mg van BODIPY 493/503 in 3,8 mL dimethylsulfoxide (DMSO) ter voorbereiding BODIPY 10 mM stockoplossing. 100 µL aliquots houden in het donker bij 70 ° C.
- Voeg 1 µL van 10 mM BODIPY 493/503 tot 2 mL 500 mM blussen oplossing ter voorbereiding BODIPY 5 µM-blussen oplossing. Voor de LFR assay is een eindconcentratie van 5 µM van BODIPY vereist.
- Ter voorbereiding van de minerale oplossing, Voeg 0.06 g H3BO3, 0,14 MnCl2-4 H2O, 0.4 g van ZnCl2, 0,04 g Na,2g MoO4-2 H2O, 0,1 g van FeCl3-6 H2O en 0,4 g CuSO 4-5 H2O tot 1 L gedestilleerd water.
- Voeg ter voorbereiding van de zoutoplossing, 16 g KH2PO4, 4 g Na,2dus4, 8 g van KCl, 2 g van MgSO4, 1 g CaCl2en 8 mL van minerale oplossing tot 1 liter gedistilleerd water.
- Ter voorbereiding van de minimaal medium zonder een stikstofbron voor U. maydis FB2 (a2b2), 10 g glucose en 62,5 mL zoutoplossing toevoegen aan 1 liter gedistilleerd water, volgens Holliday, et al.. 31. Breng de pH op 7.0 afzien van 100 mL van de media in maatkolven van 250 mL en ze te steriliseren. Autoclaaf gedurende 20 minuten op 15 psi (1.05 kg/cm2) op vloeibare cyclus of filter steriliseren.
- Ter voorbereiding van het Gist-pepton dextrose medium (YPD), voeg 5 g gist extract, 2,5 g pepton, en 5 g glucose aan 1 liter gedistilleerd water. Afzien van 100 mL van de oplossing in maatkolven van 250 mL en ze te steriliseren. Autoclaaf gedurende 20 minuten op 15 psi (1.05 kg/cm2) op vloeibare cyclus of filter steriliseren.
2. cultuur voorwaarde en fixatie van de cel
Opmerking: Behoud van de structuur van de LDs door de cellen zo spoedig mogelijk op te lossen. De fixatie kan worden gedaan in microcentrifuge buizen. Vaste cellen kunnen bij 4 ° C gedurende maximaal één maand worden bewaard als uitdroging wordt vermeden waardoor een dun laagje water.
- Groeien U. maydis cellen onder de kweekomstandigheden relevant voor de studie. De cultuur beginnen met een eerste OD600 van 0,05 (1,15 × 10⁻⁶ cellen / mL). Incubeer de cellen bij 28 ° C, 180 rpm gedurende 24 uur. Een OD600 1 correspondeert met 2.3 × 10⁷ cellen / mL.
- Op de geselecteerde tijd, trekken een aliquoot deel van de cellen. Trekken voor U. maydis, 5 mL elke 2 h tijdens de eerste 8 h. Na 8 uur van groei zijn hoeveelheden van 2 mL voldoende.
- Meten van de extinctie op 600 nm van elk aliquot.
- Centrifugeer de celsuspensie bij 14.000 x g gedurende 1 minuut bij 4 ° C met behulp van een tafelblad centrifuge. Verwijder het supernatant.
- Opschorten van de pellet van de cellen in 1 mL PBS-formaldehyde 3,7% buffer. Incubeer de cellen gedurende 15 minuten bij kamertemperatuur.
- Na de incubatie, centrifugeer de celsuspensie bij 14.000 x g gedurende 1 minuut bij 4 ° C. Verwijder het supernatant.
- Wassen van de cellen pellet tweemaal met een vergelijkbare hoeveelheid gedestilleerd water (1 mL). Centrifugeer de celsuspensie bij 14.000 x g gedurende 1 minuut bij 4 ° C. Verwijder het supernatant na elke stap wassen.
- Aanpassen van de cel pellet op 5 OD600 (1.15 x 10⁸ cellen / mL) met gedestilleerd water (vergelijking 1).
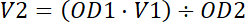 Vergelijking 1.
- Houd het monster bij 4 ° C tot en met het gebruik ervan.
3. vloeibare Fluorescence Recovery Assay (LFR)
- Zet de spectrofotometer en de Skanlt-software niet openen. Klik op Nieuw sessieen kies START en vervolgens Varioskan Lux. Selecteer PROTOCOL van de sessie-boom, voert u de instellingen voor de fluorescentie golflengten (excitatie 485 nm/emissie 510 nm; optische dichtheid 600 nm) en kiest u automatische fotomultiplicator winst. Voor de bandbreedte van de excitatie, selecteer 12 nm. In de optica, Selecteer boven (excitatie van het monster is vanaf de bovenkant van de put).
- Voer een zachte en voortdurende agitatie (300 rpm). Selecteer Plaat RUN OUTen Onderbreken totdat de actie van de gebruiker (keer gebruikt voor de toevoeging van het monster aan de putjes). Herhaal het protocol vijf keer. Klik op Opslaan en schrijf een naam voor de sessie op het Veld naam de sessie. Het protocol is nu klaar voor de analyses van de monsters.
- Voeg toe 200 µL van het BODIPY 5 µM - uitgeblust oplossing aan elk putje van een 96 goed zwart-clear bodemplaat.
- Plaats de plaat binnen de spectrofotometer kamer en incubeer 5 min bij 30 ° C. Vanaf dit punt, de plaat boven licht zoveel mogelijk te beschermen.
- Klik op de knop START en lees de fluorescentie (excitatie 485/emissie 510) en de OD600 overeenkomt met de blanks.
- Voeg 5 µL van de formaldehyde-vaste celsuspensie de putjes tijdens de pauze tijd. Meng de monsters zorgvuldig met de pipet. Zet de plaat binnen de spectrofotometer en klik op Doorgaan. De monsters worden vervolgens verwerkt volgens het protocol ontworpen boven.
- Herhaal drie opeenvolgende toevoegingen van 5 µL celsuspensie. Zorg ervoor dat de cellen niet doen neerslaan. (Figuur 1).
4. de berekeningen van de LD-Index
- Voor elk monster in de microplate, uitzetten van fluorescentie en extinctie tegen het volume van elke opeenvolgende toevoeging (5 punten met inbegrip van de blanco) in een grafiek. In deze studie werd door Microsoft Excel software te gebruiken voor de berekeningen. De gegevens uitzetten, voert u het volume, fluorescentie en absorptie-gegevens in de eerste, tweede en derde kolom van het gegevensblad, respectievelijk. Selecteer vervolgens de hele gegevens met de cursor, klikt u op invoegen en selecteer (SPREIDINGS).
- Selecteert u de punten voor elke regel in de grafiek en voeg de respectieve TRENDLIJN met het selectievakje Vergelijking weergeven is geselecteerd. Noteer de waarden van de hellingen van de twee rechte lijnen, volgens vergelijking 2:
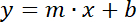 Vergelijking 2
Waarin y = fluorescentie- of optische dichtheid, x = hoeveelheid monster (0, 5, 10, 15, 20 µL), m = helling van de fluorescentie of optische dichtheid lijn, en b = y-snijpunt. - Verdeel de helling van de fluorescentie-lijn door de helling van de lijn van de optische dichtheid te krijgen van de LD-index, vergelijking 3.
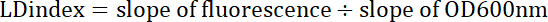 Vergelijking 3
De LD-index correspondeert met het quotiënt van fluorescentie en optische dichtheid hellingen.
5. data kwaliteitsanalyse
- Berekent de correlatiecoëfficiënt van elke rechte lijn: Klik op de Functie WIZARD (fx) en kies correlatie. Als r < 0.9, negeren van de gegevens en herhaal de lezingen. Als r ≥ 0.9, lezingen betrouwbaar zijn.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
LFR, met BODIPY 493/503 als de fluorescente sonde is een betrouwbare en eenvoudige methode om te studeren de dynamische accumulatie van LDs in U. maydis, ongeacht de voorwaarden voor groei. Toen cellen werden gekweekt in YPD-medium, was er een toename van de LD-index tijdens de exponentiële fase, gevolgd door een daling in de stationaire fase (figuur 2A). Daarentegen in de cellen onder stikstof honger geteeld, was er een gestage toename van de LD-ind...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
LFR is een nieuwe methode die werd toegepast voor de eerste keer om te studeren het lipide metabolisme in S. cerevisiae en later het werd met succes geïmplementeerd in U. maydis20,21. Hoewel de LD-index geen absolute waarde van de labels in cellen opgebouwde geeft, het biedt een snelle idee van het vetgehalte van cellen en de interpretatie van de gegevens is eenvoudig wanneer LD index van twee of meer experimentele omstandigheden worden vergelek...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te openbaarmaking
Dankbetuigingen
Dit werk werd gesteund door subsidies Instituto Politécnico Nacional-Secretaria de Investigación y Posgrado (IPN-SIP-20170864), Programa de Apoyo een Proyectos de Investigación e Innovación Tecnológica (PAPIIT IN222117)-(van de Universidad Nacional Autónoma de México UNAM), en Consejo Nacional de Ciencia y Tecnología (CONACyT 254904-JPP en 256520-GGS). Fundação de Amparo een Pesquisa Rio de Janeiro (FAPERJ-v doen Nosso Estado: E 26/103.353/2011). We dankzij QFB. Oscar Iván Club Luqueño Bocardo voor het schematisch overzicht. Wij bedanken Dr. Miguel Tapia Rodríguez voor de waardevolle hulp bij de confocal microscopie van LDs. Wij willen Dr. Bruno Bozaquel Morais bedanken voor zijn pionierswerk in de ontwikkeling van de techniek in S. cerevisiae , dat wij voor U. maydisaangepast.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Spectrophotometer | Varioskan Lux multimode microplate reade | D5879 | Filter 493/503 of monochromator detector |
| Plate costar | Corning Inc. | 3615 | 96 well zwarte wand/heldere bodem |
| Plate costar | Corning Inc | 3598 | 96 well cell cultuur plate costar |
| BODIPY 493/503 | Invitrogen/ Thermofisher | D3922 | 4,4-difluoro-1,3,5,7,8-pentamethyl-4-bora-3a,4a-diaza-s-indacene |
| Formaldehyde oplossing | Sigma Aldrich | 252549 | ACS reagent, 37 wt % in H2O, bevat 10-15% methanol om polymerisatie te voorkomen |
| Kaliumjodide | Sigma Aldrich | 60399 | BioUltra, ≥ 99.5% (AT) |
| FB2 Ustilago maydis | ATCC | 201384 | Basidiomycete-Gist |
| Natriumchloride | Sigma Aldrich | 746398 | ACS reagent, anorganische zout |
| Monokaliumfosfaat | Sigma Aldrich | P0662 | ACS reagent |
| Select Gist Extract | Sigma Aldrich | Y100 | Mengsel van aminozuren, peptiden, wateroplosbare vitaminen en koolhydraten voor cultuurmedia |
| N-Z case plus | Sigma aldrich | N4642 | Caseïne enzymatisch hydrolysaat uit rundermelk |
| Glucose | Sigma Aldrich | G-8270 | D (+) glucose |
| Scheidelfles | Pirex | CLS4450250-6EA | Boroxicaatglas |
| Schakelaar | SEV México | INO650V-7 | Orbitale schakelaar |
| Centrifuge tafel | Eppendorf | 5415C | Centrifuge |
| Microbuizen | Sigma Aldrich | Z606340 | Eppendorf |
| Pipet tips | Axygen scientific | T-200-Y | Universele Pipet Tips met afgeschuinde punt, 200 microliter, niet steriel |
| mLine pipet | Biohit | 725130 | 8 kanalen, volumebereik 5-100 uL |
Referenties
- Guo, Y., Cordes, K. R., Farese, R. V., Walther, T. C. Lipid droplets at a glance. Journal of Cell Science. 122 (6), 749-752 (2009).
- Welte, M. A. Expanding roles for lipid droplets. Current Biology. 25 (11), R470-R481 (2015).
- Sestric, R., Munch, G., Cicek, N., Sparling, R., Levin, D. B. Growth and neutral lipid synthesis by Yarrowia lipolytica on various carbon substrates under nutrient-sufficient and nutrient-limited conditions. Bioresource Technology. 164, 41-46 (2014).
- Raimondi, S., et al. Getting lipids from glycerol: new perspectives on biotechnological exploitation of Candida freyschussii. Microbial Cell Factories. 13, 83(2014).
- Cescut, J., Fillaudeau, L., Molina-Jouve, C., Uribelarrea, J. L. Carbon accumulation in Rhodotorula glutinis induced by nitrogen limitation. Biotechnology for Biofuels. 7, 164(2014).
- Galafassi, S., et al. Lipid production for second generation biodiesel by the oleaginous yeast Rhodotorula graminis. Bioresource Technology. 111, 398-403 (2012).
- Kot, A. M., Blazejak, S., Kurcz, A., Gientka, I., Kieliszek, M. Rhodotorula glutinis-potential source of lipids, carotenoids, and enzymes for use in industries. Applied Microbiology and Biotechnology. 100 (14), 6103-6117 (2016).
- Rakicka, M., Lazar, Z., Dulermo, T., Fickers, P., Nicaud, J. M. Lipid production by the oleaginous yeast Yarrowia lipolytica using industrial by-products under different culture conditions. Biotechnology for Biofuels. 8, (2015).
- Zhu, Z. W., et al. Dynamics of the Lipid Droplet Proteome of the Oleaginous Yeast Rhodosporidium toruloides. Eukaryotic Cell. 14 (3), 252-264 (2015).
- Kolouchova, I., Mat'atkova, O., Sigler, K., Masak, J., Rezanka, T. Production of Palmitoleic and Linoleic Acid in Oleaginous and Nonoleaginous Yeast Biomass. International Journal of Analytical Chemistry. , (2016).
- Radulovic, M., et al. The emergence of lipid droplets in yeast: current status and experimental approaches. Current Genetics. 59 (4), 231-242 (2013).
- Takahashi, Y., et al. Perilipin-Mediated Lipid Droplet Formation in Adipocytes Promotes Sterol Regulatory Element-Binding Protein-1 Processing and Triacylglyceride Accumulation. Plos One. 8 (5), e64605(2013).
- Thiam, A. R., Farese Jr, R. V., Walther, T. C. The biophysics and cell biology of lipid droplets. Nature Reviews Molecular Cell Biology. 14 (12), 775-786 (2013).
- Penno, A., Hackenbroich, G., Thiele, C. Phospholipids and lipid droplets. Biochimica et Biophysica Acta. 1831 (3), 589-594 (2013).
- Ageitos, J. M., Vallejo, J. A., Veiga-Crespo, P., Villa, T. G. Oily yeasts as oleaginous cell factories. Applied Microbiology and Biotechnology. 90 (4), 1219-1227 (2011).
- Athenstaedt, K., Daum, G. The life cycle of neutral lipids: synthesis, storage and degradation. Cellular and Molecular Life Sciences. 63 (12), 1355-1369 (2006).
- Marshall, L. L., Stimpson, S. E., Hyland, R., Coorssen, J. R., Myers, S. J. Increased lipid droplet accumulation associated with a peripheral sensory neuropathy. Journal of Biological Chemistry. 7 (2), 67-76 (2014).
- Filipe, A., McLauchlan, J. Hepatitis C virus and lipid droplets: finding a niche. Trends in Molecular Medicine. 21 (1), 34-42 (2015).
- Greenberg, A. S., et al. The role of lipid droplets in metabolic disease in rodents and humans. Journal of Clinical Investigation. 121 (6), 2102-2110 (2011).
- Aguilar, L. R., et al. Lipid droplets accumulation and other biochemical changes induced in the fungal pathogen Ustilago maydis under nitrogen-starvation. Archives of Microbiology. , (2017).
- Bozaquel-Morais, B. L., Madeira, J. B., Maya-Monteiro, C. M., Masuda, C. A., Montero-Lomeli, M. A new fluorescence-based method identifies protein phosphatases regulating lipid droplet metabolism. PLoS One. 5 (10), e13692(2010).
- Madeira, J. B., et al. TORC1 Inhibition Induces Lipid Droplet Replenishment in Yeast. Molecular and Cellular Biology. 35 (4), 737-746 (2015).
- Maya-Monteiro, C. M., et al. Leptin induces macrophage lipid body formation by a phosphatidylinositol 3-kinase- and mammalian target of rapamycin-dependent mechanism. Journal of Biological Chemistry. 283 (4), 2203-2210 (2008).
- Listenberger, L. L., Brown, D. A. Current Protocols in Cell Biology. , John Wiley & Sons, Inc. (2001).
- Jump, D. B., Torres-Gonzalez, M., Olson, L. K. Soraphen A, an inhibitor of acetyl CoA carboxylase activity, interferes with fatty acid elongation. Biochemical Pharmacology. 81 (5), 649-660 (2011).
- Hobro, A. J., Smith, N. I. An evaluation of fixation methods: Spatial and compositional cellular changes observed by Raman imaging. Vibrational Spectroscopy. 91, 31-45 (2017).
- Chen, Y. T., Wan, L., Zhang, D. P., Bian, Y. Z., Jiang, J. Z. Modulation of the spectroscopic property of Bodipy derivates through tuning the molecular configuration. Photochemical & Photobiological Sciences. 10 (6), 1030-1038 (2011).
- Pagac, M., et al. SEIPIN Regulates Lipid Droplet Expansion and Adipocyte Development by Modulating the Activity of Glycerol-3-phosphate Acyltransferase. Cell Reports. 17 (6), 1546-1559 (2016).
- Qiu, B., Simon, M. C. BODIPY 493/503 Staining of Neutral Lipid Droplets for Microscopy and Quantification by Flow Cytometry. Bio-protocol. 6 (17), (2016).
- Rumin, J., et al. The use of fluorescent Nile red and BODIPY for lipid measurement in microalgae. Biotechnology for Biofuels. 8, 42(2015).
- Holliday, R. Ustilago maydis. Handbook of genetics. King, R. , Plenum. New York. 575-595 (1974).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
