Dit protocol wordt beschreven methoden om mondeling bloot en de fruitvlieg Drosophila melanogaster met bacteriële pathogenen infecteren, en voor het meten van het aantal infectieuze bacteriën schuur na infectie van de darm. Verder beschrijven we het effect van immuun mutanten op vliegen overleving na mondelinge bacteriële infectie.
Methodenartikel
Mondelinge bacteriële infectie en Shedding bij Drosophila melanogaster
In dit artikel
Samenvatting
Samenvatting
De fruitvlieg Drosophila melanogaster is één van de beste modelsystemen van het ontwikkelde van infectie en aangeboren immuniteit. Terwijl het meeste werk is gericht op systemische infecties, is er een recente toename van belang in de mechanismen van gut immunocompetence ziekteverwekkers, waarvoor methoden om mondeling infecteren vliegen. Hier presenteren we een protocol om mondeling individuele vliegt naar een opportunistische bacteriële pathogenen (Pseudomonas aeruginosa) en een natuurlijke bacteriële ziekteverwekker van D. melanogaster (Pseudomonas entomophila) bloot te stellen. Het doel van dit protocol is bedoeld als een krachtige methode om mannelijke en vrouwelijke vliegt naar deze ziekteverwekkers bloot te stellen. Wij bieden representatieve resultaten tonen overleving fenotypen, microbe ladingen en bacteriële vergieten, die relevant is voor de studie van heterogeniteit in pathogen transmissie. Tot slot bevestigen wij dat Dcy mutanten (zonder de beschermende peritrophic matrix in de darm epitheel) en geniet van mutanten (zonder een functionele immuundeficiëntie (IMD) traject), Toon van verhoogde gevoeligheid voor bacteriële mondelinge infectie. Dit protocol beschrijft daarom een robuuste methode om te vliegen met behulp van de orale toediening van infectie, die kan worden uitgebreid tot de studie van een diverse genetische en omgevingsfactoren bronnen van variatie in resultaten van darm infectie en bacteriële transmissie infecteren.
Inleiding
De fruitvlieg (ook bekend als de azijn vliegen), D. melanogaster, is uitvoerig gebruikt als een modelorganisme voor infectie en immuniteit tegen een aantal ziekteverwekkers1,2. Dit werk heeft aangeboden fundamentele inzichten in de fysiologische gevolgen van infectie en was ook baanbrekende in het ontrafelen van de moleculaire trajecten die ten grondslag liggen aan de immuunrespons van de gastheer tegen parasitoïde, bacteriële, virale en fungale infecties. Deze kennis is niet alleen handig om te begrijpen van de ingeboren immune reactie van insecten en andere ongewervelden, maar omdat veel van de immuun mechanismen zijn evolutionair bewaard tussen insecten en zoogdieren, Drosophila heeft ook aangespoord de ontdekking van grote immuun mechanismen in zoogdieren, waaronder ook mensen3.
Het meeste werk op Drosophila infectie en immuniteit heeft gericht op systemische infecties, met behulp van inoculatie methoden die ziekteverwekkers rechtstreeks in het hoofdgedeelte van het insect door prikken of injectie4,5,6 leveren. Het voordeel van deze methoden bij het toestaan van de levering van een gecontroleerde infectieuze dosis is duidelijk en wordt ondersteund door een grote hoeveelheid werk op systemische infecties. Echter, vele natuurlijk voorkomende bacteriële pathogenen van D. melanogaster worden verworven via voeding op ontbindend organisch materiaal waar gut immunocompetence een belangrijke rol in host defensie7,8,, speelt 9 , 10 , 11 , 12 , 13 , 14 , 15. experimenten die gebruikmaken van systemische infecties die afweer te omzeilen, en daarom geven een heel ander beeld van hoe insecten verdedigingen tegen natuurlijke ziekteverwekkers mount. Dit is met name relevant als het doel van het werk is voor het testen van de voorspellingen over de ecologie en evolutie van infectie, waar het gebruik van natuurlijke ziekteverwekkers en routes van infectie is belangrijk16,17. Recent werk heeft duidelijk gemaakt hoe de route die ziekteverwekkers aanzienlijk beïnvloedt ziekte uitkomst18,19, lokt verschillende immuun trajecten20,21, kan het vaststellen van het beschermende effect van erfde endosymbionten16, en kan zelfs spelen een belangrijke rol in de evolutie van de host verdedigingen17.
Een andere reden om mondelinge routes van infectie is dat het mogelijk het onderzoek van de variatie in pathogen transmissie maakt door het meten van bacteriële vergieten tijdens fecale excretie na orale infectie22,23, 24. begrip van de bronnen van heterogeniteit van de gastheer in de transmissie van de ziekte is uitdagend in natuurlijke populaties25,26, maar meetelementen van transmissie, zoals pathogen vergieten, onder gecontroleerde laboratorium voorwaarden biedt een nuttige alternatieve benadering27. Door voeding vliegen bacteriën en meten bacteriële vergieten onder een verscheidenheid van genetische en omgevingsfactoren contexten in gecontroleerde experimentele omstandigheden, is het mogelijk om bronnen van verschil in lichtdoorlating tussen hosts te identificeren.
Hier beschrijven we een protocol voor het mondeling D. melanogaster met bacteriële pathogenen infecteren, en voor de kwantificering van de bacteriële groei en vergieten dat volgt (Figuur 1). We beschrijven dit protocol op twee Pseudomonas bacteriën: een virulente stam van de opportunistische verwekker P. aeruginosa (PA14), en een minder virulente stam van de natuurlijke ziekteverwekker P. entomophilavliegen. Pseudomonads zijn gemeenschappelijk gram-negatieve bacteriën met een brede gastheer bereik, insecten, nematoden, planten en gewervelde dieren, infecteren en zijn te vinden in de meeste omgevingen4,6. Darmen infectie van Drosophila door P. aeruginosa en P. entomophila resulteert in pathologie aan intestinaal epitheel12,13,14,15, 28. Terwijl we ons op deze twee bacteriële pathogenen richten, kunnen de hier beschreven methoden in principe worden toegepast op eventuele bacteriële ziekteverwekker van belang met kleine wijzigingen. Na orale blootstelling, wij meten na infectie overleven, en meten van de microbe lading binnen individuele vliegen en de levensvatbare microben vergoten in het milieu, uitgedrukt in kolonievormende eenheden (CFUs). Ten slotte, omdat gut immunocompetence uit een combinatie van epitheliale barrière en humorale reacties voortvloeit, meten wij ook het voortbestaan van vliegen lijnen waar deze verdediging worden verstoord. Specifiek, Drosocrystallin (Dcy) mutanten eerder gebleken om meer vatbaar voor mondelinge bacteriële infectie als gevolg van een verarmd peritrophic matrix in de darm29. Wij meten ook overleven in een Relish (Rel)-mutant die van de productie van antimicrobiële peptiden tegen gram-negatieve bacteriën via de IMD traject30wordt belemmerd.
Protocol
1. handhaven van vliegen
- Handhaven van vliegen in 23 mL kunststof flesjes met 7 mL van versgemaakte Lewis medium (aangepast ten opzichte van de referentie31; 1 L triple H2O 6.1 g agar, 93,6 g bruine suiker, 68 g maïs, 18,7 g instant gist, 15 mL Tegosept anti-schimmel agent gedistilleerd) in incubators bij 25 ± 1 ° C, in een 12 h:12 cyclus h licht: donker met ~ 60% vochtigheid. De flesjes met niet-absorberend katoen, wol steek.
- Na elke 14 dagen, overbrengen in 20-30 volwassenen een nieuwe voedsel injectieflacon, met instant, droge gist toegevoegd aan het oppervlak, voor 2-3 dagen toe leggen van eieren voorkomen. Na deze periode zorgen ervoor dat de eieren zichtbaar op het oppervlak van het voedsel. Volwassen vliegen verwijderen.
Opmerking: Dit houdt vliegen in de flesjes als één generatie, leeftijd-matched populaties. - Laat de eieren om te ontwikkelen.
Opmerking: Bij 25 ° C, volwassen vliegen beginnen te eclose van poppen op dag 11 en 12 – 14 dagen blijven.
2. voorbereiding van de experimentele vliegen
- Verzamelen van de eieren van de bovenliggende generatie in een bevolking/embryo collectie kooi op een 75 mL apple-agarplaat (1 L triple gedestilleerd H2O, 30 g agar, 33 g sacharose, 330 mL appelsap, anti-schimmel agent van het Tegosept van 7 mL) met een gist plakken spread (combinatie droge gist met water om een pindakaas-achtige consistentie). Water gedrenkte watten aan de kooi om vocht toevoegen.
Opmerking: Om te voorkomen dat de verstorende effecten veroorzaakt door verschillen in dichtheid van larvale fokken, het is belangrijk dat de experimentele vliegen in verschillende flesjes in soortgelijke dichtheden worden gefokt. De bovenstaande stap wordt uitgevoerd om te voorkomen dat de verstorende effecten. - Incubeer gedurende 24 h bij 25 ° C in een 12 h:12 h licht: donker cyclus ei-leggen is opgetreden. Als er te weinig eieren na 24 h, zorgen voor een langere periode van gewenning. Apple-agar platen vervangen en laat leggen van eieren moet worden uitgevoerd voor een verdere 24 h.
- Neem ei-beladen apple-agar platen uit de kooi van de bevolking. Verwijder de resterende gist plakken en eventuele dode vliegen uit de agar oppervlak.
- Onderdompelen van de agar in 20 mL voor 1 x met fosfaat gebufferde zoutoplossing (PBS) en maak de eieren van de apple-agar met een fijne penseel zachtjes los. Terwijl onderbroken in PBS, de eieren overbrengen in een tube van 50 mL centrifuge en laat gedurende 5 minuten zodat de eieren naar de bodem zinken.
Opmerking: De meeste eieren worden gevonden op de buitenste rand van de agar. - Verwijderen door het snijden de bodem 4 mm van een p1000 gefilterde pipette uiteinde en gebruik de pipet tip om te tekenen van 1 mL van oplossing, ontleend aan de bodem van de centrifugebuis 50 mL. Dit overbrengen in een tube van 1,5 mL microcentrifuge en laat ze te regelen.
Opmerking: Wanneer pipetteren up eieren, module-het vrijgeven van de plunjer wordt efficiënter dan een zachte release. - Verwijderen door het snijden de bodem 4 mm van een tip van de gefilterde Pipetteer p20. Stel in de pipet op een gewenste volume en trekken aan de onderkant van de buis van de microcentrifuge.
Opmerking: Met de praktijk, een volume van 5 µL bevat ongeveer 100 eieren. - Afzien van de verzamelde eieren op het eten en laat ze voor de benodigde hoeveelheid tijd te ontwikkelen.
3. bacteriële cultuur
- Om te groeien P. entomophila en P. aeruginosa culturen, beënten 10 mL Luria Bertani (LB) bouillon met 100 µL van een bevroren bacteriële voorraad op 30 ° C (P. entomophila) en 37 ° C (P. aeruginosa), respectievelijk. Schudden bij 150 rpm's nachts. Zorgen dat de bacteriecultuur de verzadiging fase bereikt.
- Om ervoor te zorgen zijn de bacteriën wordt gebruikt voor het enten van de vliegen in de exponentiële fase en de overnachting cultuur in een nieuwe subcultuur, van een gewenste volume, de volgende ochtend snel repliceren, enten. Zorg ervoor dat de pre entmateriaal 10% van het totale volume van de subcultuur-cultuur.
Opmerking: Mondelinge infectie vereist hoge. Daarom is het nodig om te groeien van een aanzienlijke hoeveelheid bacteriecultuur zodat genoeg inoculatie cultuur kan worden geproduceerd voor de gewenste dosis en experimentele grootte. Berekenen hoeveel subcultuur is nodig voor de productie van de vereiste infectieuze doses met behulp van de vergelijking MsVs = MikVik, waar M een cultuur vertegenwoordigt de extinctie gemeten bij 600 nm (OD600) waarde en V vertegenwoordigt haar volume. Subscript letters verwijzen naar of de cultuur wordt gebruikt als een subcultuur (s) of een infectieuze dosis (i). - Groeien deze subcultuur in een erlenmeyer van 2 L in een volume zodanig dat de subcultuur van oppervlak (hooguit) net boven het begin van de helling van de kolf valt. Vult u niet boven dit merk zoals het de groei van bacteriën stunt zal.
- Controleer de bacteriën in deze subcultuur de exponentiële groeifase door het meten van de OD elke 30 min.
Opmerking: Dit gebeurt na 3-5 h, waar de subcultuur bereikt een OD600 tussen 0,6 – 0,8. - Gelijke hoeveelheden van deze subcultuur pour over 50 mL centrifuge buizen en draaien de subcultuur bij 2.500 x g gedurende 15 min bij 4 ° C tot pellet van de bacteriën. Zodra Ingehuld, verwijderen en draai vervolgens aan het supernatant weer bij de bovengenoemde voorwaarden de verwijdering van de overgrote meerderheid van de bacteriën te bevestigen.
Opmerking: Een pellet van te verwaarlozen omvang (kleiner dan 1 mm in hoogte) bevestigt dit. - Combineer de bacteriële pellets, van de afzonderlijke buizen door schorsing van hen opnieuw in 5 mL subcultuur supernatant en samenvoegen van deze oplossingen in een enkele 50 mL-buis. Spin dit geconcentreerde cultuur bij 2.500 x g gedurende 15 min bij 4 ° C tot pellet van de bacteriën.
- Verwijder het supernatant en resuspendeer de pellet definitieve bacteriën in een sacharoseoplossing water 5%. Controleer de OD en aan te passen aan de gewenste infectieuze dosis (OD600 = 100 voor P. entomophila8 en OD600 = 25 voor P. aeruginosa16,28), door opnieuw het opschorten van de pellets in 5% sacharoseoplossing water aan het vereiste volume.
Opmerking: De hoeveelheid water 5% sacharoseoplossing worden toegevoegd kan worden berekend met behulp van de vergelijking in stap 3.2.1 (MsVs = MikVik).
4. mondeling infecteren vliegen
- Verhongeren om mondelinge infectie, de vliegen gedurende 2 tot 4 uur vóór de blootstelling aan bacteriën door de vliegen naar standaard agar flesjes (1 L triple gedistilleerd H2O, 20 gram agar, 84 g bruine suiker, 7 mL Tegosept anti-schimmel agent).
- Infectie flesjes te bereiden terwijl vliegen zijn worden uitgehongerd. Breng een Pseudomonas -infectie flacon door pipetting 500 µL standaard suiker agar in het deksel van een monsterbuisje 7 mL en laat het drogen. Plaats een disc filtreerpapier in het deksel en Pipetteer 100 µL van bacteriecultuur rechtstreeks op de schijf van het filter. Voor de besmettingen van de controle, door de bacteriële cultuur te vervangen door dezelfde hoeveelheid water 5% sacharoseoplossing op het filtreerpapier.
- Enkele vliegen aan het monsterbuisje toevoegen en laat gedurende 18 – 24 h.
- Mondelinge infectie bevestigen, eerst oppervlak-steriliseren de vliegen onmiddellijk na de bacteriële blootstelling, door ze te plaatsen in 100 µL van 70% ethanol voor 20-30 s. verwijderen de ethanol en toevoegen van 100 µL van triple gedestilleerd water voor 20-30 s voordat u het water verwijdert. Voeg 100 µL van 1 x PBS en meng de vlieg.
- Het homogenaat overbrengen in de bovenste rij van een 96-wells-plaat en 90 µL van 1 x PBS toe te voegen aan elk putje hieronder.
- Serieel Verdun dit voorbeeld om te onderscheiden van een bereik van CFU-waarden. Neem 10 µL van het homogenaat in het hoogste goed en voeg dit toe aan de put hieronder. Herhaal deze stap met de tweede Nou, Nou, overdracht van 10 µL aan de derde enzovoort, voor zoveel seriële verdunningen zoals vereist.
Opmerking: Het is belangrijk dat nieuwe Pipet tips worden gebruikt voor elke set verdunningen. - Plaat de seriële verdunningen op een plaat nutriëntagar LB in 5 µL druppels, om ervoor te zorgen dat alle druppels discreet blijven.
- Incubeer de platen LB Agar's nachts op 30 ° C en 37 ° C gedurende P. entomophila en P. aeruginosa, respectievelijk en zichtbaar CFUs tellen.
Opmerking: Hoewel Drosophila darm microben verschillende groei van anaërobe voorwaarden vereisen, selectieve medium, bijvoorbeeld Pseudomonas isolatie Medium (PIM), kan worden gebruikt om ervoor te zorgen dat alleen Pseudomonas CFUs worden meegeteld. - Het aantal CFUs per fly berekenen door het tellen van het aantal kolonies aanwezig bij de seriële verdunning waar 10 – 60 CFUs duidelijk zichtbaar zijn. Vervolgens vermenigvuldigt met de verdunningsfactor aanwezig voor het berekenen van het aantal bacteriën per fly.
- Statistische analyses uit te voeren. Waar nodig, transformeren de CFUs per vliegen met een normale verdeling. Hiervoor log-transformatie. Eenmaal omgezet, gebruik veralgemeende lineaire modellen (GLMs)30,31,32 om te testen hoe behandelgroepen verschillen in CFUs per fly (met behulp van algemeen beschikbare statistische softwarepakketten zoals R-33).
Opmerking: De resterende vliegen homogenaat kan worden gebruikt voor het meten van de genexpressie door middel van kwantitatieve omgekeerde transcriptie PCR (RT-qPCR) analyse. Het homogenaat hersteld in 50 µL van RNA isolatie reagens uittreksel van RNA en kwantificeren van de specifieke immuun gene titers door RT-qPCR (Zie bijvoorbeeld, Gupta en Vale16 voor een gedetailleerde protocol). De expressie van specifieke immuun gene afschriften moet worden genormaliseerd naar de niveaus van de transcriptie van een huishouden-gen (dat wil zeggen, rp49) en uitgedrukt als een vouw wijzigen ten opzichte van controle vliegen met behulp van de 2−ΔΔCt methode31, 32,33,34.
5. opname nabestaanden na infectie
- Vliegen mondeling zoals beschreven in stap 4.2 infecteren.
- Overdracht van de besmette of besturingselement vliegt vanaf de flesjes van hun respectieve infectie tot norm Lewis flesjes en houden in een incubator bij 25 ° C in een 12 h:12 h licht-donker cyclus (of gewenste voorwaarden). Vliegen houden totdat zij dood zijn.
- Het aantal levende of dode vliegen in elk flesje dagelijks, of zo vaak als nodig.
- De vliegen overbrengen naar nieuwe flesjes, wordt elke 5 dagen om te voorkomen dat de vliegen vast komen te zitten in het voedsel.
- Presenteren van deze gegevens als Kaplan-Meier (KM) overleven curven of gemiddelde ± SE proportionele overleving percelen. Als u wilt analyseren het effect van verschillende factoren en/of hun respectieve interacties met elkaar kunt een statistisch pakket (bijvoorbeeld het pakket "overleven" in R-33) uitvoeren van een analyse van de overleving zoals de Cox proportionele gevaren model35.
6. meting van de bacteriële verontreiniging
- Op het gewenste tijdstip, door een enkele geïnfecteerde vlieg te overbrengen in een steriele 1,5 mL microcentrifuge buis.
- Oppervlak steriliseren de vliegen zoals beschreven in stap 4.4.
- Meng de vlieg en kwantificeren van de bacteriële belasting met behulp van het protocol beschreven in stappen 4.5-4.10.
7. maatregel bacteriële vergieten
- Meet het vergieten naast de interne belasting.
- Transfer enkele vliegen naar 1,5 mL microcentrifuge buizen met ~ 50 µL van Lewis medium gedurende 24 uur na infectie.
- Verwijderen van de vliegen voor de meting van de interne belasting (zie stap 6) en wassen van de buizen met 100 µL van 1 x PBS door vortexing zwaar voor 3 s.
- Het meten van de CFUs in deze wassing door plating op LB nutriëntagar met behulp van hetzelfde protocol, zoals beschreven in stappen 4.6-4.8.
- Transfer enkele vliegen naar 1,5 mL microcentrifuge buizen met ~ 50 µL van Lewis medium gedurende 24 uur na infectie.
- Overbrengen in de vliegen nieuwe microcentrifuge buizen ~ 50 µL van Lewis medium voor een verdere 24 h. wassen met de verontreinigde buizen met 100 µL van 1 x PBS door vortexing zwaar voor 3 s.
- Het meten van de CFUs in deze wassing door plating op LB nutriëntagar met behulp van hetzelfde protocol beschreven in stappen 4.6-4.8.
- Herhaal stap 7.2 en 7.3 en record vliegen sterfte bij elke overdracht.
Resultaten
Hier presenteren we illustratieve resultaten uit experimenten waar D. melanogaster mondeling was besmet met P. aeruginosa of P. entomophila. Figuur 2 toont de succesvolle mondelinge infectie van vliegen na een 12 h of 24 h blootstellingsperiode bacteriële culturen van OD600 = 25 en 100 voor P. aeruginosa (figuur 2A) en P. entomophila (figuur 2B C), respectievelijk. Figuur 2B illustreert het belang van het gebruik van een meer geconcentreerde cultuur van P. entomophila, weergegeven door de toename in bacteriële verontreiniging wanneer vliegen worden blootgesteld aan bacteriële culturen van meer optische dichtheid. Mannelijke en vrouwelijke Oregon R (OreR) vliegen duidelijk P. aeruginosa infectie aan het zelfde tarief (Figuur 3) en schuur evenveel P. aeruginosa CFUs (figuur 4A). Wanneer echter het besmet met P. entomophila , verschillen mannelijke en vrouwelijke OreR vliegen in het aantal bacteriën schuur, op een wijze die na verloop van tijd (figuur 4B verandert). Mannetjes en vrouwtjes sterven aan P. aeruginosa (figuur 5A) en P. entomophila (figuur 5B) tegen verschillende tarieven. We zien ook dat Dcy mutanten (die niet de beschermende peritrophic matrix in de darm epitheel) en Relish mutanten (die het ontbreken van een functionele IMD immuun traject), verminderde overleving na P. entomophila en P. aeruginosa weergeven mondelinge infectie (figuur 5C).

Figuur 1: Schematisch overzicht van de protocollen voor het meten van de overleving, vergieten, en interne bacteriële verontreiniging na orale infectie bij Drosophila melanogaster. Een illustratie van 3 potentiële experimenten na de mondelinge infectie van D. melanogaster. Meet de 'overleven' door overdracht van één vliegen naar flesjes en opname van hun besmette levensduur. Meten 'vergieten' door enkele vliegen naar 1,5 mL microcentrifuge buizen met 50 µL van Lewis medium in het GLB. Verwijder na 24 h in de buis, de vlieg en de vortex de buis met 100 µL van 1 x PBS. Verwijder en plaat deze oplossing op LB nutriëntagar voor het berekenen van het bacteriële vergieten. Meet het vergieten in de dezelfde vlieg lengterichting, door overdracht van vliegen naar verse buizen met Lewis medium in het GLB na 24 h, en wassen en de nu verontreinigde buis plating. Van een vlieg 'interne belasting' kan gemeten worden door een besmette vliegen, oppervlakte steriliseren van het en het voordat plating ten slotte het homogenaat op LB nutriëntagar homogenisatie. Dit kan worden uitgevoerd nadat vergieten is gemeten om te berekenen hoe de 'interne belasting' en afwerpende correlaat. De vliegen afbeelding gebruikt in dit cijfer was oorspronkelijk getekend door B. Nuhanen36. De auteurs hebben gewijzigd ter ondersteuning van de voorbeeld Kaplan-Meier-curve die is ontleend aan Wikimedia Commons37. Alle andere illustraties zijn origineel. Klik hier voor een grotere versie van dit cijfer.
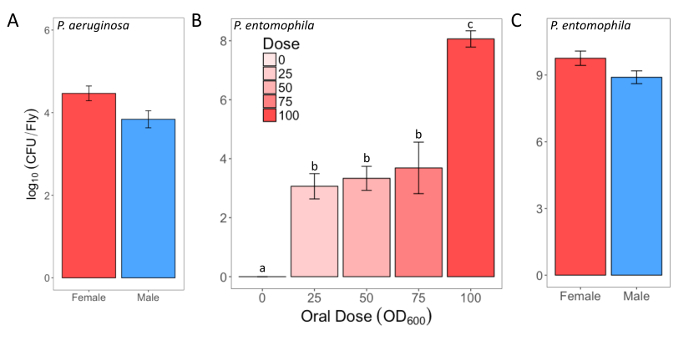
Figuur 2: infectieuze dosis van bacteriën na mondelinge infectie. (A) infectieuze dosis van mannelijke en vrouwelijke Oregon-R vliegt na blootstelling aan een cultuur van P. aeruginosa (OD600 = 25) voor 12u. Het gemiddelde en de SE werden berekend op basis van 3 reutjes en 3 teefjes. De infectieuze dosis (B) van outcrossed wild-type vrouwtjes na blootstelling aan een van de vier culturen van P. entomophila (OD600 = 100, 75, 50 en 25) of controle van 5% sacharoseoplossing gedurende 24 uur. De statistische verschil van (F3,76 = 18.567, p < 0.001) in de infectieuze dosis tussen blootstelling behandelingen wordt aangeduid met verschillende brieven boven bars. De middelen werden berekend op basis van 5 vliegen voor de OD600 = 0 dosis, en 18-20 voor alle andere doses. (C) de infectieuze dosis van mannelijke en vrouwelijke Oregon-R vliegt na blootstelling aan de cultuur van P. entomophila (OD600 = 100) gedurende 24 uur. Het gemiddelde en de SE werden berekend op basis van 20 mannen en 20 vrouwen. Klik hier voor een grotere versie van dit cijfer.
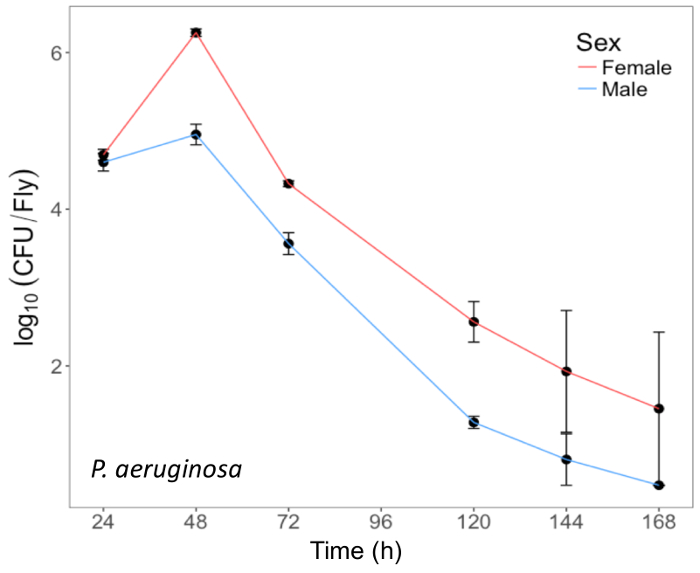
Figuur 3: Interne P. aeruginosa belasting in vliegen na mondelinge infectie. Gemiddelde ± SE bacteriële verontreiniging van mannelijke en vrouwelijke Oregon-R vliegt na orale besmetting met P. aeruginosa (OD600 = 25) tot 168 h na infectie. Het gemiddelde en de SE voor elk punt van tijd worden berekend vanaf 3 personen. Van een vlieg interne bacteriële verontreiniging aanzienlijk verandert na verloop van tijd (p < 0,001). Klik hier voor een grotere versie van dit cijfer.
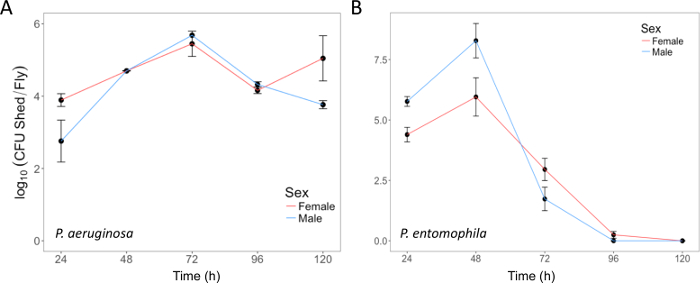
Figuur 4: bacteriële vergieten na mondelinge infectie. (A) P. aeruginosa werpen door de dezelfde vliegen gewend in Figuur 3, tot 120 h na infectie. Het gemiddelde en de SE werden berekend op basis van 3 reutjes en 3 teefjes. (B) P. entomophila werpen door mannelijke en vrouwelijke Oregon-R vliegt na orale besmetting met P. entomophila (OD600 = 100) tot 120 h na infectie. Het gemiddelde en de SE werden berekend op basis van 34 mannen en 38 vrouwen. Voor zowel P. aeruginosa en P. entomophila, het aantal CFUs schuur door een vlieg aanzienlijk verandert na verloop van tijd (p < 0,001). Klik hier voor een grotere versie van dit cijfer.
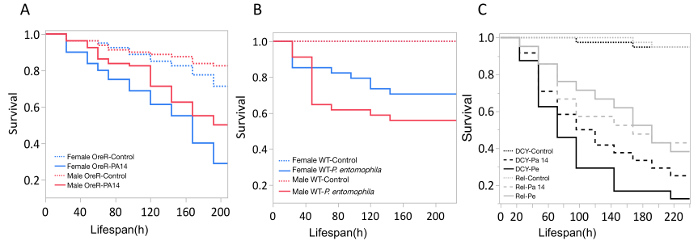
Figuur 5: voortbestaan van vliegen na bacteriële mondelinge infectie. Kaplan-Meier (KM) overleven curven van (A) Oregon-R mannetje en vrouwtje vliegt na orale besmetting met P. aeruginosa (OD600 = 25) of controle van 5% sacharoseoplossing. De curve van de overleving KM was berekend op basis van 4 flesjes van 20 vliegen per behandelde groep. (B) OreR mannelijke en vrouwelijke vliegt na orale besmetting met P. entomophila (OD600 = 100). De curve van de overleving KM was berekend op basis van 4 één besturingselement vliegen en 34 besmette vliegen voor zowel mannen als vrouwen. (C) immuun mutanten: Dcy (Drosocrystallin-peritrophic matrix mutant) en Rel (Relish-IMD mutant), blootgesteld aan P. entomophila (Pe), P. aeruginosa (Pa14) of een besturingselement 5% sacharoseoplossing. Alle besmette groepen sterven aanzienlijk sneller dan het besturingselement vliegt (p < 0,001). Klik hier voor een grotere versie van dit cijfer.
Discussie
Presenteren we een protocol voor het betrouwbaar mondeling D. melanogaster met bacteriële pathogenen infecteren. Wij richten ons op P. aeruginosa en P. entomophila, maar dit protocol kan gemakkelijk worden aangepast om besmetting van andere bacteriesoorten, bijvoorbeeld, Serratia marcescens7. Belangrijke aspecten van dit protocol zal variëren tussen bacteriesoorten. Dienovereenkomstig, de meest efficiënte infectieuze dosis, overeenkomstige virulentie en host genotype gevoeligheid moeten alle worden beschouwd en een ideale getest in pilotstudies. Bloot vliegt naar bacteriële culturen van een aantal optische dichtheden en het meten van hun infectieuze dosis en de overleving is een passend uitgangspunt bij het werken met nieuwe bacteriesoorten of vliegen lijnen.
Protocol stappen vliegen zoals honger voorafgaand aan voeding en opnieuw opschorten bacteriële pellets in 5% sacharoseoplossing zijn gemeengoed in mondelinge infectie en het verhogen van de betrouwbaarheid van bacteriële infectie tijdens blootstelling7,8, 9 , 10. het is echter belangrijk op te merken dat vliegen tijdens de blootstelling, in wezen op een oppervlakte van bacteriecultuur leven. Tijdens het wandelen op deze cultuur, zal bacteriën worden ingediend op de vlieg van oppervlak, met name op de epidermis of rond de borstels24. Deze epicuticular bacteriën, komen niet overeen met een succesvolle darmen infectie maar zou nog steeds worden gedetecteerd door de vliegen homogenisering en beplating. Verklein de kans op valse positieven en het is essentieel dat oppervlak steriliseren vliegen door onderdompeling in 70% ethanol voor maximaal 1 min.
Bij de behandeling van bacteriële afwerpende tarieven, is mondelinge infectie essentieel. Het aantal ziekteverwekkers die een host in het milieu vrijkomen is vaak moeilijk te meten en de interne belasting wordt vaak beschouwd als een maatstaf voor de ernst van de infectie en daarom transmissie26,27. Meten bacteriële verontreiniging naast bacteriële vergieten kan een onderzoek naar de relatie tussen deze twee belangrijke onderdelen van de ernst en de verspreiding van de ziekte38. Een beperking van de methode gepresenteerd is dat de interne bacteriële verontreiniging van vliegen keuring destructieve bemonstering vereist. Dit maakt het moeilijk te onderzoeken longitudinale trends van pathogen groei en ruimen van bouwterreinen binnen dezelfde persoon. Het is echter mogelijk om te overwinnen deze beperking door destructief bemonstering cohorten van personen in de verschillende stadia van de infectie, in de veronderstelling dat de gemiddelde microbe belasting in elk cohort de longitudinale pathogen dynamiek binnen een gegeven weerspiegelt individuele. Bacteriële vergieten geen last van dezelfde beperkingen, en wij bieden voorbeelden van hoe vergieten kan worden gekwantificeerd in een transversale gegevens, of lengterichting om te onderzoeken hoe binnen een individu vergieten verandert na verloop van tijd.
Veel gastheer en ziekteverwekker trekjes bepalen gezamenlijk iemands neiging tot26,39van de25,van de ziekte overbrengen. Terwijl de betekenis van deze eigenschappen waarschijnlijk tussen gastheer-pathogeen systemen varieert, is vergieten waarschijnlijk een belangrijke determinant van faecale-orale overdracht. De mogelijkheid voor het meten van bacteriële vergieten opent de mogelijkheid om te testen deze veronderstelling. Host-pathogen dynamiek in een gewenste panel van vliegen lijnen hebben gekenmerkt, kunnen onderzoekers mondeling infecteren van individuen, en plaats ze naast niet-geïnfecteerde, gevoelig hosts tijdens hun besmettelijke periodes. Deze 'ontvanger' vliegen kunnen vervolgens worden vehiculumcontrolegroep interne bacteriële belasting op verschillende tijdstippen als een manier van overdracht direct te meten.
Dankbetuigingen
Dit werk werd gesteund door een strategische award van de Wellcome Trust voor het centrum voor immuniteit, infectie en evolutie (http://ciie.bio.ed.ac.uk; subsidie referentie nr. 095831). PFV werd gesteund door een Branco Weiss fellowship (https://brancoweissfellowship.org/) en een Chancellor's Fellowship (School of Biological Sciences, Universiteit van Edinburgh); JASJ werd gesteund door een NERC E3 DTP PhD studententijd.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Vials | Sarstedt Ltd. | 58.490 | Polystyrene flat base tube 75mm x 23.5mm, 23ml |
| Agar | Sigma-Aldrich | A7002 | Agar, ash 2.0-4.5% |
| Brown sugar | Bidvest | 66032 | Light brown soft sugar |
| Maize | Dove's Farm | Organic maize flour | |
| Fermipan yeast | Bidvest | 96360 | Dry, instant yeast |
| Methyl-4-hydroxybenzoate | Sigma-Aldrich | H5501 | >=99.0%, crystalline |
| Sucrose | Sigma-Aldrich | 84097 | Sucrose BioUltra, for molecular biology, >=99.5% (HPLC) |
| Petri dishes | Fisher Scientific UK Ltd. | 15788517 | X600 Petri Dish 90 X 16.2MM Sterile Triple Vent |
| Falcon tubes (50ml) | Greiner Bio-one Inc | 210261 | Centrifuge tube, 50ml, skirted, bagged, sterile |
| Eppendorf tube (0.5ml) | Sarstedt Ltd. | 72.699 | Sarstedt Micro Tube Conical Base Push Cap 0.5ml Standard Neutral |
| Eppendorf tube (1.5ml) | Sarstedt Ltd. | 72.690.001 | Sarstedt Micro Tube Conical Base Push Cap 1.5ml Standard Neutral |
| Ethanol | VWR International Ltd. | 20821.33 | ETHANOL ABSOLUTE ANALAR NP ACS/R.PE - Analytical Grade |
| 2 L Conical Flask | VWR International Ltd. | 214-0038 | Narrow neck, 2 L Erlenmeyer flask |
| Sterile filter paper | Fisher Scientific UK Ltd. | 1001-020 | Plain circle and sheets; Particle Retention: greater than11um; Filtration speed: 150 herzberg; Air flow: 10.5s/100mL/in2; Medium porosity; Smooth surface; Grade 1; Type: circle; Dia: 20mm |
| Bijou sample container | Fisher Scientific UK Ltd. | 129A | 7ml polystyrene sample container |
| Pseudomonas isolation agar | Sigma-Aldrich | 17208 | Contains agar 13.6 g/L, magnesium chloride 1.4 g/L, peptic digest of animal tissue 20g/L, potassium sulfate 10g/L, triclosan 0.025g/L |
| LB broth, Miller | Fisher Scientific UK Ltd. | BP1426 | Contains 10g tryptone, 5g yeast extract, 10g sodium chloride per litre |
| Large Embryo Collection Cages | Scientific Laboratory Supplies Ltd. | 59-101 | Flystuff- fits 100mm petri dish |
| TRI reagent solution | Life Technologies | AM9738 | |
| 96-well microplate | Scientific Laboratory Supplies Ltd. | 353072 | Falcon 96 Well Clear Flat Bottom TC-Treated Polystyrene Cell Culture Microplate with Lid Sterile |
| Pestle | Fisher Scientific UK Ltd | 12649595 | Pestle, Presterilized; Axygen; Tissue grinder; Blue; Inert polypropylene construction; Fits 1.5 and 2.0mL centrifuge tubes; Individually wrapped; 100/Pk |
| Glycerol | Scientific Laboratory Supplies Ltd. | CHE2068 | Glycerol A.R. 99.5% 2.5 L |
| Cotton wool- non absorbent | Cowens Ltd | ABL | Non Absorbent Large quantity 20 bags x 500 |
| Cotton wool- absorbent | Cowens Ltd | ABS | BP small quantity 20 bags x 500 |
| Vortex | Fisherbrand | Whirlimixer 75W 50-6-Hz 220-240V | |
| Orbital incubator | Gallenkamp | INR-200-010V | 220 V, 50 Hz, 5 A. Nominal temperature: 70ºC. Shaking frequency: 0...400 rpm. |
| Absorbance Microplate Reader | Biotek Instruments Ltd | ELx808™ Absorbance Microplate Reader | |
| Gen 5 Microplate Reader and Imager Software | Biotek Instruments Ltd | For Absorbance Microplate Reader | |
| Centrifuge | Beckman Coulter | 392304 | Allegra X-12R Benchtop Centrifuge, refridgerated 50Hz 230V |
| Step One Plus Real Time qPCR System | Thermofisher Scientific | 4376600 | Applied biosystems Step One Plus real time qPCR system |
| Step One Software 2.3 | Thermofisher Scientific | For Stepone and SteponePlus real time qPCR systems | |
| R Statistical Software | https://cran.r-project.org/ | ||
| 10 µL pipette tips | Greiner Bio-one Inc | 741015 | Easlyload gilson-style. Graduated, clear, refill, 960 pcs |
| 200 µL pipette tips | Greiner Bio-one Inc | 741065 | Easlyload gilson-style. Graduated, clear, refill, 960 pcs |
| 1000 µL pipette tips | Greiner Bio-one Inc | 741045 | Easlyload gilson-style. Graduated, clear, refill, 960 pcs |
| 20 µL filtered pipette tips | Greiner Bio-one Inc | 774288 | Filter tip gilson-style. Clear, rack blue, single packed, R/Dnase free, 10 racks of 96pcs |
| 200 µL filtered pipette tips | Greiner Bio-one Inc | 739288 | Filter tip gilson-style. Clear, rack blue, single packed, R/Dnase free, 10 racks of 96pcs |
| 1000 µL filtered pipette tips | Greiner Bio-one Inc | 740288 | Filter tip gilson-style. Clear, rack blue, single packed, R/Dnase free, 10 racks of 60pcs |
Referenties
- Hoffmann, J. A. The immune response of Drosophila. Nature. 426 (6962), 33-38 (2003).
- Buchon, N., Silverman, N., Cherry, S. Immunity in Drosophila melanogaster - from microbial recognition to whole-organism physiology. Nat Rev Immunol. 14 (12), 796-810 (2014).
- Bergman, P., Seyedoleslami Esfahani, S., Engström, Y. Drosophila as a Model for Human Diseases-Focus on Innate Immunity in Barrier Epithelia. Curr Top Dev Biol. 121, 29-81 (2017).
- Apidianakis, Y., Rahme, L. G. Drosophila melanogaster as a model host for studying Pseudomonas aeruginosa infection. Nat Protoc. 4 (9), 1285-1294 (2009).
- Khalil, S., Jacobson, E., Chambers, M. C., Lazzaro, B. P. Systemic Bacterial Infection and Immune Defense Phenotypes in Drosophila Melanogaster. JoVE J Vis Exp. (99), e52613-e52613 (2015).
- Neyen, C., Bretscher, A. J., Binggeli, O., Lemaitre, B. Methods to study Drosophila immunity. Methods San Diego Calif. 68 (1), 116-128 (2014).
- Nehme, N. T., et al. A Model of Bacterial Intestinal Infections in Drosophila melanogaster. PLOS Pathog. 3 (11), e173(2007).
- Bou Sleiman, M. S., Osman, D., Massouras, A., Hoffmann, A. A., Lemaitre, B., Deplancke, B. Genetic, molecular and physiological basis of variation in Drosophila gut immunocompetence. Nat Commun. 6, 7829(2015).
- Buchon, N., Broderick, N. A., Lemaitre, B. Gut homeostasis in a microbial world: insights from Drosophila melanogaster. Nat Rev Microbiol. 11 (9), 615-626 (2013).
- Kuraishi, T., Hori, A., Kurata, S. Host-microbe interactions in the gut of Drosophila melanogaster. Front Physiol. 4, (2013).
- Ha, E. -M., Oh, C. -T., Bae, Y. S., Lee, W. -J. A Direct Role for Dual Oxidase in Drosophila Gut Immunity. Science. 310 (5749), 847-850 (2005).
- Limmer, S., et al. Pseudomonas aeruginosa RhlR is required to neutralize the cellular immune response in a Drosophila melanogaster oral infection model. Proc Natl Acad Sci U S A. 108 (42), 17378-17383 (2011).
- Apidianakis, Y., Pitsouli, C., Perrimon, N., Rahme, L. Synergy between bacterial infection and genetic predisposition in intestinal dysplasia. Proc Natl Acad Sci U S A. 106 (49), 20883-20888 (2009).
- Vodovar, N., et al. Drosophila host defense after oral infection by an entomopathogenic Pseudomonas species. Proc Natl Acad Sci U S A. 102 (32), 11414-11419 (2005).
- Chugani, S. A., Whiteley, M., Lee, K. M., D'Argenio, D., Manoil, C., Greenberg, E. P. QscR, a modulator of quorum-sensing signal synthesis and virulence in Pseudomonas aeruginosa. Proc Natl Acad Sci. 98 (5), 2752-2757 (2001).
- Gupta, V., Vasanthakrishnan, R. B., Siva-Jothy, J., Monteith, K. M., Brown, S. P., Vale, P. F. The route of infection determines Wolbachia antibacterial protection in Drosophila. Proc R Soc B. 284 (1856), 20170809(2017).
- Martins, N. E., Faria, V. G., Teixeira, L., Magalhães, S., Sucena, É Host Adaptation Is Contingent upon the Infection Route Taken by Pathogens. PLoS Pathog. 9 (9), (2013).
- Chambers, M. C., Jacobson, E., Khalil, S., Lazzaro, B. P. Thorax Injury Lowers Resistance to Infection in Drosophila melanogaster. Infect Immun. 82 (10), 4380-4389 (2014).
- Gupta, V., Stewart, C., Rund, S. S., Monteith, K., Vale, P. F. Costs and benefits of sublethal Drosophila C virus infection. J Evol Biol. , (2017).
- Ferreira, ÁG., Naylor, H., Esteves, S. S., Pais, I. S., Martins, N. E., Teixeira, L. The Toll-Dorsal Pathway Is Required for Resistance to Viral Oral Infection in Drosophila. PLoS Pathog. 10 (12), (2014).
- Buchon, N., Broderick, N. A., Poidevin, M., Pradervand, S., Lemaitre, B. Drosophila Intestinal Response to Bacterial Infection: Activation of Host Defense and Stem Cell Proliferation. Cell Host Microbe. 5 (2), 200-211 (2009).
- Wayland, M. T., et al. Spotting the differences: Probing host/microbiota interactions with a dedicated software tool for the analysis of faecal outputs in Drosophila. J Insect Physiol. 69, 126-135 (2014).
- Hori, A., Kurata, S., Kuraishi, T. Unexpected role of the IMD pathway in Drosophila gut defense against Staphylococcus aureus. Biochem Biophys Res Commun. 495 (1), 395-400 (2018).
- Ren, C., Webster, P., Finkel, S. E., Tower, J. Increased Internal and External Bacterial Load during Drosophila Aging without Life-Span Trade-Off. Cell Metab. 6 (2), 144-152 (2007).
- Ezenwa, V. O., et al. Host behaviour-parasite feedback: an essential link between animal behaviour and disease ecology. Proc R Soc B. 283 (1828), 20153078(2016).
- McCallum, H., et al. Breaking beta: deconstructing the parasite transmission function. Phil Trans R Soc B. 372 (1719), 20160084(2017).
- Vale, P. F., Choisy, M., Little, T. J. Host nutrition alters the variance in parasite transmission potential. Biol Lett. 9 (2), 20121145(2013).
- Mulcahy, H., Sibley, C. D., Surette, M. G., Lewenza, S. Drosophila melanogaster as an Animal Model for the Study of Pseudomonas aeruginosa Biofilm Infections In Vivo. PLoS Pathog. 7 (10), e1002299(2011).
- Kuraishi, T., Binggeli, O., Opota, O., Buchon, N., Lemaitre, B. Genetic evidence for a protective role of the peritrophic matrix against intestinal bacterial infection in Drosophila melanogaster. Proc Natl Acad Sci. 108 (38), 15966-15971 (2011).
- Myllymäki, H., Valanne, S., Rämet, M. The Drosophila Imd Signaling Pathway. J Immunol. 192 (8), 3455-3462 (2014).
- Lewis, E. A new standard food medium. Cold Spring Harb Protoc. 2014 (9), pdb.rec081414(2014).
- Bolker, B. M., et al. Generalized linear mixed models: a practical guide for ecology and evolution. Trends Ecol Evol. 24 (3), 127-135 (2009).
- R Core Team. R: A Language and Environment for Statistical Computing. , R Foundation for Statistical Computing. Vienna, Austria. (2015).
- Schmittgen, T. D., Livak, K. J. Analyzing real-time PCR data by the comparative CT method. Nat Protoc. 3 (6), 1101-1108 (2008).
- Kalbfleisch, J. D., Prentice, R. L. The Statistical Analysis of Failure Time Data. , 2nd Edition, Wiley-Blackwell. Hoboken, N.J. (2002).
- Nuhanen, B. Drosophila melanogaster, drawing.SVG. , Available from: https://commons.wikimedia.org/wiki/File:Drosophila-drawing.svg (2007).
- Accountalive. Example of a survival curve estimated by Kaplan-Meier method including 95% confidence limits. , Available from: https://commons.wikimedia.org/wiki/File:Kaplan-Meier-sample-plot.svg (2011).
- Susi, H., Vale, P. F., Laine, A. -L. Host Genotype and Coinfection Modify the Relationship of within and between Host Transmission. Am Nat. 186 (2), 252-263 (2015).
- Fellous, S., Duncan, A. B., Quillery, E., Vale, P. F., Kaltz, O. Genetic influence on disease spread following arrival of infected carriers. Ecol Lett. 15 (3), 186-192 (2012).
Herprints en machtigingen
