Dit manuscript wordt een eenvoudig protocol voor de isolatie van de arteriolen uit het netvlies rat die kunnen worden gebruikt in elektrofysiologische, calcium beeldvorming en druk myography studies beschreven.
Methodenartikel
Isolatie van retinale arteriolen voor Ex Vivo cel fysiologie Studies
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Het netvlies is een zeer metabolisch actief weefsel dat een aanzienlijke bloedtoevoer vereist. Het netvlies verkeer ondersteunt het innerlijke netvlies, terwijl de choroidal schepen de researchdieren leveren. Veranderingen in het netvlies perfusie bijdragen aan talrijke zicht-bedreigende aandoeningen, met inbegrip van diabetische retinopathie, glaucoom en tak van de retinale veneuze occlusie. Inzicht in de moleculaire mechanismen die betrokken zijn bij de controle van de bloedstroom door het netvlies en hoe deze worden gewijzigd tijdens oogbeschadigingen en/of ziekte kan leiden tot de vaststelling van nieuwe streefcijfers voor de behandeling van deze aandoeningen. Netvlies arteriolen zijn de belangrijkste weerstand schepen van het netvlies, en bijgevolg, spelen een sleutelrol bij de regulering van de retinale hemodynamica door veranderingen in de diameter van de luminal. In de afgelopen jaren hebben we methoden voor het isoleren van de arteriolen uit het netvlies rat die geschikt zijn voor een breed scala aan toepassingen waaronder cel fysiologie studies. Deze voorbereiding is al begonnen met het opleveren van nieuwe inzichten in hoe de bloedstroom wordt gecontroleerd in de retina en heeft ons toegestaan om te identificeren van enkele van de belangrijke veranderingen die zich tijdens oogbeschadigingen en/of ziekte voordoen. In dit artikel, we beschrijven van maatregelen voor de isolering van rat retinale arteriolen en protocollen voor hun gebruik in patch-clamp electrofysiologie, calcium imaging en druk myography studies. Deze schepen zijn ook vatbaar voor gebruik in PCR-, westelijke bevlekken en immunohistochemistry-gebaseerde studies.
Inleiding
Begrijpen hoe de bloedstroom wordt gecontroleerd in het netvlies is een belangrijk doel, aangezien abnormale bloedstroom heeft betrokken bij de pathogenese van een verscheidenheid van zicht-bedreigende retinale ziekten1,2,3, 4. Het netvlies omloop, die de innerlijke retinale zenuwcellen en gliacellen levert, heeft een einde slagader regeling, met al het bloed van de retinale slagaders en de arteriolen doorgeven via de haarvaten aan het netvlies venules en tenslotte de aderen5. Doorbloeding in het netvlies wordt gereguleerd door de Toon van de retinale slagaders en arteriolen evenals de contractiele activiteit van de pericytes gelegen op de muren van de retinale haarvaten en post capillaire venules6,7, 8. de controle van retinale vasculaire Toon is complex en is door een aantal ingangen van de bloedsomloop en de omringende retinale weefsel, met inbegrip van bloed gassen, circulerende moleculen en hormonen, gemoduleerd en vasoactieve stoffen vrijkomen uit de netvlies vasculaire endotheel en macroglia9,10,11. Het netvlies arteriolen zijn de kleine arteriële takken van het netvlies en zijn samengesteld uit een enkele laag van vasculaire zachte spiercellen en een binnenvoering van lengterichting gerangschikt endotheliale cellen12,13, 14. deze schepen vormen de hoofdsite van de vasculaire weerstand binnen het netvlies verkeer en daarom een belangrijke rol spelen in de lokale besturing van de retinale bloedstroom. Netvlies arteriolen regelen capillaire doorbloeding in het netvlies door leerstoornissen of hun luminal diameter, gemedieerd door veranderingen in vasculaire gladde spieren contractility10,15,16vernauwen. Inzicht in de moleculaire mechanismen via welke retinal arteriolen reguleren retinale perfusie vereist daarom preparaten waar de arteriolar zachte spiercellen kunnen worden benaderd en studeerde in omstandigheden zo dicht mogelijk bij fysiologische mogelijk.
Ex vivo preparaten van geïsoleerde retinale bloedvaten geven toegang tot de vasculaire zachte spiercellen, terwijl nog steeds hun functionaliteit en interconnectiviteit met de onderliggende endotheel behouden blijven. De meeste studies tot op heden met behulp van geïsoleerde vaartuigen hebben gericht op grote runderen of varkens arteriële schepen (60-150 µm). Deze kunnen gemonteerd worden in de handel verkrijgbare draad of myograph drukleidingen om farmacologische ondervraging van vasculaire glad spierweefsel cel contractiele mechanismen17,18. Dergelijke preparaten hebben sterk bijgedragen aan onze kennis van retinale vasculaire fysiologie onder normale omstandigheden. Enkele studies hebben gebruik gemaakt van netvlies arteriolen geïsoleerd van kleine laboratoriumdieren als hun kleinere diameter (~ 8-45 µm) voorkomt dat hun gebruik in conventionele myography systemen19,20,21,22. Een belangrijk voordeel is van het gebruik van vaartuigen van kleine laboratoriumdieren echter de brede beschikbaarheid van genetisch gemodificeerde, transgene en netvlies ziekte modellen. Kleine proefdieren zijn ook meer vatbaar voor in vivo interventiestudies.
Hier beschrijven we eenvoudig protocollen bij het opsporen en cannulating van de retinale arteriolen rat voor druk myography experimenten. CA2 + beeldvorming en electrofysiologie protocollen met behulp van deze vaartuigen zijn ook gedetailleerd. Deze kunnen verder bieden inzicht in de regulering van vasculaire gladde spieren contractility en doorbloeding in de retina.
Protocol
Alle experimenten die hier beschreven werden uitgevoerd overeenkomstig richtsnoeren binnen de UK dieren (wetenschappelijke Procedures) Act van 1986 en goedgekeurd door de Queen's University van Belfast dierenwelzijn en ethische beroepsinstantie.
1. isolatie van retinale arteriolen
Opmerking: Het volgende protocol wordt gebruikt om te isoleren van de retinale arteriolen. Deze methode is geoptimaliseerd voor rat retinale arteriolen maar kan worden gebruikt met muis netvlies. De opbrengst van vaartuigen, echter, is lager bij gebruik van muizen.
- Make-up een oplossing voor lage Ca2 + met Hanks' (LCH) zoals aangegeven in tabel 1.
Opmerking: Deze oplossing kan worden opgeslagen voor maximaal 3 dagen bij 4 ° C (wanneer met behulp van LCH opgeslagen, ervoor zorgen dat het equilibrates tot kamertemperatuur en de pH correct voordat er gebruik is). - Monteren van de volgende apparatuur voor het verzamelen van weefsel om ervoor te zorgen snelle microdissection van het netvlies: gekarteld pincet gebogen schaar, dissectie schotel (siliconen beklede petrischaal), één scherpe mes, 2 sets van pincet (bot) 1 glazen pipet van Pasteur (brand gepolijst naar een strak maar niet smalle tip), 1 wegwerp plastic pipet (met tip om het diafragma te afgesneden ~ 5-7 mm), 1 glas ronde onderkant reageerbuis (5 mL) en houder. Ongeveer 50 mL LCH in een bekerglas van glas decanteren en bereiden een tweede bekerglas te decanteren afval vloeistoffen.
Opmerking: Zie Tabel van materialen voor specificaties en details van de fabrikant. - Euthanaseren van de rat CO2 gevolgd door cardiale punctie met exsanguinate (Vermijd cervicale dislocatie of hersenschudding als dit schade aan bloedvaten in het oog veroorzaken kunnen). Intrekken van de oogleden met een getande Tang, en gebruik vervolgens de gebogen schaar om rond de orbitale spieren en door middel van de oogzenuw te snijden. Voorzichtig uitpakken de ogen van de baan verzorgen om dwars door eventuele resterende bijlagen met een schaar.
- Plaats de ogen ondergedompeld in LCH oplossing op de schotel van de dissectie (ogen kunnen worden vervoerd op ijs in een oplossing van LCH indien nodig). Een set van botte pincet gebruiken om het oog naar de schotel te verankeren door de orbitale spier bijlagen of de oogzenuw; Zorg ervoor dat de verankerende punt zo dicht mogelijk bij de sclera te stabiliseren van het oog.
- Met behulp van het blad, het hoornvlies langs de ora serrata doorsnijden en de lens verwijderen door zachtjes te drukken op de sclera met een tang.
- Snijd de oog-cup doormidden symmetrisch via de optische schijf. Met behulp van gesloten pincet voorzichtig 'borstel' uit het netvlies van de twee helften van de oogschelp verzorgen om eventuele resterende bijlagen op de optische schijf te verwijderen. Herhaal het proces met het tweede oog en breng het ontleed netvlies in de reageerbuis met behulp van de plastic pipet en een kleine daling van LCH medium.
- Met behulp van de plastic pipet vullen de proefbuis met LCH te ~ 5 mL en toestaan van het netvlies te vestigen aan de onderkant.
- Wassen het weefsel ongeveer 3 keer doordat ~ 4 mL van de oplossing van de buis en het toevoegen van verse LCH met behulp van de plastic pipet. Waar nodig, verwijder vreemde weefsel zoals opschortende ligamenten, glasvocht humor en haren.
- Wassen van de binnenkant van het glas Pasteur Pipet (gepolijst tip) met LCH om te voorkomen dat het weefsel kleven aan de pipet. Verwijderen met behulp van de dezelfde precisiepipet, ongeveer 4 mL oplossing uit de reageerbuis. Dan Voeg ongeveer 2 mL verse LCH.
- Zachtjes distantiëren (triturate) het netvlies door het tekenen van het weefsel via het puntje van het glas Pipetteer langzaam en verdrijven de inhoud in de reageerbuis. Opmerking, probeer niet te introduceren bubbels in dit stadium.
- Herhaal stap 1.10 totdat het netvlies worden verdeeld tot een grootte van ongeveer 2-3 mm2.
- Spoel de binnenkant van de pipet met ongeveer 2 mL van LCH en verdrijven dit in de reageerbuis. Laat de inhoud om af te wikkelen naar de bodem van meer dan 5-10 min.
- Herhaal de verpulvering proces zoals beschreven in 1.10-1.12 met een beetje meer kracht totdat de stukjes weefsel ongeveer 1 mm2 in grootte zijn. Nogmaals, laat het weefsel te vestigen voor 5-10 min.
- Herhaal de stappen 1.10-1.12 voor de derde keer met meer kracht totdat de inhoud zijn volledig gehomogeniseerd en geen stukken van netvlies blijven (de oplossing melkachtig uiterlijk moet worden).
Opmerking: Deze techniek levert maximaal 8 arteriolare segmenten (relatief vrij van de omringende neuropile en met sommige takken resterende intact) per isolatie 8-45 µm in diameter en 200-2500 µm in lengte te meten. - Breng een kleine hoeveelheid van het isolaat in een fysiologische opname kamer of toevoegen van fluorescente kleurstoffen voor meting van intracellulaire Ca2 + concentratie ([Ca2 +]i; zie punt 3). Verwijdering van restanten van eye cups en oplossing ze tijdens de isolatie volgens de lokale wetgeving omtrent de behandeling van dierlijk afval verwijderd.
Opmerking: Hoewel het is aan te raden om te experimenteren op schepen onmiddellijk na isolatie, overtollige isolaat kan worden achtergelaten bij 4 ° C voor maximaal 8 uur.
2. arteriolar druk Myography
Opmerking: Arteriolar druk myography wordt uitgevoerd als volgt met behulp van apparatuur beschreven in figuur 1A, B en de Tabel van materialen.
- Pipetteer een aliquoot deel van het netvlies vaartuig homogenaat (1-2 mL; geïsoleerd overeenkomstig punt 1) naar een fysiologische opname kamer (gedeeltelijk gevuld met nominaal Ca2 +gratis Hanks oplossing; 0Ca2 + Hanks'; Zie tabel 1) gemonteerd op het podium van een omgekeerde Microscoop. Laat de schepen te vestigen op de bodem van de kamer van de opname voor ten minste 5 minuten voordat experimenten.
- Visueel scannen in de zaal van de opname te identificeren arteriolen > 200 µm in lengte en het bezitten van een open einde, waardoor het schip kan worden gecanuleerd (identificatie van het type vaartuig wordt verder onderzocht in het gedeelte ' resultaten '). Positie van het schip in het midden van het gezichtsveld. Als geen geschikte vaartuigen aanwezig zijn, Pipetteer een aliquoot gedeelte van het schip homogenaat in de zaal van de opname per stap 2.1.
- Verankeren van de ene kant van het schip met fijne pincet en een kleine wolfraam draad slip (75 µm diameter en ~ 2-4 mm in lengte) over het schip geplaatst (Zie Figuur 1 c(i)). Om dit te doen de draad in de Tang houden en zoek de Tang boven de kamer opnemen.
- Identificeren van de overeenkomstige schaduw van de verlostang onder de Microscoop, lager van de verlostang in het bad, totdat de draad blijkt. Plaats de draad over het schip ongeveer 200 µm van het open einde en neerzetten van de draad loodrecht op de lengteas van het vaartuig.
Opmerking: Het gewicht van de wolfraam draad is voldoende om de occlude van het schip distally afgebroken stroom van luminal inhoud tijdens het cannulation en overdruksystemen.
- Identificeren van de overeenkomstige schaduw van de verlostang onder de Microscoop, lager van de verlostang in het bad, totdat de draad blijkt. Plaats de draad over het schip ongeveer 200 µm van het open einde en neerzetten van de draad loodrecht op de lengteas van het vaartuig.
- De arteriole verplaatsen in een geschikte positie in de vergaderzaal van de opname zodat het horizontaal in het bad met het open uiteinde in overeenstemming met de canule overdruksystemen ligt (Zie Figuur 1 c(ii-iv)). Dit doen door zachtjes duwen de occluding wolfraam draad slip met een extra sectie van draad gehouden binnen de verlostang; Raak niet de arteriole zoals het onherroepelijk aan de verlostang houden zal.
- Indien nodig (voor lange arteriole segmenten), toevoegen extra wolfraam draad glijdt over het schip zodanig zijn dat de afstand tussen de afsluiting en open uiteinden van het vaartuig niet meer dan 200 µm; Dit helpt om te voorkomen dat de verhuizing van het gezichtsveld bij overdruksystemen arteriole. Als het vaartuig een zij-takken heeft, moeten dit ook worden geroteerd met extra wolfraam draad stukjes. Gooi het schip als een zijaansluiting kan niet worden geroteerd.
- Perfuse de kamer met 0Ca2 + Hanks bij 37 ° C te verwijderen vreemde retinale weefsel en te warm het bad aan fysiologische temperaturen.
Opmerking: Een standaard zwaartekracht-gevoed Bad perfusie en in-line kachel systeem kan worden gebruikt voor dit doel (Zie figuur 1A). 0Ca2 + Hanks wordt gebruikt om de procedure cannulation, sinds verwijdering van externe Ca2 + zorgt ervoor dat de arteriolen verwijde blijven. - Fabriceren overdruksystemen cannulas van borosilicaatglas filamented haarvaten (tip diameter ~ 3-10 µm afhankelijk van de diameter van het schip worden gecanuleerd; kleinere schepen vereisen smaller cannulas; Zie de Tabel van materialen) met behulp van een de trekker van de micro-elektrode en rug-vulling met 0Ca2 + Hanks oplossing. Zorg ervoor dat de schacht van de canule is zachtjes taps toelopende naar de tip om het cannulation te vergemakkelijken.
- Mount de canule in een pipet houder gekoppeld aan een 10 mL spuit via een Y-connector en een 3-weg kraan; Dit wordt gebruikt om druk uitoefenen op het systeem, druk wordt opgenomen met behulp van een manometer aangesloten aan de andere kant-tak van de Y-connector (Zie figuur 1B).
Opmerking: Een pipet 'helper' is vereist om te helpen met het cannulation-proces. Fabriceren van de Pipet van een capillaire borosilicaatglas trok op een trekker met micro-elektrode met een diameter van de tip van 0,5 - 2 µm. zwaar vuur Pools de Pipet (vaak tot gesloten) met behulp van een microforge. - Plaats de pipet helper loodrecht op de lange-as van het schip dicht bij het open uiteinde met behulp van een mechanische manipulator 3-as (Zie Figuur 1 d). Plaats de pipet helper net boven het schip, maar raken het niet.
- Plaats de Pipet van de cannulation aan het open einde van het schip (Zie Figuur 1 d en 2A(i)) met behulp van een fijne micromanipulator; plaats het uiteinde onmiddellijk grenzend aan de opening, zoals beoordeeld door het vlak van de focus op de Microscoop (bij 20 X) aan te passen. Wanneer zowel het einde van het vaartuig en het uiteinde van de canule zijn in focus op hetzelfde moment juist gepositioneerd is de canule voor cannulation (Zie figuur 2A(ii)).
- De canule overdruksystemen vooraf in het schip-diafragma met behulp van de besturingselementen van de x-as van de mooie micromanipulator (Zie figuur 2A(iii)). Het beoordelen van het succes van cannulation door de canule langs de y-as te verplaatsen. Als de canule binnen het schip blijft is met succes gecanuleerde (Zie figuur 2A(iv)). Als de canule buiten het schip beweegt, de canule dreigt te worden boven het vaartuig; zo ja Herhaal stap 2.10-2.11 met de canule op een lagere vliegtuig in de z-as.
- Na de succesvolle cannulation zachtjes lager de helper pipet naar het schip te bedwingen de arteriole. De arteriolar muur gids over de canule overdruksystemen met de helper Pipet, op hetzelfde moment als de cannulation-Pipet is gevorderd verder in vaartuig lumen tot een afstand van ongeveer 30-50 µm (Zie figuur 2A(v, vi)).
Opmerking: Deze procedure vereist gelijktijdige, gecontroleerde beweging van beide manipulatoren (helper Pipetteer richting de canule terwijl de canule het vaartuig lumen pakt) en zal vereisen uitgebreide praktijk te bereiken van een hoog slagingspercentage. - Wijzigen van de bad-oplossing aan normale Hanks met 2 mM Ca2 + (Zie tabel 1) bij 37 ° C. Meestal is het hierdoor een lichte vernauwing van de arteriole en de vorming van een goede afdichting rond de canule overdruksystemen. De helper pipet kan vervolgens worden afgestapt van het vaartuig.
- Toestaan dat een goede afdichting te ontwikkelen voor 15 min. weergave het vaartuig met behulp van een USB-camera (en afbeelding acquisitie software) gekoppeld aan de Microscoop en aanpassen van de focus om te maximaliseren van het contrast tussen de grenzen van het vaartuig en de ruimten van het externe en intraluminale (Zie Figuur 2B). Afbeelding van het vaartuig op 0,5 - 5 frames/sec.
- Na 1 min van de opname op 0 mmHg, de intraluminale druk op het gewenste niveau te verhogen door het sluiten van de 3-weg kraan op de canule drukregeling aangesloten (Zie figuur 1B) en breng een kleine hoeveelheid van positieve druk aan het systeem via de spuit. Observeer de druk op de manometer wijzigen.
Opmerking: Druk kan worden toegevoegd in een stap wijs mode maximaal 100 mmHg of aan een andere waarde bijvoorbeeld 40 mmHg (aanpassing retinale arteriolar druk in vivo)23. Het vaartuig moet snel verwijden bevestiging van de succesvolle cannulation. Let op, druk-geïnduceerde vasoconstrictie (dat wil zeggen, de myogenic reactie) zal vervolgens ontwikkelen over een periode van 15 min, maar vanwege de geringe omvang van deze vaartuigen, dit kan niet altijd zijn visueel detecteerbaar. - Zorgvuldig toezicht houden op het schip tijdens eerste overdruksystemen voor de hand liggende lekken. Bronnen van lek afkomstig kunnen zijn van gekloofd zij takken of onvoldoende afdichting van de canule aan de binnenkant van de arteriole.
- Kijk voor de inhoud van de intraluminale verlaten van het schip. Kleinere, minder voor de hand liggende lekken kunnen blijken na verloop van tijd als een daling van de druk op de manometer. Indien mogelijk, de opening occlude met extra wolfraam draad stukjes verzorgen niet te storen van de canule. Preparaten met voor de hand liggende lekkage uitsluiten van verdere analyse.
- Toepassing van de drug van belang abluminally op het schip voorafgaand aan, of volgende, 15 min overdruksystemen afhankelijk van de doelstellingen van het experiment (de voormalige kunt effecten op de ontwikkeling van de myogenic Toon te bepalen, terwijl de laatstgenoemde maakt een analyse van de effecten op stationaire myogenic Toon). Een typische drug delivery systeem is afgebeeld in figuur 3A.
- Plaats van de levering outlet loodrecht op het gedeelte van het schip van belang (zoals wordt geïllustreerd in Figuur 1 d) op een afstand ~ 500 µm uit de buurt van het schip van belang verzorgen om ervoor te zorgen dat de uitlaat optimaal is schuin naar volledig superfuse het gebied (Zie Figuur 3B). Ervoor zorgen dat wijzigingen in perfusie fysiek niet het vaartuig storen.
- Na voltooiing van een experiment, toepassing van een oplossing voor 0Ca2 + Hanks met 10 µM wortmannin (myosin lichtketting kinase inhibitor) om het schip om te bepalen van de passieve diameter maximaal te verwijden.
Opmerking: De kracht van het zegel van de cannulation kan getest worden aan het einde van het experiment door verhoging van de intraluminale druk > 100 mmHg. De meerderheid van de schepen zal blijven zelfs bij deze hoge druk geven een goede afdichting. - Uitvoeren van off line analyse met behulp van de randdetectie om wijzigingen in de arteriolar diameter te houden (Zie Tabel van materialen voor voorgestelde software). Normaliseren de arteriole diameter aan de passieve diameter voor vergelijking tussen schepen.
3. Ca2 + Imaging
Opmerking: Geïsoleerde retinale arteriolen zijn voorbereid op conventionele (microfluorimetry) en confocal Ca2 + imaging als volgt (met behulp van apparatuur gedetailleerd in Tabel van materialen).
- Bereiden retinale homogenates in een tube van 5 mL glas test zoals beschreven in sectie 1. 1 mL van de retinale homogenaat toevoegen Fura - 2 AM (microfluormetric Ca2 + opname) of Fluo - 4 AM (confocal Ca2 + imaging) om een eindconcentratie van 5 µM (beschermen tegen licht); kleurstof indicatoren Laad bij voorkeur in de zachte spiercellen.
- Bewaren bij kamertemperatuur in het donker voor 2 h flicking van de kant van de buis om 15-20 min om resuspendeer de retinale weefsel. Daarna Verdun de homogenaat 1:4 met LCH oplossing om verder te verminderen kleurstof laden.
Opmerking: Schepen blijven levensvatbaar is voor maximaal 6 uur (wanneer opgeslagen bij 4 ° C en in het donker); maar het wordt aangeraden dat experimenten zo snel mogelijk aan het verminderen van de impact van compartimentering van de kleurstof in interne organellen of extrusie van de kleurstof na verloop van tijd zijn begonnen. - 1-2 mL retinale homogenaat overbrengen in een glassbottom opname kamer (gedeeltelijk gevuld met LCH) gemonteerd op het podium van een omgekeerde Microscoop verbonden met een Ca2 + microfluorimetry of confocale microscopie systeem.
- Anker arteriolen loodrecht op de richting van de stroom over de opname zaal, met wolfraam draad stukjes (50 µm diameter, lengte van 2-4 mm) verdeelde ~ 100-200 µm uit elkaar langs de scheepslengte (Zie Figuur 3 c) met behulp van een soortgelijke techniek die beschreven in stap 2.3.
- Perfuse van het bad met normale Ca2 + Hanks oplossing bij 37 ° C. Plaats de drug delivery outlet zoals afgebeeld in Figuur 3 c en drugs van toepassing op vaartuigen zoals beschreven in stap 2.17.
- Voor conventionele Ca2 + imaging, verlichten het vaartuig met 340/380 nm licht via de doelstelling van de onderdompeling UV van een olie (bijvoorbeeld 100 X, NA 1.3) en verzamelen van uitgestoten fluorescentie bij 510 nm via een foton tellen fotomultiplicator (PMT).
- Aan het einde van elk experiment, achtergrond fluorescentie te meten door het blussen van het vaartuig met een MnCl-bevattende oplossing (Zie tabel 1). Achtergrond-gecorrigeerde fluorescentie ratio's (R-F340/F380) gebruiken voor analyse of converteren naar het intracellulaire Ca2 + ([Ca2 +]i) met behulp van Rmin enmax metingen van R (zie tabel 1; toegepaste voorafgaand aan het blussen van 24) en de Grynkiewicz vergelijking25.
- Voor confocal Ca2 + imaging, prikkelen Fluo-4 geladen vaartuigen op 488 nm en vangen de emissies van de resulterende fluorescentie bij 490-535 nm in beide lijn scan modus (xt) of xyt scan modi (512 x 512 pixels; voorgestelde pinhole 300 nm). Normaliseren van metingen aan de fluorescentie opgenomen op het tijdstip t = 0s (F/F0). Het beoordelen van wijzigingen in [Ca2 +]i tijdens drug toepassingen of drukregeling off line in specifieke regio's van belang (ROIs) met behulp van de software van de analyse van de afbeelding.
- Indien nodig, Ca2 + beeldbewerking met druk myography uitvoeren
Opmerking: De bovenstaande beschrijvingen zijn geoptimaliseerd voor V510 schepen; het is echter mogelijk om te combineren met Ca2 + imaging met druk myography als volgt.- Isoleren arteriolen overeenkomstig punt 1. Laden met Ca2 + indicator kleurstoffen per stap 3.1-3.2. Breng de arteriolen in de zaal van de opname en cannulate overeenkomstig punt 2. Zorg voor het beperken van blootstelling aan het licht tijdens de montage-procedure.
- Meten Ca2 + per stap 3.5 of 3.7 hierboven. Druk uitoefenen op het vaartuig en herhaal de meting van Ca2 +. Gelijktijdige meting van de diameter van het vaartuig is afhankelijk van de wijze van Ca2 + meting en gebruikte apparatuur.
Opmerking: Voor confocal Ca2 + meting het kan noodzakelijk zijn te pre- en post drukregeling van afbeelding aparte regio's als gevolg van verbleking van de kleurstof tijdens lange belichtingen aan het licht.
4. Patch-Clamp electrofysiologie
Opmerking: Geheel-cel en één-kanaals opname is mogelijk van individuele arteriolar zachte spiercellen nog ingebed in hun bovenliggende arteriolen als volgt (met behulp van apparatuur gedetailleerd in Tabel van materialen).
- Isoleren en verankeren van retinale arteriolen in de zaal van de opname, zoals beschreven in stap 1, 2.3 en 3.3. Voor patch-clamp opnemen, de draad van de wolfraam slips zijn verdeeld 200-800 µm apart langs het schip.
- Verwijderen van basale lamina rondom de arteriole en elektrisch afkoppelen aangrenzende zachte spiercellen en onderliggende endotheliale cellen voorafgaand aan patch klemmen. Hiervoor superfuse het schip met een opeenvolgende reeks van enzym oplossingen (tabel 1) bij 37 ° C gedurende de vereiste duur.
Opmerking: De duur van de blootstelling van het enzym is geoptimaliseerd voor de retinale arteriolen rat (protease, ~ 8 min; collagenase, ~ 12 min) en afhankelijk van het debiet van de drug delivery systeem (~ 1 mL/min op onze set-up) en de activiteiten van de eenheid van de partij van enzymen wordt gebruikt. - Beoordelen van het niveau van de spijsvertering op visuele scheiding van endotheel en lagen van de gladde spieren tijdens de collagenase stap zoals afgebeeld in Figuur 4. Zodra de scheiding van de lagen van de cel wordt waargenomen (zoals weergegeven in figuur 4B), toepassing DNAse ik oplossing (~ 4 min) vervolgens het beëindigen van de spijsvertering door vervanging van de bad-oplossing met normale Ca2 + Hanks oplossing.
- Verwijder alle resterende onderdelen van basale lamina en/of perifere neuropile door voorzichtig vegen de gesloten toppen van fijne pincet langs het oppervlak van het schip.
- Trek en Pools glas haarvaten (Tabel of Materials), vul met pipet oplossing (tabel 1) en plaats stevig in de houder van de Pipet van de patch-clamp-headstage. Plaats de pipet op een hoek van 45° ten opzichte van de kamer van de opname en het opmars naar het schip met de Grove instelling op een gemotoriseerde micromanipulator.
- Selecteer een cel van de gladde spieren van de vaatwand uitsteekt en waarvan oppervlak is vrij van zichtbare puin (Zie figuur 4B). Plaats het uiteinde van de pipet patch verticaal op de cel van belang en lagere geleidelijk aan het gebruik van de boete/langzame beweging van de micromanipulator om contact met het membraan van de gladde spieren.
- Beoordelen van het contact tussen cel en Pipetteer visueel uit cel verkeer en een verandering in de pipet weerstand gemeten met gebruikmaking van de membraan (zegel) test-protocol in de acquisitie software (5-10 mV negatieve stap van 0 mV, frequentie 25 KHz; Zie figuur 5A(i)) .
- Wanneer het zegel verzet 5-voudig is toegenomen (bijvoorbeeld gestegen van 2 tot 10 MΩ; Figuur 5A (ii)) negatieve druk uitoefenen Transient op de achterkant van de houder van de pipet via een y-stuk, 3-weg kraan, spuit en buizen aangesloten op de pipet houder (gemonteerd op een gelijkaardige manier aan die gebruikt in drukregeling van de arteriolen, Zie figuur 1B).
- Herhalen van toepassingen van negatieve druk tot een gigaseal (> 1 GΩ weerstand; zoals aangegeven door de test van de membraan in de acquisitie software) is gevormd (figuur 5A(iii)). Dit proces kan duren 1-5 min. Indien een gigaseal geen vorm, kies een andere cel aan patch klem met behulp van een precisiepipet verse patch.
- Een bedrijf potentiële toepassen op de cel via de acquisitie software volgens het experiment wordt uitgevoerd (meestal 0-40 en -80 mV).
- Studie (op-cel) enkellijns activiteit in de huidige configuratie. Als alternatief, genereren binnenstebuiten patches door snel de patch Pipet uit het celoppervlak intrekken na de vorming van de gigaseal.
- De vrije uiteinden van het membraan kunnen opnieuw anneal onder deze omstandigheden Verwijder de pipet uit het bad via snelle verticale beweging van de manipulator (grof instelling). Snel terug via de meniscus te verwijderen van het hervormde membraan waardoor alleen de patch in het uiteinde van de pipet.
- De samplingfrequentie ingesteld op de software van de verwerving tot 5 KHz en activeren van de continu opnamemodus naar record kanaal activiteit. Geen spanningen wijzigingen toepassen indien nodig via de software of de versterker.
- Indien nodig, toepassen drugs schip/membraan patch zoals beschreven in stap 2.17.
- Als membraan stretch vereist is, negatieve druk uitoefenen op de achterkant van de pipet met behulp van de spuit op een manometer via een 3-weg kraan en y-connector aangesloten.
- Enkellijns opnames voor open kans en unitaire huidgeleiding volgens standaardprocedures26analyseren.
- Voor hele cel huidige opname kabeltrek- en Pools pipetten volgens de Tabel van materialen, vullen met pipet oplossing met amfotericine B (3 mg amfotericine B toevoegen aan 50 µL van DMSO 3-6 µL van dit toevoegen aan 1 mL pipet geheel-cel oplossing; Bewerk ultrasone trillingen ten te mengen) en vormen een zegel per stappen 4.6-4.9.
- Als gevolg van de opneming van amfotericine B behoeft er niet scheuren van het membraan binnen het uiteinde van de pipet om hele cel toegang te krijgen. Toegang, die zal worden opgedaan geleidelijk, met behulp van het testprotocol membraan in de acquisitie software monitoren (-20 mV stap van -40 mV, samplefrequentie 25 KHz; Zie figuur 5B).
- Geautomatiseerde montage van capacitieve transiënten in sommige software levert real-time metingen van toegang weerstand en capaciteit van de cel (u kunt ook de relatieve daling van de transiënten kan worden beoordeeld door oog). Zodra de toegang weerstand tot < 15 MΩ daalt, voeren serie weerstand compensaties (figuur 5C) met behulp van de gehele-cel met de parameter wijzerplaten (precisiecapaciteit en serie weerstand) op de versterker.
- Om dit te doen, gebruik de geautomatiseerde montage-waarden om in eerste instantie de wijzerplaten (Zie figuur 5C(ii)) en vervolgens verhogen van de wijzerplaat van de compensatie van serie-weerstand, (zowel voorspelling en correctie indien beschikbaar op de versterker) opnieuw aan te passen de hele cel compensaties terwijl het verminderen van de capacitieve van voorbijgaande aard (Zie figuur 5C(iii)).
- Zorg niet te over compenseren (zoals weergegeven in figuur 5C(iv)). Meestal is het mogelijk om te compenseren van de serie weerstand door 75% in geperforeerde patch modus (hiervoor moet van vertraging compensatie moet worden ingesteld op maximaal).
- Als geen geautomatiseerde montage beschikbaar is, beginnen met de instelling van de parameters van het geheel-cel belt 15 pF en 15 mΩ (typische waarden voor deze cellen) en vervolgens aanpassen voor de productie van de resultaten zoals weergegeven in figuur 5C(ii). De serie weerstand compensatie wijzerplaat tot ~ 75% te verhogen en passen de wijzerplaten van de gehele-cel parameters volgens figuur 5C(iii).
- Opmerking de cel precisiecapaciteit meting vanaf de eerste geautomatiseerde montage of vanaf de wijzerplaat na handmatige compensatie vóór experimenten.
Opmerking: Deze waarde wordt gebruikt om stromingen te celgrootte normaliseren. Compensatie voor serie weerstand moet mogelijk worden aangepast tijdens experimenten zoals toegang kan blijven verbeteren als gevolg van de verdere integratie van amfotericine B in de patch. - Drugs van toepassing op vaartuigen zoals beschreven in stap 2.17. Spanning protocollen (stappen of hellingen) gelden per experimentele eisen.
Opmerking: Typische spanning stap protocollen, 0,1 - 1 s in duur, worden toegepast van het bedrijf potentieel in 10-20 mV verhoogt elke 5-10-s voor de productie van een familie van spanning-geactiveerde stromingen. Als alternatief oprit protocollen te gebruiken voor het meten van stromingen, een aantal spanningen in een 'sweep' door het voltage langzaam speedramp (100-200 mV/s) van bijvoorbeeld -80 tot + 80 mV (toegepast elke 5-10-s) met offline bemonstering van de huidige 10 mV tussenpozen tijdens de oprit. - Het is mogelijk om het combineren van Ca2 + imaging met patch-clamp opnemen als volgt. Isoleren arteriolen overeenkomstig punt 1. Laden met Ca2 + indicator kleurstoffen volgens stappen 3.1-3.2. Monteren in de zaal van de opname overeenkomstig punt 4. Zorg voor het beperken van blootstelling aan het licht tijdens deze procedures.
Opmerking: Tot op heden niet gelukt te combineren patch-clamp met myography studies van de druk als gevolg van het verlies van de membraan van de kelder en de integriteit van het schip tijdens het enzymatische dissociatie
Resultaten
Figuur 6A ziet u een schematische tekening van de rat retinale vasculaire boom. Het bereik van de diameter van de eerste orde (30-45 µm), tweede orde (20-30 µm) en vooraf capillaire arteriolen (8-20 µm) heeft experimenteel in ons laboratorium door bevestigd confocal beeldvorming van rat retinale geheel-mount preparaten immunohistochemisch geëtiketteerd voor α-gladde spier actine (figuur 6B). Bij dissociatie van het netvlies, kunnen primaire, secundaire en pre capillaire arteriolen worden geïdentificeerd op basis van hun kaliber en de rangschikking van de vasculaire zachte spiercellen. De eerste en tweede orde arteriolen visueel lijkt onder heldere-veld microscopie, maar kunnen worden onderscheiden op basis van hun grootte (Figuur 6 c). De vooraf capillaire arteriolen zijn de kleinste arteriële schepen bij de voorbereiding en zijn gemakkelijk herkenbaar door hun intiemer plaatsing van vasculaire gladde spiervezels. De geïsoleerde arteriolen kunnen duidelijk worden onderscheiden van haarvaten en venules binnen het isolement. Haarvaten zijn duidelijk zoals een gevlochten van klein kaliber (4-10 µm in diameter) schepen, terwijl venules zijn dun ommuurde en gebrek aan gladde spieren cel dekking (Figuur 6 c). Primaire, secundaire en pre capillaire arteriolen zijn geschikt voor druk myography, Ca2 + beeldvorming en patch-clamp studies.
Figure 7 toont een druk myography experiment waar een primaire rat retinale arteriole heeft geweest gecanuleerd en de intraluminale druk verhoogd tot 40 mmHg. De arteriole is dan op deze druk te staan voor de ontwikkeling van myogenic Toon voordat het prestatiemeteritembestand van 0Ca2 + Hanks bevattende 10 µM wortmannin te verkrijgen van de passieve diameter van het vaartuig gehouden. Figuur 7A toont photomicrographs van de arteriole op verschillende tijdstippen in de loop van het experiment. Een record van de fulltime-cursus tonen de veranderingen in de diameter van het vaartuig na verloop van tijd hebben die in figuur 7B met behulp van aangepaste gemaakte randdetectie software27is uitgezet. Onmiddellijk na overdruksystemen verwijdt het vaartuig, die dan wordt gevolgd door een actieve myogenic vernauwing die een steady-state-niveau na 15 min. toevoeging van 0Ca2 + Hanks bereikt ' / wortmannin oplossing verwijdt het schip terug naar een niveau dat vergelijkbaar is met die onmiddellijk na de eerste druk stap in acht genomen. Zoals hierboven beschreven, kunnen drugs worden toegepast op de schepen vóór of de volgende overdruksystemen te onderzoeken van de mechanismen die ten grondslag liggen aan de ontwikkeling en het onderhoud van myogenic Toon in deze vaartuigen. Met behulp van deze aanpak, we hebben eerder aangetoond dat voorbijgaande Receptor potentiële Vanilloid 2 (TRPV2) stretch-geactiveerd en L - en T-type spanning-gated Ca2 + kanalen een centrale rol spelen bij het vergemakkelijken van de ontwikkeling van de myogenic Toon in eerste en tweede orde rat retinale arteriolen20,21,22. Ook hebben we gemeld dat grote-huidgeleiding Ca2 + geactiveerd kalium kanalen (BK kanalen)19,28 Kv1-bevattende spanning-gated K+ kanalen wet en zich te verzetten tegen myogenic activiteit in deze schepen, aangezien de toevoeging van specifieke remmers voor elk van deze kanalen triggers vasoconstrictie (Figuur 7 c).
Figuur 8 toont voorbeelden van conventionele en confocal Ca2 + beeldvorming in netvlies arteriolen voorafgaand aan en na blootstelling aan de vasoconstrictor peptide, endothelin-1 (Et-1). In conventionele fura-2 gebaseerde opnamen (figuur 8A), Et-1 (10 nM) lokt een tweefase verhoging in [Ca2 +]ik in het netvlies arteriolar vlotte spier laag, bestaande uit een eerste vluchtige component gevolgd door een lagere opgelopen component. We hebben eerder de voorbijgaande en duurzame componenten als zijnde als gevolg van Ca2 + vrijlating uit het endoplasmatisch reticulum en Ca2 + toestroom van de extracellulaire ruimte, respectievelijk29gekenmerkt. Fluo-4 gebaseerde confocal Ca2 + imaging biedt een meer gedetailleerd beeld van de gevolgen van Et-1 op cellulair niveau. In deze experimenten is het duidelijk dat de gladde veranderingen in de mondiale [Ca2 +]ik waargenomen in ons microfluorimetry studies resultaat van Et-1 stimuleert de activering van repetitieve asynchrone [Ca2 +]ik ingedeeld trillingen in de naburige cellen van het retinale arteriolar gladde spieren langs de vaatwand (figuur 8B, C; 30).
Figuur 9 ziet u voorbeelden van één-kanaals en geheel-cel patch klem opnames van retinale arteriolar zachte spiercellen. Tot op heden hebben we zowel op cellen en binnenstebuiten enkellijns patch klem opnames22,28uitgevoerd. Figuur 9A, B bijvoorbeeld tonen een op-cel patch klem opnemen voorafgaand aan en de volgende membraan stretch (gegenereerd door negatieve druk op de patch pipet te passen). Deze bijzondere patch bevat twee kanalen die worden geactiveerd door mechanische stretch. Wij hebben eerder aangetoond dat deze stromingen kunnen worden geremd met behulp van TRPV2 kanaal porie-blokkerende antilichamen22. De unitaire geleidingsvermogen van de kanalen (249.71 pS) is ook in overeenstemming met deze stroming wordt gemedieerd door TRPV231.
Geheel-cel spanning-geactiveerde stromingen kunnen worden opgeroepen met behulp van spanning stap protocollen. Figuur 9C toont een familie van spanning-geactiveerde A-type K+ stromingen opgenomen met behulp van een dergelijke aanpak. Deze stromingen duidelijk geworden toen andere grote stromingen in deze cellen presenteren (bijvoorbeeld BK en Ca+-geactiveerd Cl- stromingen) worden geblokkeerd met behulp van specifieke farmacologische agenten32,33. Stromingen via niet- of zwak spanning afhankelijk van de ionenkanalen zijn meestal onderzocht met behulp van spanning helling protocollen. Wij hebben dergelijke protocollen gebruikt om te identificeren en te karakteriseren TRPV2 stromingen geactiveerd door hypotone stretch22 en kanaal agonisten (figuur 9D) in het netvlies arteriolar zachte spiercellen.
Figuur 10 ziet u dubbele druk myography en confocal Ca2 + imaging in een primaire rat retinale arteriole toegepast. Drukregeling triggers verhoogde frequentie vani oscillaties [Ca2 +] in de individuele zachte spiercellen vergelijkbaar zijn met die waargenomen met Et-1. Wij hebben eerder aangetoond dat deze oscillaties worden getriggerd door de sommatie van Ca2 + vonken (gelokaliseerde Ca2 + release evenementen) en bijdragen tot de generatie van myogenic Toon20.
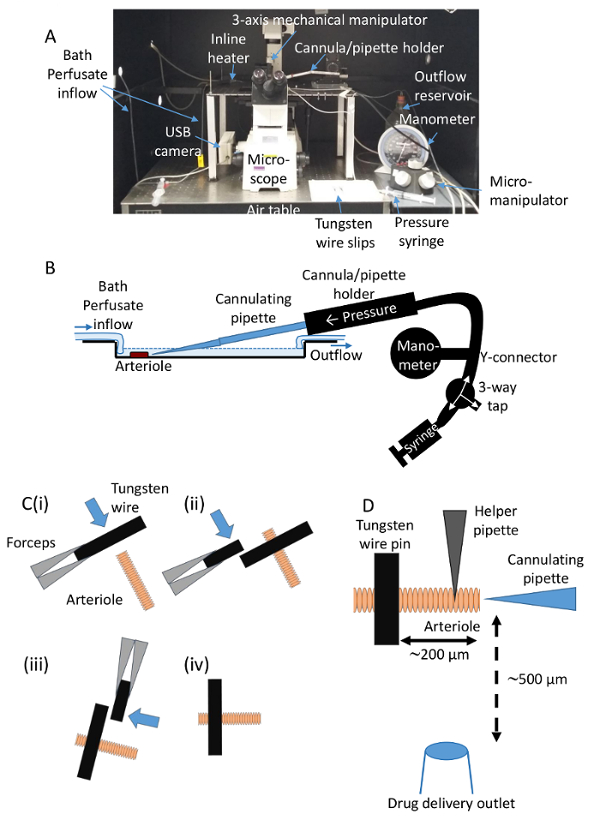
Figuur 1 . Experimentele opstelling voor druk myography in rat retinale arteriolen. A) experimentele uitrusting met inbegrip van omgekeerde Microscoop, in-line heater voor Bad perfusaat, 3 assen mechanische en micro-manipulatoren, manometer, canule houder en lucht tabel. B) schematische diagram waarop de optimale plaatsing van de cannulating Pipetteer en schip van belang in de zaal van de opname. Dit diagram illustreert ook de fundamentele opzet van de hoofdbrandbluspompen apparatuur. C) schematisch diagram weergegeven van het proces van verankering en verplaatsen van het vaartuig met behulp van extra wolfraam draad slips in fijne pincet gehouden. (i) druppel 1st slip aan het vaartuig occlude. (ii, iii) Gebruik extra stukjes om te verschuiven van de occluding slip (richting die wordt aangegeven door de pijl) en de bijbehorende vaartuig in de optimale oriëntatie in (iv) weergegeven. D) schematische diagram met optimale positionering van de occluding wolfraam draad slip, helper pipet en canule met betrekking tot het schip volgens afspraak voorafgaand aan cannulation. De uitlaat van de drug delivery systeem is geplaatst op een afstand van ~ 500 µm van het vaartuig te verminderen van bewegingsartefacten tijdens de toepassing van de drug. Klik hier voor een grotere versie van dit cijfer.
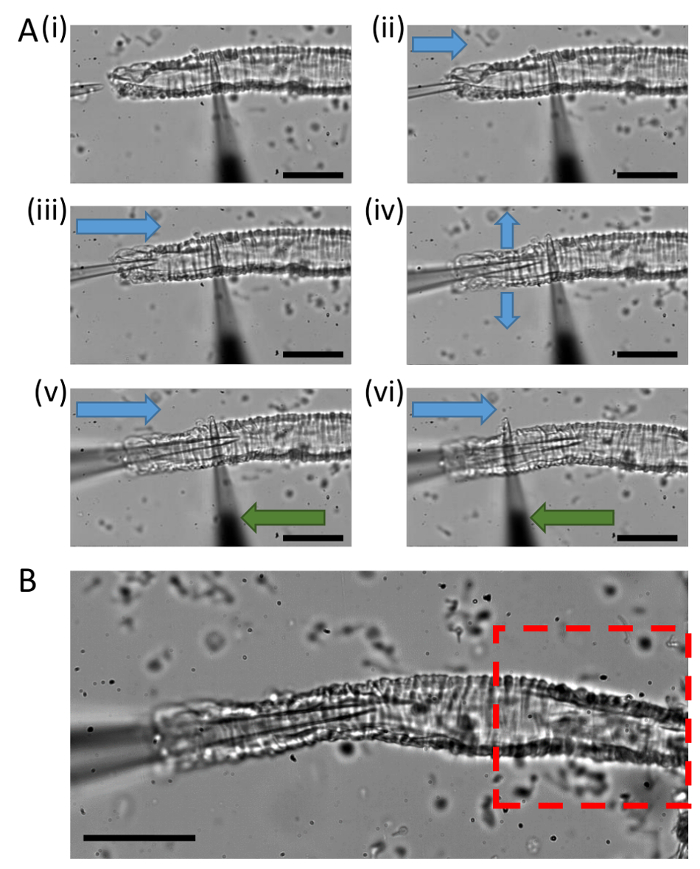
Figuur 2 . Cannulation proces voor druk myography. A) Photomicrographs tonen een retinale arteriole verankerd naar beneden in de zaal van de opname vóór (i), tijdens (ii)-(v) en volgende cannulation (vi). Blauwe pijl geeft de richting van de beweging van de canule terwijl de groene pijl de richting van de beweging van de helper Pipet geeft. B) gekleurd optimale regio voor opname van myogenic activiteit tijdens overdruksystemen als gemarkeerd in het rood weergegeven. Opmerking, aanpassing van licht en wordt de focus naar het verhogen van contrast van wanden kan beter het volgen van schepen randen voor geautomatiseerde analyse. Schaal balk geeft 50 µm. Klik hier voor een grotere versie van dit cijfer.
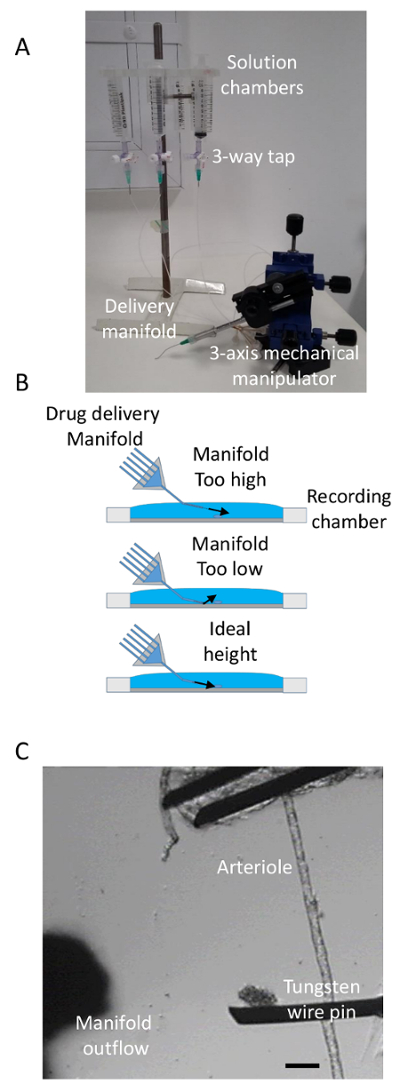
Figuur 3 . Drug delivery. A) apparatuur die wordt gebruikt voor drug delivery tonen oplossing reservoirs aangesloten op een variëteit van de multi-kanaals levering gecontroleerd door de 3-wegs kranen en gekoppeld aan een 3-as mechanische manipulator. B) Diagram weergegeven: de optimale verticale positionering van de drug levering spruitstuk met betrekking tot de opname-zaal. C) gekleurd van een schip verankerd naar beneden in de zaal van de opname weergegeven: de ideale positionering van de drug delivery outlet. Schaal staaf vertegenwoordigt 100 µm. Klik hier voor een grotere versie van dit cijfer.
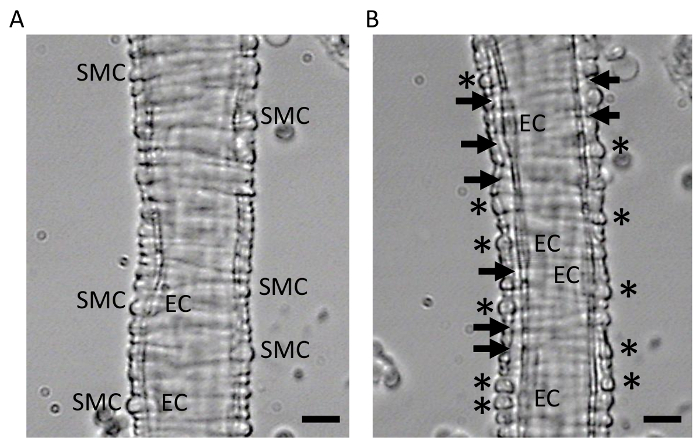
Figuur 4 . Enzymatische vertering van retinale arteriolen voor patch-clamp opnemen. Licht microfoto van een retinale arteriole vóór (A) en na (B) enzymatische spijsvertering. Opmerking de fysieke scheiding (aangegeven door de pijlen) van de zachte spiercellen (SMCs) uit de onderliggende endotheliale cellen (ECs). Zachte spiercellen geschikt voor patch klemmen worden aangeduid met een sterretje. Schaal staaf vertegenwoordigt 10 µm. Klik hier voor een grotere versie van dit cijfer.
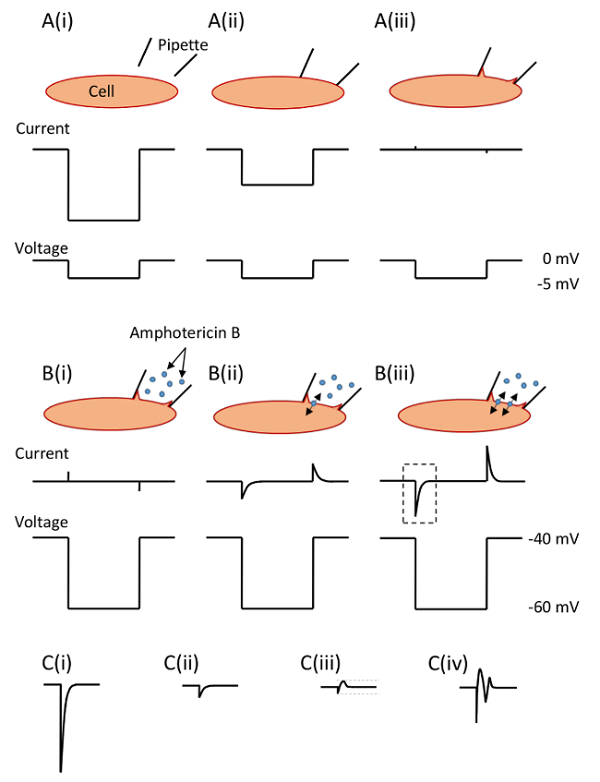
Figuur 5 . Single channel en hele cel patch klem opname. A) afbeelding van de stromingen van de test zich heeft voorgedaan tijdens het 'zegel test' protocol wanneer: (i) de patch pipet treedt het externe zwemmen medium, (ii) de pipet tip komt in aanraking met de vasculaire glad spierweefsel cel plasmamembraan en (iii) de zuigkracht is toegepast op de achterkant van de pipet om de vorming van de gigaseal. Pipetteer precisiecapaciteit compensatie met behulp van de patch-clamp-versterker, enkellijns stromingen kunnen nu worden opgenomen in de op-cel-configuratie of een patch van membraan kan worden weggesneden door snel terug te trekken de pipet wilt maken van een 'binnenstebuiten'-patch. B) huidige wijzigingen in verband met de ontwikkeling van elektrische toegang tot het interieur van de cel tijdens de toepassing van de amfotericine B geheel-cel geperforeerd patch klem techniek (i): (ii) zoals amfotericine B partities in het membraan, toegang tot weerstand falls en capaciteit transiënten ontlokte tijdens hyperpolarizing spanning stappen (van -40 tot -60 mV) groter; (iii) zodra toegang weerstand (Reen) is gedaald tot < 15 MΩ, wat gewoonlijk 5-10 min na gigaseal formatie duurt, is experimenten mogelijk. C) voorafgaand aan de opname van de gehele-cel, toegang weerstand en cel capaciteit moet worden gecompenseerd met behulp van de desbetreffende wijzerplaten op de patch klem versterker. Waarden van toegang weerstand en cel capaciteit geboden door geautomatiseerde functies binnen patch-clamp software kunnen worden gebruikt om te helpen dit proces: (i) toont de capaciteit voorbijgaande voorafgaand aan compensatie ontleend aan het gemarkeerde gebied in B(iii); (ii) toont de beperking in de capaciteit voorbijgaande doorgaans waargenomen wanneer de weerstand van de toegang en de capaciteit worden gecompenseerd; (iii) serie weerstand compensatie moet vervolgens worden gecorrigeerd van 75% en toegang weerstand en precisiecapaciteit compensaties verfijnd zodat de resulterende voorbijgaande aard relatief moet gelijke in amplitude boven en beneden het niveau van de hoogvlakte van huidige tijdens de stap. (iv) zorg moet worden genomen om ervoor te zorgen dat de toegang weerstand is niet meer dan gecompenseerd (aangegeven door de aanwezigheid van 'beltonen' van de voorbijgaande aard), die soms kan optreden als de toegang blijft verbeteren in de loop van het experiment. Klik hier voor een grotere versie van dit cijfer.
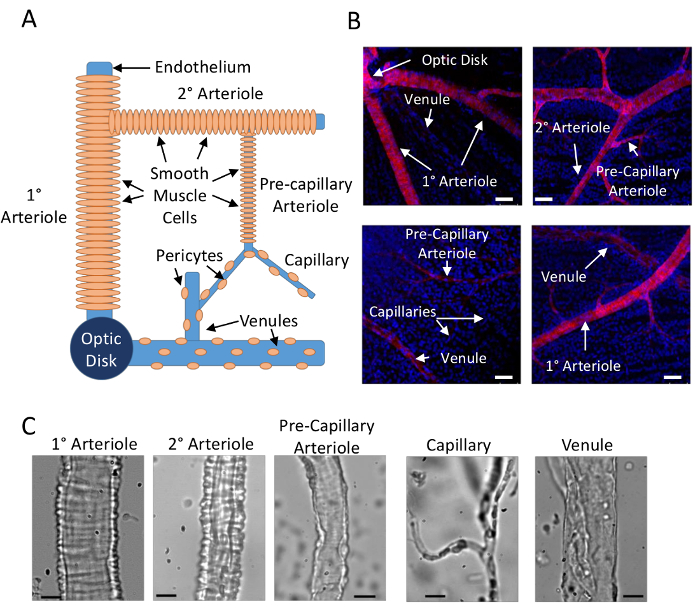
Figuur 6 . Identificatie van geïsoleerde rat retinale arteriolen. A) illustratie van de regeling van de rat retinale microvasculaire boom. B) Confocal beelden van rat retinale arteriolen en venules binnen de platte mount preparaten gekleurd voor αSMA (rode kernen zijn blauw gekleurd; schaal staven 50 µm). C) lichte microfoto van geïsoleerde 1 °, 2 ° en vooraf capillaire arteriolen, een capillaire netwerk- en venule (schaal de staven 10 µm). Klik hier voor een grotere versie van dit cijfer.
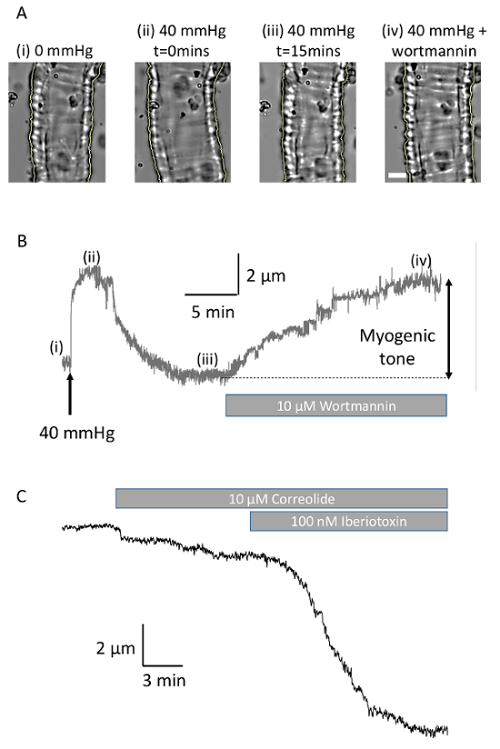
Figuur 7 . Arteriolar druk myography opnamen. A) beelden van een gecanuleerde retinale arteriole weergegeven: (i) rusten diameter (ongeveer 35.6 µm), (ii) dilatatie bij overdruksystemen, (iii) de ontwikkeling van myogenic vasoconstrictie en (iv) dilatatie als gevolg van de toevoeging van 10 µM wortmannin in 0Ca2 + Hanks oplossing. Schaal balk vertegenwoordigt 10 µm. B) tijd cursus plot met de diameter van het vaartuig voor het volledige experiment aangetoond in A (bemonsterd op 2,5 frames/s). C) Diameter traceren van een verschillende arteriole onder steady-state myogenic Toon (diameter 38,7 µm) waarin de effecten van de Kv1 kanaal remmer correolide (10 µM) en de BK kanaal remmer iberiotoxin (100 nM) (bemonsterd op 0.5 frames/s). Klik hier voor een grotere versie van dit cijfer.
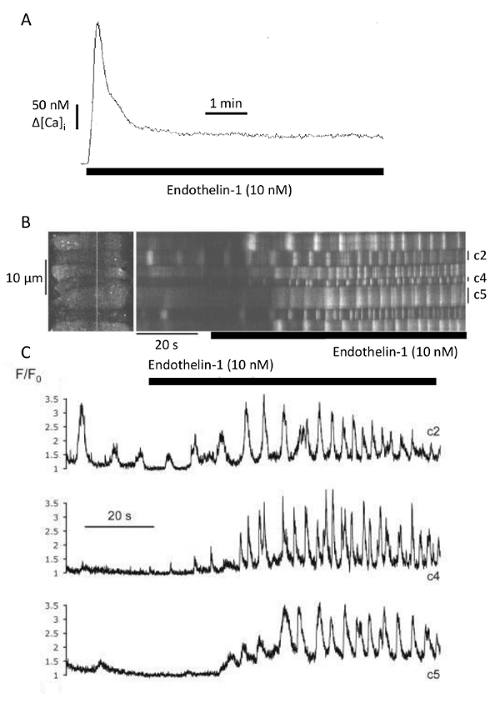
Figuur 8 . Effecten van Et-1 op [Ca2 +] Ik signalering van activiteit in rat retinale arteriolen. A) conventionele fura-2 gebaseerde opname waarin de effecten van Et-1 (10nM) op wereldwijde [Ca2 +]ik. Basale [Ca2 +]ik was 82 nM in dit 1 ° arteriole. B) Fluo-4 gebaseerde confocal xt afbeeldingen tonen de effecten van Et-1 op [Ca2 +]ik op cellulair niveau. C) Plot van de genormaliseerde fluorescentie-intensiteit (F/F0) gemeten in cellen zoals aangegeven in de B. Dit cijfer is gewijzigd van Tumelty et al. 30 met toestemming. Klik hier voor een grotere versie van dit cijfer.
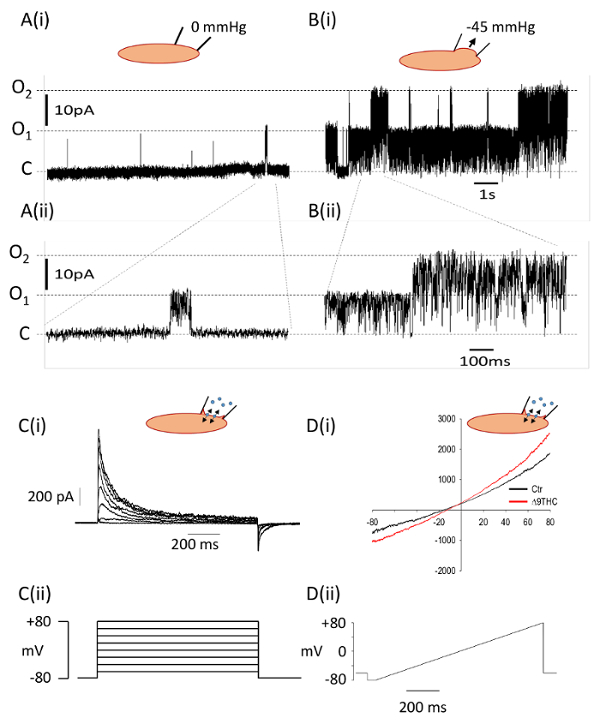
Figuur 9 . Single channel en geheel-cel patch-clamp opnames van rat retinale arteriolar zachte spiercellen. A, B) op-cel enkellijns opnames uit de dezelfde membraan patch voorafgaand aan (A) en tijdens (B) de toepassing van onderdruk (-45 mmHg) op de patch Pipetteer. Twee kanalen aanwezig zijn in de patch (unitaire huidige 12.81 pA; unitaire huidgeleiding 249.71 pS) die een aanzienlijke verhoging in activering stretch voorwaarden weergeven. Geselecteerde regio's uit de bovenste panelen (i) worden weergegeven op een snellere time basis in de lagere panelen (ii). C) familie van A-type K+ kanaal stromingen (i) opgenomen in de hele cel modus in aanwezigheid van inhibitors van BK en Ca2 +-geactiveerd Cl- -kanaal-remmers, ontlokte in reactie op 20 stappen van de stap van mV spanning tussen -80 mV tot + 80 mV (ii). D) hele cel stromingen (i) ontlokte door spanning hellingen tussen -80 mV en + 80 mV vóór (zwarte lijn) en tijdens (rode lijn) toepassing van het TRPV2 kanaal agonist delta-9-tetrahydrocannabinol (Δ9-THC). Het protocol dat wordt gebruikt in de helling van de spanning wordt weergegeven in het onderste deelvenster (ii). Klik hier voor een grotere versie van dit cijfer.
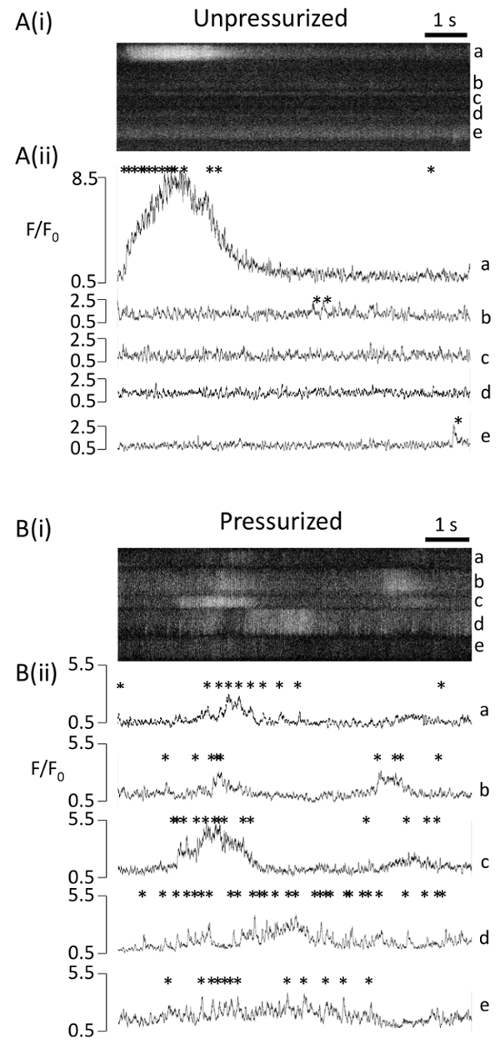
Figuur 10 . Ca2 + confocal beeldvorming voorafgaand aan en na drukregeling van een rat retinale arteriole. Representatieve confocal xt scans (i) van retinale arteriolar zachte spiercellen onder (A) V510 en (B) onder druk omstandigheden verkregen uit verschillende regio's van hetzelfde vaartuig. (ii) veranderingen in genormaliseerde fluorescentie (F/F0) opgenomen in afzonderlijke cellen een - e, zoals aangegeven in punt i, uitgezet tegen de tijd. Sterretjes geven aan individuele subcellular Ca2 + vonken die toename in frequentie na overdruksystemen en bodemmilieu te activeren van cellulaire Ca2 + oscillaties. Klik hier voor een grotere versie van dit cijfer.
| Compound (mM) | Lage Ca2 + Hanks | 0Ca2 + Hanks | Normale Hanks | Isolatie enzym Protease | Isolatie enzym Collagenase | Isolatie enzym DNAse | Doven oplossing | Rmin oplossing | Rmax oplossing | Cel aangesloten extracellulaire oplossing | Cel aangesloten Pipetteer oplossing | Geheel-cell extracellulaire oplossing | Geheel-cel Pipetteer oplossing |
| Zuiverheid van het water (weerstand) | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | 18 MΩ.cm | ≥15 MΩ.cm | 18 MΩ.cm |
| NaCl | 140 | 140 | 140 | 140 | 140 | 140 | 140 | 140 | 140 | 140 | |||
| kCl | 6 | 6 | 6 | 6 | 6 | 6 | 6 | 6 | 6 | 6 | 138 | ||
| D-Glucose | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | |
| MgCl2 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1 |
| HEPES | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 |
| CaCl2 | 0.1 | 2 | 0.1 | 0.1 | 0.1 | 10 | 2 | 2 | 2 | 0.2 | |||
| EGTA | 4 | 0,5 | |||||||||||
| MnCl | 10 | ||||||||||||
| Ionomycin | 0,01 | ||||||||||||
| KOH | 140 | 130 | |||||||||||
| D-gluconzuur | 130 | 130 | |||||||||||
| NaOH | 10 | ||||||||||||
| Penitrem A | 0.0001 | 0.0001 | 0.0001 | ||||||||||
| 4-aminopyridine | 10 | ||||||||||||
| Nimodipine | 0,01 | 0,01 | |||||||||||
| Fluoxetine | 0.1 | ||||||||||||
| 9-anthracenecarboxylic acid | 1 | ||||||||||||
| Amfotericine B | 300-600 μg mL-1 | ||||||||||||
| Protease Type XIV | ~0.01% (0,4-0,6 mg/40 mL) | ||||||||||||
| Collagenase Type 1A | 0,1% (6 mg/60 mL) | ||||||||||||
| DNAse ik | 20 KU (20 μL van 1 MU/mL voorraad in 20 mL) | ||||||||||||
| pH | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.2 |
| getitreerd wordt met gesteld | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | Tris | Tris | NaOH | KOH |
Tabel 1. Samenstelling van oplossingen gebruikt in experimenten, met inbegrip van voorbeelden van externe en Pipetteer oplossingen voor één kanaal (TRPV2) en de hele cel (A-Type) stromingen.
Discussie
De hierboven beschreven protocollen vereisen praktijk maar moeten haalbaar met minimale probleemoplossing. Op een gemiddelde dag wij 6-8 bruikbaar arteriolen te verkrijgen van de isolatie en bereiken van 3-4 succesvolle experimenten. Als u problemen ondervindt, echter zijn er enkele stappen die kunnen worden genomen ter verbetering van de slagingspercentages. Af en toe hebben we gevonden, met name bij het gebruik van jongere ratten (< 8 weken), dat de opbrengst van de arteriolen laag kan zijn. Om te omzeilen van dit probleem, raden we de retinale weefsel (10-30-s 500 x g) tussen elk van de verpulvering centrifugeren stappen in stappen 1.12-1.14. Dit helpt bij het verbeteren van het rendement van schepen vaak maar zal ook de verhoging van het bedrag van cel puin binnen de voorbereiding.
Wanneer vaartuigen voor druk myography studies cannulating is het belangrijk om te controleren de arteriolen zorgvuldig voor elke zij-takken die kunnen hebben al cleaved dicht bij de bifurcatie site. Dit is een veelvoorkomende oorzaak van lekkage en verlies van druk tijdens experimenten. Het belangrijkste probleem dat kan ontstaan met de [Ca2 +]ik protocollen is de hoeveelheid kleurstof laden. Slechte kleurstof laden leidt tot lage signal-to-noise ratio's, terwijl de overbelasting leidt tot verstoring van de normale Ca2 + homeostase. Verklein de kans op een van deze punten en een kleine hoeveelheid retinale homogenaat kan worden verwijderd, en geïsoleerde schepen gecontroleerd periodiek tijdens het laden-protocol. Wanneer de onderneming patch-clamp experimenten, het slagingspercentage van gigaseal formatie is sterk afhankelijk van hoe goed heeft de basale lamina zijn verteerd. Wanneer in eerste instantie testen dit protocol of met behulp van nieuwe veel enzymen het kan nodig zijn om de concentratie/duur van enzym spijsvertering. Zorgvuldig toezicht op de scheiding van de lagen endotheel en glad spierweefsel zorgt voor voldoende spijsvertering om genoeg basale laminaal om toegang te krijgen. Zorgvuldige controle is ook noodzakelijk om te voorkomen dat overmatig spijsvertering, die zich manifesteren kan als het schip begint te vernauwen. Als dit gebeurt, zijn de zachte spiercellen vaak te kwetsbaar voor patch klem opname. Bij toepassing van enzymen, is het belangrijk om op te nemen DNAse ik om verwijdering van strengen van DNA bevrijd uit cellen beschadigd tijdens het isolement. DNA-fragmenten zijn kleverig en veroorzaken de verlostang te houden aan de arteriole tijdens de laatste stadia van het reinigingsproces (stap 4.4), vaak resulterend in het verlies van het vaartuig. Reiniging van vaartuigen is technisch moeilijk en wordt best uitgevoerd bij hoge vergroting (20 X) met zachte vegende bewegingen van de gesloten tang van de fijnste mogelijk tip diameter. Reinig de verlostang met lab roll tussen veegt.
Als gemarkeerde eerder, was een belangrijke motivatie achter de ontwikkeling van de protocollen die worden beschreven in dit manuscript om beter te begrijpen waarom de bloedtoevoer wordt verstoord tijdens retinale vasculaire ziekten. Meeste van ons werk tot op heden heeft gericht op diabetische oog ziekte28,33. Arteriolen kunnen worden geïsoleerd uit het netvlies van experimentele knaagdier modellen van diabetes met behulp van de methoden die worden beschreven in sectie 1. Wanneer experimenteren op geïsoleerde retinale arteriolen van diabetische dieren, is het belangrijk om te proberen om te repliceren nauw de hyperglycemic voorwaarden ervaren door de schepen in vivo. Om deze reden verhogen we normaal gesproken zou de D-glucose niveaus in onze isolatie en experimentele oplossingen tot 25 mM. Verdikking van vasculaire kelder membranen is een goed erkende fenomeen in netvlies schepen tijdens diabetes34,35. Bij het gebruik van dieren met langdurige diabetes (> 1 maanden ziekte duur), zijn de concentratie van de verhoogde enzym of spijsvertering maal vaak nodig om de toepassing van de patch-clamp opname methoden.
Een belangrijke beperking van het gebruik van ex vivo geïsoleerd retinale arteriolen studie retinale vasculaire fysiologie en pathofysiologie is het verlies van de omliggende retinale neuropile. Hoewel verwijdering van de retinale gliale en neuronale cellen gemakkelijk toegang tot de retinale vasculaire zachte spiercellen voor cel fysiologie studies kunt, kan de reactie van de schepen op vasoactieve mediatoren drastisch veranderen in de afwezigheid en aanwezigheid van retinale weefsel. De acties van adenosine tri-fosfaat (ATP), bijvoorbeeld, bieden een goede illustratie van dit punt. In geïsoleerde rat retinale arteriolen, toevoeging van ATP triggers een robuuste vernauwing van de vaartuigen36, terwijl in de aanwezigheid van een intact neuropile, de bloedvaten verwijden37. Dus, waar mogelijk, wij gewoonlijk proberen te valideren van de belangrijkste bevindingen van onze voorbereidingen van de geïsoleerde arteriole met ex vivo retinale geheel-mounts en in vivo metingen van schip diameter en bloed stroom16,37 . Van de nota, nieuwe methoden opgedoken onlangs voor het bestuderen van kleine arteriolen en haarvaten in de hele geperfundeerd varkens netvlies ex vivo38,39. Dergelijke preparaten zijn waarschijnlijk aanzienlijk verbeteren ons begrip van hoe de retinale neuropile retinale arteriolar en capillaire Toon regelt en hoe veranderingen in netvlies hemodynamiek moduleren Neuronale activiteit in het netvlies.
Hoewel de in dit artikel beschreven procedures zijn gericht op het gebruik van geïsoleerde rat retinale arteriolen voor begrip arteriolar gladde spieren celfysiologie, ontwikkelen wij momenteel protocollen zodat ook de studie van de functie van het endotheel cel in deze schepen. Bij voorbereidende werkzaamheden, zijn wij erin geslaagd zijn in het aanpassen van de enzymatische vertering van retinale arteriolar segmenten levensvatbare endotheliale cellen buizen die zijn vatbaar voor Ca2 + beeldvorming en patchclamp studies opname opleveren. Cannulation van de geïsoleerde arteriolen aan beide uiteinden, om intraluminale levering van drugs, kan in de toekomst ook inschakelen endotheel-afhankelijke vasodilatory reacties op deze schepen worden onderzocht.
Openbaarmakingen
Dr. Joanna Kur is nu een vaste medewerker van Medtronic (Twin-Cities, Minnesota, USA), haar huidige werk niet in strijd met die hier gepresenteerd.
Dankbetuigingen
Ontwikkeling van de protocollen die zijn beschreven in dit document werd gesteund door subsidies van de volgende financieringsinstanties: BBSRC (BB/I026359/1), de strijd voor zicht (1429 en 1822), de Juvenile Diabetes Research Foundation (2-2003-525), Wellcome Trust (074648/Z/04), Britse Hartstichting (PG/11/94/29169), HSC R & D divisie (STL/4748/13) en MRC (MC_PC_15026).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Bekers | Fisherbrand | 15409083 | Of enig gelijkwaardig product |
| Gebogen schaar | Fisher Scientific | 50-109-3542 | Of enig gelijkwaardig product |
| Weggeef plastic pipette/overdracht | Sarstedt | 86.1174 | 6mL is het beste, maar andere maten zijn acceptabel; verwijder tip om opening te vergroten |
| Dissectiemicroscoop | Brunel Microscopes LTD | Of enig gelijkwaardig product | |
| Pincet | World Precision Instruments | Dumont #5 14095 | Elk equivalent fijn pincet |
| Pasteurpipet | Fisherbrand | 11546963 | Vuur gepolijst om wrijving te verminderen, maar niet genoeg om de punt te versmallen |
| Petrischaal | Sigma-Aldrich | P7741 | Of enig gelijkwaardig 10cm product |
| Pipetdop | Fisherbrand | 12426180 | Of enig gelijkwaardig product |
| Gezuiverd watervoorraad | Merek | Milli-Q Integral Water Purification System | Of enig gelijkwaardig systeem |
| Rondbodemproefbuis | Fisherbrand | 14-958-10 B | 5 mL; elk gelijkwaardig product |
| Seratted pincet | Fisher Scientific | 17-467-230 | Of enig gelijkwaardig product |
| Eénzijdige messen | Agar Scientific | T585 | Of enig gelijkwaardig product |
| Sylgard | Dow Corning | 184 | Of enig buigzaam oppervlak |
| Proefbuisrek | Fisherbrand Derlin | 10257963 | Of enig gelijkwaardig product |
| Druk myografie | |||
| 3-assige mechanische manipulator | Scientifica | LBM-7 | x2 (of elk gelijkwaardig product) |
| 3-weg kranen | Cole-Parmer | UY-30600-02 | Of enig gelijkwaardig product |
| Luchttafel | Technical Manufacturing Corporation | Clean Bench | Of enig gelijkwaardig product |
| Analyse software | Image J | https://downloads.imagej.net/fiji/ | Gratis beeldvormingssoftware |
| Analyse plugin | Myotraker | https://doi.org/10.1371/journal.pone.0091791.s002 | Aangepaste plugin voor imageJ Vrij beschikbaar voor download |
| Cannulatiepipet glas | World Percision instruments | TW150F-4 | Of enig gelijkwaardig product |
| Computer | Dell | Optiplex 7010 | Of elk gelijkwaardig product |
| Digitaal thermometer | RS | 206-3722 | Of enig gelijkwaardig product |
| Fluo-4-AM | Thermo Fisher Scientific | F14201 | Maak 1 mM stock in DMSO |
| Pincet | World Precision Instruments | Dumont #7 14097 | Elk equivalent fijn pincet |
| Fura-2-AM | Thermo Fisher Scientific | F1221 | Maak 1 mM stock in DMSO |
| Glasbodem opnamekamer | Warner Instruments | 64-0759 | Of enig gelijkwaardig product |
| Helperpipet glas | World Percision instruments | IB150F-3 | Of enig gelijkwaardig product |
| Inline verwarming | Op maat gemaakt | Commerciële gelijkwaardige SH-27B Solution In-Line Heater van Harvard Apparatus | |
| Inverteer microscoop | Nikon | Eclypse TE 300 | Of enig gelijkwaardig product |
| Manometer | Riester | LF1459 | Of enig gelijkwaardig product |
| Microelektrode puller | Sutter instruments | P97 | Of enig gelijkwaardig product |
| Microforge + Olympus CX 31 microscoop | Glassworks | Fine Point F-550 | Of enig gelijkwaardig product |
| Micromanipulator | Sutter instruments | MP-285 | Of enig gelijkwaardig product |
| Multi-kanaals distributie manifold | Automate Scientific | Perfusion Pencil | Of enig gelijkwaardig product |
| Pipetvuller | BD Plastipak | 1mL | Spuit verwarmd en getrokken naar interne diameter van pipet |
| Pipethouder | Molecular Devices | 1-HL-U | Of enig gelijkwaardig product |
| Zuigpomp | Interpet | AP1 | Geconverteerde beluchtingspomp door het omkeren van de bel |
| Spuit | BD Plastipak | 20mL Luer-lok | Of elk gelijkwaardig product |
| Wolfraamdraad | Advent | W558818 | 75μm diameter |
| Tygon Buizen | VWR | diverse maten | Of elk gelijkwaardig product |
| USB camera | Logitech | HD Pro Webcam C920 | Of enig gelijkwaardig product |
| Video capture software | Hypercam | version 2.28.01 | Of enig gelijkwaardig product |
| Waterbad | Grant | Sub Aqua 12 Plus | Of enig gelijkwaardig product |
| x20 lens | Nikon | 20x/0.40 WD 3.8, ∞/0.17 | Of enig gelijkwaardig product |
| x4 lens | Nikon | 4x/0.10, WD 30, ∞/- | Of enig gelijkwaardig product |
| Y-connectors | World Percision Instruments | 14012 | Of enig gelijkwaardig product |
| Patch clamping | |||
| 3-weg kranen | Cole-Parmer | UY-30600-02 | Of enig gelijkwaardig product |
| 3-assige mechanische manipulator | Scientifica | LBM-7 | Of enig gelijkwaardig product |
| Luchttafel | Technical Manufacturing Corporation | Clean Bench | Of enig gelijkwaardig product |
| Amphotericin B | Sigma-Aldrich | A2411 | 3 mg dagelijks opgelost in 50 μL van DMSO (soniceren om op te lossen) |
| Versterker | Molecular Devices | Axopatch 200a | Of enig gelijkwaardig product |
| Analoge digitale converter | Axon | Digidata 1440A | Of enig gelijkwaardig product |
| Collagenase Type 1A | Sigma-Aldrich | C9891 | 0.1mg/mL in LCH |
| Computer | Dell | Optiplex 7010 | Of enig gelijkwaardig product |
| Digitaal thermometer | RS | 206-3722 | Of enig gelijkwaardig product |
| DNAse I | Millipore | 260913 | Werkend voorraad 1 MU mL-1 (10 MU |
Referenties
- Kohner, E. M., Patel, V., Rassam, S. M. Role of blood flow and impaired autoregulation in the pathogenesis of diabetic retinopathy. Diabetes. 44, 603-607 (1995).
- Hafez, A. S., Bizzarro, R. L., Lesk, M. R. Evaluation of optic nerve head and peripapillary retinal blood flow in glaucoma patients, ocular hypertensives, and normal subjects. American Journal of Ophthalmology. 136, 1022-1031 (2003).
- Curtis, T. M., Gardiner, T. A., Stitt, A. W. Microvascular lesions of diabetic retinopathy: clues towards understanding pathogenesis? Eye (London). 23, 1496-1508 (2009).
- Pournaras, C. J., Rungger-Brändle, E., Riva, C. E., Hardarson, S. H., Stefansson, E. Regulation of retinal blood flow in health and disease). Progress in Retinal and Eye Research. 27, 284-330 (2008).
- Kuwabara, T., Cogan, D. G. Studies of retinal vascular patterns. I. Normal architecture. Archives of Ophthalmology. 64, 904-911 (1960).
- Scholfield, C. N., McGeown, J. G., Curtis, T. M. Cellular physiology of retinal and choroidal arteriolar smooth muscle cells. Microcirculation. 14 (1), 11-24 (2007).
- Puro, D. G. Retinovascular physiology and pathophysiology: new experimental approach/new insights. Progress in Retinal and Eye Research. 31 (3), 258-270 (2012).
- Kur, J., Newman, E. A., Chan-Ling, T. Cellular and physiological mechanisms underlying blood flow regulation in the retina and choroid in health and disease. Progress in Retinal and Eye Research. 31 (5), 377-406 (2012).
- Delaey, C., Van de Voorde, J. Regulatory Mechanisms in the Retinal and Choroidal Circulation. Ophthalmic Research. 32 (6), 249-256 (2000).
- Metea, M. R., Newman, E. A. Glial cells dilate and constrict blood vessels: a mechanism of neurovascular coupling. Journal of Neuroscience. 26, 2862-2870 (2006).
- Pournaras, C. J., Rungger-Brändle, E., Riva, C. E., Hardarson, S. H., Stefansson, E. Regulation of retinal blood flow in health and disease. Progress in Retinal and Eye Research. 27 (3), 284-330 (2008).
- Hughes, S., Chan-Ling, T. Characterization of smooth muscle cell and pericyte differentiation in the rat retina in vivo. Investigative Ophthalmology & Visual Science. 45 (8), 2795-2806 (2004).
- Shepro, D., Morel, N. M. Pericyte physiology. The FASEB Journal. 7 (11), 1031-1038 (1993).
- Kornfield, T. E., Newman, E. A. Regulation of Blood Flow in the Retinal Trilaminar Vascular Network. Journal of Neuroscience. 34 (34), 11504-11513 (2014).
- Matsushita, K., Puro, D. G. Topographical heterogeneity of KIR currents in pericyte-containing microvessels of the rat retina: effect of diabetes. Journal of Physiology. 573, 483-495 (2006).
- Needham, M., et al. The role of K+ and Cl- channels in the regulation of retinal arteriolar tone and blood flow. Investigative Ophthalmology & Visual Science. 55 (4), 2157-2165 (2014).
- Hessellund, A., Jeppesen, P., Aalkjaer, C., Bek, T. Characterization of vasomotion in porcine retinal arterioles. Acta Ophthalmologicaogica Scandinavica. 81, 278-282 (2003).
- Delaey, C., Van de Voord, J. Pressure-induced myogenic responses in isolated bovine retinal arteries. Investigative Ophthalmology & Visual Science. 41, 1871-1875 (2000).
- Kur, J., et al. Role of ion channels and subcellular Ca2+ signaling in arachidonic acid-induced dilation of pressurized retinal arterioles. Investigative Ophthalmology & Visual Science. 55 (5), 2893-2902 (2014).
- Kur, J., Bankhead, P., Scholfield, C. N., Curtis, T. M., McGeown, J. G. Ca(2+) sparks promote myogenic tone in retinal arterioles. British Journal of Pharmacology. 168 (7), 1675-1686 (2013).
- Fernández, J. A., McGahon, M. K., McGeown, J. G., Curtis, T. M. CaV3.1 T-Type Ca2+ Channels Contribute to Myogenic Signaling in Rat Retinal Arterioles. Investigative Ophthalmology & Visual Science. 56 (9), 5125-5132 (2015).
- McGahon, M. K., et al. TRPV2 Channels Contribute to Stretch-Activated Cation Currents and Myogenic Constriction in Retinal Arterioles. Investigative Ophthalmology & Visual Science. 57 (13), 5637-5647 (2016).
- Guidoboni, G., et al. Intraocular Pressure, Blood Pressure, and Retinal Blood Flow Autoregulation: A Mathematical Model to Clarify Their Relationship and Clinical Relevance. Investigative Ophthalmology & Visual Science. 55 (7), 4105-4118 (2014).
- Scholfield, C. N., Curtis, T. M. Heterogeneity in cytosolic calcium regulation among different microvascular smooth muscle cells of the rat retina. Microvascular Research. 59 (2), 233-242 (2000).
- Grynkiewicz, G., Poenie, M., Tsien, R. Y. A new generation of Ca2+ indicators with greatly improved fluorescence properties. Journal of Biological Chemistry. 260, 3440-3450 (1985).
- Sakmann, B., Neher, E. Single Channel Recording, Second Edition. , Plenum Press. New York. 53-90 (1995).
- Fernández, J. A., Bankhead, P., Zhou, H., McGeown, J. G., Curtis, T. M. Automated detection and measurement of isolated retinal arterioles by a combination of edge enhancement and cost analysis. PLoS One. 9, e91791(2014).
- McGahon, M. K., et al. Diabetes downregulates large-conductance Ca2+-activated potassium beta 1 channel subunit in retinal arteriolar smooth muscle. Circulation Research. 100 (5), 703-711 (2007).
- Curtis, T. M., Scholfield, C. N. Nifedipine blocks Ca2+ store refilling through a pathway not involving L-type Ca2+ channels in rabbit arteriolar smooth muscle. Journal of Physiology. 532 (3), 609-623 (2001).
- Tumelty, J., et al. Endothelin 1 stimulates Ca2+-sparks and oscillations in retinal arteriolar myocytes via IP3R and RyR-dependent Ca2+ release. Investigative Ophthalmology & Visual Science. 52 (6), 3874-3879 (2011).
- Huynh, K. W., et al. Structural insight into the assembly of TRPV channels. Structure. 22 (2), 260-268 (2014).
- McGahon, M. K., Dawicki, J. M., Scholfield, C. N., McGeown, J. G., Curtis, T. M. A-type potassium current in retinal arteriolar smooth muscle cells. Investigative Ophthalmology & Visual Science. 46 (9), 3281-3287 (2005).
- McGahon, M. K., Zhang, X., Scholfield, C. N., Curtis, T. M., McGeown, J. G. Selective downregulation of the BKbeta1 subunit in diabetic arteriolar myocytes. Channels (Austin). 1 (3), 141-143 (2007).
- Ljubimov, A. V., et al. Basement membrane abnormalities in human eyes with diabetic retinopathy. Journal of Histochemistry and Cytochemistry. 44, 1469-1479 (1996).
- Roy, S., Maiello, M., Lorenzi, M. Increased expression of basement membrane collagen in human diabetic retinopathy. Journal of Clinical Investigation. 93, 438-442 (1994).
- Scholfield, C. N., McGeown, J. G., Curtis, T. M. Cellular physiology of retinal and choroidal arteriolar smooth muscle cells. Microcirculation. 14 (1), 11-24 (2007).
- Hinds, K., Monaghan, K. P., Frølund, B., McGeown, J. G., Curtis, T. M. GABAergic control of arteriolar diameter in the rat retina. Investigative Ophthalmology & Visual Science. 54 (10), 6798-6805 (2013).
- Torring, M. S., Aalkjaer, C., Bek, T. Constriction of porcine retinal arterioles induced by endothelin-1 and the thromboxane analogue U46619 in vitro decreases with increasing vascular branching level. Acta Ophthalmologica. 92 (3), 232-237 (2014).
- P, S. kov J. ensen, S, M. etz M. ariendal P. edersen, Aalkjaer, C., Bek, T. The vasodilating effects of insulin and lactate are increased in precapillary arterioles in the porcine retina ex vivo. Acta Ophthalmologica. 94 (5), 454-462 (2016).
Herprints en machtigingen
