Een tandem RNA isolatie procedure (reis) voor herstel van endogeen gevormde mRNA-eiwitcomplexen wordt beschreven. Specifiek, RNA-eiwitcomplexen kruisverwijzende in vivo, polyadenylated RNAs zijn geïsoleerd uit extracten met oligo(dT) kralen en bepaalde mRNAs met gemodificeerde RNA antisense oligonucleotides worden vastgelegd. Eiwitten gebonden aan mRNAs worden gedetecteerd door analyse van de immunoblot.
Methodenartikel
Een Oligonucleotide gebaseerde Tandem RNA isolatie Procedure om te herstellen van eukaryotische mRNA-eiwitcomplexen
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
RNA-bindende proteïnen (RBPs) spelen een sleutelrol in de post-transcriptional controle op de genexpressie. Biochemische karakterisering van mRNA-eiwitcomplexen is daarom essentieel voor het begrip van mRNA verordening afgeleid door interacterende eiwitten of niet-coderende RNAs. Hierin beschrijven we een tandem RNA isolatie procedure (reis), waarmee de zuivering van endogeen gevormde mRNA-eiwitcomplexen van cellulaire extracten. Het in twee stappen-protocol omvat het isolement van mRNAs met antisense oligo(dT) kralen en de daaropvolgende inname van een mRNA van belang met 3'-biotinyleerd 2'-O-gemethyleerd antisense RNA oligonucleotides, die vervolgens kan worden geïsoleerd met polyadenylated daar de kralen. REIS werd gebruikt om te herstellen van in vivo kruisverwijzende mRNA-ribonucleoprotein (mRNP) complexen van gist, nematoden en menselijke cellen voor verdere RNA en eiwit analyse. REIS is dus een veelzijdige benadering die kan worden aangepast aan alle soorten polyadenylated RNAs over organismen te bestuderen van de dynamische opnieuw rangschikking van mRNPs opgelegd door intracellulaire of milieu signalen.
Inleiding
Post-transcriptional genregulatie wordt gedreven die rechtstreeks via de interacties tussen RNA-bindende proteïnen (RBPs), niet-coderende RNAs (ncRNAs) en mRNAs, de verwerking, de lokalisatie, de vertaling en de verval van elke transcript binnen cellen1 , 2. de identificatie van de RBPs en de ncRNA interactie met bijzondere mRNAs, tot oprichting van wat bekend staat als ribonucleoprotein complexen/deeltjes (RNPs), is daarom sleutel tot het begrijpen van het lot van mRNAs en gen expressie controle. Complementaire benaderingen worden uitgevoerd voor Biochemische karakterisering van RNP complexen3,4: terwijl de "eiwit-centric" aanpak op de zuivering van specifieke RBPs berust, de "RNA-centric" benadering houdt de isolatie van de subpopulaties of individuele RNAs en latere analyse van interacterende eiwitten of RNAs. Onlangs, een RNA-centric benadering voor de identificatie van het repertoire van de RBP interactie met polyadenylated (poly(A)) RNAs5 is steeds populairder geworden door de integratie van een ultraviolet (UV) licht crosslinking stap om te stabiliseren van eiwit-RNA interacties voorafgaande het isolement van mRNAs, die dramatisch uitgebreid de catalogus van RBPs in menselijke cellen6,7,8,9,10,11, Caenorhabditis elegans 12, saccharomyces cerevisiae12,13,14, en andere organismen15,16,17,18, 19,20. De toewijzing van eiwitten en/of ncRNAs gemonteerd op bepaalde Transcripten is echter nog steeds een grote uitdaging. Te dien einde, twee belangrijkste benaderingen worden momenteel gebruikt: aan de ene kant, RNA aptamer tags aan het RNA van belang om affiniteit zuivering worden gesmolten. Daarmee binden de RNA-aptamers met hoge affiniteit aminoglycoside antibiotica met inbegrip van tobramycine en streptomycine21,22,23,24, of eiwitten, zoals de vacht eiwitten uit de R17/MS2 bacteriofaag of bacteriële daar S125,26,27,28,29. Hoewel deze benadering werd aangetoond dat relatief robuust en veelzijdig, het vereist klonen ontwerp RNA onderzochte, en dus niet worden gebruikt voor het vastleggen van natuurlijke mRNAs. Aan de andere kant, antisense oligonucleotides (ASOs) werden al vroeg gebruikt voor het terugwinnen en karakterisering van sterk uitgedrukt inheemse RNPs30,31 en virale RNAs32. Meer recentelijk, ASOs werden toegepast om vast te leggen lang niet codering RNAs33,34,35 en in vitro gevormd mRNPs36. Één belangrijke beperkende factor met alle RNA centric benaderingen is het nummer van de kopie van het RNA van belang, waardoor het herstel van lage-uitgedrukt mRNAs problematischer. Deze beperking kan worden overwonnen door upscaling van de reactie; echter, dit kan potentieel leiden tot een toename van de achtergrond.
Hierin beschrijven we onze onlangs ontwikkelde ASO gebaseerde tandem RNA isolatie procedure (reis) te isoleren van inheemse mRNA-eiwitcomplexen met hoge selectiviteit37 (Figuur 1). Het protocol bestaat uit twee opeenvolgende ASO gebaseerde zuivering stappen, namelijk het isolement van poly(A) mRNAs met verkrijgbare oligo(dT) kralen gevolgd door het vastleggen van specifieke mRNAs met behulp van speciaal ontworpen korte biotinyleerd 2'-methoxy combinatie RNA ASOs. Deze procedure in twee fasen helpt elimineren van contaminerende eiwitten en voegt mogelijkheden voor aanpassingen en optimisatie. In dit geval reis werd toegepast op de geselecteerde mRNAs uit gist, nematoden, en menselijke cellen te bevestigen in vivo gevormde mRNA-eiwitcomplexen.
Protocol
1. design Antisense Oligonucleotides (ASOs)
- Het analyseren van de secundaire structuur van de mRNA of een fragment daarvan met behulp van beschikbare onlinetools38. Daarom Voer de nucleotide (nt) volgorde in het lege vak. Selecteer in het vak basisopties Minimum vrije energie (MFE) en de functie partition en voorkomen van geïsoleerde basenparen. Selecteer interactieve RNA secundaire structuur perceel in het vak uitvoer opties en ten slotte klikt u op Doorgaan . Een nieuw venster zal pop-up waarin de secundaire structuur van de mRNA van belang.
- Selecteer ten minste drie verschillende 21-24 nts lange reeksen binnen het mRNA van belang, bij voorkeur in regio's ontbreekt detecteerbare secondaire structuren (bv., in de ongestructureerde lusjes) en in 3' onvertaald regio's (UTR).
Opmerking: Men heeft opgemerkt dat ASOs gloeien aan sequenties in de 3' onvertaald regio's (UTR) best heeft gepresteerd. Een mogelijkheid is dat de ribosomen gebonden aan de codering volgorde (CDS) af en toe kunnen belemmeren het gloeien van ASOs. ASOs gloeien aan 5' UTRs zijn niet getest.- Selecteer de regio's met een verhouding van guanidine/cytosine bijna 50% en voorkom mogelijke vorming van haarspelden of zelf-onthardt ontbreekt nucleotide tandem herhaalt.
- Handmatig gewijzigd ontwerp 2'-methoxy RNA oligonucleotides rekening houdend met een groep van biotine op de 3', volledig complementair met de geselecteerde regio's (stap 1.2) binnen de gewenste doelgroep van mRNA.
Opmerking: 2'-methoxy wijzigingen geven de RNA-resistent tegen cellulaire RNases en verhoogt de duplex smelttemperatuur, die voorziet in strenge wassen. De groep van Biotine is vereist voor het vastleggen van ASOs met daar.- Aanpassen van de smelttemperatuur van de RNA-hybriden te ~ 60-65 ° C en ervoor te zorgen dat er een hoge taalkundige reeks complexiteit (> 60%) zoals bepaald met geschikte onlinetools39.
- De Basic Local Alignment Search Tool40 gebruiken om te zoeken naar potentiële ASO Kruis-kruising met andere mRNAs in transcriptome. Selecteer van de Nucleotide BLAST, de sequenties invoegen in het lege vak en selecteer het organisme van belang. Houden van de overige parameters als standaard en klik op BLAST.
Opmerking: Zelfs gedeeltelijke continue aanpassing van 8-10 nts kan leiden tot cross-hybridisatie en herstel van deze mRNA.
2. cel cultuur, UV-bestraling en cel Lysis
Opmerking: In de volgende, wordt de procedure beschreven voor ontluikende gist S. cerevisiae, nematoden C. elegansen menselijke embryonale nier cellen (HEK293). Echter kan het worden aangepast aan andere organismen evenals, hoewel het was expliciet nog niet getest.
- S. cerevisiae
- Gistcellen groeien (bv., stam BY4743 afgeleide; MATa/α his3Δ1/his3Δ1 leu2Δ0/leu2Δ0 LYS2/lys2Δ0 met15Δ0/MET15 ura3Δ0/ura3Δ0 PFK2:TAP / PFK2) in 500 mL YPD media (gistextract 1%, 2% pepton, 2% D-glucose) bij 30 ° C met constante schudden van 220 toeren per minuut.
- De cellen verzamelen in Mid log fase (optische dichtheid bij 600 nm (OD)600 ~ 0.6) door filtratie met behulp van 0,45 µm nylon filters of door middel van centrifugeren op 3.000 × g gedurende 2 minuten bij kamertemperatuur (RT). Gooi de doorstroming of het supernatant, respectievelijk.
- Spoel de cellen drie keer met 25 mL fosfaat-gebufferd-zoutoplossing (PBS) met behulp van de 0,45 µm nylon filter of verzamelen door centrifugeren bij 3.000 × g gedurende 2 min op RT en verwijder het supernatant. De cellen zo spoedig mogelijk de opgelegde stress kan een impact hebben op RNA-eiwit interacties verzamelen.
- Resuspendeer de cellen in 25 mL PBS en giet de schorsing in een 15 cm petrischaal. Zet de schotel op het ijs, en verwijder het deksel en bloot de cellen drie keer met 400 mJ cm-2 van 254 nm UV-licht in een UV-crosslinker met 2-min pauzes op ijs tussen elke cyclus van de blootstelling met zacht mengen.
- De cellen overbrengen in een tube van 50 mL en het verzamelen van de cellen door centrifugeren bij 3.000 × g gedurende 3 min bij 4 ° C. Verwijder het supernatant en houden de pellet.
Opmerking: Cellen kunnen module in vloeibare stikstof bevroren en opgeslagen bij-80 ° C. - Resuspendeer de cellen in gekoeld lysis-buffermengsel A 4 mL (LB-A; 100 mM Tris-HCl, pH 7.5, 500 mM LiCl, 10 mM EDTA, 1% Triton X-100, 5 mM DTT, 20 U ml-1 ik, 100 U ml-1 RNasin, volledig proteaseinhibitor cocktail EDTA-vrije DNase).
- Breng de cellen in twee buizen van 2 mL. Max toevoegen. ⅔ volumes van gekoeld glaskralen en breek de cellen in de lyser van een weefsel bij 30 Hz gedurende 10 minuten bij 4 ° C.
- Punch een gat in de onderkant van de buis met een hete naald en overdragen naar een verse 1,5 mL-buis de lysate centrifugeren bij 600 × g gedurende 30 s.
- Schakel de lysate door drie opeenvolgende centrifugations bij 4 ° C bij 3.000 × g gedurende 3 min, dan 5.000 × g en 10.000 × g voor elke 5 min.
Opmerking: Extracten kunnen worden module-ingevroren in vloeibare stikstof en opgeslagen bij-80 ° C.
- C. elegans
- Cultuur Bristol N2 wormen bij 20 ° C op Nematode groei Medium (NGM) platen (0.3% NaCl, 1,7% agar, 0,25% pepton, 1 mM CaCl2, 5 µg/mL cholesterol, 1 mM MgSO4, 25 mM KPO4 buffer, pH 6.0) bezaaid met de stam van de OP50 Escherichia coli 41 .
- Voeg 5 mL van de M9 buffer41 (0,3% KH2PO4, 0,6% Na2HPO4, 0,5% NaCl, 1 mM MgSO4) aan elke plaat, schud de plaat resuspendeer de wormen en de wormen overbrengen in een tube van 15 mL. Plaats 2 µL van de schorsing in een dia en tellen van de wormen in de suspensie met een microscoop. Dan gelden de factor voor het berekenen van het aantal wormen per plaat.
- Verzamelen ~ 120.000 wormen door centrifugeren bij kamertemperatuur (400 × g, 2 min, RT) en verwijder het supernatant.
- Spoel de wormen driemaal. Daarom Voeg 10 mL van de M9 buffer, Meng door inversie en verzamelen de wormen door centrifugeren bij 400 × g gedurende 2 min op RT.
- Voeg toe 15 mL M9 buffer naar de wormen en plaats op een hiervoor wiel gedurende 15 minuten op RT.
- De wormen overbrengen NGM platen (~ 4000 wormen per plaat) en bloot aan UV-licht (254 nm) op 300 mJ cm-2 in een UV-crosslinker.
- Voeg 5 mL van de M9 buffer rechtstreeks naar de plaat en schud de plaat om resuspendeer de wormen in de buffer. Spoel de suspensie met een pipet voor een tube van 15 mL en de wormen te verzamelen door middel van centrifugeren bij 400 × g gedurende 2 min op RT.
- Resuspendeer de wormen in 2 mL lysisbuffermengsel B (LB-B; 100 mM Tris-HCl, pH 8.0, 150 mM NaCl, 1 mM EDTA, 0,75% IGEPAL, 1 mM DTT, 20 U mL-1 ik, 100 U mL-1 RNasin, volledig proteaseinhibitor cocktail EDTA-vrije DNase).
- Het malen van de wormen in een vijzel gevuld met vloeibare stikstof. Verzamelen van het poeder in een tube 50 mL en dooi op RT.
Opmerking: Vloeibare stikstof moet worden behandeld volgens de veiligheidsprocedures (bijvoorbeeld een fume hood en veiligheid handschoenen) - Schakel de lysate met inbegrip van de vetlaag door centrifugeren bij 14.000 × g gedurende 10 minuten en daarna pas de geklaarde lysate door een 0,45 μm-filter met een spuit.
- Menselijke gekweekte cellen
Opmerking: De beschrijving die volgt is gebaseerd op voorbijgaande transfectie van HEK293 cellen met pGL3-CDKN1B-3'UTR verslaggever plasmide die de 3′UTR van CDKN1B/27 stroomafwaarts van de firefly luciferase gen42uitdrukt.- Cultuur HEK293 cellen in de Dulbecco bewerkt Eagle's Medium (DMEM) met 25 mM glucose en 1 mM natrium pyruvaat, aangevuld met 100 mL-1 penicilline, 100 µg mL-1 streptomycine en 10% foetale runderserum (FBS) van U en Incubeer bij 37 ° C in een bevochtigde cupje (incubator) met 5% CO2.
- Zaad ~ 3 × 10⁶ HEK293 cellen in een weefselkweek standaard 10 cm schotel eergisteren de transfectie. Telt de cellen met een hemocytometer.
- Meng 2 µg van de verslaggever gen (bv., pGL3-p27-3'UTR) met 20 µL van transfectiereagens en transfect van de cellen bij 70% confluentie (~ 7 × 10⁻⁶ cellen).
- Plaats de cellen in een incubator bij 37 ° C voor verdere 48 uur vóór het oogsten.
- Verwijder het medium met een serologische pipet en snel wassen de cellen tweemaal met 10 mL PBS vooraf opgewarmd bij 37 ° C. Verwijder PBS met een serologische pipet.
- Voeg 6 mL PBS toe aan de schotel, plaats op ijs en vervolgens bloot de cellen aan UV-licht (254 nm) op 100 mJ cm-2 in een UV-crosslinker.
Opmerking: De plaat moet worden bewaard op het ijs tijdens de blootstelling van UV-licht. - Schraap de cellen (in totaal aantal ~ 107 cellen) in PBS en overdracht aan een tube van 15 mL.
- Spin down de cellen bij 250 × g gedurende 10 minuten bij 4 ° C en verwijder de bovendrijvende vloeistof met een pipet.
Opmerking: De cel pellet kan worden module-ingevroren in vloeibare stikstof en opgeslagen bij-80 ° C tot gebruik. - Resuspendeer de cellen in 2 mL zuiver vooraf gekoeld lysis-buffermengsel (LB-A) op en neer waarbij eveneens voor 5 - 6 keer, terwijl de buis op ijs.
- Overbrengen in de lysate met een pipet een tube van 5 mL geplaatst op ijs.
- Behoudens de lysate naar drie rondes van ultrasoonapparaat bestaande uit 20 s barst bij 10 μm amplitude met 30 s van koeling perioden op ijs.
Opmerking: Ultrasoonapparaat wordt aanbevolen aangezien de lysis van cellen en het DNA fragmenten is voltooid. - Overbrengen in de lysate 2 mL tubes en centrifugeer bij 15.000 × g gedurende 10 minuten bij 4 ° C. De bovendrijvende vloeistof (= extract) verzamelen en overdracht aan een nieuwe buis. Verwijder een analysemonster (5-10%) voor verdere eiwitten en RNA analyse.
Opmerking: Deze stap is cruciaal voor het verwijderen van alle resterende cel puin en kan worden herhaald.
3. de eerste stap: Poly(A) RNA isolatie
- Equilibreer 1 mg oligo(dT)25-combinatie van magnetische kralen in 500 µL van de respectieve lysis-buffermengsel.
- Combineren van 5 mg, 10 mg of 4 mg (eiwit) van S. cerevisiae, C. elegans of HEK293 extracten, respectievelijk met 1 mg oligo(dT)25 -combinatie van magnetische kralen. Meng de monsters krachtig gedurende 10 min bij 25 ° C in een mixer.
Opmerking: Eiwit concentraties van fragmenten kunnen worden vastgesteld met de analyse van Bradford bovien serumalbumine (BSA) als een referentienorm gebruiken. Krachtig schudden van monsters voorkomt bezinking van kralen. Om te beoordelen van het specifieke karakter van mRNA isolatie, kan een controle-experiment worden uitgevoerd in parallel door toevoeging van een overmaat (20 µg) van polyadenylic zuren (pA). - Plaatsen van de buizen op een magnetische standaard voor 10 s en verwijder de bovendrijvende substantie. Bewaar het supernatant op ijs voor latere rondes van herstel (stap 3.7).
- Voeg toe 500 µL van wash buffer A (10 mM Tris-HCl, pH 7.5, 600 mM LiCl, 1 mM EDTA, 0,1% Triton X-100) aan de kralen en de vortex voor 5 s.
Opmerking: De concentratie van LiCl in de wash-buffers kan variëren. 600 mM LiCl wordt aanbevolen maar lagere concentraties werden ook getest (500 mM voor C. elegans, 300 mM voor HEK293). - Verzamel de kralen met een magneet en daarna wassen de kralen tweemaal met 500 µL van was buffer B (WB; 10 mM Tris-HCl, pH 7.5, 600 mM LiCl, 1 mM EDTA).
- Elueer de RNA in 30 µL van 10 mM Tris-HCl, pH 7.5 bij 80 ° C gedurende 2 min met continue schudden (1000 rpm) in een mixer. Onmiddellijk plaats van de buis in de magnetische stand en verzamelen van het eluaat na 10 s. opslaan de kralen voor extra rondes van zuivering.
Opmerking: Verzamelen het eluaat zo spoedig mogelijk om te voorkomen dat potentiële rebinding van mRNAs aan de kralen bij lagere temperaturen. - De parels uit de vorige stap toevoegen aan het supernatant verzameld bij stap 3.3 en herhaalt u de vangst, het wassen en de elutie van mRNAs tweemaal (stappen 3.3-3.6). De eluaten van herhaalde rondes worden vervolgens gecombineerd en kunnen worden opgeslagen bij-80 ° C.
4. tweede stap: het vastleggen van specifieke mRNAs met 3'-biotinyleerd 2-Methoxy Modified Antisense RNA Oligonucleotides
Opmerking: Om te testen de geschiktheid van ASOs, de volgende procedure kan worden uitgevoerd met totale RNAs geïsoleerd uit cellen.
- Equilibreer 30 µL van daar-coupled magnetische kralen in 1 mL bindende en wassen van de buffer (buffer van B & W; 10 mM Tris-HCl, pH 7.5, 150 mM NaCl, 0.5 mM EDTA, pH 8,0) met 0,1 mg mL-1Escherichia coli transfer-RNA (tRNA) op een rotator gedurende 1 uur bij RT.
- Wassen van de kralen driemaal met 750 µL van B & W buffer.
- Resuspendeer de kralen in 30 µL van B & W buffer en houd op ijs tot gebruik.
- Verdun ~ 35 µg totaal eiwit uit de vorige poly(A) isolatie (zie 3) in 100 µL van B & W buffer in een 1,5 mL-buis.
Opmerking: Om te testen de specificiteit van ASOs met totaal RNA, toevoegen 600 ng van gezuiverde totaal RNA naar 100 µL van B & W buffer. - Voeg 200 pmol van de respectieve ASO en Incubeer bij 70 ° C gedurende 5 minuten.
Opmerking: De verhoogde temperatuur verhelpt secondaire structuren in het RNA te vergemakkelijken het gloeien van de ASO. - De gehele warmte-blok verwijderen van het apparaat en plaats het op RT voor 10 min langzaam afkoelen.
- Voeg 30 µL van geëquilibreerd daar-coupled magnetische kralen uit stap 4.1 aan het monster.
- Incubeer het mengsel gedurende 30 minuten bij 25 ° C met constante schudden bij 950 rpm in een mixer.
Opmerking: Het is aanbevolen om flick de buizen elke 10 min om te voorkomen dat de bezinking van kralen. - Plaatsen van de buizen op de magnetische stand, verwijder het supernatant en wassen van de kralen driemaal met 750 µL voorverwarmde B & W buffer bij 55 ° C.
Opmerking: De optimale wassen temperatuur kan iets verschillen/verschillen tussen verschillende ASOs. Het is aanbevolen om het aanpassen van deze voorwaarde met niet-kruisverwijzende totaal RNA voorafgaande uitvoeren van het experiment met cel extracten. - Elueer de RNA in 20 µL van 10 mM Tris-HCl, pH 7.5 bij 90 ° C gedurende 10 minuten met constante schudden bij 950 rpm in een mixer. Plaats de buizen in de magnetische staan en onmiddellijk verzamelen het eluaat.
Opmerking: Voor eiwit analyse, Voeg 20 µL van 1 × Laemmli buffer naar de kralen en Incubeer bij 95 ° C voor 5 min. eiwitten worden gecontroleerd door analyse van de immunoblot standaard laboratorium protocollen.
Resultaten
Ontwikkelden we een ASO gebaseerde RNA isolatie strategie, reis, om vast te leggen van bepaalde mRNAs met hun afhankelijke eiwitten uit drie verschillende organismen37genoemd. In wezen, RNA-eiwitcomplexen kruisverwijzende in vivo werden door UV-bestraling van de cellen bij 254 nm, en poly(A) van de RNAs werden teruggevonden met de combinatie-magnetische kralen verkrijgbare oligo (dT), dan de mRNA van belang was geïsoleerd met 3'-biotinyleerd 2-0'-methoxy bewerkt antisense RNA oligonucleotides (Figuur 1). Wij daarom verschillende 21-24 nts bewerkt ASOs met full-complementariteit ontworpen om regio's in de geselecteerde mRNAs van gist, C. elegans en mens en getest hun geschiktheid om te herstellen van de mRNA van belang (een lijst met primers en ASOs is gegeven in tabel 1). de efficiëntie en de specificiteit van individuele ASOs werden eerst geëvalueerd met niet-kruisverwijzende totaal RNA geïsoleerd van het desbetreffende organisme. In deze experimenten, waren RNA ASOs gekoppeld aan streptavidine-geconjugeerde paramagnetisch kralen en geïncubeerd met niet-kruisverwijzende totaal RNA bereid uit het desbetreffende organisme. Na de vrijlating van gevangen mRNAs uit de parels, de aanwezigheid van mRNA richt zich ook als onafhankelijke controle mRNAs werd bewaakt door omgekeerde transcriptie (RT)-polymerase kettingreactie (PCR)37. We merkten dat twee variabelen, de zoutconcentratie en de temperatuur van wassen buffers, speelde belangrijke rol in de efficiëntie van de vangst van mRNA van de PFK2 uit gist die werd getest met drie verschillende ASOs (figuur 2A). Verlaging van de zoutconcentratie (NaCl) tot 25 mM verlaagd het herstel van de negatieve controle mRNA (PFK1) aan niet-detecteerbare niveaus met alle ASOs, maar het verminderd ook het herstel van de gewenste doelgroep mRNA PFK2 (10-15% van de invoer). Omgekeerd, een stijging van het zout concentraties aan fysiologische niveaus (150 mM NaCl) tot 75% met de PFK2-2, van de ASO meer dan die van het besturingselement PFK1 het herstel van PFK2 mRNAs verlengd mRNA door ten minste 5-fold (figuur 2A). Verdere Opmerking sprake de verschillende ASOs van grote variatie van mRNA doel vastleggen efficacies bij fysiologische zout-concentraties, nadruk op de noodzaak van empirische bekrachtiging van ASOs. De afhankelijkheid van mRNA herstel van de temperatuur van de was-buffer wordt geïllustreerd voor C. elegans cep-1 en gist RPS20 mRNAs, met behulp van de respectieve ASOs (tabel 1). We hebben vastgesteld dat de temperatuur van de optimale wassen tussen 50 ° C en 55 ° C, zoals blijkt uit de lage achtergrond met niet-verwante mRNAs en het efficiënt herstel van mRNAs target (figuur 2B was). Op dit punt, willen wij benadrukken van de mogelijkheid van dwars-kruising van ASOs met andere mRNAs. Bijvoorbeeld, de DNM1-ASO is volledig complementair aan een reeks binnen de DNM1 reeks codering, maar het ook gedeeltelijk anneals met ACT1 mRNA. DNM1 ASOs hersteld beide mRNAs ongeacht de temperatuur wassen, waaruit blijkt sterke neiging voor cross-hybridisatie (figuur 2C). Tot slot hebben we gebruik gemaakt van de hierboven beschreven tests en optimalisaties aan Selecteer drie ASOs die waren geschikt voor het herstel van de respectieve doel mRNAs uit totaal RNA van S. cerevisiae, C. elegans en menselijke cellen (figuur 2D geïsoleerd ).
Na de eerste selectie van geschikte ASOs in vitro we reis uitgevoerd met cel extracten verkregen UV-kruisverwijzende organismen/cellen (Figuur 1). Specifiek, we het herstel van drie verschillende mRNAs uit drie verschillende organismen getest: PFK2 mRNA uit de gist S. cerevisiae, cep-1 uit de nematode C. elegans, en een verslaggever mRNA (pGL3-CDKN1B-3'UTR) rekening houdend met de 3' UTR volgorde van menselijke CDKN1B/p27 mRNA gesmolten tot een luciferase (luc)-verslaggever voor voorbijgaande expressie in menselijke HEK293 cellen. Om te controleren de specificiteit van de RNA-isolatie, gecontroleerd we het herstel van verschillende niet-verwante mRNAs, en we concurrentie experimenten uitgevoerd door de toevoeging van een overmaat van pA op cel extracten, die met de binding van cellulaire mRNAs te oligo(dT)25 concurreert kralen tijdens de eerste stap voor zuivering. Zoals eerder gezien met niet-kruisverwijzende totaal RNA samples (Figuur 2), RT-PCR bevestigd de verrijking van de respectieve mRNAs mRNA richten tijdens reis, overwegende dat verschillende niet-verwante controle mRNAs waren niet verrijkt (figuur 3A). Bovendien waren noch mRNAs ontdekt op kralen zonder ASOs, die passende blokkerende procedures die het vermijden van aspecifieke bindende aangeeft. Op deze regel, kunnen die niets/krabbelde ASOs ook worden gebruikt als controle, hoewel de mogelijkheden voor cross-hybridisatie met bepaalde mRNAs en de afgeleid opname van afhankelijke eiwitten dan moet rekening worden gehouden. Aangezien eiwitten in het definitieve eluaat kon nauwelijks worden gevisualiseerd op zilver gebeitste polyacrylamide gels (gegevens niet worden weergegeven), was de aanwezigheid van eerder bekende mRNA interacterende eiwitten verder beoordeeld door analyse van de immunoblot. Dit omvat Pfk2p van S. cerevisiae, dat selectief aan PFK2 mRNA in een ribosoom onafhankelijk12 bindt; C. elegans GLD-1, een canonieke RBP die aan 3' UTR sequenties van cep-1 bindt mRNA voor translationeel verordening43; en HuR, een RBP dat mRNA stabiliteit en vertaling van p27/CDKN1B mRNA44 regelt. Zoals verwacht, waren alle van deze eiwitten in de eluaten van de reis van de respectieve mRNAs geïdentificeerd door Western Blot analyse (figuur 3B).
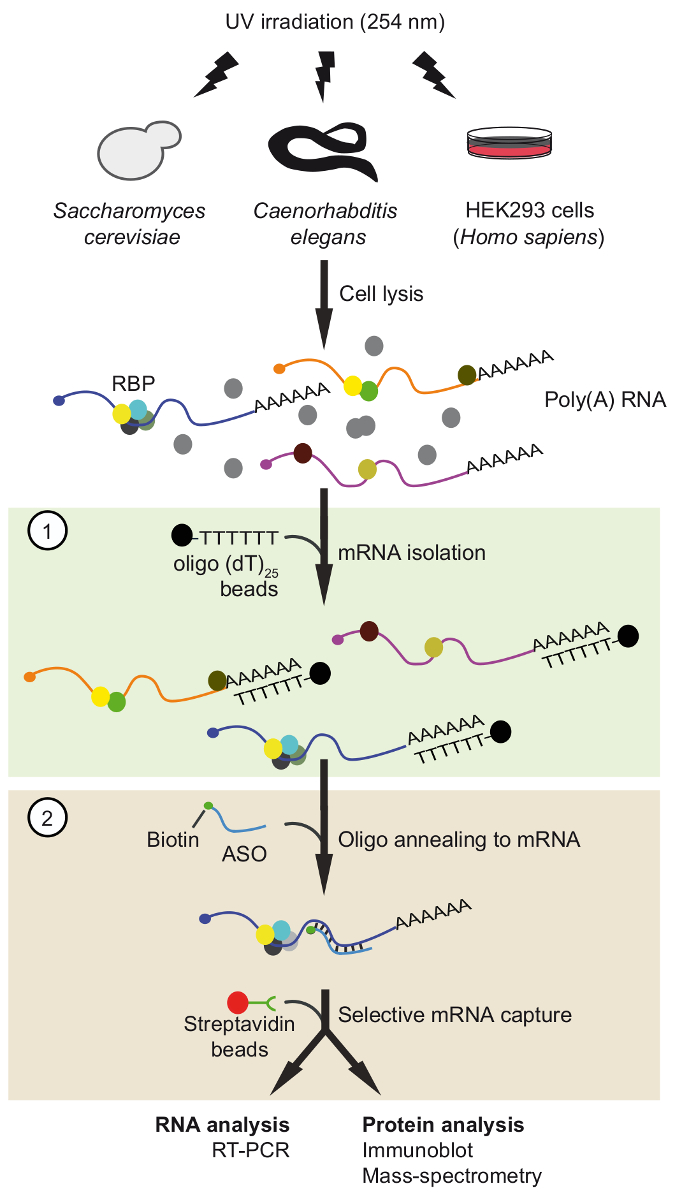
Figuur 1. Schematische weergave van TRIP. Eiwitten zijn kruisverwijzende RNA in vivo door UV-bestraling. In de eerste stap (groene lichtbak), poly(A), RNA-eiwit complexen hersteld met oligo(dT)25 parels strenge wassen voorwaarden voor het verwijderen van niet-afhankelijke eiwitten toe te passen. In de tweede stap (roze doos), de mRNP van de doelgroep is getrokken-out met biotinyleerd antisense RNA oligonucleotides en daar parels. Het gezuiverde mRNPs worden vervolgens geanalyseerd door RT-PCR en immunoblot/massa-spectrometrie (MS) om RNAs en eiwitten interactie met het mRNA van belang, respectievelijk te identificeren. Het cijfer werd vanaf vorige publicatie37 met toestemming gewijzigd. Klik hier voor een grotere versie van dit cijfer.

Figuur 2. Isolatie van geselecteerde mRNAs uit totaal RNA van niet-kruisverwijzende cellen/organismen met behulp van gemodificeerde antisense RNA vangen sondes. (A) gevolgen van zout concentraties op het vastleggen van de efficiëntie van de gist PFK2 mRNA met ASOs. Totaal RNA van gistcellen werd gecombineerd met de aangegeven ASOs en gewassen met buffer met de opgegeven zout (NaCl) concentratie bij 55 ° C. Groen, blauw en oranje lijnen vertegenwoordigen PFK2 mRNA herstel met verschillende ASOs zoals bepaald door RT-PCR37: PFK2-1 en PFK2 -2 gloeien in de 3' UTR, PFK2-4 in de CDS. PFK1 is een negatieve controle van mRNA. PCR is uitgevoerd met 32 amplificatie cycli en gekwantificeerd als eerder beschreven37. (B) breuk van C. eleganscep-1 en gist RPS20 ASO gebonden mRNAs bij verschillende wassen temperaturen, vertegenwoordigd in zwarte en rode lijnen, respectievelijk. C. eleganspgk-1 en gist ACT1 zijn niet-doelsoorten (control) mRNAs. 30 en 32 cycli van PCR werden toegepast voor detectie van gist en C. elegans mRNAs, respectievelijk. (C) Schematische weergave van de kruising van DNM1 ASO (rood) met sequenties in de DNM1 mRNA, alsmede potentiële Kruis-kruising met ACT1 mRNA wordt weergegeven aan de linkerkant. Een agarose gel met producten van RT-PCR reacties (30 cycli) voor het opsporen van gist DNM1 en ACT1 mRNAs geëlueerd van kralen wordt weergegeven aan de rechterkant. Input, totaal RNA; SN, supernatans dat na incubatie met ASOs; E, eluaten van kralen gewassen op aangegeven temperatuur voorafgaande elutie (40 ° C, 50 ° C en 60 ° C). Een experiment van de control (Ctrl) werd zonder toevoeging van ASO in parallel uitgevoerd. (D) Agarose gel met RT-PCR producten voor de detectie van mRNAs (rechts) gevangen uit totaal RNA van gist S. cerevisiae, C. elegansen menselijke cellen van de HEK293 (H. sapiens). Input, totaal RNA; SN, supernatant; E, eluaten van de kralen. PCR werd uitgevoerd door 30 amplificatie cycli voor gist mRNAs, 32 cycli voor C. elegans mRNAs, en 28 en 30 cycli voor menselijke tubuline en p27 mRNAs, respectievelijk. Het cijfer werd vanaf vorige publicatie37 met toestemming gewijzigd. Klik hier voor een grotere versie van dit cijfer.

Figuur 3. Inname van specifieke mRNA-eiwitcomplexen uit extracten afgeleid van UV kruisverwijzende cellen met reis. (A) Agarose gels voor de detectie van mRNAs (rechts) met RT-PCR op vastleggen met oligo(dT) en aangegeven ASOs van S. cerevisiae, C. elegans en mens (H. sapiens) cel extracten. Input, totaal RNA van kruisverwijzende cellen/organismen; CTRL, controle zonder ASO. Poly(A), competitie met poly(A). RT-PCR werd uitgevoerd als beschreven37 met 35 amplificatie cycli voor LUC, 32 cycli voor p27, en 29 cycli voor tubuline. (B) Immunoblot analyse van mRNA-gebonden eiwitten met aangegeven antilichamen (rechts). Geladen breuken zijn als volgt: 0,1%, 2,5% en 1% voor gist, nematoden en menselijke ingangen; 10%, 10% en 5% voor gist, nematoden en menselijke oligo(dT) rijstroken; en 66% voor alle ASOs rijstroken. Molecuulgewicht (MW) worden aangegeven in kilodaltons (kDa). Figuur gepubliceerd met toestemming37. Klik hier voor een grotere versie van dit cijfer.
| De naam van de primer | Volgorde | Doel | Grootte | |
| Pfk2_Fwd | GTGTTAAGGGTTCACATGTCG | PFK2 S. cerevisiae | 133 bp | |
| Pfk2_Rev | CTTCCAACCAAATGGTCAGC | PFK2 S. cerevisiae | 133 bp | |
| Pfk1_Fwd | GGTGATTCTCCAGGTATGAATG | PFK1 S. cerevisiae | 97 bp | |
| Pfk1_Rev | CTTCGTAACCTTCGTAAACAGC | PFK1 S. cerevisiae | 97 bp | |
| Act1_Fwd | GTCTGGATTGGTGGTTCTATC | ACT1 S. cerevisiae | 85 bp | |
| Act1_Rev | GGACCACTTTCGTCGTATTC | ACT1 S. cerevisiae | 85 bp | |
| Dnm1_Fwd | CTGTGTTCGATGCATCAGAC | DNM1 S. cerevisiae | 156 bp | |
| Dnm1_Rev | CGCACTCCAATTCTTCTCTC | DNM1 S. cerevisiae | 156 bp | |
| Rps20_Fwd | CGCTGAACAACACAACTTGG | RPS20 S. cerevisiae | 228 bp | |
| Rps20_Rev | GGAAGCAACAACAACTTCGAC | RPS20 S. cerevisiae | 228 bp | |
| Cep1_Fwd | CGATGAAGAGAAGTCGCTGT | CEP-1 C. elegans | 110 bp | |
| Cep1_Rev | ATCTGGGAACTTTTGCTTCG | CEP-1 C. elegans | 110 bp | |
| Pgk1_Fwd | GCGATATTTATGTCAATGATGCTTTC | PGK-1 C. elegans | 74 bp | |
| Pgk1_Rev | TGAGTGCTCGACTCCAACCA | PGK-1 C. elegans | 74 bp | |
| Mpk1_Fwd | TGCTCAGTAATCGGCCATTG | MPK-1 C. elegans | 74 bp | |
| Mpk1_Rev | TCCAACAACTGCCAAAATCAAA | MPK-1 C. elegans | 74 bp | |
| p27_Fwd | TTTAAAAATACATATCGCTGACTTCATGG | P27 H. sapiens | 212 bp | |
| p27_Rev | CAAAGTTTATGTGCTACATAAAAGGTAAAAA | P27 H. sapiens | 212 bp | |
| Luc_Fwd | AATGGCTCATATCGCTCCTGGAT | Luciferase P. pγralis | 117 bp | |
| Luc_Rev | TGGACGATGGCCTTGATCTTGTCT | Luciferase P. pγralis | 117 bp | |
| Β-TUBULIN_Fwd | CTGAACCACCTTGTCTCAGC | Β-TUBULINE H. sapiens | 136 bp | |
| Β-TUBULIN_Rev | AGCCAGGCATAAAGAAATGG | Β-TUBULINE H. sapiens | 136 bp | |
| PFK2-1-ASO | AAUAGAAAGUGUAAUAAAAGGUCAU | 3' UTR PFK2 S. cerevisiae | - | |
| PFK2-2-ASO | GUUUCAUGGGGUAGUACUUGU | 3' UTR PFK2 S. cerevisiae | - | |
| PFK2-4 ASO | CUUGAAGAGGAGCGUUCAUA | ORF PFK2 S. cerevisiae | - | |
| DNM1 ASO | UCGGUCAGUGGAGGUUCAGCGUUU | ORF DNM1 S. cerevisiae | - | |
| RPS20 ASO | GUCGGUAAUAGCCUUCUCAUUCUUG | ORF RPS20 S. cerevisiae | - | |
| CEP-1 ASO | GUGAGAAAUGCGGUGCUUUGAAA | 3' UTR cep-1 C. elegans | - | |
| P27 ASO | UCAUACCCCGCUCCACGUCAGUU | 3' UTR p27 H. sapiens | - | |
Tabel 1. Oligonucleotide sequenties. Lijst van PCR inleidingen en ASOs gebruikt in dit werk, de opeenvolging van de primer, de gene doel en de verwachte fragment grootte na versterking.
Discussie
REIS staat de analyse van proteïnen gebonden aan specifieke mRNAs in vivo biochemische middelen. Terwijl wij de methode gebruikt hebben voor het valideren van de interactie van bepaalde RBPs met mRNA doelen uit verschillende organismen/cellen, kon reis ook gelden voor het bestuderen van andere soorten poly(A) RNAs, zoals cytoplasmatische lange ncRNAs. Bovendien, systematische analyse van afhankelijke eiwitten en/of RNAs met MS of RNA sequencing kon worden bereikt door een opschalen van de procedure. In dit verband blijkt onze voorlopige gegevens dat 1 L van gist culturen en ten minste 100 miljoen van menselijke HEK293 cellen voldoende grondstof om betrouwbare gegevens van de MS voor goed uitgedrukt mRNAs te verkrijgen bieden kunnen (ongepubliceerd resultaten).
De beschreven reis-protocol bevat dedoorstraling van cellen met UV-licht op 254 nm tot dwarslijn RNA-eiwit interacties. Hierdoor is de tenuitvoerlegging van strenge wassen voorwaarden tijdens het zuiveringsproces ongehinderd. Niettemin, hoewel niet expliciet wordt getest, wij wensen te merken dat crosslinking optioneel is en actieve RNPs kunnen ook worden teruggevorderd met fysiologische buffers. Echter, in dit geval de potentiële nieuwe regeling van eiwitten en/of RNAs op de doelgroep RNA in lysates moet rekening worden gehouden. Omgekeerd, als UV- of andere crosslinking procedures zijn toegepast (bijvoorbeeldformaldehyde), de integriteit van het RNA moet worden geëvalueerd zoals de aantasting van het RNA tot verminderde herstel van mRNPs leiden kan. Bovendien UV-crosslinking is nogal inefficiënt (~ 5%) en nog minder dus voor eiwitten interactie met double-stranded RNA, die kon voeren bias voor de opsporing van bepaalde soorten RBPs12. UV bestraling kan ten slotte ook leiden tot eiwit-eiwit en eiwit-DNA crosslinks die u voor45,46van de interpretatie van de gegevens overwegen moet. Alternatieve crosslinking procedures, bijvoorbeeld met formaldehyde, zou daarom ook van bijzonder belang zijn voor het vastleggen van grotere eiwit-assembly's in mRNAs.
Een belangrijk kenmerk van de reis is de tweestaps zuivering ASO gebaseerde procedure om bepaalde RNAs, waardoor selectiviteit en verminderen de kans op co zuiveren contaminanten te herstellen. Bijvoorbeeld, betreft een punt van zorg biotinyleerd ASOs rechtstreeks aan cel extracten, die tot co zuivering van biotine-bindende proteïnen leiden kunnen toe te voegen. Dit is omzeild in reis door de uitvoering van een eerste ronde van de zuivering van poly(A) RNAs met behulp van covalent gekoppelde oligo-(dT)25 magnetische kralen, die voorziet in strenge zuivering voorwaarden zoals gedaan voor het vastleggen van RNA-eiwit interactome. Bovendien poly(A) RNA selectie verwijdert zeer overvloedige ncRNAs, zoals ribosomaal RNAs en tRNAs, en daarom vermindert de complexiteit van het monster en de potentiële bronnen voor cross-hybridisatie en verontreiniging. In de tweede stap, bijzondere mRNAs worden hersteld met biotinyleerd en bewerkt ASOs die met regio's over de doelstellingen van mRNA gloeien. Als alternatief, gemodificeerde ASOs kunnen ook worden direct covalent gehecht aan magnetische kralen via een amine-linker, verminderen de neiging om vast te leggen van biotine bindende proteïnen. Echter in onze ervaring hersteld de incubatie van de Fractie van de poly(A)-RNA met ASOs voordat het prestatiemeteritembestand van daar kralen mRNPs efficiënter dan directe toevoeging van ASO-coupled kralen. Gratis oligos worden eventueel kinetisch begunstigd met betere toegang tot sequenties in gestructureerde RNA in vergelijking met geïmmobiliseerdet oligos. Vandaar, de covalente koppeling van ASOs aan kralen vóór de incubatie met het monster zou nadelig zijn voor herstel van het RNA-doel en empirisch worden getest.
Een nadeel met ASO gebaseerde methoden is inefficiënt herstel van sommige mRNAs doel. We raden daarom de evaluatie van verschillende ASOs die gloeien naar verschillende regio's van de chat-kopie. Wij stellen in het bijzonder voor het ontwerp van 2-3-ASOs die met sequenties in de 3'-UTR gloeien of de cd's van de mRNA van belang. Elke ASO kan vertonen een verschillende efficiëntie voor het herstel van de respectieve mRNA doelstelling en moet empirisch getest (figuur 2A, B, gegevens niet worden weergegeven). Aan het einde vonden we dat ASOs gloeien aan de 3'-UTRs beter gepresteerd ten opzichte van degene die gloeien op cd's. Dit kan te wijten zijn aan grotere toegankelijkheid van bindende sites in UTRs wegens het ontbreken van het vertalen van ribosomen, overwegende dat de ribosomen efficiënte hybridisatie binnen cd's kunnen belemmeren. We ervaren ook dat combinatie van verschillende ASOs kan leiden tot meer verontreiniging van overvloedige doelsoort mRNAs en verminderde efficiëntie van de pull-down. In ieder geval de selectiviteit van de gekozen oligos kan worden gecontroleerd door concurrentie experimenten (bijv., toevoeging van concurrerende oligos).
Een verdere bezorgd om potentiële Kruis-kruising met niet-verwante RNAs, zoals we dat zelfs een gedeeltelijke kruising met andere mRNAs opgemerkt kan leiden tot het herstel van dat mRNA (figuur 2C). Wij raden daarom om te beoordelen van de geschiktheid van de ontworpen ASOs, uitvoeren van initiële in vitro testen met totale RNAs om concentraties van zout en wassen temperatuur van buffers te optimaliseren. In onze handen, wassen van magnetische kralen in buffers met 150 mM streptavidine-combinatie NaCl bij 55 ° C best heeft gepresteerd, maar we raden onafhankelijke tests van de voorwaarden voor elk ontworpen ASO. Opmerkelijk, vonden we dat alle ASOs geselecteerd uit in vitro experimenten (figuur 2D) geschikt voor het vastleggen van de respectieve mRNA doelstelling uit kruisverwijzende cel extracten (Figuur 3) waren, verder ter staving van de geldigheid van in vitro testen. Naast het ontwerpen geschikt ASOs voor het vastleggen van mRNA, kunnen bijkomende factoren invloed op selectiviteit. Dus kunnen uitgebreide blokkerende procedures met BSA en/of tRNA volgens de specificaties van het type parel belemmering voor aspecifieke binding met kralen. Verklein verder aspecifieke absorptie van eiwitten en raden we ook het gebruik van Lo-bind buizen, vooral bij het werken met lage bedragen van monsters.
In het algemeen, kan de reis eerder vastgestelde benaderingen om vast te leggen van de RNAs met ASOs aanvullen. Bijvoorbeeld, was de niet-coderende RNA Xist geïsoleerd met afhankelijke eiwitten uit nucleaire extracten afgeleid van 200-800 miljoen UV kruisverwijzende cellen met behulp van een array van lang (90-mer) biotinyleerd DNA oligonucleotides waarop het volledige afschrift 34,35. Echter de aanpak gekozen tegels kan worden problematisch in het licht van het grote potentieel voor cross-hybridisatie met niet-verwante RNAs, en het kan niet worden gebruikt om te selecteren van specifieke transcript, bijv., als alternatief verbinding aan de randen vormen. Onlangs, speciaal ontworpen vergrendelde nucleïnezuur (LNA) of DNA ASO mixmers covalent aangesloten op een magnetische hars in vitro transcriptie of zeer uitgesproken ribosomaal RNAs herstellen van cel-vrije extracten; het was echter niet getest voor het herstel van in vivo gevormde mRNA-eiwit complexen36. In het licht van de toegenomen erkenning van post-transcriptional gen controle door RBPs en ncRNA, wij zijn van mening dat de reis is een handige methode om de samenstelling en dynamiek van RNP complexen binnen cellen op intracellulaire en milieu signalen en het effect ervan te onderzoeken in gezondheid en ziekte.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Wij zijn dankbaar aan Dr. Jonathan Hall en Mauro Zimmermann (ETH Zürich) voor de synthese van PFK2 en cep-1 ASOs, Dr. Maikel Wouters voor het ontwerp van ASOs p27/CDKN1B, en Dr. Rafal Ciosk (Friedrich Miescher Instituut voor biomedisch onderzoek, Basel) voor anti-GLD-1 antilichamen. Dit werk werd gesteund door de biotechnologie en biologische Sciences Research Council (BB/K009303/1) en een Royal Society Wolfson onderzoek Merit Award (WM170036) naar A.P.G.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| MaxQ 5000 Large Incubated and Refrigerated Orbital Shaker | Thermo Fisher Scientific | SHKE5000-8CE | Floor shaker to grow yeast cells |
| BBD 6220 | Thermo Fisher Scientific | CO2 incubator to grow human cells | |
| Sonicator Soniprep150 | MSE | MSS150.CX4.5 | Sonicator/cell disruptor. Used to shear DNA in human cell lysates |
| Stratalinker 1800 | Stratagene | Stratalinker to expose cells to UV light at 254 nm | |
| Tissue Lyser | Qiagen | RETSCH MM200 | Device to mechanically disrupt yeast cells |
| Refrigerated Centrifuge | Eppendorf | 5810R | Centrifuge to spin down cells, lysates |
| Shaking incubator, Thriller | Peqlab | Thermoshaker for 1.5 mL tubes | |
| Glass beads 0.5mm | Stratech Scientific Limited | 11079105 | Lysis of yeast cells |
| Nylon Filter, 0.41 μm | Millipore | NY4104700 | Collection of yeast cells |
| Millex-HA Filter, 0.45 µm | EMD Millipore | SLHA02510 | Filter to clear nematode lysate |
| Eppendorf LoBind microcentrifuge tubes Protein 1.5 mL | Sigma-Aldrich | 22431081 | Minimise protein loss |
| 2 mL microfuge tube | Ambion | AM12425 | Yeast extract preparation and other applications |
| 5 mL tube | Thermo Fisher Scientific | 129A | Collection of HEK293 cell lysate |
| 15 mL tube | Sarstedt | 62.547.254 | Collection C. elegans |
| 50 mL plastic tube | Sarstedt | 62.554.502 | Collection yeast cells |
| DMEM, high glucose, pyruvate | Thermo Fisher Scientific | 41966 | Media for culturing HEK293 cells |
| Penicillin-Streptomycin | Sigma-Aldrich | P4333 | Used to supplement cell culture media to control bacterial contamination |
| Fetal Bovine Serum (FBS) | Sigma-Aldrich | F7524 | Used to supplement cell culture media |
| Lipofectamine 2000 | Thermo Fisher Scientific | 11668027 | Transfection reagent |
| RQ1 RNase-Free DNase | Promega | M6101 | DNAse I to degrade DNA from cell lysate |
| RNasin Plus RNase Inhibitor | Promega | N2611 | RNase inhibitor to avoid RNA degradation |
| cOmplete, Mini, EDTA-free Protease Inhibitor Cocktail | Roche | 11836170001 | Protease inhibitor cocktail to avoid protein degradation |
| Dynabeads Oligo (dT)25 | Thermo Fisher Scientific | 61011 | Magnetic beads required for the first step of mRNA-protein complex purification |
| Dynabeads M-280 Streptavidin | Thermo Fisher Scientific | 11205D | Magnetic beads required for the second step of mRNA-protein complex purification |
| E. coli tRNA | Sigma-Aldrich | 10109550001 | transfer RNA from E. coli used for blocking streptavidin beads and avoid unspecific interactions |
| Quick Start Bradford 1x Dye Reagent | BioRad | 5000205 | To determine protein concentration within lysates, using BSA as reference |
| Bovine Serum Albumin | Sigma | A7906-100G | Used to perform the standard curve that will be used as reference for protein concentration determination |
| mouse anti-Act1 | MP Biomedicals | 869100 | Antibody for detection of yeast actin in Western blot (1:2,500) |
| mouse anti-Act1 | Sigma | A1978 | Antibody for detection of human actin in Western blot (1:2,000) |
| mouse anti-HuR | Santa Cruz | sc-5261 | Antibody for detection of HuR in Western blot (1:500) |
| mouse anti–CYC-1 | Invitrogen | 456100 | Antibody for detection of Cyc-1 in Western blot (1:1,000) |
| peroxidase anti-peroxidase soluble complex | Sigma | P1291 | Detection of Pfk2:TAP in Western blot (1:5,000) |
| HRP-conjugated sheep anti-mouse IgG | Amersham | NXA931 | HRP-coupled secondary antibody |
Referenties
- Mitchell, S. F., Parker, R. Principles and properties of eukaryotic mRNPs. Molecular Cell. 54 (4), 547-558 (2014).
- Iadevaia, V., Gerber, A. P. Combinatorial Control of mRNA Fates by RNA-Binding Proteins and Non-Coding RNAs. Biomolecules. 5 (4), 2207-2222 (2015).
- McHugh, C. A., Russell, P., Guttman, M. Methods for comprehensive experimental identification of RNA-protein interactions. Genome Biology. 15 (1), 203(2014).
- Matia-González, A. M., Gerber, A. P. Ch. 14. Fungal RNA Biology. Sesma, A., von der Haar, T. , Springer. 347-370 (2014).
- Tsvetanova, N. G., Klass, D. M., Salzman, J., Brown, P. O. Proteome-wide search reveals unexpected RNA-binding proteins in Saccharomyces cerevisiae. PLoS One. 5 (9), (2010).
- Castello, A., et al. Insights into RNA biology from an atlas of mammalian mRNA-binding proteins. Cell. 149 (6), 1393-1406 (2012).
- Baltz, A. G., et al. The mRNA-bound proteome and its global occupancy profile on protein-coding transcripts. Molecular Cell. 46 (5), 674-690 (2012).
- Castello, A., et al. System-wide identification of RNA-binding proteins by interactome capture. Nature Protocols. 8 (3), 491-500 (2013).
- Liao, Y., et al. The Cardiomyocyte RNA-Binding Proteome: Links to Intermediary Metabolism and Heart Disease. Cell Reports. 16 (5), 1456-1469 (2016).
- Liepelt, A., et al. Identification of RNA-binding Proteins in Macrophages by Interactome Capture. Molecular Cell Proteomics. 15 (8), 2699-2714 (2016).
- Conrad, T., et al. Serial interactome capture of the human cell nucleus. Nature Communications. 7, 11212(2016).
- Matia-Gonzalez, A. M., Laing, E. E., Gerber, A. P. Conserved mRNA-binding proteomes in eukaryotic organisms. Nature Structural and Molecular Biology. 22 (12), 1027-1033 (2015).
- Mitchell, S. F., Jain, S., She, M., Parker, R. Global analysis of yeast mRNPs. Nature Structural and Molecular Biology. 20 (1), 127-133 (2013).
- Beckmann, B. M., et al. The RNA-binding proteomes from yeast to man harbour conserved enigmRBPs. Nature Communications. 6, 10127(2015).
- Wessels, H. H., et al. The mRNA-bound proteome of the early fly embryo. Genome Research. 26 (7), 1000-1009 (2016).
- Sysoev, V. O., et al. Global changes of the RNA-bound proteome during the maternal-to-zygotic transition in Drosophila. Nature Communications. 7, 12128(2016).
- Despic, V., et al. Dynamic RNA-protein interactions underlie the zebrafish maternal-to-zygotic transition. Genome Research. 27 (7), 1184-1194 (2017).
- Zhang, Z., et al. UV crosslinked mRNA-binding proteins captured from leaf mesophyll protoplasts. Plant Methods. 12, 42(2016).
- Reichel, M., et al. In Planta Determination of the mRNA-Binding Proteome of Arabidopsis Etiolated Seedlings. Plant Cell. 28 (10), 2435-2452 (2016).
- Koster, T., Marondedze, C., Meyer, K., Staiger, D. RNA-Binding Proteins Revisited - The Emerging Arabidopsis mRNA Interactome. Trends Plant Sciences. 22 (6), 512-526 (2017).
- Hamasaki, K., Killian, J., Cho, J., Rando, R. R. Minimal RNA constructs that specifically bind aminoglycoside antibiotics with high affinities. Biochemistry. 37 (2), 656-663 (1998).
- Bachler, M., Schroeder, R., von Ahsen, U. StreptoTag: a novel method for the isolation of RNA-binding proteins. RNA. 5 (11), 1509-1516 (1999).
- Vazquez-Pianzola, P., Urlaub, H., Rivera-Pomar, R. Proteomic analysis of reaper 5' untranslated region-interacting factors isolated by tobramycin affinity-selection reveals a role for La antigen in reaper mRNA translation. Proteomics. 5 (6), 1645-1655 (2005).
- Hartmuth, K., Vornlocher, H. P., Luhrmann, R. Tobramycin affinity tag purification of spliceosomes. Methods Molecular Biology. 257, 47-64 (2004).
- Beach, D. L., Keene, J. D. Ribotrap : targeted purification of RNA-specific RNPs from cell lysates through immunoaffinity precipitation to identify regulatory proteins and RNAs. Methods Molecular Biology. 419, 69-91 (2008).
- Slobodin, B., Gerst, J. E. A novel mRNA affinity purification technique for the identification of interacting proteins and transcripts in ribonucleoprotein complexes. RNA. 16 (11), 2277-2290 (2010).
- Slobodin, B., Gerst, J. E. RaPID: an aptamer-based mRNA affinity purification technique for the identification of RNA and protein factors present in ribonucleoprotein complexes. Methods Molecular Biology. 714, 387-406 (2011).
- Yoon, J. H., Gorospe, M. Identification of mRNA-Interacting Factors by MS2-TRAP (MS2-Tagged RNA Affinity Purification). Methods Molecular Biology. 1421, 15-22 (2016).
- Leppek, K., Stoecklin, G. An optimized streptavidin-binding RNA aptamer for purification of ribonucleoprotein complexes identifies novel ARE-binding proteins. Nucleic Acids Research. 42 (2), 13(2014).
- Blencowe, B. J., Sproat, B. S., Ryder, U., Barabino, S., Lamond, A. I. Antisense probing of the human U4/U6 snRNP with biotinylated 2'-OMe RNA oligonucleotides. Cell. 59 (3), 531-539 (1989).
- Lingner, J., Cech, T. R. Purification of telomerase from Euplotes aediculatus: requirement of a primer 3' overhang. Proceedings of the National Academy of Sciences U S A. 93 (20), 10712-10717 (1996).
- Upadhyay, A., Dixit, U., Manvar, D., Chaturvedi, N., Pandey, V. N. Affinity capture and identification of host cell factors associated with hepatitis C virus (+) strand subgenomic RNA. Molecular Cell Proteomics. 12 (6), 1539-1552 (2013).
- Imig, J., et al. miR-CLIP capture of a miRNA targetome uncovers a lincRNA H19-miR-106a interaction. Nature Chemical Biology. 11 (2), 107-114 (2015).
- Chu, C., et al. Systematic discovery of Xist RNA binding proteins. Cell. 161 (2), 404-416 (2015).
- McHugh, C. A., et al. The Xist lncRNA interacts directly with SHARP to silence transcription through HDAC3. Nature. 521 (7551), 232-236 (2015).
- Rogell, B., et al. Specific RNP capture with antisense LNA/DNA mixmers. RNA. 23 (8), 1290-1302 (2017).
- Matia-Gonzalez, A. M., Iadevaia, V., Gerber, A. P. A versatile tandem RNA isolation procedure to capture in vivo formed mRNA-protein complexes. Methods. , 93-100 (2017).
- Gruber, A. R., Lorenz, R., Bernhart, S. H., Neubock, R., Hofacker, I. L. The Vienna RNA websuite. Nucleic Acids Research. 36 (Web Server issue), Available from: http://rna.tbi.univie.ac.at/cgi-bin/RNAWebSuite/RNAfold.cgi W70-W74 (2008).
- Kalendar, R., Khassenov, B., Ramankulov, Y., Samuilova, O., Ivanov, K. I. FastPCR: An in silico tool for fast primer and probe design and advanced sequence analysis. Genomics. 109 (3-4), Available from: http://primerdigital.com/tools/PrimerAnalyser.html 312-319 (2017).
- Altschul, S. F., Gish, W., Miller, W., Myers, E. W., Lipman, D. J. Basic local alignment search tool. Journal of Molecular Biology. 215 (3), 403-410 (1990).
- Stiernagle, T. Maintenance of C. elegans. WormBook. , 1-11 (2006).
- Kedde, M., et al. A Pumilio-induced RNA structure switch in p27-3' UTR controls miR-221 and miR-222 accessibility. Nature Cell Biology. 12 (10), 1014-1020 (2010).
- Schumacher, B., et al. Translational repression of C. elegans p53 by GLD-1 regulates DNA damage-induced apoptosis. Cell. 120 (3), 357-368 (2005).
- Ziegeler, G., et al. Embryonic lethal abnormal vision-like HuR-dependent mRNA stability regulates post-transcriptional expression of cyclin-dependent kinase inhibitor p27Kip1. Journal of Biological Chemistry. 285 (20), 15408-15419 (2010).
- Itri, F., et al. Femtosecond UV-laser pulses to unveil protein-protein interactions in living cells. Cellular and Molecular Life Sciences. 73 (3), 637-648 (2016).
- Zhang, L., Zhang, K., Prandl, R., Schoffl, F. Detecting DNA-binding of proteins in vivo by UV-crosslinking and immunoprecipitation. Biochemical and Biophysical Research Communications. 322 (3), 705-711 (2004).
Herprints en machtigingen
