Hier presenteren we een protocol voor het gebruik van reeds bestaande antibiotica resistentie-cassette schrapping constructies als basis voor het maken van schrapping mutanten in andere stammen van E. coli . Dergelijke mutaties schrapping kunnen worden gemobiliseerd en ingevoegd in de corresponderende locus van een geadresseerde stam met behulp van P1 bacteriofaag transductie.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Productie van Gene verwijderingen in Escherichia coli door P1 transductie met accijnsplichtige antibioticaresistentie Cassettes
In dit artikel
Samenvatting
Samenvatting
Een eerste benadering voor het bestuderen van de functie van een onbekend gen in bacteriën is het creëren van een knock-out van dit gen. Hier beschrijven we een krachtige en snelle protocol voor het overbrengen van genmutaties schrapping van een Escherichia coli -stam naar de andere met behulp van gegeneraliseerde transductie met de bacteriofaag P1. Deze methode vereist dat de mutatie selecteerbare (bijvoorbeeld op basis van gene verstoringen met behulp van antibiotica cassette invoegingen). Dergelijke antibiotica cassettes kunnen worden gemobiliseerd van een donor-stam en geïntroduceerd in een ontvangende stam van belang om snel en eenvoudig genereren van een gen schrapping mutant. De antibiotica cassette kan worden ontworpen om flippase erkenning sites waarmee de excisie van de cassette door een site-specific recombinase tot een schone knock-out met alleen een opeenvolging van ~ 100-base-paar-lang litteken in het genoom. We tonen het protocol door het gen van de tamA codering een vergadering factor die betrokken zijn bij de autotransporter biogenese uitsparen en testen van het effect van deze knock-out op de biogenese en functie van twee trimeric autotransporter adhesines. Hoewel gene schrapping door P1 transductie zijn beperkingen heeft, maken het gemak en de snelheid van de uitvoering ervan het een aantrekkelijk alternatief voor andere methoden van gene verwijdering.
Inleiding
Een gemeenschappelijke eerste aanpak voor het bestuderen van de functie van een gen is het uitvoeren van knock-out mutagenese en observeren van de resulterende fenotype. Dit heet ook omgekeerde genetica. De bacterie van E. coli is het werkpaard van de moleculaire biologie om de laatste 70 jaar of zo, ten gevolge van het gemak van het kweken en haar inschikkelijkheid aan genetische manipulatie-1. Verschillende methoden zijn ontwikkeld voor het produceren van gene verwijderingen in E. coli, waaronder markeerdraad uitwisseling mutagenese2,3 en, meer recent, recombineering met de λ rood of Rac ET systemen4,5 , 6.
In een veelgebruikt systeem, worden codering sequenties van afzonderlijke genen vervangen door een antibiotica-resistentie-cassette die later kan worden weggesneden uit de chromosoom5,7. De codering sequenties worden vervangen, bijvoorbeeld door een cassette kanamycine (Kan) weerstand, die wordt geflankeerd door flippase (FLP) erkenning doel (FRT) sites aan beide zijden. De FRT sites worden herkend door de recombinase FLP, die site-specifieke recombinatie tussen de sites van de FRT leiden tot het schrappen van de cassette Kan doorgeeft. Op deze manier kan een volledige schrapping van een bepaalde de codering gensequentie worden bereikt, weggaand achter slechts een minimale litteken opeenvolging van ongeveer 100 basenparen (bp) (Figuur 1).
Iets meer dan een decennium geleden, werd de zogenaamde Keio-collectie ontwikkeld. Dit is een bacteriële bibliotheek op basis van een standaard laboratorium E. coli K12 stam, waar bijna alle niet-essentiële genen individueel werden geschrapt door λ rode recombinatie7,8. De klonen binnen deze collectie hebben één codering opeenvolging een accijns Kan weerstand cassette hebt vervangen. De Keio-collectie heeft bewezen een nuttig hulpmiddel voor veel toepassingen9. Een dergelijke toepassing is de productie van schrapping mutanten in andere stammen van E. coli . De cassette Kan uit een bepaalde schrapping kloon kan worden gemobiliseerd door in het algemeen transducing bacteriofagen, zoals P110,11,12,13,14. Een voorraad van de bacteriofaag bereid uit een dergelijke stam kan vervolgens worden gebruikt om te infecteren een geadresseerde E. coli stam van belang, waar met een laag maar betrouwbare frequentie de Kan cassette-bevattende regio kan worden opgenomen in het ontvangende genoom van homologe recombinatie (Figuur 2). Transductants kunnen worden geselecteerd voor de groei op het medium Kan bevatten. Na dit, indien verwijdering van de antibiotica-resistentie-cassette is gewenst, kan het FLP-recombinase worden geleverd aan de transductant-stam in trans. Na het uitharden van het FLP-bevattende plasmide, die draagt een marker van de weerstand ampicilline (Amp), Kan en Amp-gevoelige klonen zijn gescreend en de juiste excisie van de wild-type codering sequentie en de cassette Kan worden geverifieerd door PCR van de kolonie.
Hier, wordt een gedetailleerd protocol gepresenteerd, met een beschrijving van elk van de stappen in het produceren van een knock-out E. coli stam gebaseerd op de hierboven beschreven strategie. Als voorbeeld, wordt een schrapping van de tamA gen aangetoond. tamA codeert een buitenmembraan β-vat-eiwit dat behoort tot het vervoer en de vergadering Module (TAM), die bij de biogenese van bepaalde autotransporter eiwitten en pili15,16,17 betrokken is. Deze spanning knock-out werd vervolgens gebruikt om te onderzoeken van het effect van de schrapping van de tamA op de biogenese van twee trimeric autotransporter adhesines (TAAs), de Yersinia antistoffen YadA en de E. coli immunoglobulin (Ig)-bindende TAA EibD 18,19.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
1. de stammen en plasmiden
-
Bacteriestammen
- Gebruik de E. coli stammen BW251135, JW4179 (BW25113 tamA::kan)7en BL21(DE3)20BL21ΔABCF21. Zie Tabel van materialen voor meer informatie.
-
Bacteriofagen
- Gebruik de bacteriofaag P1vir voor de algemene transductie. De faag opslaat als een vloeibare voorraad met een paar druppels chloroform (zie stap 2.2). Voor meer informatie, Zie Tabel van materialen.
-
Plasmiden
- Gebruik de volgende plasmiden in dit protocol: pCP2022, pIBA2-YadA23en24van de pEibD10. Gebruikt als besturingselement plasmiden, pASK-IBA2 en pET22b (Zie Tabel van materialen).
-
Groei voorwaarden
- Het doorgeven van bacteriën in een lysogenie Bouillon (LB) middellange25 met krachtig schudden (180-200 rpm) bij 37 ° C of 30 ° C in het geval van BL21ΔABCF en de spanningen met pCP20.
- Uitvoeren van plasmide genezen bij 43 ° C.
- Voor een solide medium, door LB te vullen met 1% agar (w/v).
- Aanvulling voor top agar, LB met 0,7% agar en 10 mM CaCl2 en autoclaaf het medium. Gebruik SOC medium voor het herstel na electroporation26.
- Gebruik de volgende concentraties voor antibiotica: 100 μg/mL voor Amp en 25 μg/mL voor Kan.
2. voorbereiding van een bacteriofaag Lysate
-
Infectie van de donor-stam
- Groeien van de stam van de donor JW4197 in 5 mL van LB medium aangevuld met 10 mM CaCl2 en optioneel met Kan (25 µg/mL) met een optische dichtheid 600 nm (OD600) van ~ 1.0. De OD-waarde600 met een spectrofotometer meten.
- Maken van een verdunningsreeks van een bestaande P1 faag voorraad in het LB-medium: aanbevolen verdunningen zijn tussen 10-3 tot 10-7.
- Mix 200 μL van de bacteriële schorsing en 100 μl van een bepaalde faag verdunning in een tube van 15 mL centrifuge of een vergelijkbare groep. Bereiden zo veel buizen als phage verdunningen. Incubeer de buizen gedurende 20 minuten bij 37 ° C zonder schudden.
- Voeg ~ 3 mL gesmolten top agar (~ 50 ° C) aangevuld met 10 mM CaCl2 tot de buizen, meng de inhoud door vortexing de buizen kort en giet het mengsel op voorverwarmde LB platen te maken zelfs lagen.
- Incubeer de platen 's nachts bij 37 ° C.
-
Lysate voorbereiding
- De volgende dag Kies een plaat met een semi-confluente groei van phage plaques. Op een semi-confluente plaat, ongeveer de helft het oppervlak van de plaat is duidelijk (Figuur 3).
- Schraap de top agar laag van dergelijke een plaat met een inenting lus of een soortgelijk gereedschap en plaats de bovenste agar in een centrifugebuis. Voeg 1-2 mL LB en een daling van chloroform en vortex de buis krachtig gedurende ~ 1 min. toevoegen de chloroform in een zuurkast.
- Centrifugeer de buis gedurende 15 minuten op 4.000 x g of sneller aan de pellet de agar en bacteriële cellen.
- Verplaats het supernatant naar een verse microcentrifuge buis, het vermijden van om over alle puin van de pellet te dragen. Voeg 2 druppels chloroform en slaan de lysate op 4-10 ° C. Voeg chloroform in een zuurkast. Niet invriezen de bacteriofaag lysate aangezien dit in een aanzienlijke vermindering van het aantal infectieuze deeltjes resulteren zal.
-
Bepaling van de lysate titer
- Groeien BW25113 in LB aangevuld met 10 mM CaCl2 bij 37 ° C, totdat de cultuur een OD-600 voor ~ 1.0 bereikt.
- Voorbereiden van een verdunningsreeks van de bacteriofaag lysate in LB (bijv., 10-6–10-9).
Opmerking: Wees voorzichtig aan het monster Pipetteer vanaf de bovenkant van de lysate om te voorkomen dat chloroform om de verdunningen. - Mix 200 μL van de bacteriële schorsing en 100 μl van een bepaalde faag verdunning in een tube van 15 mL centrifuge of een vergelijkbare groep. Bereiden zo veel buizen als phage verdunningen. Incubeer de buizen gedurende 20 minuten bij 37 ° C zonder schudden.
- Voeg ~ 3 mL gesmolten top agar (~ 50 ° C) aangevuld met 10 mM CaCl2 tot de buizen, meng de inhoud door vortexing de buizen kort en giet het mengsel op voorverwarmde LB platen te maken zelfs lagen.
- Incubeer de platen 's nachts bij 37 ° C.
- De volgende dag tellen het aantal plaques (duidelijk regio's in de bacteriële mat) voor elke plaat en de titer van de lysate met de volgende formule berekenen:
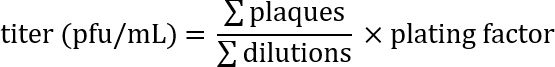
Voorbeeld: Op de platen met de verdunningen 10-7, 10-8en 10-9, er zijn 231, 27 en 2 platen, respectievelijk. 100 μl van elke verdunning werd gebruikt voor de infectie, en omdat de titer wordt uitgedrukt als plaque-vormende eenheden (pfu) / mL, de beplating factor is 10. Deze getallen worden ingevoerd in de formule:
De titer is dus ongeveer 2 x 10¹⁰ besmettelijke phage deeltjes/mL.
3. P1 transductie
-
Voorbereiding van de ontvangende cellen
- Groeien de ontvangende stam BL21ΔABCF in LB aangevuld tot een optische dichtheid bij 600 nm (OD600) van ~ 1.0. Gebruik een spectrofotometer de OD600 waarde te meten.
- Bereken het volume van de bacteriofaag lysate die nodig zijn om een veelheid van infectie (MOI) waarde van 0,5. Voor het berekenen van de MOI, schatten het aantal bacteriën op basis van de OD600 van de cultuur. Neem aan dat een600 OD-waarde van 1.0 komt met ~ 109 cfu/mL overeen. Bereken het volume vereist op basis van de bekende titer van de lysate.
Voorbeeld (gebaseerd op de titer, berekend in het voorbeeld na stap 2.3.6):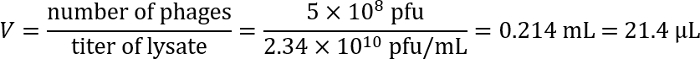
- Voeg CaCl2 aan de stam van de ontvangende cultuur tot 10 mM en meng. Neem 1 mL van de cultuur voor signaaltransductie.
-
Presterende transductie
- Voeg het juiste volume van bacteriofaag lysate tot 1 mL van de ontvangende cultuur (inclusief CaCl2 op 10 mM), zoals berekend in stap 3.1.2 en meng voorzichtig.
Opmerking: Wees voorzichtig om Pipetteer van de monster uit de bovenkant van de lysate om te voorkomen dat chloroform aan de mix. - Statisch Incubeer de mix gedurende 20 minuten bij 37 ° C.
- Stop de infectie door het toevoegen van Natriumcitraat, pH 5.5, tot 100 mM.
- Centrifugeren van de bacteriën (5000 x g gedurende 2 minuten) en verwijder het supernatant en resuspendeer hen in 1 mL verse LB aangevuld met 100 mM Natriumcitraat, pH 5.5.
- Wassen van de cellen tweemaal meer zoals in stap 3.2.4 om de verwijdering van vrije bacteriofagen en calcium.
- Resuspendeer de bacteriën in 1 mL verse LB aangevuld met 100 mM Natriumcitraat, pH 5.5. Incubeer de bacteriën bij 30 ° C gedurende 1 h met schudden (> 100 rpm).
- Verzamel de bacteriën door middel van centrifugeren (5000 x g gedurende 2 minuten) en resuspendeer hen in ~ 100 μl van LB met 100 mM Natriumcitraat, pH 5.5.
- Verspreiding van de bacteriën op een plaat van de LB aangevuld met Kan op 25 µg Mo/mL en 10 mM Natriumcitraat, pH 5.5, en groeien de bacteriën bij 30 ° C tot kolonies verschijnen (~ 24 h).
- Voeg het juiste volume van bacteriofaag lysate tot 1 mL van de ontvangende cultuur (inclusief CaCl2 op 10 mM), zoals berekend in stap 3.1.2 en meng voorzichtig.
-
Selecteren van de transductants
- Zodra de kolonies op de plaat van de selectie zijn gegroeid, restreak hen op LB + Kan voor één kolonies en groeien bij 30 ° C tot één kolonies worden weergegeven.
4. middendoor de cassette Kan
-
De transformatie met recombinatie plasmide
- Controleer de electrocompetent van de stam Kan-resistente BL21ΔABCF.
- Het groeien van de stam uit een één kolonie in verse LB (5 mL) aangevuld met Kan (25 µg/mL) bij 30 ° C, totdat de OD600 ~0.5 – 0.7.
- Vanaf hier, voeren de volgende stappen uit bij 4 ° C of op ijs. Centrifugeer de bacteriën (5000 x g gedurende 10 minuten) en verwijder de bovendrijvende substantie.
- Wassen van de cel pellet met ijskoud water twee keer de vorige centrifugeren door stap te herhalen en, ten slotte resuspendeer de pellet cel in 100 µL ijskoude 10% glycerol.
- 1 mm electroporation cuvettes op ijs afkoelen.
- 1 pg van plasmide DNA (pCP20) toevoegen aan de celsuspensie, meng voorzichtig de opschorting en over te brengen naar een gekoelde electroporation cuvette.
- De electroporator ingesteld op 1,8 kV en electroporate de cellen.
- Getransformeerde cellen redden door toevoeging van 1 mL van SOC medium en het verbouwen ervan voor 1 h bij 30 ° C.
- Plaat 100 µL van de cellen op LB + versterker platen en groeien de cellen bij 30 ° C's nachts.
- Controleer de electrocompetent van de stam Kan-resistente BL21ΔABCF.
-
Inductie van de recombinatie
- Pick enkele kolonies van de LB + Amp plaat en verse LB weglaten van alle antibiotica worden geënt.
- De cellen op de niet-tolerante temperatuur (43 ° C) 's nachts voor het opwekken van de expressie van FLP recombinase groeien.
-
Selecteren van recombinanten
- Maken van de seriële verdunningen en plaat 50 µL van een 10-5-106 verdunning op niet-selectieve platen en groeien het 's nachts bij 30 ° C.
5. controle van de gen-verwijdering
-
Verificatie van de plasmide verlies en succesvolle recombinatie
- Streak enkele kolonies van de platen bereid in stap 4.3.1 op LB Kan, LB + Amp en LB platen zonder antibiotica, in deze volgorde. Om te helpen bij de strepen, een kolonie raster gebruiken (Zie aanvullende bestand 1). Groeien de platen bij 30 ° C tot kolonies verschijnen (~ 24 h).
- Kies 10 – 20 klonen die zijn geteeld op de niet-selectieve plaat maar verzuimde te groeien op het selectieve medium voor verdere verificatie.
-
Aanvullende verificatie door PCR van de kolonie
- Uitvoeren van een PCR van de kolonie met begeleidende de tamA codering reeks inleidingen (Zie Tabel van materialen).
- Voorbereiding van een master PCR-mix. Het bedrag van de mix die nodig zijn, is afhankelijk van het aantal kolonies te beproeven (Zie het voorbeeld in tabel 1). Meng de reagentia op ijs, voeg de polymerase laatst.
- Meng de master mix van PCR, dan afzien van 20 µL in buizen van een PCR-strip. Neem een kleine hoeveelheid elke kolonie worden onderzocht met behulp van een steriele pipette uiteinde en toe te voegen aan een buis. Vergeet niet om de oorspronkelijke geadresseerden stam voor vergelijking. Eventueel ook de spanning van de donor.
- Uitvoeren van een PCR-reactie (Zie tabel 2 voor het programma gebruikt).
- Voorbereiden van een 1% agarose gel.
- Voor een gel 50 mL, 0,5 g agarose meten en voeg 50 mL van TAE-buffer (40 mM Tris, 20 mM azijnzuur en 1 mM EDTA, pH 8.0). Verwarm het mengsel in een magnetron-oven totdat alle agarose heeft opgelost.
- Zodra de agarose is opgelost, cool de oplossing tot ongeveer 50 ° C, en voeg vervolgens toe 5 μL van DNA kleuring kleurstof. Meng de oplossing goed en giet het in een gel-lade in een zaal gieten. Voeg een of meer rijen met goed kammen zodat er voldoende putten voor alle monsters, evenals de grootte van de moleculaire merkers. Laat de gel gedurende 30 minuten instellen.
- Zodra de PCR-run voltooid is, 4 µL van 6 x DNA laden kleurstof aan elk monster toevoegen. Plaats van de gel in de zaal van elektroforese en Voeg TAE-buffer tot de putten vallen.
- Breng 10 – 15 µL van elke PCR reactie aan een putje in de gel. Ook Voeg 5 µL van een marker van moleculaire grootte. Vervolgens voert u de gel voor 30 min 75 V.
- Zodra de run voltooid is, het imago van de gel met een blauw-licht imager.
6. andere technieken
-
Eiwit expressie
Opmerking: De expressie van test eiwitten (YadA en EibD) heeft al23,24in detail elders beschreven. Dit is een korte samenvatting van de belangrijkste stappen.- BL21ΔABCF ΔtamA with transformeren de nodige plasmiden (pIBA2-YadA en pEibD10 en de bijbehorende control-plasmiden) en selecteer voor transformants op LB + Amp.
- Voor het eiwit expressie, beënten 100 mL LB medium + Amp met 1 mL van een overnachting cultuur van getransformeerde bacteriën en groeien deze bij 30 ° C tot halverwege log fase, op dat moment, veroorzaken de eiwitproductie met beide anhydrotetracycline (bij 100 ng/mL) of Isopropyl thiogalactoside (op 0.5 mM).
- Na 2 h van inductie bij 30 ° C, het meten van de troebelheid van de culturen en verzamelen een aantal cellen die overeenkomt met 50 mL bij OD600 = 1.0 door de culturen gedurende 15 minuten bij 4000 x gcentrifugeren. Wassen van de pellet 1 x met 10 mM HEPES pH 7.4 en vervolgens een opgeslagen bij-20 ° C of proces verder zoals in stap 6.2.
-
Buitenmembraan extractie
Opmerking: De buitenmembraan extractie wordt uitgevoerd zoals in detail beschreven door Leo et al. 27. de belangrijkste stappen zijn hieronder samengevat.- Resuspendeer de pellet in 1 mL van de cel van 10 mM HEPES, pH 7.4, aangevuld met 10 mM MgCl2 en MnCl2, lysozym (0,1 mg/mL) en een mespuntje DNase ik.
- Lyse de cellen (bijvoorbeeldmet behulp van een klopper kraal).
- Centrifugeer de cellen kort (2 min op 15,600 x g) te verwijderen van puin van de cel en het supernatant naar een verse buis.
- Centrifugeer de cellen gedurende 30 minuten bij 16.000 x g, waarna, resuspendeer de pellet in 400 μL van 1% N-natriumlauriolsarcosinaat sarcosine in 10 mM HEPES, pH 7.4.
- Incubeer de cellen met agitatie gedurende 30 minuten bij kamertemperatuur, waarna, centrifugeer ze gedurende 30 min als hierboven.
- Wassen de doorschijnende pellet 1 x met 200 μl van 10 mM HEPES, pH 7.4, en dan het resuspendeer in 30 μL van 10 mM HEPES en voeg 10 μL van 4 x SDS-pagina monster buffer.
-
Activiteit testen
Opmerking: Voer SDS-pagina en activiteit testen voor YadA en EibD als beschreven28. De belangrijkste stappen zijn hieronder samengevat. -
SDS-PAGINA
- Verwarm de monsters bij 50 ° C gedurende 5 minuten voordat ze worden geladen op een polyacrylamide-gel, om te voorkomen dat de denaturering van de eiwitten.
- Na de scheiding in SDS-pagina, door de eiwitten te overbrengen in een Polyvinylideenfluoride (PVDF) difluoride membraan.
- Na de overdracht, blokkeren het membraan met 2% magere-melkpoeder in PBS.
-
YadA-collageen ver-westelijke vlek
- Na het blokkeren, boviene collageen type die ik verdund in blokkeerbuffer toevoegen aan een concentratie van 10 μg/mL en Incubeer het membraan gedurende 1 uur.
- Wassen van het membraan 2 x met PBS + 0,05% Tween20 (PBS-T).
- Het primaire antilichaam (monoklonaal anti-collageen COL-1) aan de membraan, verdunde 1:2,000 in blokkeerbuffer toevoegen.
- Na incubatie van het membraan gedurende 1 uur, 2 x wassen, zoals vermeld in stap 6.3.2.2 en voeg vervolgens de secundair antilichaam [geit anti-muis IgG-horseradish peroxidase (HRP) conjugaat], verdunde 1:10,000 in de blokkeerbuffer.
- Incubeer de membraan voor 1 h, dan wassen 2 x met PBS-T. Een verbeterde chemiluminescentie substraat toevoegen aan het membraan volgens de instructies van de fabrikant en de band met behulp van een CCD camera detecteren.
-
EibD-IgG bindende bepaling
- Na het blokkeren, voeg een secundair antilichaam (geit anti-konijn HRP), verdunde 1:2,000 in de blokkeerbuffer.
- Incubeer de membraan voor 1 h, dan wassen 2 x met PBS. Chemiluminescentie detectieproces zoals vermeld in stap 6.3.2.5.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Generatie van een tamA Knock-out van BL21ΔABCF:
De hierboven beschreven strategie heeft eerder gebruikt voor de productie van een afgeleide stam van BL21(DE3), de stam van een standaard laboratorium gebruikt voor de productie van eiwitten, die is geoptimaliseerd voor de productie van de eiwitten van de buitenmembraan en genaamd BL21ΔABCF21. Deze spanning mist vier genen die coderen voor overvloedige...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
P1 transductie is een snelle, robuuste en betrouwbare methode voor het genereren van gene verwijderingen in E. coli. Dit blijkt hier uit een tamA schrapping mutant van een Keio donor-stam naar een geadresseerde BL21-afgeleide transducing. De grote fasen in het proces van de transductie zijn de productie van de transducing lysate de signaaltransductie zelf, de besnijdenis van de cassette Kan weerstand en de verificatie van de knock-out door PCR. In totaal, het proces duurt ongeveer 1 week en vereist geen...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Keio collectie stammen zijn afkomstig van de nationale BioResource Project (NIG, Japan): E. coli. Wij danken Dirk Linke (departement van biowetenschappen, Universiteit van Oslo) voor zijn voortdurende steun. Dit werk werd gefinancierd door de Onderzoeksraad van Noorwegen Young Researcher subsidie 249793 (aan Jack C. Leo).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Stams | |||
| E. coli BW25113 | NIG | ME6092 | Wild-type stam van Keio collectie |
| E. coli BL21(DE3) | Merck | 69450-3 | Expressiestam |
| E. coli BL21DABCF | Addgene | 102270 | Afgeleid van BL21(DE3) |
| E. coli JW4179 | NIG | JW4179-KC | tamA deletiemutant |
| P1 vir | NIG | HR16 | Algemeen transducerende bacteriofaag |
| Plasmiden | |||
| pCP20 | CGSC | 14177 | conditioneel replicerend plasmid met FLP |
| pASK-IBA2 | IBA GmbH | 2-1301-000 | expressievector |
| pEibD10 | N/A | N/A | voor productie van EibD; plasmide op aanvraag beschikbaar |
| pET22b+ | Merck | 69744-3 | expressievector |
| pIBA2-YadA | N/A | N/A | voor productie van YadA; plasmide op aanvraag beschikbaar |
| Chemicaliën | |||
| Azijnzuur | ThermoFisher | 33209 | |
| Agar | BD Bacto | 214010 | |
| Agarose | Lonza | 50004 | |
| Ampicilline | Applichem | A0839 | |
| Anhydrotetracycline | Abcam | ab145350 | |
| anti-collageen type I antilichaam COL-1 | Sigma | C2456 | |
| Rundercollageen type I | Sigma | C9791 | |
| Calciumchloride | Merck | 102382 | |
| Chloroform | Merck | 102445 | |
| Di-natriumwaterstoffosfaat | VWR | 28029 | |
| DNA-kleurstof | Thermo | S33102 | |
| DNA molecuulgewichtsmarker | New England BioLabs | N3232S | |
| DNase I | Sigma | DN25 | |
| dNTP-mix | New England Biolabs | N0447 | |
| ECL HRP-substraat | Advansta | K-12045 | |
| EDTA | Applichem | A2937 | |
| Glycerol | VWR | 24388 | |
| geit anti-muis IgG-HRP | Santa Cruz | sc-2005 | |
| geit anti-konijn IgG-HRP | Agrisera | AS10668 | |
| HEPES | VWR | 30487 | |
| Isopropylthiogalactoside | VWR | 43714 | |
| Kanamycine | Applichem | A1493 | |
| Lysozym | Applichem | A4972 | |
| Magnesiumchloride | VWR | 25108 | |
| Mangaanchloride | Sigma | 221279 | |
| N-lauroyl sarcosine | Sigma | L9150 | |
| Melkpoeder | Sigma | 70166 | |
| Natriumchloride | VWR | 27808 | |
| tamA voorwaarts primer | Invitrogen | N/A | Volgorde 5'-GAAAAAAGG ATATTCAGGAGAAAATGTG-3' |
| tamA achterwaarts primer | Invitrogen | N/A | Volgorde 5'-TCATAATT CTGGCCCCAGACC-3' |
| Taq DNA polymerase | New England Biolabs | M0267 | |
| Tri-natriumcitraat | Merck | 106448 | |
| Trypton | VWR | 84610 | |
| Tween20 | Sigma | P1379 | |
| Gistextract | Merck | 103753 | |
| Apparatuur | |||
| Agarose gelelektroforese kamer | Hoefer | SUB13 | |
| Bead beater | Thermo | FP120A-115 | |
| CCD-camera | Kodak | 4000R | |
| Electroporatie cuvettes | Bio-Rad | 165-2089 | |
| Electroporatie unit | Bio-Rad | 1652100 | |
| Gel imager | Nippon Genetics | GP-03LED | |
| Incubeerende shaker | Infors HT | Minitron | |
| Incubator | VWR | 390-0482 | |
| Microcentrifuge | Eppendorf | 5415D | |
| Microgolfoven | Samsung | CM1099A | |
| PCR-machine | Biometra | Tpersonal | |
| PCR-strips | Axygen | PCR-0208-CP-C | |
| pH-meter | Hanna Instruments | HI2211-01 | |
| PVDF-membraan | ThermoFisher | 88518 | |
| SDS-PAG elektroforese kamer | ThermoFisher | A25977 | |
| Centrifuge | Beckman Coulter | B06322 | |
| Vortexmixer | Scientific Industries | SI-0236 | |
| Waterbad | GFL | D3006 | |
| Natte overdracht unit | Hoefer | TE22 |
Referenties
- Blount, Z. D. The unexhausted potential of E. coli. eLife. 4, e05826(2015).
- Hamilton, C. M., Aldea, M., Washburn, B. K., Babitzke, P., Kushner, S. R. New method for generating deletions and gene replacements in Escherichia coli. Journal of Bacteriology. 171 (9), 4617-4622 (1989).
- Link, A. J., Phillips, D., Church, G. M. Methods for generating precise deletions and insertions in the genome of wild-type Escherichia coli: application to open reading frame characterization. Journal of Bacteriology. 179 (20), 6228-6237 (1997).
- Sawitzke, J. A., Thomason, L. C., Costantino, N., Bubunenko, M., Datta, S., Court, D. L. Recombineering: in vivo genetic engineering in E. coli, S. enterica, and beyond. Methods in Enzymology. 421, 171-199 (2007).
- Datsenko, K. A., Wanner, B. L. One-step inactivation of chromosomal genes in Escherichia coli K-12 using PCR products. Proceedings of the National Academy of Sciences of the United States of America. 97 (12), 6640-6645 (2000).
- Muyrers, J. P., Zhang, Y., Stewart, A. F. Techniques: Recombinogenic engineering--new options for cloning and manipulating DNA. Trends in Biochemical Sciences. 26 (5), 325-331 (2001).
- Baba, T., et al. Construction of Escherichia coli K-12 in-frame, single-gene knockout mutants: the Keio collection. Molecular Systems Biology. 2, (2006).
- Yamamoto, N., et al. Update on the Keio collection of Escherichia coli single-gene deletion mutants. Molecular Systems Biology. 5, 335(2009).
- Baba, T., Huan, H. -C., Datsenko, K., Wanner, B. L., Mori, H. The applications of systematic in-frame, single-gene knockout mutant collection of Escherichia coli K-12. Methods in Molecular Biology. 416, Clifton, NJ. 183-194 (2008).
- Chattopadhyay, M. K., Tabor, C. W., Tabor, H. Polyamines are not required for aerobic growth of Escherichia coli: preparation of a strain with deletions in all of the genes for polyamine biosynthesis. Journal of Bacteriology. 191 (17), 5549-5552 (2009).
- Xie, X., Wong, W. W., Tang, Y. Improving simvastatin bioconversion in Escherichia coli by deletion of bioH. Metabolic Engineering. 9 (4), 379-386 (2007).
- Maeda, T., Sanchez-Torres, V., Wood, T. K. Escherichia coli hydrogenase 3 is a reversible enzyme possessing hydrogen uptake and synthesis activities. Applied Microbiology and Biotechnology. 76 (5), 1035-1042 (2007).
- Meehan, B. M., Landeta, C., Boyd, D., Beckwith, J. The disulfide bond formation pathway is essential for anaerobic growth of Escherichia coli. Journal of Bacteriology. 199 (16), (2017).
- Niba, E. T. E., Naka, Y., Nagase, M., Mori, H., Kitakawa, M. A genome-wide approach to identify the genes involved in biofilm formation in E. coli. DNA Research. 14 (6), 237-246 (2008).
- Heinz, E., et al. Conserved features in the structure, mechanism, and biogenesis of the inverse autotransporter protein family. Genome Biology and Evolution. 8 (6), 1690-1705 (2016).
- Selkrig, J., et al. Discovery of an archetypal protein transport system in bacterial outer membranes. Nature Structural & Molecular Biology. 19 (5), 506-510 (2012).
- Stubenrauch, C., et al. Effective assembly of fimbriae in Escherichia coli depends on the translocation assembly module nanomachine. Nature Microbiology. 1 (7), 16064(2016).
- Leo, J. C., Goldman, A. The immunoglobulin-binding Eib proteins from Escherichia coli are receptors for IgG Fc. Molecular Immunology. 46 (8-9), 1860-1866 (2009).
- Mühlenkamp, M., Oberhettinger, P., Leo, J. C., Linke, D., Schütz, M. S. Yersinia adhesin A (YadA) - Beauty & beast. International Journal of Medical Microbiology. 305 (2), 252-258 (2015).
- Studier, F. W., Moffatt, B. A. Use of bacteriophage T7 RNA polymerase to direct selective high-level expression of cloned genes. Journal of Molecular Biology. 189 (1), 113-130 (1986).
- Meuskens, I., Michalik, M., Chauhan, N., Linke, D., Leo, J. C. A new strain collection for improved expression of outer membrane proteins. Frontiers in Cellular and Infection Microbiology. 7, 464(2017).
- Cherepanov, P. P., Wackernagel, W. Gene disruption in Escherichia coli: TcR and KmR cassettes with the option of Flp-catalyzed excision of the antibiotic-resistance determinant. Gene. 158 (1), 9-14 (1995).
- Grosskinsky, U., et al. A conserved glycine residue of trimeric autotransporter domains plays a key role in Yersinia adhesin A autotransport. Journal of Bacteriology. 189 (24), 9011-9019 (2007).
- Leo, J. C., et al. The structure of E. coli IgG-binding protein D suggests a general model for bending and binding in trimeric autotransporter adhesins. Structure. 19 (7), London, UK. 1021-1030 (1993).
- Bertani, G. Studies on lysogenesis. I. The mode of phage liberation by lysogenic Escherichia coli. Journal of Bacteriology. 62 (3), 293-300 (1951).
- Hanahan, D. Studies on transformation of Escherichia coli with plasmids. Journal of Molecular Biology. 166 (4), 557-580 (1983).
- Leo, J. C., Oberhettinger, P., Linke, D. Assessing the outer membrane insertion and folding of multimeric transmembrane β-barrel proteins. Methods in Molecular Biology. , Clifton, NJ. 157-167 (2015).
- Mikula, K. M., Leo, J. C., Łyskowski, A., Kedracka-Krok, S., Pirog, A., Goldman, A. The translocation domain in trimeric autotransporter adhesins is necessary and sufficient for trimerization and autotransportation. Journal of Bacteriology. 194 (4), 827-838 (2012).
- Thomason, L. C., Costantino, N., Court, D. L., et al. E. coli genome manipulation by P1 transduction. Current Protocols in Molecular Biology. Ausubel, F. M., et al. , Chapter 1, Unit 1.17 (2007).
- Franklin, N. C. Mutation in gal U gene of E. coli blocks phage P1 infection. Virology. 38 (1), 189-191 (1969).
- Jeong, H., et al. Genome sequences of Escherichia coli B strains REL606 and BL21(DE3). Journal of Molecular Biology. 394 (4), 644-652 (2009).
- Greene, E. C. DNA Sequence Alignment during Homologous Recombination. Journal of Biological Chemistry. 291 (22), 11572-11580 (2016).
- Watt, V. M., Ingles, C. J., Urdea, M. S., Rutter, W. J. Homology requirements for recombination in Escherichia coli. Proceedings of the National Academy of Sciences of the United States of America. 82 (14), 4768-4772 (1985).
- Ho, T. D., Waldor, M. K. Enterohemorrhagic Escherichia coli O157:H7 gal mutants are sensitive to bacteriophage P1 and defective in intestinal colonization. Infection and Immunity. 75 (4), 1661-1666 (2006).
- Ikeda, H., Tomizawa, J. I. Transducing fragments in generalized transduction by phage P1. I. Molecular origin of the fragments. Journal of Molecular Biology. 14 (1), 85-109 (1965).
- Murooka, Y., Harada, T. Expansion of the host range of coliphage P1 and gene transfer from enteric bacteria to other Gam-negative bacteria. Applied and Environmental Microbiology. 38 (4), 754-757 (1979).
- Goldberg, R. B., Bender, R. A., Streicher, S. L. Direct selection for P1-sensitive mutants of enteric bacteria. Journal of Bacteriology. 118 (3), 810-814 (1974).
- O'Connor, K. A., Zusman, D. R. Coliphage P1-mediated transduction of cloned DNA from Escherichia coli to Myxococcus xanthus: use for complementation and recombinational analyses. Journal of Bacteriology. 155 (1), 317-329 (1983).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
