Solid-ondersteund, eiwit-vrij, dubbele fosfolipide dubbelgelaagde membranen (DLBM) kunnen worden omgezet in complexe en dynamische lipide nanobuis netwerken en kunnen dienen als 2D onderop modellen van het endoplasmatisch reticulum.
Methodenartikel
Spontane vorming en omlegging van kunstmatige lipide nanobuis netwerken als een Bottom-Up-Model voor endoplasmatisch Reticulum
In dit artikel
Samenvatting
Samenvatting
We presenteren een handige methode om te vormen van een structurele organel van een bottom-up model voor het endoplasmatisch reticulum (ER). Het model bestaat uit zeer dichte lipidic nanotubes die, in termen van morfologie en dynamiek, die doet denken aan ER. De netwerken zijn afgeleid van fosfolipide dubbele dubbelgelaagde membraan patches vast te houden aan een transparante Al2O3 substraat. De hechting is bemiddeld door Ca2 + in de ambient buffer. Verdere uitputting van Ca2 + door middel van BAPTA/EDTA veroorzaakt retractie van het membraan, resulterend in spontane lipide nanobuis netwerk vorming. De methode bestaat uit fosfolipiden en microfabricated oppervlakken voor eenvoudige vorming van een ER-model en vereist niet de toevoeging van proteïnen of chemische energie (b.v., GTP of ATP). In tegenstelling tot de 3D morfologie van de cellulaire endoplasmatisch reticulum is het model tweedimensionaal (alhoewel de nanobuis afmetingen, meetkunde, structuur en dynamiek zijn behouden). Dit unieke in vitro ER-model bestaat uit slechts enkele onderdelen, is gemakkelijk te bouwen, en kan worden waargenomen onder een lichte Microscoop. De resulterende structuur kan verder worden verfraaid voor aanvullende functionaliteit, zoals de toevoeging van ER-geassocieerde eiwitten of deeltjes te bestuderen transportverschijnselen onder de buizen. De kunstmatige netwerken die hier beschreven zijn geschikte structurele modellen voor de mobiele ER, wiens unieke kenmerkende morfologie blijkt verband te houden met zijn biologische functie, overwegende dat gegevens met betrekking tot de vorming van de tubulaire domein en herschikkingen binnen zijn nog steeds niet volledig begrepen. Wij stellen vast dat deze methode wordt gebruikt Al2O3 dunne-film-coated microscopie coverslips, die commercieel beschikbaar, maar vereisen speciale orders. Het is daarom raadzaam om toegang hebben tot een microfabrication faciliteit voor voorbereiding.
Inleiding
De ER is verricht van cruciale taken in de biologische cel inclusief vouwing van eiwitten, lipiden synthese en calcium voorschrift1,2. De morfologie van ER is inherent is aan de functies die worden uitgevoerd. Het combineert vlakke stacks en dichte-dynamic buisvormige domeinen, die voortdurend interactie met het cytoskelet en constant in beweging en omlegging ondergaan. Sommige van de remodelleren dat ER structuren ondergaan omvatten de continue transformatie tussen vlakke platen en buizen, blaasje vorming van of fusion ER lumen, rek van reeds bestaande buizen, buis retractie, fusion en breuk3. De bijzondere structuur van de tubulaire netwerken is energiek ongunstige. De trajecten en de mechanismen waardoor het ER genereert en onderhoudt dat deze organisatie ook hoe dit betrekking op de functie heeft is niet nog begrepen volledig4,5.
Het is bekend dat de ER storingen wanneer het verliest zijn homeostatische staat, waardoor ER spanning, een aandoening die wordt veroorzaakt door een toename van de eiwitsynthese, ophoping van misfolded eiwitten, of wijzigingen in Ca2 + en oxidatieve balans. ER stress op hun beurt veroorzaakt vervorming van de natuurlijke morfologie van het organel, specifiek door het verstoren van de netwerk organisatie6,7. Als een reactie, wordt de cel geactiveerd een reparatie mechanisme om terug te keren naar een homeostatische staat. Storing in reparatie kan leiden tot cel ER-veroorzaakte apoptosis, die tot verschillende metabole en degeneratieve ziekten zoals de ziekte van Alzheimer, diabetes type 2, ziekte van Parkinson, amyotrofe laterale sclerose en verscheidene anderen7bijdraagt; 8. Huidige onderzoek richt zich op de organisatie van de tubulaire ER netwerken en diverse studies zijn gericht op de wederopvoering van de ER in vitro2. Een aantal bestaande modellen2,9,10 vereisen eiwitten te initiëren en onderhouden van membraan kromming3,11 helpen het organel bereiken zijn vorm. Duidelijk, modelsystemen dat enkele van de belangrijkste structurele en organisatorische functies van de ER een mirror en bieden toegang tot geavanceerde experimentele studies zijn in grote vraag.
Wij presenteren hier procedures voor het opstellen van een facile, eiwit/chemische energie-vrije, dynamische in vitro model voor de ER, een basis vormt om te studeren ER morfologie en bijbehorende functies4. Bij deze methode wordt wordt een ER-model vervaardigd met een bottom-up benadering met behulp van slechts een paar elementen, die de moleculen van belang om toe te voegen complexiteit kunnen worden geïntegreerd. Het netwerk geeft ER structuur en dynamiek. Bovendien, omkeerbare transformatie tussen het vlakke membraan en de buizen, blaasje vorming van de buizen, buis fusion, glijden en retractie alle waarneembaar. Naast serveren als een bottom-up-model voor het onvolledig begrepen cellulaire ER kan de lipide-route naar nanobuis netwerken beschreven in dit protocol gelden voor onderzoekers bestuderen zelf-assemblage, nanofluidics, single-molecuul en colloid transportverschijnselen, Marangoni stroom en andere gerelateerde velden. Alleen moleculaire bouwstenen gebruikt in onze werkwijze zijn fosfolipiden. Het protocol vereist weinig laboratoriumwerk en basisuitrusting en is toegankelijk voor de opneming van aanvullende elementen.
Protocol
1. bereiding van fosfolipide vesikel schorsing
Opmerking: Voor alle materialen waarnaar wordt verwezen als 'schone' in dit protocol, grondig wassen met isopropanol gevolgd door gedeïoniseerd water en föhnen hen met stikstof. Merk op dat een behandeling van glazen substraten met sterke oxidatiemiddelen zuur (Piranha-oplossing), die meestal in voorbereiding protocollen voor ondersteunde lipide films op solide substraten toegepast wordt, niet moet worden uitgevoerd op Al2O3-gecoat vervoerders.
- Plaats in een maatkolf van de ronde-bodem of omgekeerde peer-vormige glazen schoon 10 mL: soja L-α fosfatidyl choline (PC, 69% w/w), 1,2-dioleoyl-sn-glycero-3-phosphoethanolamine (DOPE, 30% w/w), en een lipide-geconjugeerde fluorophore van keuze [bijvoorbeeld Texas Red 1,2 - dihexadecanoyl-sn-glycero-3-phosphoethanolamine triethylammonium zout (TR-DHPE, 1% w/w)] in chloroform; voor een totaal bedrag van 3000 µg van lipiden in 300 µL van chloroform, resulterend in een eindconcentratie van 10 mg/mL.
Opmerking: Gebruik schone, glas, gasdichte spuiten met polytetrafluorethyleen plunjers bij de verwerking van verbindingen met chloroform.
Let op: Chloroform is giftig en zeer vluchtige en altijd onder een zuurkast met bijbehorende persoonlijke beschermingsmiddelen moet worden behandeld. - Verbind de kolf met een roterende verdamper, positie met een schuine stand van 45°, en langzaam 24 rpm in een waterbad bij 23 ° C gedurende 6 uur met verminderde luchtdruk om te draaien en de chloroform volledig te verwijderen. Vermindering van de druk recht na de inleiding van de rotatie met stappen van 20 kPa elke 2 min, totdat zij 20 kPa (150 Torr, 80% vacuüm tot) starten
Opmerking: De vorming van een homogene lipide-film van uniforme dikte in het schip van voorbereiding is de belangrijkste voorwaarde voor het rotavap procedure. Lipide preparaten zijn gevoelig voor rotatie snelheid, snelle druk wijzigingen en laatste druk waarde; Daarom Volg strikt de langzame vermindering stappen, evenals het einde druk en rotatie snelheid. Plaats de kolf met een schuine stand van 45° te garanderen dat de taart gedehydrateerde lipide gelijkmatig als een film wordt gevormd op de wand van de kolf. Te snel van een rotatie leidt leidt tot turbulenties en te traag voor een rotatie (als gevolg van de zwaartekracht) tot de accumulatie van een dikke laag van vloeistof op de bodem van de kolf. Tijdens de daaropvolgende overnachting zwelling proces, een zeer inhomogenous lipide massa ontstaat die niet goed op de definitieve ultrasoonapparaat stap reageert, en de resulterende breuken zijn van verschillende samenstellingen. Druk en binnen het bereik dat is opgegeven in de methode zorgt voor de langzame desolvation. Met chloroform als het oplosmiddel, te koelt snelle van een daling van de druk het mengsel, wat resulteert in verhoogde viscositeit en statistische en ongelijke film vorming. De lange periode van 6 uur wordt aanbevolen om Verwijder oplosmiddel om zoveel mogelijk, als de organische oplosmiddelen partities in het lipide-materiaal op rehydratie. - Na 6 uur, stop de rotatie en de luchtdruk weer, geleidelijk, met stappen van 20 kPa elke 2 min tot het bereiken van 100 kPa toenemen. Verwijder de maatkolf uit de rotatievacuümverdamper en voeg 3 mL PBS en 30 µL glycerol. Zachtjes swirl de kolf te ontbinden de glycerol. Gebruik een luchtdichte glazen stop te verzegelen de kolf met de lipiden.
Opmerking: De glycerol wordt gebruikt om de volledige uitdroging van de lipide-film te voorkomen en maakt dubbelgelaagde scheiding12. Het zouden moeten worden verhit vóór gebruik te verlagen van de viscositeit, die de behandeling van dit samengestelde vergemakkelijkt. De verwarmde glycerol doet nog steeds niet onmiddellijk meng met de PBS-buffer. Zachte wervelende is vereist, totdat de glycerol volledig is opgelost. - Bewaar de kolf in de koelkast bij 4 ° C's nachts voor rehydratie en zwelling van de lipide-films.
- Bewerk de volgende dag, ultrasone trillingen ten de lipiden met een ultrasone waterbad bij kamertemperatuur (RT, ~ 21 ° C) en bij 35 kHz frequentie tot het bereiken van een uniforme, enigszins troebel lipide schorsing.
Opmerking: Ultrasoonapparaat kan duren rond 10-30 s. langdurige ultrasoonapparaat (~ 1 min) warmte produceert en schadelijk is voor de vorming van het vesikel. - Stap 1.1-1.5 opbrengst een schorsing met twee soorten vesiculaire structuren: multilamellar blaasjes (MLV) en gigantische unilamellar blaasjes (GUV) (Figuur 1A-1F).
- Voor opslag, verdeel de lipide schorsing in 100 µL aliquots, met een totaal van 30 microcentrifuge buizen, en bewaar ze in een diepvriezer op-20 ° C.
Opmerking: Flash bevriezing met vloeibare stikstof is niet nodig en niet gebruikte voordat u opbergt. Het protocol kan hier worden gepauzeerd. Verlaten lipide schorsingen in de koelkast 4 ° C voor langdurige tijden lipide lysis van de oorzaken, die van invloed is op de membraan samenstelling.
2. voorbereiding van substraten
Opmerking: Het volgende protocol wordt uitgevoerd met een cleanroom geclassificeerd als ISO 8 in de ISO 14644-1 standaard specificatie. Atomische laag depositie (ALD) wordt gebruikt om te fabriceren Al2O3 substraten. De opgegeven procesparameters zijn afhankelijk van instrument en kunnen variëren tussen verschillende modellen van apparatuur. Ze kunnen worden gebruikt als eerste parameters het proces te ontwikkelen.
- De temperatuur van de reactor ALD ingesteld op 200 ° C.
- De glazen oppervlakken (bijvoorbeeld glas coverslips) in de monsterkamer samen met een silicium wafer, die worden later als een referentie-oppervlak gebruikt zal om te bepalen van de dikte van de depositie door ellipsometrie laden.
Opmerking: Glazen substraten waren gebruikte out-of-the-box en waren niet oplosmiddel-gereinigd voordat afzetting. Ze waren alleen gespoeld met stikstofgas om deeltjes te verwijderen. - Evacueren van de zaal laden tot 400 Pa (3 torr) en breng de monsters in de kamer van de belangrijkste reactie en evacueren het tot 200 Pa.
Opmerking: De temperatuur van de reactor moet worden gehouden bij 200 ° C voor juiste afzetting. Temperatuurschommelingen nadat monster laden moet daarom worden geëquilibreerd voordat de afzetting. Kamer druk ligt hoger dan de reactor druk om te voorkomen dat eventuele precursoren te verspreiden buiten de vergaderzaal. - Neerlegging van de atomaire film starten Eén cyclus bestaat uit een 150 ms pulse trimethyl aluminium blootstelling, gevolgd door een 1 s-zuivering, en vervolgens een H2O blootstelling van 200 ms duur gevolgd door een 1 s zuivering.
Opmerking: Alle instellingen, waaronder de druk als kamer en reactor, lengte van de cycli, en zuiveringen worden geautomatiseerd om een gedefinieerde tarief van depositie. Deze parameters kunnen verschillen tussen de verschillende modellen van apparatuur. De vooraf geconfigureerde recepten zijn vaak bereid door de leverancier of de tool in de cleanroom verantwoordelijk en de gebruiker meegedeeld als gedeponeerde laagdikte per tijdseenheid. - Te bereiken van 10 nm Al2O3 op de drager vervagen, herhaal het proces voor 100 cycli. Het aantal cycli is afhankelijk van het tarief van de afzetting, die tussen verschillende recepten of apparatuur variëren kan.
- Als u wilt verwijderen de monsters van de reactor, eerste vent de kamer totdat de druk luchtdruk bereikt, verwijder de monsters.
- Het bewaren van de monsters in luchtdicht tanks bij RT tot gebruik.
Opmerking: Geen verdere reiniging wordt aanbevolen voor gebruik. Het protocol kan hier worden gepauzeerd.
Opmerking: De monsters Idealiter dient onmiddellijk na de afzetting. De optimale opslag vereist positionering van de oppervlakken binnen polypropyleen wafer vervoerders, gevolgd door de vervoerders in cleanroom-compatibele plastic zakken, die stikstof-leeggemaakt voordat vacuüm afdichting onder omslag steken. Het doel is om te voorkomen dat bloot van het oppervlak op lucht verontreinigingen. Indien nodig, kunnen de oppervlakken worden bewaard in luchtdicht tanks bij RT op maximum 5 dagen. Langere opslag wordt niet aanbevolen. Voor gebruikers die niet gemakkelijk toegang hebben tot een schone kamer in de buurt, en kopen of verkrijgen van de oppervlakken uit het buitenland, opnieuw de substraten oxiderende door middel van zuurstof plasma of ozon behandeling mogelijk een alternatieve oplossing13.
3. de transformatie van moleculaire fosfolipide Films met buisvormige netwerken
- Ontdooi de lipide-opschorting en overzetten van een 4 µL droplet van schorsing op een schone glazen Microscoop dia/dekglaasje aan.
- Droog de druppel voor 20 min. De druppel zal instorten in een platte cirkelvormige film van lipiden na opdroging die voor het oog zichtbaar is.
- Hydrateren de lipide-film met 1 mL HEPES-buffer (Zie Tabel van materialen) gedurende 3 minuten.
Opmerking: Het volume van rehydratie buffer heeft invloed op de dichtheid van het vesikel schorsing (het aantal blaasjes per eenheid volume), die vervolgens naar de kamer van de observatie overgebracht wordt. Afhankelijk van het volume van de kamer van de waarneming en de gewenste vesikel dichtheid, het rehydratie volume kan worden afgestemd op 0,5-1 mL. Schone borosilicaat dia's de neiging om ondersteuning druppels van verschillende honderden microliters tot 1,5 mL zonder problemen. Aangezien het dekglaasje aan niet hoeft te worden verplaatst, leidt dit niet tot een technisch probleem. Op meer hydrofobe oppervlakken, zoals de SU-8 polymeer beklede dia's, kunnen zelfs 1,5 mL gedeponeerde12.
Opmerking: Lipiden moeten vers worden bereid, zoals blootstelling van de film gerehydrateerd lipide voor meer dan 20 min op RT tot verdamping van de buffer en gedeeltelijke dehydratatie van de eerder gerehydrateerd blaasjes leidt, die leidt tot een slecht gedefinieerd samenstelling. - De observatie-zaal voor te bereiden: als u wilt toestaan voor de uitwisseling van de buffer door middel van een automatische Pipet, die vereist is voor het initiëren van de ER-transformatie, een kamer observatie met een open top werd gebruikt. Deze kamer bestaat uit een Polydimethylsiloxaan (PDMS) frame met afmetingen 1.5 x 1.5 x 0.5 cm, gehouden op de Al2O3 gestort dekglaasje aan. Een regeling van de kamer gemonteerd observatie wordt weergegeven in Figuur 1G. De volgende stappen uit werden om het PDMS frame fabriceren en monteren van de observatie kamer uitgevoerd:
- Bereid een KOH-oplossing door het mengen van 100 g KOH met 100 mL isopropanol in een bekerglas in een ijsbad. Roer voor 10 h of langer totdat de KOH volledig is opgelost met behulp van een magneetroerder en magnetische roer plaat.
Let op: KOH-oplossing is corrosief en kan leiden tot brandwonden huid, dus altijd omgaan met de juiste persoonlijke beschermingsmiddelen.
Opmerking: De oplosbaarheid van KOH in isopropanol is niet zo hoog als in water. De ontbinding is exotherm. Breken van de KOH pellets voorafgaand aan de ontbinding en continu roeren is aan te raden. - Een glazen petrischaaltje dompelen (d = 6 cm) in de KOH-oplossing bij RT en houd het 's nachts.
- De volgende dag, de glazen schotel verwijderen uit de oplossing, het onderdompelen in een container met gedeïoniseerd water gedurende 5 minuten, meerdere malen het spoelen met water en plaats deze in een droogstoof bij 80 ° C gedurende 1 h. klap het oppervlak kort met een stikstofstroom om ervoor te zorgen dat deel icles worden verwijderd.
- Passivate van het oppervlak en hechting aan PDMS voorkomen, Pipetteer 200 µL van dimethyldichlorosilane met een plastic injectiespuit in een schone plastic container zoals een weging boot.
- Sla het glas petrischaal samen met de silane gedurende 1 uur in een geëvacueerd exsiccator (laag vacuüm, ~ 20 kPa).
Let op: Dimethyldichlorosilane is giftig en altijd onder een zuurkast met bijbehorende persoonlijke beschermingsmiddelen moeten worden behandeld. - Wacht 15 min voor het verzamelen van de petrischaal in orde voor de resterende dimethyldichlorosilane damp te verdrijven. De petrischaal is nu gesilaneerde, en het oppervlak is hydrofoob.
Opmerking: Een snelle manier om te testen het succes van deze stap is om een druppel water op de gesilaneerde petrischaal. De contacthoek van de druppel met het oppervlak moet zichtbaar worden verhoogd in vergelijking met onbehandelde glas. - Meng in een kunststoffles van 250 mL (transparant plastic beker vers van het pakket), 10 g silicone-elastomeer basis met 1 g silicone-elastomeer uithardende agent (10:1). Roer met een spatel van kunststof roerder/kunststof voor 5 min.
Opmerking: Luchtbellen worden gevormd op roeren, en het PDMS pale-wit zal kijken. - Droog het mengsel ontgas bij < 20 kPa totdat alle groeiende luchtbellen zijn ingestort (hoger vacuüm versnelt het proces). Giet de ontgaste mengsel in de gesilaneerde petrischaal.
- Genezen bij 65 ° C gedurende 2 uur in een oven.
Opmerking: Het is mogelijk om het dubbele van de uithardende snelheid door het verhogen van de temperatuur tot > 95 ° C. De toenemende uithardende temperatuur resulteert in een toename van de stijfheid van het materiaal. - De petrischaal gevuld met de uitgeharde PDMS aan RT afkoelen en verwijder het PDMS plaat met een spatel.
- Snijd met een scalpel, het frame in de afmetingen en de geometrie geschikt is voor de beschikbare opening in het stadium van de Microscoop. Afmetingen (lengte) 1,5 x 1,5 (breedte) x 0,5 (hoogte) cm zijn geschikt voor de meeste setups.
- De gladde kant (aan de onderkant die in contact met de petrischaal was) brengen van het PDMS frame in contact met de actieve kant van het oppervlak waar de film Al2O3 zich bevindt, en zachtjes toe te passen druk om te duwen van het frame en oppervlak tegen elkaar om ze te laten houden.
Opmerking: De hechting tussen het PDMS frame en Al2O3 substraat is zwak. De aanwezigheid van luchtbellen op de contact-interface kan de bijlage en, bijgevolg, de lekkage van de buffer en verwante inhoud. Het PDMS frame kan meerdere malen worden gebruikt als meteen na en vóór elk gebruik het is gespoeld met isopropanol, gevolgd door spoelen met DI water en föhnen met stikstof. De gesilaneerde petrischaal kan ook worden hergebruikt.
- Bereid een KOH-oplossing door het mengen van 100 g KOH met 100 mL isopropanol in een bekerglas in een ijsbad. Roer voor 10 h of langer totdat de KOH volledig is opgelost met behulp van een magneetroerder en magnetische roer plaat.
- Vul de observatie-zaal met Ca2 +HEPES - buffer (Zie Tabel van materialen).
Opmerking: Het oppervlak moet onmiddellijk na het pakket ontzegeling worden gebruikt. Contact met lucht leidt tot adsorptie van verontreinigingen, die de activiteit van het oppervlak geleidelijk vermindert. De kamer moet worden gevuld met buffer onmiddellijk na montage. Vult u het volume van de gehele kamer te voorzien van de toevoeging van de gerehydrateerd lipiden in de volgende stap niet. - Plaats de zaal op het podium van de confocal microscoop. Breng het gerehydrateerd lipide-materiaal, nu een opschorting met gigantische blaasjes, in de zaal met een plastic pipet van Pasteur (Figuur 1A-1 G).
- 10-20 min wachten om te laten de blaasjes houden op het substraat en verspreid over het oppervlak (Figuur 1H-1J).
Opmerking: De verspreiding begint onmiddellijk na de afzetting van lipiden aan de oppervlakte. Het tarief van de verspreiding kan lichtjes variëren afhankelijk van de samenstelling van lipide, Al2O3 afzetting techniek (ADL, RF-sputteren, chemische damp afzetting, enz.), versheid van het substraat en divalente kationen concentratie in de buffer. Ervoor zorgen dat de buffer uitwisseling wordt uitgevoerd voordat het bezwijken van de verspreiding flarden14. - Na het observeren van Verwijder meerdere lipide spreads, langzaam de ambient buffer via een automatische Pipet, zodanig dat alleen een dunne buffer film blijft aan de onderkant.
Opmerking: Snelle verwijdering van buffer ten de lipide structuren op het oppervlak. - De uitwisseling van ambient buffer voortzetten door zich langzaam vullen de kamer observatie met complexvormer-HEPES-buffer (Zie Tabel van materialen) met behulp van een automatische precisiepipet (Figuur 1K).
Opmerking: Abrupte toevoeging van buffer ten de lipide structuren op het oppervlak. - Deze laatste stap levert dynamische nanotubular netwerken, gevormd als gevolg van de complexvormer-geïnduceerde depinning en intrekking van de DLBM naar de MLV4 (Figuur 1L-1 jaar).
4. microscopie observatie
- Verwerven van de beelden met een omgekeerde laser confocal microscoop met een 40 X olie (1.3 nvt) onderdompeling doelstelling met een scan frequentie van 400 Hz. dienst scannen een witte lichte laserbron te prikkelen de Texas Red DHPE op 595 nm. Verzamelen van de emissie van 605 tot 700 nm met behulp van een hybride foton detector.
Opmerking: U kunt ook een epi-fluorescentie Microscoop kan worden gebruikt voor imaging. Afhankelijk van de lichtbronnen beschikbaar, selecteer een conjugaat passende lipide-kleurstof.
Resultaten
De schorsing van de lipide verkregen in stap 1 van het protocol en gebruikt tijdens de experimenten bevat twee hoofdtypen van blaasjes: MLVs en GUVs. Figuur 1 A-1F toont laser confocal microfoto van de blaasjes in de eerste steekproef gebouwd in 3D scannen. Figuur 1 A-1_C toont een MLV (lipide borg) in de xyz-, xz- en yz vliegtuigen, respectievelijk. Figuur 1 D-1F toont vergelijkbare standpunten van een gigantische unilamellar blaasje (GUV). Het binnenste deel van de GUVs, die geen multilamellarity, is hol; Vandaar, is het lipide-materiaal voor het verspreiden van aanzienlijk beperkt. Daarom is de enige nuttige lipide-reservoirs voor deze methode zijn MLVs.
Wanneer de schorsing lipide is overgebracht naar het cupje van de waarneming met de Ca2 +HEPES - buffer (Figuur 1G), beginnen de MLVs (Figuur 1A-1_C) te vestigen op het oppervlak Al2O3 . Bij contact, de blaasjes houden aan het oppervlak, en een ronde platte dubbele lipide dubbelgelaagde membraan (DLBM) begint te verspreiden van elke MLV op de vaste drager (Figuur 1H-1J). De MLV fungeert als een reservoir dat de lipiden de continu groeiende DLBM voorziet. De distale (bovenste) dubbelgelaagde membraan, met betrekking tot de solide steun, is verbonden met het proximale (lagere) dubbelgelaagde membraan langs de omtrek van de gebogen rand, uitvoeren van een afrollen (Figuur 1ik). De twee bilayers zijn botweg geplaatst boven op elkaar, slechts met een dunne vloeistof film ingekapseld tussen hen. Tijdens de verspreiding, het proximale membraan voortdurend houdt zich aan het oppervlak van de steun onder, terwijl de distale membraan lateraal aan de randen door de groeiende proximale membraan rand getrokken wordt. De verspreiding van de DLBM wordt gemedieerd door Ca2 +, die als een agent van de fusogenic tussen lipide hoofd groepen uit het proximale membraan en solide substraat4 fungeert.
Als de verspreiding blijft gedurende langere tijd, het membraan spanning toeneemt, leidt tot breuken (Figuur 2 en 2B). Na dat punt, kan membraan retractie, hetgeen noodzakelijk is voor de ER buisvormige morfologie maken, niet meer worden opgewekt. Het is daarom belangrijk om te erkennen van de gescheurde membranen. Aangezien de lipiden in onze experimenten fluorescently worden geëtiketteerd, het bezwijken direct waarneembaar. Een belangrijke indicator van bezwijken is de aanzienlijke daling van de intensiteit van de fluorescentie in de gescheurde regio (Figuur 2 en 2B)14. Het bezwijken is een gevolg van de toeneming van de spanning en de daaropvolgende porie vorming in het distale membraan. Onder een fluorescente microscoop, zal de gescheurde regio's dus halve de emissie-intensiteit (één proximale dubbelgelaagde) van de unruptured regio's (dubbele dubbelgelaagde)14 (Figuur 2B) vertonen. Tijdens de vorming van de porie migreert het membraan-materiaal, dat was aanvankelijk gepositioneerd op de gescheurde regio's, naar de randen van de verspreiding van de patch. Dit veroorzaakt op zijn beurt een groei van de totale oppervlakte van de patch. Een snelle expansie van de contour van de circulaire patch kan daarom ook worden waargenomen tijdens bezwijken.
Om te voorkomen dat de uitgebreide groei leidt tot de breuk van de patches, onmiddellijk nadat de circulaire patch gebied 100-200 µm bereikt, wordt de Ca2 +HEPES - buffer voorzichtig verwijderd met een automatische pipet tot een dunne film van vloeibare blijft op het oppervlak. De complexvormer-HEPES-buffer wordt dan zachtjes toegevoegd aan de zaal tot de intrekking (Figuur 1K). Een volledige uitdroging van het monster (Figuur 2C) of snelle uitwisseling van buffers (Figuur 2D en 2E) veroorzaakt verstoringen, bezwijken of vervorming van de patches. De toevoeging van de chelaatvormers verwijdert geleidelijk Ca2 + uit de ruimte tussen het oppervlak en membraan. De complexvormer-HEPES-buffer wordt geleidelijk de intersite-bilayer-substraat ruimte, vanaf de rand van het lipide membraan patch. Dus, de verwijdering van de pinning sites begint vanaf de randen van de circulaire patch en verspreidt zich naar binnen (Figuur 1K-1T). Als gevolg van depinning begint het lipide membraan te ontkoppelen en intrekken van de randen naar binnen, op weg naar de MLV in het midden. De intrekking proces leidt tot een nieuwe interface van dynamisch ontwikkelende lipidic buisvormige netwerken4 (Figuur 1L-1 jaar). De aanhoudende regio's van vastzetten, die niet is toegestaan het membraan om volledig los te maken, blijven op het oppervlak en mononucleate tabulation, leiden tot lange vertakte netwerk van nanobuisjes. (Figuur 1L-1 jaar). Continu-pinning en verdere intrekking van lipide nanotubes in acht worden genomen na verloop van tijd als gevolg van het proces van geleidelijke chelatie. Dit ruw maken en de omlegging van de takken netwerk speelt een sleutelrol in het dynamische gedrag van de tubulaire netwerken, die lijken op het gladde ER.
Figuur 1 L-1Y toont de microfoto van de netwerken van de nanobuis verkregen in het protocol. Figuur 1 L is dat een close-up van de regio in Figuur 1M gemarkeerd in het wit frame. De continue knalrood regio's in Figuur 1L en 1 M zijn het oprollen benodigde deel van de DLBM (gemarkeerd met een blauwe, onderbroken lijn in Figuur 1M). De opname van een buisvormige netwerk in Figuur 1N en 1O is omgekeerd contrast te verhogen. Figuur 1 P en 1T beeldt de vermindering van de tubulaire dichtheid op een membraan-regio in de loop van 3 h en 20 min. De daling van de tubulaire dichtheid optreedt als gevolg van de geleidelijke depinning gevolgd door retractie van de DLBM van het oppervlak in de experimentele periode. Na verloop van tijd, het aantal punten bevrijd van pinning toeneemt, leidt tot herschikkingen en een vermindering van de buizen (Figuur 1P en 1T) vallende gebied. De buisvormige herschikkingen zijn ingegeven door oppervlakte-vrije energie minimalisering van een lipide nanobuis geschorst tussen twee vaste punten. Het is goed vastgesteld dat de meest efficiënte manier van het minimaliseren van de oppervlakte-energie van een nanobuis is aan het verminderen van zijn lengte15. Daarom, wanneer de fusogenic regio's, die in eerste instantie de nanobuisjes op het oppervlak houdt, de vastgezette, de nanobuisjes schuif en schikken zich spontaan, tot vaststelling van een minimale lengte. Deze herschikkingen veroorzaken een geleidelijk verlaagd dekking van het oppervlak door de nanobuisjes (Figuur 1P en 1T).
Wij kan niet visualiseren de Ca2 +-gemedieerde vastmaken punten, maar wij stellen hun locaties als de punten waar de buizen terminal of scherpe bochten hebt. Scherpe bochten worden aangeduid als V-kruispunten15 of keerpunten vanwege de plotselinge verschuiving in de richting van de buis de uitlijning (groene pijlen in Figuur 1R en 1 X). Het eindpunt vormt het eindpunt van de buis, die verhindert dat de buis intrekken (oranje pijlen in Figuur 1X). Tijdens de re-organisatie, energiek gunstige vervreemding van buizen aangeduid als "Y-kruispunten" of "3-weg kruispunten", weergegeven. De Y-kruising verbindt drie buizen met ongeveer 120° hoeken tussen elke buis, waar de kortste totale buislengte kan worden beveiligd. De Y-kruispunten, die niet beschikken over een eindpunt en in plaats daarvan tussen meerdere nanobuisjes zijn geplaatst, zijn niet vastgemaakt. Dit is het enige type van Y-junction die uitvoeren kunt (blauwe pijlen, Figuur 1R) schuifdeuren. Zoals blijkt uit Figuur 1R en 1S, glijden van een Y-junction langs een zeer instabiele snijpunt resulteert in de vorming van twee afzonderlijke Y-kruispunten (blauwe pijlen in Figuur 1S). De onderbroken witte lijn bovenop op Figuur 1S vertegenwoordigt de contour van het fragment van de tubulaire netwerk in Figuur 1R. Een fractie van de Y-kruispunten bezit einde terminals (gele pijl in Figuur 1T) die, na verloop van tijd, uiteindelijk (Figuur 1U intrekken). De transformatie van een V-kruising naar een honkslag, rechte buis door het depinning van het snijpunt van de twee lijnsegmenten en tot intrekking van een van de buizen vormen de V-vorm kan worden waargenomen in Figuur 1V en 1W en Figuur 1X en 1 jaar, respectievelijk.
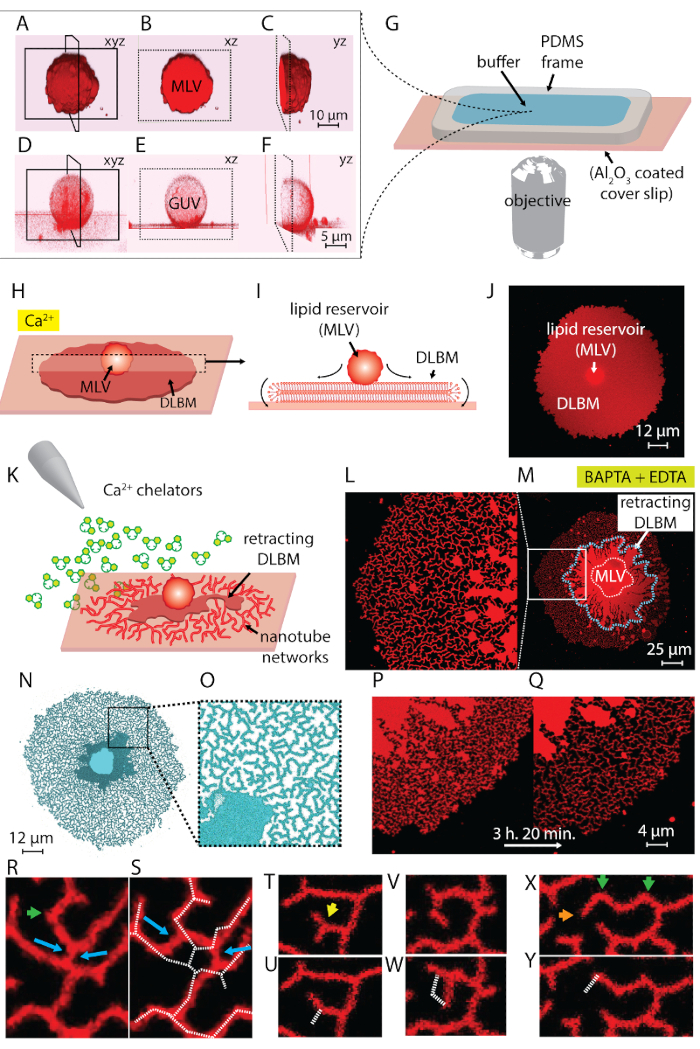
Figuur 1 : Transformatie van lipide stortingen op ER-achtige buisvormige netwerken. (A-F) Laser confocal microfoto van de blaasjes in de eerste steekproef, gebouwd in 3D scannen. (A-C) Multilamellar lipide Vesikel (MLV, lipide storting) in het xyz-, xz- en yz vliegtuigen, respectievelijk. (D-F) Vergelijkbare standpunten van een gigantische unilamellar blaasje (GUV). Het binnenste deel van de GUVs is hol, waardoor het lipide-materiaal voor het verspreiden van aanzienlijk beperkt. De nuttige lipide-reservoirs voor deze methode zijn daarom MLVs. (G) de illustratie van de kamer van de observatie gemonteerd op een omgekeerde Microscoop waarop de buffer en de lipiden zijn gestort. De kamer is samengesteld uit een PDMS frame nageleefd op een Al2O3 gecoat dekglaasje aan, bieden een open volume boven. (H-J) Illustratie van de verspreiding verschijnselen van de MLV in aanwezigheid van Ca2 +. (H) bij contact met Al2O3, de MLV spontaan verspreidt zich in de vorm van een circulaire, dubbele lipide dubbelgelaagde membraan (DLBM). (I) Schematische zijaanzicht van de DLBM in het xz-vlak, waar de periferieën afrollen uitvoeren. MLV (d = 5-15 µm) en DLBM (dikte = 10 nm) niet op schaal. (J) een confocal opname van een verspreiding DLBM van top-view. (K) beschrijft de belangrijkste stap van dit protocol, waar de buffer is uitgewisseld naar één met Ca2 + chelaat agenten, remming van de verspreiding, waardoor de MLV retractie van de DLBM en leidt tot de vorming van de lipide nanobuisjes. (L-Y) Microfoto van de netwerken van de nanobuis verkregen met de beschreven methode. (L) de close-up van de regio (M) gemarkeerd in een frame. De continue knalrood regio's in (L en M) vertegenwoordigen de DLBM (ook gemarkeerd met een blauwe, onderbroken lijn in M). De opname van een buisvormige netwerk in (N en O) is omgekeerd contrast te verhogen. (P en Q) Voorstelling van de vermindering van de tubulaire dichtheid op een membraan-regio in de loop van 3 h en 20 min. (R-Y) vertegenwoordiger tubulaire re regelingen. (R- en S) Glijden (T en U) van een Y-kruising naar V-junctie door retractie van één eindpunt, en (V en W)-pinning de overgang van een keerpunt, wat resulteert in de uitroeiing van een V-junctie. (X en Y) Intrekking van een eindpunt. Klik hier voor een grotere versie van dit cijfer.
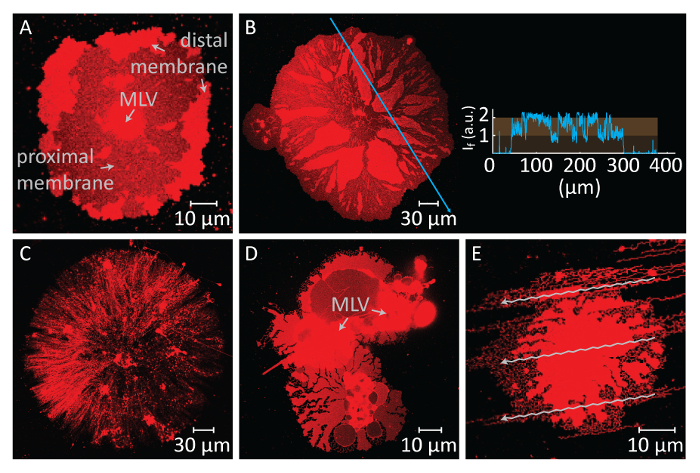
Figuur 2 : Potentiële negatieve resultaten. (A en B) Bezwijken van de distale membraan als gevolg van een lange wachttijd voor de uitwisseling van de buffers. De gescheurde gebieden, waar het proximale membraan zichtbaar wordt, verschijnen als donkere gebieden in vergelijking met de unruptured van de distale membraan-regio's. De inzet naar paneel B toont de lichtintensiteit langs de blauwe pijl op de opname. De intensiteit van de gescheurde regio's van het membraan (proximale/enkelvoudig dubbelgelaagde zichtbaar) komt overeen met de helft van de intensiteit van het unruptured membraan (distale/dubbele dubbelgelaagde). (C) verschijning van een patch droge lipide gevormd als gevolg van de verwijdering van alle vloeibare uit de observatie-zaal. (D en E) Verstoring van het membraan door snelle uitwisseling van buffers via automatische pipet. In (D), heeft de MLV opgesplitst in 2 MLVs, wat leidt tot een niet-cirkelvormige, gedeformeerde lipide-patch. (E), wordt het patroon van de stroom (pijlen), gemaakt door sterke injectie van de complexvormer-HEPES-buffer, weerspiegeld op de tubulated membraan structuur. Klik hier voor een grotere versie van dit cijfer.
Discussie
In de volgende bespreking, worden de kritische stappen, eventuele wijzigingen en beperkingen van het protocol beschreven. De eerste kritieke stap is de juiste montage van de kamer van de observatie, gezien het feit dat de hechting van het PDMS frame aan de oppervlakte van Al2O3 intrinsiek zwak is. In het geval waar het frame niet aan de ondergrond goed voldoet, de inhoud zal lekken uit de zaal van de observatie en het experiment tot stilstand zal komen. De belangrijkste factoren die een belemmering vormen voor goede afdichten van het oppervlak en frame zijn 1) een gebrek aan grondige reiniging van het frame PDMS (hergebruikt) en 2) luchtbellen die af en toe tussen frame en substraat gevangen krijgen. Een nieuw bereid of grondig gereinigde PDMS frame moet worden gebruikt. Het frame moet vóór en na elk gebruik met isopropanol, gevolgd door spoelen met DI water en föhnen met stikstof worden uitgespoeld. De Al2O3 oppervlakken vereisen voorafgaande reiniging, niet omdat ze vervaardigd in een cleanroom omgeving en in verzegelde containers bewaard tot gebruik. Vanwege de amfotere aard van Al2O3, mag het niet worden blootgesteld aan sterk zure of fundamentele oplossingen. Andere ontwerpen voor de kamer van de observatie kunnen worden toegepast, afhankelijk van de toegankelijkheid van de afzonderlijke instellingen. Belangrijke kenmerken van deze zaal zijn vrije toegang aan het vloeibare monster uit de open top en de inertheid van het materiaal van het frame met betrekking tot de gebruikte oplossingen en monsters. De afmetingen van de kamer zijn ook een belangrijke factor, aangezien zij moeten een volume van 0,5 tot 1 mL tegemoet. Aangezien de oppervlakken gebruikt meestal Standaardformaatapparaat coverslips (24 x 60 mm), wordt het volume van de ruimte wordt meestal bepaald door de dikte van het frame. Om onze kennis zijn afstandhouders met de grootte en diepte die is geschikt voor de steekproef volumes meestal afgehandeld in dit protocol niet commercieel beschikbaar. We hebben daarom een sectie in het protocol gewijd aan details voor de fabricage en assemblage van een monster kamer frame.
De andere kritieke stap in dit protocol is de uitwisseling van de buffer. Een uitdaging in deze stap is de timing nodig voor het uitvoeren van deze uitwisseling. De verspreiding van de MLV bij contact met de Al2O3 substraat is instant, en de voortdurende expansie van de DLBM leidt tot het bezwijken, tot beëindiging van het experiment (Figuur 2A, B). Daarom de verspreiding moet voortdurend worden gecontroleerd, en de uitwisseling van de buffer moet worden uitgevoerd in een tijdige wijze. De uitwisseling moet niet te snel worden uitgevoerd na de initialisatie van de verspreiding, zodat de membraan patches tot een optimale grootte (100-200 µm in diameter). Aan de andere kant, veroorzaakt continu hechting op de oppervlakte hoge membraan spanning, die tot het bezwijken leidt. Dus, alle membraan patches uiteindelijk breuk als verspreiding niet wordt onderbroken. De timing van het bezwijken verschilt voor elke patch, aangezien het afhangt van de grootte en de interne structuur van de MLV en toegankelijkheid van de lipiden daarin. Vandaar, het moment van de uitwisseling moet geregeld worden tot een timepoint waartegen de VN gescheurde patches met optimale maten een meerderheid van de gehele bevolking vertegenwoordigen. Een andere uitdaging in de buffer exchange stap is het tempo van verwijdering en aanvulling van de buffers. Uitvoeren van deze vervanging te snel heeft een nadelige invloed op de uiteindelijke membraan structuren (Figuur 2C-E). De buitensporige extractie van de Ca2 +HEPES - buffer zonder een dunne vloeistof film op de drager vervagen, resulteert in gedroogde en onherroepelijk misvormde membraan patches (Figuur 2C). Zelfs als een juiste hoeveelheid vloeistof wordt gehandhaafd op het oppervlak, veroorzaakt abrupte toevoeging van de complexvormer-HEPES-buffer ook verstoring van de membraan structuren. Figuur 2 D,E toont de typische uitstraling van hydrodynamica verstoord membraan patches. De totale morfologische verstoring betekent niet noodzakelijkerwijs de dynamische eigenschappen van de definitieve structuur (dat wil zeggen, de buisvormige herschikkingen in de overige gebieden nog steeds plaatsvindt). Het zal echter moeilijker te observeren de materiële transformatie op de misvormde structuren geworden. Bijvoorbeeld in Figuur 2Dzou het moeilijk om te bepalen van de richting waarnaar MLV de DLBM in de loop terugschuift.
Een eventuele wijziging van het protocol is de samenstelling van lipide gebruikt. De belangrijkste focus is op fosfolipiden die domineren de samenstelling ER bij zoogdieren en gist16 (e. g., dunlaag (PC), phosphatidylethanolamine (PE), en phosphatidylinositol (PI). De oorspronkelijke experimenten werden uitgevoerd met behulp van de PC en PI mengsels4. In de resultaten gepresenteerd, werd een mengsel van PC en DOPE en een afgeleide van PE gebruikt. Echter zijn niet alle willekeurige lipide composities gebleken de buisvormige structuren verkregen via dit protocol maken. Een paar van de andere experimenteel onderzochte lipide-mengsels betrekken totale hart extract, soy bean extract polar, E. coli extract polar, mengsels van PC met stearoyl-2-hydroxy-sn-glycero-3-phosphoinositol (Lyso-PI) in wisselende verhoudingen en mengsels van PC-PE-PI-Posphatidyl serine (PS) in wisselende verhoudingen. Aangezien tubulaire membraan structuren hoge kromming bezitten en speciale regeling van individuele lipide moleculen vereist, verwacht wordt dat de waargenomen fenomeen lipide samenstelling-specifieke is.
Een andere wijziging toegepast in dit protocol is de methode voor oppervlakte fabricage. Hier, was de ALD gewend het Al2O3 gecoat coverslips fabriceren. Dit verschilt van de methode van de oorspronkelijk gemeld depositie, reactieve4sputteren. Terwijl dit aangeeft dat een alternatieve oppervlakte fabricage methode nog steeds tot ER-achtige tubulation leiden kan, lijkt een belangrijke beperking te zijn van de specificiteit van materiaal van het oppervlak. De wijze van verspreiding en de kracht van hechting is sterk afhankelijk van de eigenschappen van het materiaal van het oppervlak, die invloed hebben op factoren zoals Elektrostatische interacties, bevochtigbaarheid, hydrophobicity en ruwheid van het oppervlak. Al2O3 oppervlakken zorgen voor optimale hechting stevigheid, en lipide-films kunnen beide hechten sterk genoeg te verspreiden als een dubbele lipide dubbelgelaagde membraan en loskoppelen met formulier buisvormige netwerken na verwijdering van Ca2 + ionen. We testten eerder hetzelfde experiment met SiO2, waarin de multilamellar vesikels verspreid als een dubbele lipide dubbelgelaagde membraan, maar geen buisvormige netwerk vorming werd waargenomen bij toevoeging van chelaatvormers17. De gehechtheid en de vorming van de buis alleen op Al2O3 zijn waargenomen of plasma geëtst Al18. Ons onderzoek is gebleken dat de bijdragende parameter leidt tot een dergelijk fenomeen de zeta was potentieel van de oppervlakken, waarvoor Al en Al2O3 waren dicht bij nul (mV) en SiO2 aanzienlijk negatief. Het potentieel van de zeta van borosilicaat is vergelijkbaar met SiO219; Daarom is de hechting van lipide films op borosilicaat even sterk en onomkeerbaar. In feite, leidt multilamellar lipide reservoir contact met borosilicaat oppervlakken meestal tot onmiddellijke breuk en vorming van één lipide bilayers20. De Al2O3 oppervlakken vereist voor dit protocol zijn niet gemakkelijk of commercieel beschikbaar. Ze kunnen echter aangepaste-besteld bij gespecialiseerde fabrikanten op het gebied van glas en substraat. Toegang tot cleanroom faciliteiten met dunne-film fabricage apparatuur wordt sterk aanbevolen.
De andere bestaande onderop methodes te fabriceren ER-achtige buisvormige netwerken2,10 omvatten zowel eiwitten als invoer voor chemische energie (bv., GTP en ATP). Rapoport en collega's2 gemeld de vorming van ER-netwerken op glas coverslips in vitro door het mengen van de membraan-buigen eiwitten aanwezig in ER, met de fosfolipiden en GTP. Het werk van de vrijgezel et al. 10 toont hoe dergelijke dynamische buisvormige netwerken kunnen worden gemaakt met behulp van moleculaire motoren en ATP als de bron van energie. Dit protocol gepresenteerd vereist geen membraaneiwitten of hydrolyse van organische stoffen voor energie. Alleen essentiële componenten zijn de stevige ondergrond en de fosfolipiden. Zuivering en extractie van eiwitten zijn niet nodig. Dit protocol voorziet in termen van de eenvoud van de constitutieve moleculen, de meest elementaire ER-model.
Met deze fundamentele, lipide gebaseerde ER vastgesteld model, is opbouw van complexiteit door toe te voegen ER-geassocieerde onderdelen van belang, omdat hierdoor onderzoek van individuele effecten op het systeem. Gelijkaardig aan de eigenlijke ER netwerken, buizen in het model zijn dynamisch. De vervoeging aan en de migratie van de gelabelde membraaneiwitten, of TL deeltjes in de tubulaire netwerk, kunnen geven informatie over de richting van de beweging van de membraan. Inkapseling en controle van de fluorescerende vloeistoffen binnen de DLBM en de buizen tijdens de transformatie en een mogelijke toewijzing van de intratubular inhoud vervoer kunnen dienen als een andere focus. Tot slot, een overgang van de 2D ER-model als gevolg van dit protocol naar een 3D-model voor het gladde ER kan worden vastgesteld door middel van de inkapseling van de netwerken in hydrogel platforms.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
We bedanken Prof. Aldo Jesorka van de Technische Universiteit Chalmers in Zweden voor zijn waardevolle opmerkingen over het manuscript. Dit werk werd mogelijk gemaakt door financiële steun verkregen uit de projectsubsidie onderzoek Raad van Noorwegen (Forskningsrådet) 274433, UiO: Life Sciences convergentie milieu, de Zweedse Onderzoeksraad (Vetenskapsrådet) Project subsidie 2015-04561, evenals de start-up financiering verstrekt door het Centre for Molecular Medicine Noorwegen & faculteit Wiskunde en natuurwetenschappen aan de Universiteit van Oslo.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Peer-vormige fles 10 mL | Lenz Laborglasinstrumente | 3.0314.13 | Waar de lipidenmengsel wordt bereid |
| Hamilton 5 mL glazen spuit (P/N) | Hamilton | P/N81520 | Voor overdracht van het chloroform naar beker |
| Aangepaste grote hubnaald Gauge 22 S | Hamilton | 7748-18 | Verwijderbare naald voor spuit gespecificeerd in rij 3 |
| Hamilton 250 µL glazen spuit | Hamilton | 7639-01 | Gebaat voor overdracht van lipiden in chloroform naar de fles |
| Grote hub Gauge 22 S | Hamilton | 7780-03 | Verwijderbare naald voor spuit gespecificeerd in rij 5 |
| Hamilton 50 µL glazen spuit | Hamilton | 7637-01 | Gebaat voor overdracht van fluorofoor-geconjugeerde lipiden naar de fles |
| Kleine hub Gauge 22 S | Hamilton | 7770-01 | Verwijderbare naald voor spuit gespecificeerd in rij 7 |
| Chloroform watervrij (≥99%) | Sigma-Aldrich | 288306 | Gebaat om de lipidenmengsel aan te vullen tot een totaal van 300 µL |
| Soy L-α Fosfatidylcholine lipid (Soy PC) | Avanti Polar Lipids Inc | 441601 | fosfolipide soort die bijdraagt aan 69% van de totale samenstelling/mengsel |
| 1,2-dioleoyl-sn-glycero-3-fosfoethanolamine (DOPE) | Avanti Polar Lipids Inc | 850725 | fosfolipide soort die bijdraagt aan 30% van de lipidensamenstelling/mengsel |
| L-α Fosfatidyl inositol lipid (Soy PI) | Avanti Polar Lipids Inc | 840044 | alternatieve fosfolipide soort die bijdraagt aan 30% van de lipidensamenstelling/mengsel (uit het originele artikel Bilal en Gözen, Biomaterials Science, 2017) |
| Texas Red 1,2-dihexadecanoyl-sn-glycero-3-fosfoethanolamine, triethylammoniumzout (Texas Red DHPE) | Invitrogen (Thermo Fisher Scientific) | T1395MP | Fluorescente lipid-conjugaat, 1% van de lipidensamenstelling/mengsel |
| Digitale droogbaden/blokverwarmers | Thermo Fischer | 88870006 | Om glycerol te verwarmen om de viscositeit ervan te verminderen |
| Glycerol voor moleculaire biologie (≥99%) | Sigma Life Science | G5516 | Voor lipidenvoorbereiding |
| PBS-buffer (pH=7.8); ingrediënten hieronder in rijen 17-21 | Gebaat om de lipidensuspensie te bereiden | ||
| TRIZMA-base, primaire standaard en buffer (≥99%) | Sigma Life Science | T1503 | Gebaat om PBS-buffer te bereiden |
| Kaliumfosfaat tribasisch, reagentiakwaliteit (≥98%) (K3PO4) | Sigma-Aldrich | P5629 | PBS-buffer ingrediënt |
| Magnesiumsulfaat heptahydraat, BioUltra (≥99,5%) KT (MgSO47H2O) | Sigma Life Science | 63138 | PBS-buffer ingrediënt |
| Kaliumfosfaat monobasisch, watervrij, vrijstromend, Redi-Dri, ACS (KH2PO4) | Sigma-Aldrich | 795488 | PBS-buffer ingrediënt |
| Ethyleendiaminetetraazijnzuur dinatriumzout dihydraat ACS-reagens, 99,0-101,0% (Na2EDTA) | Sigma-Aldrich | E4884 | PBS en Chelator-HEPES buffer ingrediënt |
| Ultrasoonreiniger USC-TH | VWR | 142-0084 | Ultrasoonbehandeling van gerehydrateerde lipiden |
| Rotorverdamper - Büchi roterende verdamper Model R-200 | Sigma | Z626797 | Voor verdamping van chloroform |
| Drukmeter - Vacuümregelaar IRV-100 | SMC | IRV10/20 | Voor controle van de drukwaarde tijdens lipidenuitdroging |
| HEPES-buffer (pH=7.8); ingrediënten hieronder in rijen 26-27 | Gebaat voor rehydratie van lipiden. Inhoud: 10 mM HEPES met 100 m NaCl verdund in ultrapuur gedeïoniseerd water | ||
| HEPES ≥99,5% (titratie) | Sigma Life Science | H3375 | HEPES-buffer ingrediënt |
| Natriumchloride voor moleculaire biologie, DNase, RNase en protease, niet gedetecteerd, ≥98% (titratie) (NaCl) | Sigma Life Science | S3014 | HEPES-buffer ingrediënt |
| Calcium-HEPES buffer (pH=7.8); effectieve ingrediënt hieronder in rij 29 | Gebaat voor verspreiding van lipiden. Inhoud: 10 mM HEPES, 100 mM NaCl, 4 mM CaCl2 verdund in ultrapuur gedeïoniseerd water | ||
| Calciumchloride watervrij, BioReagent, geschikt voor insectencelcultuur, geschikt voor plantencelcuur, ≥96,0% (CaCl2) | Sigma Life Science | C5670 | Om Calcium-HEPES buffer te bereiden |
| Chelator-HEPES buffer (pH=7.8); effectieve ingrediënt hieronder in rij 31 | Gebaat om de vorming van tubulaire netwerken te bevorderen. Inhoud: 10 mM HEPES, 100 mM NaCl, 10 mM EDTA en 7 mM BAPTA verdund in ultrapuur gedeïoniseerd water | ||
| 1,2-Bis(2-aminofenoxy)ethaan-N,N,N',N'-tetraazijnzuur tetranatriumzout ≥95% (HPLC) (BAPTA-Na4) | Sigma Life Science | 14513 | Chelator-HEPES buffer ingrediënt |
| Natriumhydroxide | Sigma | 30620 | Basische oplossing gebruikt om de pH van de buffers aan te passen |
| pH meter accumet™ AE150 pH | Fisher Scientific | 1 |
Referenties
- Chen, S., Novick, P., Ferro-Novick, S. ER structure and function. Current Opinion in Cell Biology. 25 (4), 428-433 (2013).
- Powers, R. E., Wang, S., Liu, T. Y., Rapoport, T. A. Reconstitution of the tubular endoplasmic reticulum network with purified components. Nature. 543 (7644), 257-260 (2017).
- Pendin, D., McNew, J. A., Daga, A. Balancing ER dynamics: Shaping, bending, severing, and mending membranes. Current Opinion in Cell Biology. 23 (4), 435-442 (2011).
- Bilal, T., Gözen, I. Formation and dynamics of endoplasmic reticulum-like lipid nanotube networks. Biomaterials Science. 5 (7), 1256-1264 (2017).
- Shibata, Y., et al. Mechanisms determining the morphology of the peripheral ER. Cell. 143 (5), 774-788 (2010).
- Ozcan, L., Tabas, I. Role of endoplasmic reticulum stress in metabolic disease and other disorders. Annual Review of Medicine. 63, 317-328 (2012).
- Yamanaka, T., Nukina, N. ER dynamics and derangement in neurological diseases. Frontiers in Neuroscience. 12, (2018).
- Taalab, Y. M., et al. Mechanisms of disordered neurodegenerative function: Concepts and facts about the different roles of the protein kinase RNA-like endoplasmic reticulum kinase (PERK). Reviews in the Neurosciences. , (2018).
- Shemesh, T., et al. A model for the generation and interconversion of ER morphologies. Proceedings of the National Academy of Sciences of the United States of America. 111 (49), 5243-5251 (2014).
- Bouxsein, N. F., Carroll-Portillo, A., Bachand, M., Sasaki, D. Y., Bachand, G. D. A continuous network of lipid nanotubes fabricated from the gliding motility of kinesin powered microtubule filaments. Langmuir. 29 (9), 2992-2999 (2013).
- Sackmann, E. Endoplasmatic reticulum shaping by generic mechanisms and protein-induced spontaneous curvature. Advances in Colloid and Interface Science. 208, 153-160 (2014).
- Jesorka, A., et al. Generation of phospholipid vesicle-nanotube networks and transport of molecules therein. Nature Protocols. 6, 791(2011).
- Hook, D. A., Olhausen, J. A., Krim, J., Dugger, M. T. Evaluation of Oxygen Plasma and UV Ozone Methods for Cleaning of Occluded Areas in MEMS Devices. Journal of Microelectromechanical Systems. 19 (6), 1292-1298 (2010).
- Gözen, I., et al. Fractal avalanche ruptures in biological membranes. Nature Materials. 9 (11), 908-912 (2010).
- Lobovkina, T., Dommersnes, P., Joanny, J. -F., Hurtig, J., Orwar, O. Zipper Dynamics of Surfactant Nanotube Y Junctions. Phys Rev Lett. 97, (2006).
- van Meer, G., Voelker, D. R., Feigenson, G. W. Membrane lipids: where they are and how they behave. Nature Reviews Molecular Cell Biology. 9 (2), 112-124 (2008).
- Gözen, I., et al. Repair of large area pores in supported double bilayers. Soft Matter. 9 (10), 2787-2792 (2013).
- Gözen, I., et al. Thermal migration of molecular lipid films as a contactless fabrication strategy for lipid nanotube networks. Lab on a Chip. 13 (19), 3822-3826 (2013).
- Sides, P. J., Hoggard, J. D. Measurement of the Zeta Potential of Planar Solid Surfaces by Means of a Rotating Disk. Langmuir. 20 (26), 11493-11498 (2004).
- Nissen, J., Jacobs, K., Rädler, J. O. Interface Dynamics of Lipid Membrane Spreading on Solid Surfaces. Physical Review Letters. 86 (9), 1904-1907 (2001).
Herprints en machtigingen
