We hebben een protocol geoptimaliseerd voor het isoleren en zuiveren van Murine cardiale pericytes voor fundamenteel onderzoek en onderzoek naar hun biologie en therapeutisch potentieel.
Methodenartikel
Isolatie en zuivering van Murine cardiale Pericytes
In dit artikel
Samenvatting
Samenvatting
Pericytes, perivasculaire cellen van micro vaten en haarvaten, zijn gekend om een rol te spelen in angiogenese, stabilisatie van het vat en integriteit van de endotheliale barrière. Echter, hun weefsel-specifieke functies in het hart zijn niet goed begrepen. Bovendien is er momenteel geen protocol dat gebruik maakt van gemakkelijk toegankelijke materialen om pericytes aan cardiale oorsprong te isoleren en te zuiveren. Ons protocol richt zich op het gebruik van het veel gebruikte zoogdier model, de muis, als onze bron van cellen. Met behulp van de enzymatische spijsvertering en mechanische dissociatie van hartweefsel, we verkregen een ruwe celmengsel dat verder werd gezuiverd door fluorescentie activeren cel sortering (FACS) door een overvloed aan markers. Omdat er geen eenduidige marker voor pericytes, we gated voor cellen die waren CD31-CD34-CD45-CD140b+ng2 + CD146+. Na zuivering werden deze primaire cellen gecultiveerde en meerdere malen doorgegeven zonder veranderingen in de morfologie en marker expressie. Met de mogelijkheid om regelmatig primaire Murine cardiale pericytes met behulp van ons protocol te verkrijgen, hopen we de rol van pericytes aan cardiovasculaire fysiologie en hun therapeutische potentieel verder te begrijpen.
Inleiding
Perivasculaire cellen bekend als pericytes omringen de micro vaten en haarvaten van de vasculaire boom1,2. Fysiologisch, ze zijn bekend om te bevorderen en een rol spelen in angiogenese, verhogen barrière integriteit als gevolg van hun nauwe relatie met endotheliale cellen, alsmede stabiliseren en volwassen vaartuigen1,2. Bovendien, de dysfunctie en/of het verlies van deze cellen zijn betrokken bij ziekten zoals de ziekte van Alzheimer2,3 en diverse cardiovasculaire aandoeningen4. Deze cellen zijn te vinden in het hele lichaam, maar de celaantallen zijn weefsel afhankelijk. Pericytes zijn vooral bestudeerd in de hersenen als gevolg van hoge vascularisatie van de bloed-hersen barrière1,2. Echter, in het hart, de biologie van pericytes is onderonderzocht.
Onlangs, er zijn toegenomen belangen in het veld voor cardiale pericytes, maar er is momenteel geen gestroomlijnd protocol beschikbaar voor hun isolatie van een van de meest gebruikte instrumenten in de biologie-de muis. Er zijn protocollen in de literatuur over het isoleren van pericytes aan de hersenen5, Retina6, placenta7en skeletspieren8,9; echter, weinig protocollen zijn op het isoleren van pericytes uit het hart. Er zijn verschillende groepen die hebben geïsoleerd cardiale pericytes. Nees et al. waren in staat om een overvloedige hoeveelheid cardiale pericytes te isoleren van meerdere soorten, waaronder de muis; hun methoden gebruikten echter specifieke in-House gebouwde apparatuur die de reproduceerbaarheid10verlaagt. Avolio et al.11, Chen et al.12, en Baily et al.13 ook met succes geïsoleerd cardiale pericytes van menselijk hartweefsel, maar menselijke weefsels zijn niet altijd beschikbaar en moeilijk te verkrijgen voor sommige onderzoekers. Hier hebben we een isolatiemethode ontwikkeld om cardiale pericytes van Muismodellen te verkrijgen voor onderzoekers om hun biologie verder te bestuderen met gemakkelijk beschikbare materialen.
Met behulp van enzymatische spijsvertering en fluorescentie geactiveerde celsortering (FACS) met bekende sleutel pericyte markers14, ons protocol stelt ons in staat om te isoleren en zuiveren van een populatie van pericytes die worden gekenmerkt door CD31-CD34-CD45- CD140b+ng2+CD146+. Ons panel van markers bevat zowel opname-als uitsluitings markeringen. CD45 wordt gebruikt als een marker om hematopoietische cellen uit te sluiten. CD31 wordt gebruikt als marker om endotheel cellen uit te sluiten. CD34 wordt gebruikt als een marker om zowel hematopoietische als endotheliale voorlopercellen uit te sluiten. CD146 is een marker voor perivasculaire cellen. Tot slot, NG2 en CD140b (ook bekend als bloedplaatjes afgeleide groeifactor receptor bèta — PDGFRβ) zijn beide geaccepteerde markers voor pericytes14. De verkregen primaire cultuur kan meerdere malen worden gekweekt en doorgangen zonder veranderingen in de morfologie of de marker expressie. Bovendien kunnen deze cellen worden medegekweekt met endotheel cellen om hun interacties en overspraak met elkaar te bestuderen. Deze cel isolatiemethode zal onderzoekers toelaten om de biologie en pathofysiologie van cardiale pericytes van wild type, ziekte, en genetisch variant Muismodellen bestuderen.
Protocol
Alle dieren werden ondergebracht en gebruikt in een vereniging voor de beoordeling en accreditatie van de geaccrediteerde faciliteit voor laboratoriumdieren verzorging International (AAALAC) en alle dierlijke werkzaamheden werden uitgevoerd onder passend veterinair toezicht en onder de institutionele dier Zorg-en gebruiks Comité (IACUC) goedgekeurd Protocol van Amgen Inc.
1. voorbereiding van gereedschap en cultuur media
- Autoclaaf chirurgisch 9 cm rechte punt schaar en 10 cm gehoekte Tang.
- Voeg 25 mL 5% foetaal runderserum (FBS) en 5 mL 1% penicillaire streptomycine (P/S) toe aan een flesje van 500 mL calcium magnesium vrij Dulbecco's fosfaat-gebufferde zoutoplossing (CMF-DPBS). Plaats de oplossing in een ijsbad om te zorgen dat het koud zal zijn op het moment van gebruik. Aliquot 50 mL in een conische buis van 50 mL voor hart isolatie. Voeg in 250 eenheden/mL heparine natrium oplossing toe aan de 50 mL aliquot. Dit zal worden aangeduid als de gehepariniseerd CMF-dpbs.
- Voeg 20% FBS (100 mL) en 1% P/S (5 mL) toe aan een fles van 500 mL met hoge glucose Dulbecco's gemodificeerde eagle's medium (DMEM). Dit wordt de enzym vrije kweekmedia genoemd. Aliquot 20 mL DMEM + 20% FBS + 1% P/S en voeg toe in 500 μg/mL Collagenase B. Dit wordt de enzym oplossing genoemd. Houd zowel de enzym-vrije kweekmedia als de enzym oplossing warm bij 37 °C in een incubator of waterbad.
2. bereiding van dier en aankoop van hartweefsel
- Intraperitoneaal Injecteer een muis met 250 eenheden heparine natrium oplossing met een 31 G naald spuit. Wacht vervolgens 10 − 15 minuten terwijl de muis actief blijft in zijn huis kooi.
Opmerking: Representatieve gegevens in deze studie werden verkregen van een 4 maanden oude mannelijke C57BL/6 muis. Dit protocol kan echter op elke muis worden gebruikt, ongeacht stam, leeftijd, geslacht, gewicht, enz. - Anesthetiseer de muis met 5% isoflurane. Controleer de anesthesie diepte van de muis door knijpen reflex.
- Plaats de verdoofd Mouse in rugligging positie en plak de voorvoet in de voorgrond. Open voorzichtig de borstholte en cannulaat de aflopende aorta met behulp van een 25 G vlindernaald.
- Maak een Nick in het rechter atrium en parfumeer het hart met ten minste 20 ml 250 eenheden/ml gehepariniseerd CMF-dpbs bij 2 ml/min met een variabele-flow peristaltische pomp. Wanneer de PBS uit de juiste atria-clean komt, is perfusie compleet.
- Snijd het hart in de aorta en plaats het in de ijskoude CMF-DPBS.
3. dissociatie van hartweefsel
- Breng het hart over in een Petri schaaltje van 15 cm x 15 cm. Snijd het hart in kleine stukjes (1 mm/stuk) met behulp van veer schaar en fijne punt Tang met voldoende enzym oplossing om de stukken te bedekken (10 − 15 mL).
- Breng de stukken en de oplossing over in een conische buis van 50 mL, sluit af met een plastic folie van paraffine en inincuberen bij 37 °C op een rondschudapparaat bij 120 rpm gedurende 75 min.
- Na Collagenase spijsvertering met de enzym oplossing, decanteren de vloeistof door een 100 μm cel zeef in een nieuwe 50 mL buis maar laat voldoende oplossing om ervoor te zorgen dat de stukken niet uitdrogen.
- Met behulp van fijne punt Tang, haal het weefsel uit de buis en plaats een paar stukjes op een Microscoop glijbaan. Slijp vervolgens het weefsel tussen twee Microscoop dia's om het weefsel te breken. Spoel de dia's met de enzym vrije kweekmedia in een nieuwe conische buis van 50 mL.
- Herhaal stap 3,4 totdat alle weefsel stukken zijn losgekoppeld.
- Combineer de oplossingen van de stappen 3.3 − 3.5 in één buis. Zeef de resulterende suspensie door een 100 μm celzeef in een nieuwe conische buis van 50 mL.
- Centrifugeer bij 220 x g, 4 °c, gedurende 5 min. aspirate uit vorige oplossing en voorzichtig respenderen celpellet in verse enzym-vrije cultuur media.
- Tel cellen en controleer de levensvatbaarheid met behulp van een cel teller. Verdun cellen tot 1 x 10⁶/ml met een koude FACS kleurings buffer met 500 ml dpbs en 10 − 25 ml van 2 − 5% boviene serumalbumine (BSA). De cellen zijn klaar om te worden gekleurd en gesorteerd.
4. zuivering van Pericytes aan ruw Celmengsel met behulp van FACS
- Bereid en label 5 mL FACS buizen voor alle besturingselementen en celmonsters. Aliquot-cellen (1 mL cellen per buis) voor een onbevlekt monster, fluorescentie minus één (FMO)-besturingselementen en Isotype-afgestemde controles. Gebruik de resterende cellen voor de sorteervolgorde. Alle bedieningselementen en samples kunnen tegelijkertijd worden voorbereid en gekleurd.
Opmerking:Een totaal van 13 mL bij 0,5 x 10⁶cellen/mL werden gebruikt voor de representatieve sortering uit één hart. Het volume hangt echter af van het aantal cellen dat de onderzoeker verkrijgt uit hun isolement, hoeveel harten ze gebruiken en hoe goed het hartweefsel wordt verteerd; de grootte van elk hart is ook een variabele die het volume kan veranderen.- Gebruik compensatie kralen (tabel met materialen) om fluorescentie compensatie controles te optimaliseren. Bereid één compensatieregeling voor elk fluor chroom in het experiment in een gelabelde 5 mL FACS Tube. Voor dit experiment, voorbereiden van een totaal van 9 compensatie controles-2 soorten Onbevlekte kralen plus 7 verschillende fluorochromes van het markerings paneel met inbegrip van NG2-FITC, CD31-APC, CD140b-PE, CD146-BV605, CD34-BV421, CD45-PE-Cy7, en levensvatbaarheid van de cel-APC-Cy7 ( Tabel met materialen).
- Voeg één druppel compensatie kralen (~ 50 μL) toe van de knijp flacon in elke buis. Voeg vervolgens 1 μL antilichaam toe aan de kralen. Herhaal dit voor elk antilichaam in het markerings paneel. Meng krachtig door puls-vortexing. Inbrokkelen gedurende 30 minuten bij 4 °C beschermd tegen licht, met uitzondering van de levensvatbaarheid van de cellen die kunnen worden achtergelaten bij kamertemperatuur beschermd tegen licht.
- Voeg vervolgens 3 mL FACS kleuring buffer toe aan elke buis en centrifugeer bij 300 x g gedurende 5 minuten bij 4 °c. Aspirate-oplossing en hervat elke kraal pellet in 400 μL FACS kleurings buffer. De compensatie controles zijn klaar om te worden gebruikt. Blijf op ijs.
- Gebruik FMO-besturingselementen om achtergrondkleuring te optimaliseren als gevolg van spectrale overlap.
- Bereid FMO-besturingselementen voor door 1 mL cellen te gebruiken die in een 5 mL FACS Tube zijn geciteerd uit punt 4,1 en toe te voegen aan alle antilichamen van het markerings paneel zoals beschreven in stap 4.1.1 bij een verdunning van 1:100 maar met uitzondering van één antilichaam. Bereid bijvoorbeeld een NG2-AF488 FMO met antilichamen voor CD31-APC, CD140b-PE, CD146-BV605, CD34-BV421, CD45-PE-Cy7, kleurstof voor de levensvatbaarheid van de cellen, maar niet het NG2-AF488 antilichaam. Meng zachtjes door puls-vortexing. Herhaal dit voor elk antilichaam voor een totaal van 7 controles. Inincuberen gedurende 30 minuten bij 4 °C beschermd tegen licht.
- Voeg vervolgens 3 mL FACS kleuring buffer toe aan elke buis en centrifugeer bij 300 x g gedurende 5 minuten bij 4 °c. Aspirate-oplossing en reresumeer elke celpellet in 400 μL FACS kleurings buffer. De FMO-besturingselementen zijn klaar om te worden gebruikt. Blijf op ijs.
- Gebruik Isotype-gecompenseerde controle antilichamen (inhoudstafel) voor niet-specifieke kleuring.
- Bereid Isotype-besturingselementen door de Isotype-gecompenseerde controle antilichamen (tabel met materialen) toe te voegen aan 1 ml celmonster, bereid uit paragraaf 4,1 bij een 1:100 verdunning elk in een 5 ml FACS buis. Meng zachtjes door puls-vortexing. Inincuberen gedurende 30 minuten bij 4 °C beschermd tegen licht.
- Voeg vervolgens 3 mL FACS kleuring buffer toe aan elke buis en centrifugeer bij 300 x g gedurende 5 minuten bij 4 °c. Aspirate-oplossing en reresumeer elke celpellet in 400 μL FACS kleurings buffer. De Isotype-bedieningselementen zijn klaar om te worden gebruikt. Blijf op ijs.
- Bereid de cellen voor om gesorteerd te worden door een antilichaam cocktail toe te voegen aan vers geïsoleerde cellen.
- Bereid het celmonster uit paragraaf 4,1 door toevoeging van een antilichaam cocktail met anti-muis NG2-AF488, CD31-APC, CD140b-PE, CD146-BV605, CD34-BV421, CD45-PE-Cy7 bij 1:100 verdunning en kleurstof voor de levensvatbaarheid van de cellen bij 1:1000 verdunning. Zachtjes Vortex om te mengen. Inincuberen monsters bij 4 °C gedurende 30 minuten beschermd tegen licht.
- Na het vlekken, spoel cellen met een FACS kleuring buffer door centrifugeren bij 300 x g gedurende 5 min 4 °c. Aspirate-oplossing en reresumeer de celpellet in FACS kleurings buffer naar 0,5 x 10⁶ cellen/ml.
- Gebruik nieuwe FACS tubes met 35 μm filter tops, Pipetteer gekleurde celmonsters op de deksels en zwaartekracht filtraat om enkelvoudige celsuspensies te verkrijgen. Blijf op ijs.
- Gebruik compensatie kralen (tabel met materialen) om fluorescentie compensatie controles te optimaliseren. Bereid één compensatieregeling voor elk fluor chroom in het experiment in een gelabelde 5 mL FACS Tube. Voor dit experiment, voorbereiden van een totaal van 9 compensatie controles-2 soorten Onbevlekte kralen plus 7 verschillende fluorochromes van het markerings paneel met inbegrip van NG2-FITC, CD31-APC, CD140b-PE, CD146-BV605, CD34-BV421, CD45-PE-Cy7, en levensvatbaarheid van de cel-APC-Cy7 ( Tabel met materialen).
- Gebruik een celsorteerder om cellen te zuiveren.
- Voer de niet-bevlekte cellen op de celsorteerder uit om spanningen in te stellen en corrigeer voor het achtergrond signaal (Stel bijvoorbeeld spanningen in voor voorwaartse spreiding naar 490 − 560 en voor zijspreiding naar 180 − 250).
- Voer elke enkele kleur compensatie kraal monster een voor een om spanningen voor elk kanaal aan te passen en de poorten voor het positieve signaal aan te passen. Gegevens verzamelen. Gebruik de software om te berekenen voor spectrale overlap door de compensatiematrix te berekenen. Alle spanningen zijn klaar en ingesteld.
- Voer elk Isotype-besturingselement een voor een uit en deze gegevens kunnen worden gebruikt om Gates aan te passen voor niet-specifieke binding als die er zijn.
- Voer elke FMO-sample één op tijd uit en pas de spanningen voor elk kanaal aan om te corrigeren voor spectrale afloop door een multi-kleuren paneel.
- Voer de bevlekte celmonsters in de celsorteerder en verzamel cellen in 10 mL-enzym vrije kweekmedia (DMEM + 20% FBS + 1% P/S) in een conische verzamelbuis van 15 mL. Gebruik de volgende gating strategie: Gate voor enkele cellen, poort voor levende cellen, poort voor CD45 negatieve cellen, poort voor CD34 en CD31 negatieve cellen, poort voor NG2 positieve cellen, en ten slotte Gate voor CD146 en CD140b positieve cellen.
5. culturing van Pericytes
- Jas een 24-goed bord met 0,2% gelatine voor 5 min en aspiraat uit gelatine oplossing. Zaai vers verkregen cellen uit stap 4.2.5 in DMEM + 20% FBS + 1% P/S tot 2 x 10⁴ cellen/cm2. Kweekcellen in een celincubator ingesteld op 37 °C, 5% CO2 en 95% O2.
- Passage van pericytes
- Zodra de cellen 95% Confluent zijn, wassen cellen met warme 1x DPBS, en heffen cellen met 200 μL 0,1% trypsine in elk goed bij kamertemperatuur voor 3 − 5 min.
- Tik zachtjes op de plaat om de cellen los te maken.
- Neutraliseer de trypsine met 3.5 x de hoeveelheid kweekmedia (700 μL DMEM + 20% FBS + 1% P/S) en zaad passage twee (P2) cellen op een ongecoate 6-put plaat op 2 x 10⁴ cellen/cm2.
- Elk goed, wanneer Confluent, kan worden verplaatst in een enkele T-75 kolf als P3 cellen die vervolgens kunnen worden gesplitst bij een 1:6 ratio.
6. karakterisering van Pericytes
-
Analyse van flow cytometrie
- Gebruik hetzelfde FACS-kleurings protocol en de gating-strategie zoals eerder beschreven in sectie 4.
- Voer besturingselementen en bevlekte monsters op de flow cytometer. Gegevens verzamelen en analyseren met behulp van de analyse software (tabel met materialen).
- Om brightfield-beelden te verzamelen, kweek je cellen in een kolf in een celincubator die is ingesteld op 37 °C, 5% CO2 en 95% O2. Leg beelden vast op een Microscoop nadat de cellen aan het oppervlak zijn bevestigd.
-
Immunocytochemie
- Kweekcellen in een 96-put plaat tot 90% Confluent. Spoel cellen met warm 1x DPBS en fixeer met 4% Paraformaldehyde gedurende 30 minuten bij kamertemperatuur.
- Was cellen 3x met 1x DPBS en permeabilize met 0,1% wasmiddel gedurende 10 minuten bij kamertemperatuur.
- Inincuberen cellen met blokkeerbuffer voor 1 uur bij kamertemperatuur. Voeg na het blokkeren primaire antilichamen (één antilichaam per put) verdund 1:100 in blokkerende buffer en incuberen bij 4 °C 's nachts. Primaire antilichamen zijn: anti-NG2, anti-CD140b, anti-CD31, anti-vimentine, anti-desmin, en anti-alpha glad spier actin.
- Volgende dag, wassen cellen 3x met Wash buffer (tabel van de materialen). Voeg secundair antilichaam verdund 1:1000 toe in blokkerende buffer en inincuberen gedurende 2 uur bij kamertemperatuur in het donker. Secundair antilichaam is een anti-konijn geconjugeerd aan FITC.
- Was cellen 3x met Wash buffer. Voeg 300 μM kern vlek verdund bij 1:1000 gedurende 5 min bij kamertemperatuur.
- Spoel de cellen 3x met 1x DPBS en bevestig met de montage media.
- Beeld cellen met een confocale Microscoop.
Resultaten
Na enzymatische vertering en dissociatie van het hele hart en voordat FACS zuivering van de cellen, cellen zijn een ruw mengsel dat veel verschillende celtypen uit het hart bevat (Figuur 1a). Na FACS zuivering en culturing, cellen zijn homogeen. Ze zijn enkelvoudig nucleated, vrij vlak, en hebben de typische pericyte rhomboïde morfologie (Figuur 1b).
Met behulp van FACS worden cellen gezuiverd tot homogenie. Het onbevlekte controle celmonster wordt gebruikt om de gating-strategie te tonen (Figuur 2). Eerst werden puin en dubbeltjes op basis van voorwaartse en zijspreidings verdelingen afgesloten. Vervolgens werden dode cellen afgesloten vanwege hun amine reactie met de kleurstof die een signaal groter en intenser dan levende cellen produceert. Van de levende cellen, hematopoietische cellen werden afgesloten door CD45+. Voor het verder verwijderen van hematopoietische en endotheel cellen, CD34+ en CD31+ cellen werden afgesloten. Ten slotte werden NG2+ en CD140b+/cd146+ cellen geselecteerd om perivasculaire cellen te zijn met expressie van typische pericyte markers (Figuur 3). Het paneel van de marker werd ook getest op muis coronaire endotheliale cellen als een controle (aanvullend figuur 1). Slechts ongeveer 1% van het ruwe celmengsel bestond uit pericytes na sortering.
Om te valideren dat de cellen inderdaad pericytes waren, hebben we de cellen door gevoerd voor verdere karakterisering. Cellen groeide snel zodra ze P3 bereikten in de T-75 kolven zonder veranderingen in de levensvatbaarheid naarmate ze ouder werden (aanvullend figuur 2). In vergelijking met menselijk brein pericytes hadden de cellen een vergelijkbare morfologie (figuur 4a). In vergelijking met muizen en menselijke gladde spiercellen hadden de cellen een andere morfologie (figuur 4a). Er waren ook geen waargenomen veranderingen in de morfologie of marker expressie bij P7 bij immuunbevlekte of doorstroming cytometrie analyse na het doorgangen (figuur 4b,C).
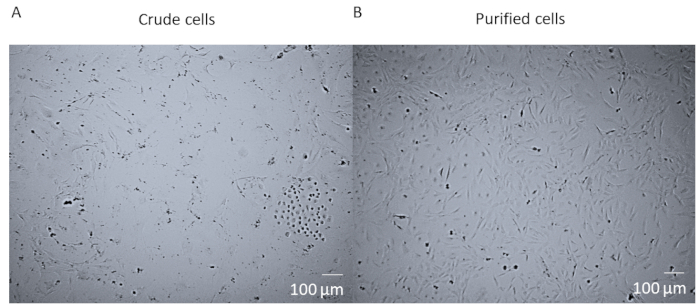
Figuur 1 : Ruwe cellen versus gezuiverde cellen. A) het brightfield-beeld van een ruw celmengsel post hele hart enzymatische vertering en dissociatie die gedurende 14 dagen is gekweekt in een T25 kolf. B) het brightfield-beeld van een homogene populatie van cardiale pericytes na sortering en kweek na 14 dagen. Schaalbalk = 100 μm. Klik hier om een grotere versie van dit cijfer te bekijken.

Figuur 2 : Representatieve afbeeldingen van FACS analyse van Onbevlekte cellen. Schematische weergave van de gating-strategie die wordt gebruikt om ruw celmengsel te zuiveren. Poort voor cellen die single, Live, CD45-, CD31-, CD34-, ng2+, CD146+en CD140b+zijn. Klik hier om een grotere versie van dit cijfer te bekijken.

Figuur 3 : Representatieve afbeeldingen van FACS analyse van ruwe cellen. Schematische weergave van de sortering die wordt gebruikt om een homogene populatie van cardiale pericytes te verkrijgen. Ruwweg 1% van de ruwe cellen zijn CD31-CD34-CD45-CD140b+ng2+CD146+. Klik hier om een grotere versie van dit cijfer te bekijken.

Figuur 4 : Karakterisering van primaire geïsoleerde cardiale pericytes A) brightfield-beelden van gekweekte cellen van menselijke hersenen (hPC) en muis harten (mPC) vertonen soortgelijke pericyte celmorfologie, maar verschillende morfologie van menselijke gladde spiercellen hsmc) en muis gladde spiercellen (MSMC). Schaalbalk = 100 μm.B) fenotypische karakterisering van cellen bij P7 door immunocytochemie voor pericyt markers. Schaalbalk = 100 μm. (C) analyse doorstroming cytometrie van de pericytes in P7 waar ze werden afgesloten voor negatieve markeringen CD31, CD34, CD45 en positieve markeringen ng2, CD140B en CD146. Populatie blijft homogeen. Klik hier om een grotere versie van dit cijfer te bekijken.
Aanvullend figuur 1: representatieve beelden van Flowcytometrie analyse van endotheel cellen met markerings paneel. Een muis coronaire endotheliale cellijn werd gebruikt als controle voor de bindende specificiteit voor de markers. Met behulp van dezelfde gating strategie die werd gebruikt in de sorteervolgorde, behalve een positieve poort voor CD31 in plaats van een negatieve poort, de endotheliale cellen waren negatief voor CD45, CD34, NG2, CD140b, en CD146 maar positief voor CD31 zoals verwacht. Klik hier om dit cijfer te downloaden.
Aanvullend figuur 2: representatieve beelden van Flowcytometrie analyse van verschillende passages van mPC. Primaire geïsoleerde cardiale pericytes werden gekweekt en doorgangen tot passage 12. Cellen werden bevlekt met propidium jodide en geanalyseerd op een flow cytometer. Controlepopulatie is een mengsel van dode cellen en levende cellen. Er waren geen significante verschillen in aantal levensvatbare cellen tussen passages. Klik hier om dit cijfer te downloaden.
Discussie
Aangezien studies over cardiale pericytes relatief nieuw zijn, moet de rol van pericytes in cardiovasculaire fysiologie en pathofysiologie nog worden gedefinieerd. In andere organen, ze hebben aangetoond dat het spelen van belangrijke rollen in het schip homeostase en perfusie1,2. In vergelijking met de literatuur van pericytes van andere organen zoals de hersenen, zijn er aanzienlijk minder publicaties op cardiale pericytes. De isolatie van cardiale pericytes is essentieel voor het begrijpen van hun functionele kenmerken en signalerings mechanismen. Daarom zal dit protocol onderzoekers een gemakkelijkere manier bieden om cardiale pericytes te benaderen vanuit een meer gemakkelijk beschikbare weefsel bron en studies over hun biologie te bevorderen. Het zal helpen bij het beantwoorden van vragen over hoe cardiale pericytes bijdragen aan cardiale homeostase en pathofysiologie, evenals het onderzoek van hun therapeutische potentieel.
De pericyte populatie geïsoleerd uit muriene hart en gekenmerkt door CD31-CD34-CD45-CD140b+ng2+CD146+ is meerdere malen gepasteerd (tot P12 en was nog steeds sterk), die niet Verminderde levensvatbaarheid en vermeerdert snel (aanvullend figuur 2). De cellen zijn ook cryobevroren en teruggewonnen met ten minste 95% levensvatbaarheid. We gebruiken echter liever de cellen P7 of jongere voor onze experimenten. Het vergelijken van brightfield-beelden van onze pericytes met menselijk brein pericytes, de twee cellijnen hebben een vergelijkbare celmorfologie (figuur 4a) terwijl ze verschillen in morfologie van gladde spiercellen (figuur 4a). Onze P7-cellen werden gekenmerkt door immunocytochemie voor pericyte markers, sommige van ons FACS panel (NG2 en CD140b), en een paar niet in het paneel (vimentin, desmin, αSMA) en we ontdekten dat de cellen de pericyte markers homogeen hebben uitgedrukt (figuur 4b). Bovendien werden onze P7-cellen opnieuw geanalyseerd door Flowcytometrie met hetzelfde markerings paneel om te beoordelen op veranderingen in de marker expressie als gevolg van het doorgaan en we ontdekten dat er geen veranderingen waren (figuur 4c). Daarom zijn onze cellen, zowel fenotypisch als morfologisch, pericytes.
De studies van Nees et al.10, avolio et al.11, Chen et al.12en Baily et al.13 hebben succesvolle cardiale pericyte isolaties aangetoond. Het gebruik van een in-House op maat gebouwde apparatuur om de pericytes van de micro vaten los te maken door Nees et al.10 betrof twee kamers met pompen die de protease oplossing heen en weer hebben geperfectioneert door middel van een mesh net-stack, die moeilijk te repliceren was omdat ze geen schematische en/of beeld van het apparaat en hoe het werd gebouwd. Hoewel Nees et al.10 cardiale pericytes van vele soorten met succes hebben geïsoleerd, waren we nooit in staat om hun methode te reproduceren. Onze pericyte loslating stap in ons protocol gebruikt eenvoudigweg een rondschudder (om alle cellen te ontkoppelen) die beschikbaar is in de meeste, zo niet alle laboratoria, met de weefsel-en enzym oplossing in een conische buis gevolgd door een mechanische dissociatie stap. Er is geen aangepast apparaat nodig. Ten tweede hebben de overgebleven protocollen betrekking op het gebruik van menselijke weefsels en dus is de aanschaf van menselijk weefsel beperkt tot onderzoekers. Ons protocol is een aanpassing en optimalisatie van de huidige protocollen9,12 met behulp van Muismodellen (wild type, genetisch gemodificeerde, zieke) en materialen die gemakkelijk beschikbaar zijn voor alle onderzoekers.
Omdat perivasculaire cellen in het algemeen gevoelig zijn, is de levensvatbaarheid van de cellen essentieel om een goede opbrengst te verkrijgen. Tijdens de aanschaf van hartweefsel en kleuring van cellen moeten de weefsels/cellen ijskoud worden gehouden. Ten tweede kan de enzymatische vertering van het weefsel optimalisatie op individuele basis vereisen. Afhankelijk van de eenheden van activiteit op iemands flacons van enzymen, concentratie en spijsvertering tijd mogelijk moet worden geoptimaliseerd. Zorg ervoor dat de enzymatische oplossing elke keer vers wordt bereid, anders zal de opbrengst afnemen. Ten derde bevat het ruwe mengsel veel cellen, sommige dood en/of sterven, het is het beste om de concentratie van FBS in de kleurings buffer te verlagen van 5% naar 2%. Als u problemen ondervindt met cellen die de nozzle tijdens het sorteren verstopt, verrijkt u de cellen eerst met behulp van een dode cel verwijderings pakket. U ook EDTA/HEPES-buffer of DNase-behandeling toevoegen aan de cel vooraf sorteren om celklontering te voorkomen. Ten slotte, omdat ons panel van antilichamen vrij groot is en veel fluor Foren gebruikt, moet u ervoor zorgen dat uw FMO-besturingselementen en compensatie controles correct worden uitgevoerd.
Een beperking van deze methode is de hoeveelheid cardiale pericytes die per hart kan worden verkregen. In ons geval, slechts 1,1% van onze ruwe mengsel van één muis hart waren pericytes die vergelijkbaar is met het percentage in de menselijke hart isolaties, maar het aantal cellen is aanzienlijk minder als gevolg van de hoeveelheid hartweefsel een muis biedt. Omdat het beginaantal cellen zo laag is na FACS, zou het beter zijn om van meerdere harten tegelijk te isoleren. Het probleem met dat is echter het enorme aantal cellen dat u in één dag moet sorteren. Als u meer dan 30.000.000 cellen heeft, zal het moeilijk zijn om door het soort te komen zonder de levensvatbaarheid van de cellen te beïnvloeden. Als de onderzoeker meerdere celsorteerders had, zou het isoleren van meerdere harten op een dag uitvoerbaar zijn. Een andere beperking is dat omdat we niet weten of er subpopulaties van pericytes in het hart zoals er skeletspieren15,16, we weten niet of we het elimineren van een subtype in onze gating strategie. We zijn in het proces van het karakteriseren van onze cardiale pericytes en tot nu toe in onze ongepubliceerde gegevens, ze zijn functioneel zoals andere pericytes in de literatuur.
Ons protocol zal onderzoekers in staat stellen om vragen te beantwoorden over cardiale pericyte eigenschappen, kenmerken, functionaliteit en andere aspecten die zullen helpen bij het definiëren van hun bijdrage aan cardiale homeostase en hemodynamiek. Deze cellen kunnen therapeutisch potentieel hebben voor hart-en vaatziekten zodra hun biologie beter wordt begrepen.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
De auteurs willen de AMGEN flow Cytometry core bedanken voor hun hulp bij het ontwerpen, oplossen van problemen en het sorteren van cellen in de.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0.25% Trypsin-EDTA | Corning | 25-053-Cl | verdunnen met 1x DPBS om 0,1% te krijgen |
| 100 μM Celstrainer | FisherSci | 22363549 | |
| 15 mL Falcon kegelbuisjes | BD | 352096 | |
| 24-well plate | Corning | CLS3527 | |
| 25 G vlindernaald | FisherSci | 22-253-146 | |
| 31 G naald spuit | FisherSci | B328446 | |
| 50 mL Falcon kegelbuisjes | BD | 352098 | |
| 6-well plate | Corning | CLS3516 | |
| anti-alpha gladde spieractine konijn mAb | abcam | ab32575 | Antilichaam gebruikt in ICC 1:100 verdunning |
| anti-CD140b konijn mAb | Cell Signaling | 28E1 | Antilichaam gebruikt in ICC 1:100 verdunning |
| anti-CD31 konijn pAb | abcam | ab28364 | Antilichaam gebruikt in ICC 1:100 verdunning |
| anti-desmin konijn pAb | abcam | ab8592 | Antilichaam gebruikt in ICC 1:100 verdunning |
| anti-NG2 geconjugeerd aan AF488 | Millipore | MAB5384A4 | Antilichaam gebruikt in ICC 1:100 verdunning |
| anti-vimentin konijn mAb | abcam | ab92547 | Antilichaam gebruikt in ICC 1:100 verdunning |
| ArC Amine Reactieve Compensatiekralenkit | Invitrogen | A10346 | compensatiekralen voor Live/Dead Near IR kleurstof |
| Brightfield Microscoop | camera aangesloten | ||
| CD140b-PE (clone APB5) | eBioscience | 12-1402-81 | Antilichaam gebruikt in FACS 1:100 verdunning |
| CD146-BV605 (clone ME-9F1) | BD | 740434 | Antilichaam gebruikt in FACS 1:100 verdunning |
| CD31-APC (clone MEC 13.3) | BD | 551262 | Antilichaam gebruikt in FACS 1:100 verdunning |
| CD34-BV421 (clone RAM 34) | BD | 56268 | Antilichaam gebruikt in FACS 1:100 verdunning |
| CD45-PE-Cy7 (clone 30-F11) | BD | 552848 | Antilichaam gebruikt in FACS 1:100 verdunning |
| Centrifuge | eppendorf | ||
| Collageenase B | Roche | 11088815001 | 0,226 U/mg lyo. |
| Confocal Microscoop | |||
| DAPI | ThermoFisher | D1306 | nucleaire kleurstof |
| DMEM met 4,5 g/L glucose, L-glutamine & sodiumpyruvate | Corning | 10-013-CV | 500 mL |
| Dowell schaar | FST | 15040-11 | |
| Dulbecco's Phosphate-Buffered Saline (DPBS) | Corning | 21-030-CV | 500 mL |
| Dulbecco's Phosphate-Buffered Saline zonder Ca en Mg (CMF-DPBS) | Corning | 21-031-CV | 500 mL |
| Dumont #5 Fijne Pincet | FST | 11254-20 | |
| FACSAria celsorteerder | BD | Lasers: 405 nm 50 mW, 488 nm 100 mW, 561 nm 50mW, 633 nm 11 mW | |
| FACSAria software | BD | ||
| Falcon buisje rondbodem polypropyleen, 5 mL | BD | 38057 | |
| Falcon buisje met celstrainer dop, 5 mL | BD | 08-771-23 | |
| Foetaal Rund Serum | Corning | 35-015-CV | 500 mL |
| Fijne schaar | FST | 14060-09 | |
| FlowJo software | FlowJo LLC | ||
| Fortessa LSR flowcytometer | BD | Lasers: 405 nm 50 mW, 488 nm 100 mW, 561 nm 50mW, 633 nm 11 mW | |
| Gelatine-gebaseerde coating | Cell Biologics | 6950 | |
| Geit anti-konijn IgG (H+L) Geadsorbeerd secundair antilichaam, Alexa Fluor 488 | Invitrogen | A-11008 | Antilichaam gebruikt in ICC 1:1000 verdunning |
| Graefe Pincet | FST | 11049-10 | |
| Heparine natriumoplossing | Hospira | NDC 0409-2720-02 | 10.000 USP eenheden/10 mL; van varkensdarmen |
| Incubator | gesteld op 37 °C, 5% CO2, 95% O2 | ||
| Live/Dead-Near IR | Life Technologies | L10119 | |
| Microscoopglazen | FisherSci | 12-550-343 | |
| NG2-FITC | Millipore | AB5320A4 | Antilichaam gebruikt in FACS 1:100 verdunning |
| Orbitale shaker | VWR | Binnenin 37 °C incubator of ruimte | |
| Paraformaldehyde | FisherSci | 50-980-487 | verdunnen met 1x DPBS om 4% te krijgen |
| Penicilline-Streptomycine | Corning | 30-002-CI | |
| Petrischaal | FisherSci | FB0875714 | |
| Pipet en tips | |||
| ProLong Diamond | ThermoFisher | P36965 | montagemedia |
| Propidium Jodide | ThermoFisher | celviabiliteitskleurstof voor aanvullende figuur 2 | |
| Konijn IgG FITC | eBiosciences | 11-4614-80 | Isotype controle-antilichaam - FITC |
| Rat IgG2a APC | Biolegend | 400512 | Isotype controle-antilichaam - APC |
| Rat IgG2a BV421 | Biolegend | 400536 | Isotype controle-antilichaam - BV4 |
Referenties
- Armulik, A., Abramsson, A., Betsholtz, C. Endothelial/pericyte interactions. Circulation Research. 97 (6), 512-523 (2005).
- Armulik, A., Genove, G., Betsholtz, C. Pericytes: developmental, physiological, and pathological perspectives, problems, and promises. Developmental Cell. 21 (2), 193-215 (2011).
- Sengillo, J. D., et al. Deficiency in mural vascular cells coincides with blood-brain barrier disruption in Alzheimer's disease. Brain Pathology. 23 (3), 303-310 (2013).
- Avolio, E., Madeddu, P. Discovering cardiac pericyte biology: From physiopathological mechanisms to potential therapeutic applications in ischemic heart disease. Vascular Pharmacology. 86, 53-63 (2016).
- Dore-Duffy, P. Isolation and characterization of cerebral microvascular pericytes. Methods in Molecular Medicine. 89, 375-382 (2003).
- Bryan, B. A., D'Amore, P. A. Pericyte isolation and use in endothelial/pericyte coculture models. Methods in Enzymology. 443, 315-331 (2008).
- Maier, C. L., Shepherd, B. R., Yi, T., Pober, J. S. Explant outgrowth, propagation and characterization of human pericytes. Microcirculation. 17 (5), 367-380 (2010).
- Crisan, M., Corselli, M., Chen, W. C., Peault, B. Perivascular cells for regenerative medicine. Journal of Cellular Molecular Medicine. 16 (12), 2851-2860 (2012).
- Crisan, M., et al. Purification and long-term culture of multipotent progenitor cells affiliated with the walls of human blood vessels: myoendothelial cells and pericytes. Methods in Cellular Biology. 86, 295-309 (2008).
- Nees, S., et al. Isolation, bulk cultivation, and characterization of coronary microvascular pericytes: the second most frequent myocardial cell type in vitro. American Journal of Physiology Heart Circulatory Physiology. 302 (1), H69-H84 (2012).
- Avolio, E., et al. Expansion and characterization of neonatal cardiac pericytes provides a novel cellular option for tissue engineering in congenital heart disease. Journal of the American Heart Association. 4 (6), e002043(2015).
- Chen, W. C., et al. Human myocardial pericytes: multipotent mesodermal precursors exhibiting cardiac specificity. Stem Cells. 33 (2), 557-573 (2015).
- Baily, J. E., et al. Isolation of Perivascular Multipotent Precursor Cell Populations from Human Cardiac Tissue. Journal of Visualized Experiments. (116), e54252(2016).
- Murray, I. R., et al. Skeletal and cardiac muscle pericytes: Functions and therapeutic potential. Pharmacology & Therapeutics. 171, 65-74 (2017).
- Birbrair, A., et al. Role of pericytes in skeletal muscle regeneration and fat accumulation. Stem Cells Development. 22 (16), 2298-2314 (2013).
- Birbrair, A., et al. Skeletal muscle pericyte subtypes differ in their differentiation potential. Stem Cell Research. 10 (1), 67-84 (2013).
Herprints en machtigingen
