Hier gepresenteerd is een protocol om de remming werkzaamheid van chemische verbindingen te evalueren tegen in vitro intracellulaire groei van Toxoplasma gondii met behulp van een luciferase-gebaseerde groei test. De techniek wordt gebruikt om remmingsspecificiteit te bevestigen door genetische verwijdering van het overeenkomstige doelgen. De remming van LHVS tegen TgCPL protease wordt als voorbeeld geëvalueerd.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Bepaling van de chemische remmer efficiëntie tegen intracellulaire Toxoplasma Gondii Groei met behulp van een Luciferase-Based Growth Assay
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Toxoplasma gondii is een protozoan ziekteverwekker die op grote schaal de menselijke bevolking beïnvloedt. De huidige antibiotica die worden gebruikt voor de behandeling van klinische toxoplasmose zijn beperkt. Bovendien vertonen ze nadelige bijwerkingen in bepaalde groepen mensen. Daarom is de ontdekking van nieuwe therapieën voor klinische toxoplasmose noodzakelijk. De eerste stap van nieuwe antibioticaontwikkeling is het identificeren van chemische verbindingen die een hoge werkzaamheid vertonen bij remming van de groei van parasieten met behulp van een hoge doorvoerscreeningstrategie. Als obligate intracellulaire ziekteverwekker kan Toxoplasma alleen repliceren in gastheercellen, wat het gebruik van optische absorptiemetingen als snelle indicator van groei verbiedt. Hier gepresenteerd is een gedetailleerd protocol voor een luciferase-gebaseerde groei test. Als voorbeeld wordt deze methode gebruikt om de verdubbelingstijd van wilde Toxoplasma-parasieten te berekenen en de werkzaamheid van morfolinurea-leucyl-homofenyl-vinylsulfonefenyl (LHVS, een cysteine protease-targeting verbinding) met betrekking tot remming van parasiet intracellulaire groei te meten. Ook beschreven, is een CRISPR-Cas9-gebaseerde gendeletieprotocol in Toxoplasma met behulp van 50 bp homologe regio's voor homologie-afhankelijke recombinatie (HDR). Door het kwantificeren van de remmingswerkzaamheid van LHVS in wild-type en TgCPL (Toxoplasma cathepsin L-achtige protease)-deficiënte parasieten, wordt aangetoond dat LHVS de groei van wilde parasieten efficiënter remt dan δcpl-groei, wat suggereert dat TgCPL een doelwit is waaraan LHVS zich bindt in Toxoplasma. De hoge gevoeligheid en eenvoudige werking van deze op luciferase gebaseerde groeitest maken het geschikt voor het monitoren van Toxoplasma-proliferatie en het evalueren van de werkzaamheid van geneesmiddelen op een hoge doorvoermanier.
Inleiding
Toxoplasma gondii is een zeer succesvolle obligate intracellulaire parasiet die ongeveer een derde van de menselijke bevolking infecteert. De hoge transmissiesnelheid is voornamelijk te wijten aan de diverse transmissieroutes, waaronder de consumptie van niet gaar vlees, blootstelling aan reservoirs van zoogdieren en aangeboren overdracht tijdens de geboorte. T. gondii veroorzaakt vooral opportunistische infecties die kunnen leiden tot ernstige morbiditeit en mortaliteit bij immuungecompromitteerde personen1,2,3,4,5,6. De antibiotica die momenteel worden gebruikt voor de behandeling van acute toxoplasmose zijn bijzonder inefficiënt bij de behandeling van aangeboren en latente infecties en veroorzaken ernstige reacties bij sommige personen3,7,8. Er bestaat dus een dringende behoefte om nieuwe therapieën te identificeren. Inzicht in de verschillen in subcellulaire processen binnen Toxoplasma en de gastheer ervan zal helpen om potentiële medicijndoelen te identificeren. Daarom zijn efficiënte en handige genoommanipulatietechnieken nodig om de rol van individuele genen binnen Toxoplasmate bestuderen. Bovendien behoort Toxoplasma tot de phylum Apicomplexa, die verschillende andere belangrijke menselijke ziekteverwekkers omvat, zoals Plasmodium spp. en Cryptosporidium spp. Vandaar dat Toxoplasma kan worden gebruikt als een modelorganisme om de basisbiologie in andere apicomplexe parasieten te bestuderen.
Om nieuwe antibiotica tegen microbiële pathogenen te identificeren, wordt een hoge doorvoerscreening van een bibliotheek van chemische verbindingen in eerste instantie uitgevoerd om hun werkzaamheid bij de onderdrukking van microbiële groei te bepalen. Tot nu toe zijn er verschillende op microplaat gebaseerde groeitesten ontwikkeld voor het meten van de intracellulaire groei van T. gondii (d.w.z., radioactief 3H-uracil-incificering-gebaseerde kwantificering9, kwantitatieve ELISA-gebaseerde parasietdetectie met behulp van T. gondii-specifiekeantilichamen10,11, reporter protein-based measurement β-galactosidase of YFP-expressing Toxoplasma stammen12,13, en een recent ontwikkelde high-content imaging assay14).
Deze individuele strategieën hebben allemaal unieke voordelen; bepaalde beperkingen beperken echter ook hun toepassingen. Bijvoorbeeld, omdat Toxoplasma alleen kan repliceren in nucleated dierlijke cellen, autofluorescentie en niet-specifieke binding vananti-T. gondii antilichamen aan gastheercellen veroorzaken interferentie in fluorescentie-gebaseerde metingen. Bovendien vereist het gebruik van radioactieve isotopen speciale veiligheidsvoorschriften en mogelijke veiligheidsproblemen. Sommige van deze tests zijn meer geschikt voor het beoordelen van de groei op een enkel tijdstip in plaats van continue monitoring van de groei.
Hier gepresenteerd is een luciferase-gebaseerd protocol voor de kwantificering van intracellulaire Toxoplasma groei. In een eerdere studie werd het NanoLuc luciferase-gen gekloond onder de Toxoplasma-tobulinpromotor, en deze luciferaseexpressieconstructie werd getransfecteerd tot wild-type (RHΔku80Δ Toxoplasma hxg-stam) parasieten om een RHΔku80Δhxgte creëren::NLuc-stam (aangeduid als RHΔku80::NLuc hiernamaals)15. Deze stam diende als de ouderlijke stam voor intracellulaire groeibepaling en gendeletie in deze studie. Met behulp van de RHΔku80::NLuc stam, parasiet groei in menselijke voorhuid fibroblasten (HFFs) werd gecontroleerd over een periode van 96 uur na de infectie om parasiet verdubbeling seinstijd te berekenen.
Bovendien kan de remmingswerkzaamheid van LHVS tegen de groei van parasieten worden bepaald door toxoplasma-groeicijfers te plotten tegen seriële LHVS-concentraties om de IC50-waarde te identificeren. Eerdere literatuur heeft gemeld dat TgCPL een belangrijk doelwit is van LHVS bij parasieten en dat behandeling met LHVS de ontwikkeling van acute en chronische Toxoplasma-infecties vermindert 16,17,18,19. Daarnaast werd RHΔku80::NLuc gebruikt als de ouderlijke stam voor genoommodificatie om een TgCPL-gebrekkigestam te genereren (RHΔku80Δcpl::NLuc),en de remming van LHVS werd gemeten tegen deze mutant. Door het observeren van een upshift van IC50-waarden voor LHVS in de TgCPL-gebrekkigeparasieten in vergelijking met de WT-stam, werd gevalideerd dat TgCPL het doelwit is van LHVS in vivo.
In dit protocol, RHΔku80::NLuc wordt gebruikt als de ouderlijke stam, die een efficiënte niet-homologe end-joining traject (NHEJ) ontbreekt, waardoor dubbele crossover homologie-afhankelijke recombinatie (HDR)20,21. Bovendien worden 50 bp homologe regio's geflankeerd aan beide uiteinden van een medicijnresistentiecassette door PCR. Het PCR-product dient als een reparatiesjabloon om de gehele genlocus via HDR te verwijderen met behulp van crispr-Cas9-gebaseerde genoombewerkingstools. Dergelijke korte homologe regio's kunnen gemakkelijk worden opgenomen in primers, het verstrekken van een handige strategie voor de productie van de reparatie sjabloon. Dit protocol kan worden aangepast om universele gendeletie en enogene gentagging uit te voeren.
Bijvoorbeeld, in onze meest recente publicatie, drie protease genen, TgCPL, TgCPB (Toxoplasma cathepsin B-achtige protease), en TgSUB1 (Toxoplasma subtilisine-achtige protease 1), werden genetisch ablated in TgCRT (Toxoplasma chloroquine-resistentie transporter) -ficiënte parasieten met behulp van deze methode15. Bovendien werd TgAMN (een putatief aminopeptidase N [TgAMN, TGGT1_221310]) endogeen gelabeld15. Het Lourido-lab rapporteerde ook met behulp van korte homologe regio's in het bereik van 40-43 bp voor de introductie van site-gerichte genmutatie en endogene gentagging in het Toxoplasma genoom met behulp van een soortgelijke methode22. Deze succesvolle genoommodificaties suggereren dat een homologe regio van 40-50 bp voldoende is voor een efficiënte DNA-recombinatie in de TgKU80-gebrekkigestam, wat genoommanipulatie in Toxoplasma gondiiaanzienlijk vereenvoudigt.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Toxoplasma gondii is ingedeeld in Risk Group 2 en moet worden behandeld op een Biosafety Level 2 (BSL-2). Het protocol is herzien en goedgekeurd door het Institutioneel Comité voor bioveiligheid van de Clemson University.
1. Luciferase-gebaseerde Toxoplasma groeitest
- Zaad menselijke voorhuid fibroblasten (HFFs) 1 week voor parasiet inenting om ervoor te zorgen dat gastheercellen volledig confluent zijn. Voer een mock test uit in een transparante plaat om ervoor te zorgen dat parasieten gedurende de evaluatieperiode intracellulair blijven.
LET OP: Hier wordt de test uitgevoerd in 96 goed microplates. Volgens experimentele behoeften, kan het worden opgeschaald tot 384 of 1536 goed microplates. - Geef Toxoplasma-parasieten 2 dagen voor gebruik in confluente HFFs door ~0,3-0,4 mL van volledig lysed parasieten in een T25-kolf over te brengen. Besmette gastheercellen 2 dagen lang incuberen bij 37 °C met 5% CO2.
- Spuit 5 mL van vers lysed parasieten door middel van een 21 G veiligheidsnaald 5x om intracellulaire parasieten te bevrijden, ga dan door een 3 μm filter om gastheercelpuin te verwijderen. Spoel restparasieten uit de kolf met behulp van 7 mL fenol roodvrij D10-medium en ga vervolgens weer door het filter.
- Centrifugeer parasieten op 1000 x g gedurende 10 min bij kamertemperatuur (RT). Giet de supernatant en resuspend de pellet in 10 mL van fenol rood-vrije D10 media.
- Tel parasieten met behulp van een hemocytometer om de concentratie te bepalen.
- Verdun parasieten tot 1 x 10⁴ parasieten/mL voor de wild-type (WT) stam. Voor groei-tekort parasiet stammen, verhoging van de concentratie dienovereenkomstig om een aanzienlijke toename van luciferase signalen waar te nemen.
- Spoel media zorgvuldig van 96 goed microplates voorgezaaid met HFFs en inenting 150 μL van parasiet resuspensie in putten in een formaat van drie kolommen en vijf rijen, die drie technische replica's en vijf tijdpunten vertegenwoordigt.
- Incubeer de microplaat bij 37 °C en 5% CO2 gedurende 4 uur.
- Zuig media zorgvuldig uit de putten om niet-binnengevallen parasieten te verwijderen, vul vervolgens de putten met RT fenol rood-vrije media in elke rij (behalve de eerste rij).
- Meng gelijke volumes PBS en 2x luciferase testbuffer en verdun het luciferasesubstraat tot 12,5 μM.
- Voeg 100 μL verdund luciferasesubstraat toe aan elke put van de bovenste rij. Incubeer de microplates op RT gedurende 10 min zodat de cellen volledig lyse.
- Meet de luciferase activiteit met behulp van een microplaatlezer. De instellingen voor de plaatlezer staan vermeld in tabel 1. Elke lezing vertegenwoordigt het eerste aantal binnengevallen parasieten op 4 uur na de infectie.
- Herhaal stap 1.9-1.12 voor elke rij elke 24 uur gedurende 4 dagen zonder het medium te wijzigen. Deze metingen weerspiegelen het totale aantal gerepliceerde parasieten bij 24 uur, 48 uur, 72 uur en 96 uur na de infectie.
- Bereken de gemiddelde waarden op elk tijdstip en deel ze door de gemiddelde waarden op 4 uur om de vouwveranderingen in de groei van parasieten in de tijd te bepalen.
- Plot de gegevens met behulp van grafische software. Een representatieve groeileestabel en percelen van RHΔku80::NLuc-parasieten worden weergegeven in figuur 1A,B.
- Als u de verdubbelingstijd wilt berekenen, stelt u de log2-waarden van vouwwijzigingen op de afzonderlijke tijdpunten in de incubatietijd. Gebruik een lineaire regressiefunctie om de helling te berekenen, wat de verdubbelingstijd van elke stam vertegenwoordigt(figuur 1A,C).
2. Evaluatie van de werkzaamheid van chemische samengestelde remming tegen de groei van Toxoplasma
OPMERKING: Hier wordt de evaluatie van de remming van LHVS in toxoplasma-groei als voorbeeld gepresenteerd. Acht verschillende concentraties LHVS worden getest en voor elk van de drie biologische replicaties worden drie technische replicaties uitgevoerd voor zowel RHΔku80::NLuc en RHΔku80Δcpl::NLuc-stammen.
- Voorafgaand aan de parasiet infectie, zaad HFFs tot 96 goed microplates in het formaat van drie rijen en negen kolommen voor een biologische repliceren per verbinding per stam. Hostcellen mogen ten minste 7 dagen voor gebruik groeien.
- Pass RHΔku80::NLuc en RHΔku80Δcpl::NLuc parasieten gedurende 2 dagen voorafgaand aan gebruik. Volg stappen 1.2-1.6 voor parasietzuivering en kwantificering. Parasieten in fenolroodvrije media opnieuw opschorten bij 1 x 10⁴ parasieten/mL.
- Aanzuigen media van een plaat met confluentHfFs en inenten elk goed met 150 μL parasiet resuspensie. Incubeer de microplaat bij 37 °C en 5% CO2 gedurende 4 uur.
- Bereid LHVS op acht verschillende concentraties in een 12 goed reservoir door seriële verdunning. Over het algemeen worden de concentraties op een seriële verdunningsmanier verdrievoudigd.
OPMERKING: De laagste concentratie wordt verminderd met 6.561 keer ten opzichte van de hoogste concentratie. De plooiverandering van de verdunning kan dienovereenkomstig worden aangepast op basis van verschillende eigenschappen van individuele verbindingen. - Bij 4 uur na de infectie, aanzuigen media om niet-binnengevallen parasieten te verwijderen en vul elk goed van kolommen 2-9 met 150 μL van de media aangevuld met LHVS in verschillende concentraties. Laat de eerste kolom gevuld met gewone medium om te dienen als een niet-behandelde controle.
- Incubeer de microplaat bij 37 °C en 5% CO2 voor nog eens 96 uur.
- Voer stappen 1.9-1.11 uit en meet luciferase activiteit van individuele putten.
- Gemiddelde van de luciferase activiteiten van drie technische repliceert uit putten van elke individuele LHVS concentratie.
- Verdeel de gemiddelde luciferaseactiviteit voor elke LHVS-concentratie door de gemiddelde luciferaseactiviteit afgeleid van niet-behandelde parasieten om de genormaliseerde luciferaseactiviteit als percentage te berekenen.
- Plot de genormaliseerde luciferase activiteiten tegen de individuele LHVS concentraties met behulp van grafische software (Figuur 2). Remming van pyrimethamine tegen parasietgroei wordt ook gemeten als een controle. Pyrimethamine is een klinisch antibioticum dat wordt gebruikt voor de behandeling van acute toxoplasmose door het remmen van het foliumzuurmetabolisme in Toxoplasma.
- Bereken de IC50-waarden voor individuele verbindingen met behulp van de ingebedde methode in de grafische software, genormaliseerde respons vs. [remmer], onder het regressieprogramma "dosis-respons-remming". De IC50 wordt berekend volgens de volgende formule:
Y = 100/(1 + X/IC50)
Waar: Y vertegenwoordigt genormaliseerde luciferase activiteiten van geïnfecteerde cellen onder verschillende concentraties van remmer, en X vertegenwoordigt individuele concentraties van remmer.
3. CRISPR-Cas9-gebaseerde gendeletiename bij Toxoplasma-parasieten
- Generatie van een plasmidconstructie die gidsRNA (sgRNA) en Cas9 uitdrukt voor het verwijderen van een gen van belang
- Ga naar www.ToxoDB.org en haal de hele gencoderingssequentie op, inclusief introns en exonen, samen met 1,5 kb 5'-UTRs en 3'-UTRs (onvertaalde regio's).
OPMERKING: Hier is TgCPL (TGGT1_321530) als representatief voorbeeld. - Kopieer de opgehaalde TgCPL-sequentie naar de sequentieanalysesoftware (raadpleeg Materiaaltabel voor de naam en versie) en label de 5'- en 3'-UTR-regio's.
- Selecteer het pictogram Extra in de bovenste menubalk en selecteer vervolgens Klonen | Zoek CRISPR-sites.
- Kies 3'(Cas9)' voor de PAM-locatie en selecteer de map met de Toxoplasma genoomsequentie in de sectie specificiteitsscore. Laat de rest van de instellingen als standaardinstellingen.
- Kies een sgRNA met de volgende twee criteria: 1) met een hoge specificiteitsscore, in het algemeen >98%, en 2) zonder een G na de NGG, een protospacer aangrenzende motief (PAM) sequentie. De geselecteerde sgRNA is meestal gelegen op sites dicht bij het begin en stop codons van het gen van belang.
- Kopieer de volgorde van het geselecteerde sgRNA en plak deze in de volgende primersjabloon.

Het gedeelte in het rood vertegenwoordigt de geselecteerde TgCPL sgRNA-sequentie. Het kan worden vervangen door verschillende sgRNAs voor verschillende genen van belang.
OPMERKING: Als het geselecteerde sgRNA niet met G begint, voegt u G toe aan het begin van het sgRNA om de expressie ervan te verbeteren. - Voer een PCR-reactie uit om het reeds bestaande plasminetexpressnde sgRNA(figuur 3A)te wijzigen dat zich richt op Toxoplasma uracil-fosforibosyltransferase (TgUPRT) gen23 met behulp van een PCR-premix met de instellingen in tabel 2.
- Voer het PCR-product uit op een agarosegel om succesvolle versterking te bevestigen. Een 10 kb PCR product zal naar verwachting worden versterkt (Figuur 3B).
- Haal het PCR-product uit met behulp van een DNA-gelextractiekit en maak het circulair met behulp van een site-gerichte mutagenesekit. Raadpleeg tabel 3 voor het recept. Incubeer de reactie voor 10-20 min bij RT.
- Transformeer het gecirculariseerde PCR-product in E. coli en pluk 10 klonen voor verdere verificatie van de integratie van ontworpen sgRNA.
- Kweek twee klonen en extract plasmiden. Snijd de gezuiverde plasmiden met BamHI en EcoRV. De kandidaat plasmids zal opleveren twee bands op 2,4 kb en 7,2 kb (Figuur 3C).
- Stuur de plasmiden voor Sanger sequencing met behulp van M13 reverse primers om een succesvolle vervanging van TgUPRT sgRNA te bevestigen met de ontworpen sgRNA(figuur 3D).
- Ga naar www.ToxoDB.org en haal de hele gencoderingssequentie op, inclusief introns en exonen, samen met 1,5 kb 5'-UTRs en 3'-UTRs (onvertaalde regio's).
- Generatie van reparatiesjabloon voor gendeletie via HDR-mechanisme
- Volgens de targetingsites van de geselecteerde sgRNA, zoek 50 bp van 5'-UTRs of 3'-UTRs van het doelgen voor homologie-afhankelijke recombinatie (HDR, zie discussiesectie). De selectie van regio's volgt de onderstaande criteria, afhankelijk van de locatie van de sgRNA-doelen.
- Als de splitsingssite van Cas9 zich stroomopwaarts bevindt vanaf de begincodon, selecteert u het volgende: een DNA-sequentie van 50 bp stroomopwaarts van de splitsingssite als de linker HDR-regio en een DNA-sequentie van 50 bp stroomafwaarts van de stopcodon als de rechter HDR-regio.
- Als de decolletésite van Cas9 zich tussen de begin- en stopcodons bevindt, selecteert u het volgende: een DNA-sequentie van 50 bp stroomopwaarts vanaf het begin als de linker HDR-regio en een 50 bp DNA-sequentie stroomafwaarts van de stopcodon als de rechter HDR-regio.
- Als de splitsingsplaats door Cas9 zich stroomafwaarts van de stopcodon bevindt, selecteert u het volgende: een DNA-sequentie van 50 bp stroomopwaarts vanaf het begin als de linker HDR-regio en een DNA-sequentie van 50 bp stroomafwaarts van de splitsingssite als de rechter HDR-regio.
OPMERKING: Voor het TgCPL-gen bevindt de decolletélocatie zich tussen de begin- en stopcodons. Zo zijn de volgende primers ontworpen voor het versterken van de reparatiesjabloon met behulp van pMDC64 als sjabloon, die een pyrimethamine-weerstandscassette codeert. De sequenties in zwarte anneal naar de pMDC64 plasmivoor voor PCR versterking. De in het rood gelabelde regio's zijn TgCPL-specifiekesequenties voor homologe recombinatie.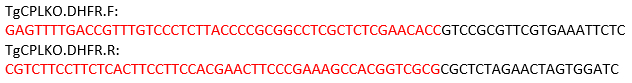
- Voer PCR uit met een PCR-premix onder de PCR-omstandigheden die in tabel 4 wordenbeschreven.
- Voer het PCR-product uit op een agarosegel (figuur 3E),gevolgd door gelextractie en standaard nucleïnezuurkwantificeringsprocedures.
OPMERKING: Als de verwachte band niet met succes kan worden versterkt, optimaliseert u pcr-omstandigheden en/of schakelt u primerparen.
- Volgens de targetingsites van de geselecteerde sgRNA, zoek 50 bp van 5'-UTRs of 3'-UTRs van het doelgen voor homologie-afhankelijke recombinatie (HDR, zie discussiesectie). De selectie van regio's volgt de onderstaande criteria, afhankelijk van de locatie van de sgRNA-doelen.
- Toxoplasma transfection
- Pass RHΔku80::NLuc parasieten gedurende 2 dagen in een T25 kolf met confluentHFFs. Een T25-kolf met volledig lysed parasieten is voldoende voor twee tot drie transfections.
- Spuit- en filterzuiverende parasieten zoals beschreven in stap 1.2. Resuspend parasieten in cytomix buffer en spin naar beneden op 1.000 x g voor 10 min bij RT.
- Was pelleted parasieten met 10 mL cytomixbuffer en draai de parasieten op 1.000 x g gedurende 10 min bij RT.
- Giet voorzichtig de supernatant af en stoook de parasieten opnieuw op in dezelfde buffer bij een concentratie van 1 x 10⁸ parasieten/mL.
- Meng 2 μg reparatiesjabloon DNA met 20 μg van de sgRNA/Cas9 expressieplasmiden (massaverhouding = 1:5, gelijk aan een 1:3 molaire verhouding). Als de versterkingsopbrengst van reparatiesjabloon laag is, vermindert u de invoer van beide DNA-stukken dienovereenkomstig. Er kan minimaal 0,5 μg reparatiesjabloon worden gebruikt.
- Meng 400 μL parasietresussing, DNA en 5 μL van 200 mM ATP/500 mM verminderde glutathion (GSH) in een centrifugebuis van 1,5 mL. Breng het totale volume zo nodig op 500 μL met cytomixbuffer.
- Breng het mengsel van parasieten en DNA over naar een elektroporatiecuvette (4 mm tussenbreedte) en voer elektroporatie uit (2 kV spanning, 50 Ω weerstand) met behulp van een elektroporatieapparaat.
- Breng geëlektrorated parasieten over naar een T25-kolf met confluente HFF's in vers D10-medium. Breng de juiste antibiotica voor de selectie van geneesmiddelen na 24 uur.
- Houd de selectieve druk van het medicijn totdat de groei van de transgene parasieten stabiel is.
- Zuiver genomisch DNA van de knock-outpopulatie en controleer op integratie van de pyrimethamineresistentiecassette in de TgCPL-locus door PCR. Ga na verificatie verder met punt 3.4. Zo niet, voer dan een nieuwe ronde van parasiet transfection en drugsselectie uit. Onvermogen om de juiste integratie van de resistentiecassette van geneesmiddelen te detecteren suggereert meestal dat het doelgen essentieel is of dat de genlocus niet toegankelijk is.
- Klonen van knock-out parasieten
- Zaad twee 96 goed microplates met HFF-cellen en incubeer bij 37 °C en 5% CO2 gedurende 1 week voorafgaand aan het klonen van parasieten.
- Pass ~ 0,3-0,4 mL van de populatie van transgene parasieten in een T25-kolf met confluente HFFs en kweek ze gedurende 2 dagen. Overweeg het passeren van meer parasieten als de mutant groeifouten vertoont.
OPMERKING: Om de beste opbrengst en levensvatbaarheid te bereiken, zijn de gastheercellen zwaar geïnfecteerd door de parasieten en worden de meeste parasieten in het intracellulaire stadium bewaard. - Spuit geïnfecteerde gastheercellen en filter-zuiveren vers lysed parasieten zoals vermeld in stap 1.3. De parasieten in Het medium van D10 opnieuw opschorten en draai ze naar beneden op 1.000 x g gedurende 10 min bij RT.
- Resuspend de pelleted parasieten in 10 mL van D10 medium.
- Tel parasieten met behulp van een hemocytometer om de parasietconcentratie te bepalen.
- Voer een verdunning in twee stappen uit om de concentratie op 10 parasieten/mL in D10-medium te brengen, aangevuld met het juiste antibioticum. Meestal wordt de initiële parasietresussussing verdund met 1.000 keer, gevolgd door een tweede verdunning tot 10 parasieten/mL.
- Aanzuigen media van 96 goed microplates met confluent HFFs en inenting 150 μL van verdunde parasieten in elke put.
- Incubeerplaten bij 37 °C met 5% CO2 gedurende 7 dagen zonder verstoring om plaquevorming mogelijk te maken. De incubatietijd kan langer zijn als transgene parasieten groeifouten vertonen.
- Scherm de platen met behulp van een fasecontrastmicroscoop en markeer alleen de putten met een enkele plaque.
- Voer kolonie PCR uit om de juiste klonen te identificeren.
- Gebruik pipet tips om de bodem van elke put schrapen om geïnfecteerde HFF monolayers lift.
- Pipet 75 μL van de celresussing van elk goed gemarkeerd in 1,5 mL microcentrifuge buizen.
- Centrifugebuizen gedurende 10 min bij maximale snelheid bij RT. Voorzichtig de supernatant aanzuigen en de pellet opnieuw opschorten in 10,25 μL lysisbuffer met verdunningsbuffer en DNA-afgifteadditief in de kit (Tabel van materialen).
- Incubeer de monsters gedurende 4 min bij RT, dan 2 min bij 98 °C. Daarna kunnen monsters worden gebruikt voor PCR of worden opgeslagen bij -20 °C tot gebruik. Drie sets PCR-reacties worden gebruikt om te testen op de integratie van de resistentiecassette en het verlies van het gen van belang (figuur 4A). Raadpleeg tabel 5 voor pcr-reactieopstelling en tabel 6 voor thermocyclerinstellingen.
- Identificeer de juiste klonen en breng vier klonen over in T25-kolven die confluente HFF's bevatten.
- Na individuele klonen lyse gastheercellen, zuiver genomic DNA voor verdere PCR-verificatie.
- Als een antilichaam dat het eiwit van belang herkent beschikbaar is, volgt u een standaard immunoblottingprocedure om het verlies van het doeleiwit in de juiste Toxoplasma-knock-outs te verifiëren. Representatieve afbeeldingen voor het screenen van een TgCPL-verwijderingmutantworden weergegeven in figuur 4B,C.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Figuur 1 is een voorbeeld van een groeicurve voor de RHΔku80::NLuc-stam en de afgeleide berekening voor de verdubbelingstijd. Over het algemeen wordt de test uitgevoerd in drie technische replicaties voor elk van de drie biologische repliceert om rekening te houden met variaties van luciferase activiteit lezingen. Om de genormaliseerde plooiverandering van de parasietgroei te berekenen, werd elke lezing bij 24-96 uur na de infectie gedeeld d...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
++Dit protocol beschrijft een op luciferase gebaseerd protocol om de intracellulaire Toxoplasma-groei te beoordelen en de remmingswerkzaamheid van chemische verbindingen tegen de groei van parasieten te evalueren. Vergeleken met de bestaande strategieën die beschikbaar zijn voor het meten van intracellulaire Toxoplasma-groei, vertoont deze methode een hoge gevoeligheid en specificiteit. Tijdens het monitoren van de groei van parasieten wordt een mock-test in een duidelijke 96-microplaat aanbevolen om te...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
De auteurs willen Drs. Sibley en Carruthers bedanken voor het delen van pSAG1-Cas9-sgRNA-TgUPRT plasmid en anti-TgCPL en TgActin antilichamen. Dit werk werd ondersteund door het Clemson Startup fonds (aan Z.D.), Temptemplar Eye Foundation Pediatric Oog-Ophthalmology Career-Starter Research Grant (aan Z.D.), een pilot subsidie van een NIH COBRE grant P20GM109094 (aan Z.D.), en NIH R01AI143707 (naar Z.D.). De financiers hadden geen rol in het ontwerpen van studies, het verzamelen en analyseren van gegevens, het besluit om het manuscript te publiceren of te bereiden.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Agarose gel extractie kit | New England BioLabs | T1020L | |
| BamHI | New England BioLabs | R0316S | |
| Biotek Synergy H1 Hybrid Multi-Mode Microplate Reader | BioTek Instuments | ||
| BTX Gemini Twin Waveform Electroporation System | Harvard Apparatus | ||
| Chemisch competente E. coli cellen | New England BioLabs | C29871 | |
| CloneAmp HiFi PCR premix | Takara Bio | 639298 | |
| Coelenterazine h | Prolume | 301-10 hCTZ | |
| EcoRV | New England BioLabs | R3195S | |
| Phire Tissue Direct PCR Master Mix | Thermo Scientific | F170L | |
| Plasmid miniprep kit | Zymo Research | D4054 | |
| Q5 Site-Directed Mutagenesis kit | New England BioLabs | E0554S | |
| Software | |||
| Geneious software voor sgRNA ontwerp (versie: R11) | |||
| GraphPad Prism software (8th versie) | |||
| SnapGene voor moleculaire klonen (versie: 4.2.11) |
Referenties
- Blader, I. J., Coleman, B. I., Chen, C. T., Gubbels, M. J. Lytic Cycle of Toxoplasma gondii: 15 Years Later. Annual Review of Microbiology. 69 (1), 1-23 (2014).
- Jones, J. L., Kruszon-Moran, D., Rivera, H., Price, C., Wilkins, P. P. Toxoplasma gondii Seroprevalence in the United States 2009-2010 and Comparison with the Past Two Decades. The American Journal of Tropical Medicine and Hygiene. 90 (6), (2014).
- Kieffer, F., Wallon, M. Congenital toxoplasmosis. Handbook of Clinical Neurology. 112, 1099-1101 (2013).
- Hoffmann, S., Batz, M. B., Morris, G. J. Annual cost of illness and quality-adjusted life year losses in the United States due to 14 foodborne pathogens. Journal of Food Protection. 75 (7), 1292-1302 (2012).
- Dubey, J. Toxoplasmosis. Journal of the American Veterinary Medical Association. 205 (11), 1593-1598 (1994).
- Lindsay, D., Dubey, J. Toxoplasma gondii: the changing paradigm of congenital toxoplasmosis. Parasitology. 138 (14), 1-3 (2011).
- Deng, Y., Wu, T., Zhai, S., Li, C. Recent progress on anti-Toxoplasma drugs discovery: Design, synthesis and screening. European Journal of Medicinal Chemistry. 183, 111711(2019).
- Butler, N. J., Furtado, J. M., Winthrop, K. L., Smith, J. R. Ocular toxoplasmosis II: clinical features, pathology and management. Clinical & Experimental Ophthalmology. 41 (1), 95-108 (2013).
- Pfefferko, E., Pfefferko, L. C. Specific Labeling of Intracellular Toxoplasma gondii with Uracil. Journal of Eukaryotic Microbiology. 24 (3), 449-453 (1977).
- Merli, A., Canessa, A., Melioli, G. Enzyme immunoassay for evaluation of Toxoplasma gondii growth in tissue culture. Journal of Clinical Microbiology. 21 (1), 88-91 (1985).
- Derouin, F., Chastang, C. Enzyme immunoassay to assess effect of antimicrobial agents on Toxoplasma gondii in tissue culture. Antimicrobial Agents and Chemotherapy. 32 (3), 303-307 (1988).
- McFadden, D., Seeber, F., Boothroyd, J. Use of Toxoplasma gondii expressing beta-galactosidase for colorimetric assessment of drug activity in vitro. Antimicrobial Agents and Chemotherapy. 41 (9), 1849-1853 (1997).
- Gubbels, M. J., Li, C., Striepen, B. High-Throughput Growth Assay for Toxoplasma gondii Using Yellow Fluorescent Protein. Antimicrobial Agents and Chemotherapy. 47 (1), 309-316 (2003).
- Touquet, B., et al. High-content imaging assay to evaluate Toxoplasma gondii infection and proliferation: A multiparametric assay to screen new compounds. PLoS ONE. 13 (8), e0201678(2018).
- Thornton, L. B., et al. An ortholog of Plasmodium falciparum chloroquine resistance transporter (PfCRT) plays a key role in maintaining the integrity of the endolysosomal system in Toxoplasma gondii to facilitate host invasion. PLOS Pathogens. 15 (6), e1007775(2019).
- Larson, E. T., et al. Toxoplasma gondii cathepsin L is the primary target of the invasion-inhibitory compound morpholinurea-leucyl-homophenyl-vinyl sulfone phenyl. The Journal of Biological Chemistry. 284 (39), 26839-26850 (2009).
- Dou, Z., McGovern, O. L., Cristina, M., Carruthers, V. B. Toxoplasma gondii Ingests and Digests Host Cytosolic Proteins. mBio. 5 (4), e01188-14(2014).
- Cristina, M., et al. Toxoplasma depends on lysosomal consumption of autophagosomes for persistent infection. Nature Microbiology. 2, 17096(2017).
- Parussini, F., Coppens, I., Shah, P. P., Diamond, S. L., Carruthers, V. B. Cathepsin L occupies a vacuolar compartment and is a protein maturase within the endo/exocytic system of Toxoplasma gondii. Molecular Microbiology. 76 (6), 1340-1357 (2010).
- Huynh, M. H., Carruthers, V. B. Tagging of endogenous genes in a Toxoplasma gondii strain lacking Ku80. Eukaryotic cell. 8 (4), 530-539 (2009).
- Fox, B. A., Ristuccia, J. G., Gigley, J. P., Bzik, D. J. Efficient gene replacements in Toxoplasma gondii strains deficient for nonhomologous end joining. Eukaryotic Cell. 8 (4), 520-529 (2009).
- Sidik, S. M., Hackett, C. G., Tran, F., Westwood, N. J., Lourido, S. Efficient Genome Engineering of Toxoplasma gondii Using CRISPR/Cas9. PLoS ONE. 9 (6), e100450(2014).
- Shen, B., Brown, K. M., Lee, T. D., Sibley, D. L. Efficient Gene Disruption in Diverse Strains of Toxoplasma gondii Using CRISPR/CAS9. mBio. 5 (3), e01114-14(2014).
- Radke, J. R., et al. Defining the cell cycle for the tachyzoite stage of Toxoplasma gondii. Molecular and Biochemical Parasitology. 115 (2), 165-175 (2001).
- Ran, A. F., et al. Genome engineering using the CRISPR-Cas9 system. Nature Protocols. 8 (11), 2281-2308 (2013).
- Labun, K., Montague, T. G., Gagnon, J. A., Thyme, S. B., Valen, E. CHOPCHOP v2: a web tool for the next generation of CRISPR genome engineering. Nucleic Acids Research. 44 (W1), W272-W276 (2016).
- Heigwer, F., Kerr, G., Boutros, M. E-CRISP: fast CRISPR target site identification. Nature Methods. 11 (2), 2812(2014).
- Peng, D., Tarleton, R. EuPaGDT: a web tool tailored to design CRISPR guide RNAs for eukaryotic pathogens. Microbial Genomics. 1 (4), e000033(2015).
- Doench, J. G., et al. Rational design of highly active sgRNAs for CRISPR-Cas9-mediated gene inactivation. Nature Biotechnology. 32 (12), 1262-1267 (2014).
- Sidik, S. M., et al. A Genome-wide CRISPR Screen in Toxoplasma Identifies Essential Apicomplexan Genes. Cell. 166 (6), 1423-1435 (2016).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
