Hier presenteren we een protocol om veelzijdige orthotope en ectopische zebravis xenotransplantaatmodellen voor oculair melanoom op te stellen om de groeikinetiek van de primaire tumor, verspreiding, extravasatie en verre, perivasculaire metastasevorming en het effect van chemische remming daarop te beoordelen.
Methodenartikel
Ortho- en ectopische zebravis xeno-implantatie van oculair melanoom om de ontwikkeling van primaire tumoren en experimentele metastase te recapituleren
In dit artikel
Samenvatting
Samenvatting
Er zijn momenteel geen diermodellen voor gemetastaseerd oculair melanoom. Het gebrek aan gemetastaseerde ziektemodellen heeft het onderzoek naar en de ontwikkeling van nieuwe strategieën voor de behandeling van gemetastaseerd oculair melanoom sterk belemmerd. In dit protocol schetsen we een snelle en efficiënte manier om embryonale zebravismodellen te genereren voor zowel het primaire als het gedissemineerde stadium van oculair melanoom, met behulp van respectievelijk retro-orbitale orthotope en intravasculaire ectopische celimplantatie. Door deze twee verschillende implantatiestrategieën te combineren, kunnen we de etiologie van kanker in zijn totaliteit samenvatten, van primaire, gelokaliseerde tumorgroei onder het oog tot een perivasculaire metastasevorming in de staart. Deze modellen stellen ons in staat om de kankercellen snel en gemakkelijk aan te passen voorafgaand aan implantatie met specifieke labeling, genetische of chemische interferentie; en om de getransplanteerde gastheren te behandelen met (klein moleculaire) remmers om de tumorontwikkeling te verzwakken.
Hier beschrijven we het genereren en kwantificeren van zowel orthotope als ectopische implantatie van oculaire melanomen (conjunctivaal en oogmelanoom) met behulp van fluorescerend gelabelde stabiele cellijnen. Dit protocol is ook van toepassing op implantatie van primaire cellen afgeleid van patiëntbiopsie en patiënt/PDX-afgeleid materiaal (manuscript in voorbereiding). Binnen enkele uren na implantatie kunnen celmigratie en -proliferatie worden gevisualiseerd en gekwantificeerd. Beide tumorhaarden zijn direct beschikbaar voor beeldvorming met zowel epifluorescentiemicroscopie als confocale microscopie. Met behulp van deze modellen kunnen we de activiteit van chemische of genetische remmingsstrategieën bevestigen of weerleggen binnen slechts 8 dagen na het begin van het experiment, waardoor niet alleen een zeer efficiënte screening op stabiele cellijnen mogelijk is, maar ook patiëntgerichte screening voor precisiegeneeskundebenaderingen mogelijk is.
Inleiding
Gemetastaseerde verspreiding wordt beschouwd als de belangrijkste doodsoorzaak van oculair melanoom; Momenteel is er geen levensvatbaar behandelingsregime voor gedissemineerd oculair melanoom 1,2. Bovendien zijn er geen diermodellen beschikbaar voor oculair melanoom dat de uitgezaaide ziekte weerspiegelt. Om deze kloof te overbruggen, hebben we twee verschillende zebravismodellen gegenereerd die ofwel primaire tumorvorming ofwel de vroege stadia van metastatische verspreiding recapituleren, waardoor de studie van deze normaal moeilijk te bestuderen processen gemakkelijk mogelijk is 3. De micrometastasemodellen maken de analyse mogelijk van de laatste fasen van metastatische verspreiding, inclusief homing, kolonisatie en extravasatie. Genetische of chemische interventies in dit stadium en daarna kunnen mogelijk een krachtige houvast bieden bij de behandeling van gemetastaseerd oculair melanoom.
Het gebruik van de zebravislarven als ontvanger van xeno- en allotransplantaten wordt ondersteund door de intrinsieke sterke punten van deze soort, zoals de optische transparantie in de vroege stadia van ontwikkeling (of de hele levenscyclus voor casper-mutanten 4), hoge vruchtbaarheid en ex utero-bevruchting 5. Hoge transcriptionele homologie bij gewervelde dieren zorgt voor het behoud van kernsignaleringsmechanismen tussen de zebravis en de mens en daarom voor een hoge potentiële vertaalbaarheid van de resultaten 6, hoewel genetische benaderingen soms ontsierd of gecompliceerd zijn als gevolg van de duplicatie van het teleostgenoom 7. Recente ontwikkelingen hebben het belang onderstreept van xenotransplantaatmodellen van zebravissen als preklinische "avatars" van ziekten bij de mens8, wat effectief een veelheid aan gepersonaliseerde kankertherapiemodellen oplevert voor de preklinische evaluatie van behandelingsstrategieën van een enkel zebravisexperiment 9.
Gezien het gebrek aan diermodellen en het daarmee samenhangende gebrek aan behandelingsopties voor gemetastaseerd oculair melanoom, bieden onze modellen een snel en eenvoudig translationeel platform om zowel genetische veranderingen (intrinsiek kankercellen) te screenen als chemische interventiestrategieën te ontwikkelen in een preklinische setting. Binnen hetzelfde model kunnen we de groeikinetiek van kankercellen, de implantatiesnelheid/metastatisch potentieel en celhoming op dierniveau visualiseren en meten met behulp van een vergroting op laag niveau in een stereo fluorescerende microscoop, en vergelijkbare metingen uitvoeren met behulp van confocale microscopische analyse met gemiddelde of hoge vergroting om verschillende stappen van oculaire melanoomprogressie te ontleden met subcellulaire resolutie 10.
Hier beschrijven we uitgebreide en gedetailleerde protocollen voor: het genereren van fluorescerend gelabelde kankercellen met behulp van sterk geoptimaliseerde lentivirale transductie11; daaropvolgende intraveneuze en retro-orbitale (RO) implantaties van deze cellen in 2 dagen na bevruchting (DPF) zebravislarven om respectievelijk ectopische en orthotope modellen te genereren; gevolgd door data-acquisitie en -analyse. Hoewel deze methoden uitgebreid zijn voor de hierin beschreven toepassingen, kunnen ze indien nodig worden aangepast om cellen in de achterste hersenholte, de lever en de perivitellineruimte te transplanteren (uitsluitend door de injectieplaats of het tijdstip van injectie te wijzigen)12,13.
Als proof-of-concept hebben we de bevindingen van Pontes et al. 2018 uitgewerkt, waar we een dosis- en celintrinsieke mutatiespecifieke respons van conjunctivale melanoomcellijnen in het zebravismodel 14 aantoonden. We hebben deze bevindingen verder uitgewerkt door de werkzaamheid van BRAF V600E-mutatiespecifieke remmer vemurafenib aan te tonen in zowel gemetastaseerde als primaire conjunctivale melanoommodellen.
Protocol
Alle dierproeven zijn goedgekeurd door de Dierexperimenten Commissie (D.E.C.) onder licentie AVD1060020172410. Alle dieren werden gehouden in overeenstemming met de lokale richtlijnen met behulp van standaardprotocollen (www.ZFIN.org).
1. Voorbereiding
- Reagentia
- Bereid eiwater: 0,6 mg/L eindconcentratie zeezout.
- Bereid 5 mg/ml Tricaïne 25x bouillon: Meng 5 g Tricaïne (ethyl 3-aminobenzoaat methaansulfonaat of MS-222) poeder, 900 ml gedemineraliseerd water en 21 ml 1 M Tris (pH 9). Stel in op pH 7 en vul tot 1 L. Tricaïne kan korte tijd (tot zes maanden) bij 4 °C worden bewaard of kan een maand bij kamertemperatuur worden bewaard indien beschermd tegen zonlicht.
- Bereid 1,5% (w/v) agarose in eiwater: 1,5 g in 100 ml DPBS. Magnetron om op te lossen.
- Bereid 1% (w/v) laagsmeltende agarose in eiwater: 1,5 g in 100 ml DPBS. Magnetron om op te lossen.
- Bereid 2% (w/v) PVP40 voorraad in DPBS: 1 g PVP40 in 50 ml DPBS. Draaikolk en incubeer bij 37 °C om het oplossen te vergemakkelijken. Bewaren bij kamertemperatuur.
- Gebruik DMSO. Het wordt vaak gebruikt als oplosmiddel bij medicamenteuze behandelingen en moet in het donker bij 2-8 °C worden bewaard.
- Gebruik TrypLE, een synthetische trypsinevervanger die minder schadelijk is voor de cellen en zorgt voor een zachte verspreiding van sterk hechtende cellen.
- Bereid de fosfaatgebufferde zoutoplossing (DPBS) van Dulbecco zonder Mg2+ en Ca2+ voor het wassen van de cellen. Het ontbreken van Ca2+ schaadt de cel-celadhesie via cadherines.
- Bereid lentivirale plasmiden: psPAX2 (plasmide #12260) en pMD2.G (plasmide #12259) geschonken door Didier Trono en ofwel een GFP (Plasmide #106172) of tdTomato (Plasmide #106173) die codeert voor transferplasmide (Addgene).
- Gebruik LipodD293: Zeer efficiënt HEK293T geoptimaliseerd transfectiereagens.
- Agarose schotel
OPMERKING: Als u gerechten gebruikt die lange tijd zijn bewaard, zorg er dan voor dat u een kleine hoeveelheid eiwater aan de schalen toevoegt voordat u met de injectie begint (dit voorkomt dat de vis te snel uitdroogt).- Bereid 1,5% (w/v) met agarose omhulde gerechten (agarose opgelost in eiwater).
- Onmiddellijk gebruiken of bewaren bij 4 °C in omgekeerde positie.
2. Naalden
NOTITIE: Zorg ervoor dat de haarvaten zijn gekalibreerd op het gebruikte filament. Bepaal bij het verwisselen van het filament of het capillair de hellingswaarde van de capillairen op het gebruikte filament (zie handleiding naaldtrekker).
- Eén glazen capillair levert twee micro-injectienaalden op. Voordat u naalden maakt, controleert u de structurele integriteit van het filament (2,5 mm doosfilament) van de naaldtrekker.
- Zorg ervoor dat zowel het filament als het capillair zijn gekalibreerd om de bijbehorende hellingswaarde te krijgen. Wanneer de structurele integriteit van de filamenten is aangetast (d.w.z. ongelijk, gaten, gesmolten enz.), vervang dan het filament.
- Gebruik het volgende programma (Naald #99, Heat = ramp + 15, pull = 95, velocity = 60, time = 90). Bewaar de naalden in een daarvoor bestemde petrischaal (met klei of tape om de naalden op te plakken)
3. Vorming van lentivirale deeltjes
OPMERKING: Om verspilling van tijd en middelen te voorkomen, kan een snelle tumorigeniciteitscontrole worden uitgevoerd voorafgaand aan lentivirale transductie. Dit wordt gedaan om ervoor te zorgen dat de te gebruiken cellijn voldoende tumorigene is in het zebravismodel, hiertoe kunnen de cellen worden gekleurd met een CMdiI (of analoge tracer) zoals beschreven in Liverani et al. 2017 15.
- Plaat HEK 293t cellen één dag voorafgaande transfectie om een samenvloeiing van ongeveer 70% te bereiken (routinematig gedaan door een volledige kolf te splitsen aan de zelfde fles van de volumecultuur bij een verdunning 1:3 één dag voordien).
- Op de dag van transfectie, co-transfecteren de vereiste verpakkingsplasmiden psPAX2 en pMD2.G virale envelop die plasmide tot expressie brengen samen met of een GFP (Plasmide #106172) of tdTomaat (Plasmide #106173) coderend voor het overdrachtplasmide. De exacte hoeveelheid plasmide die wordt gebruikt, wordt gespecificeerd in tabel 1.
OPMERKING: Zowel psPAX2 als pMD2.G werden geschonken door Didier Trono (respectievelijk Addgene plasmide #12260 en #12259).
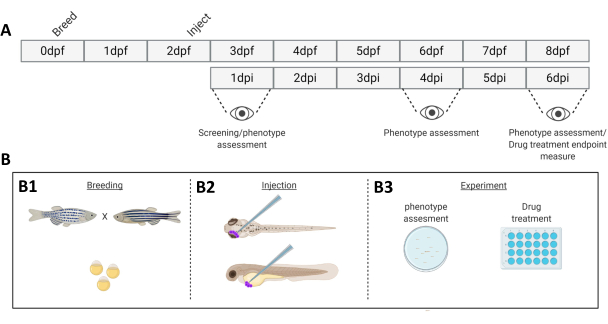
Figuur 1. Schematische weergave van het beschreven zebravis-implantatiesysteem. A) De tijdlijn van de aanpak, met het kweken van de zebravis op dag 0 (B1). De vissen worden 's ochtends na het kruisen van de vissen geoogst (dag 1). Na 48-54 uur zijn de vissen grotendeels uitgekomen (waarbij hun chorion is afgeworpen) en worden de vissen geïnjecteerd (retro-orbitaal of systemisch, B2) na het reinigen van het water van de chorionresten (dag 2). De larven worden vervolgens gescreend met een stereo fluorescerende microscoop en alle larven die ongewenste fenotypes vertonen, worden weggegooid (dag 3). Afhankelijk van het doel van het experiment worden de larven in de loop van de tijd in beeld gebracht (B3, implantatiekinetiek, 1, 4 en 6 dagen na injectie (dpi)) of worden de vissen gerandomiseerd en ingedeeld in experimentele groepen, behandeld met medicijnen en vergeleken met voertuigcontrole (drugsscreening, afgebeeld bij 6 dpi). Klik hier om een grotere versie van deze figuur te bekijken.
- Meng alle plasmiden samen in 500 μl serumvrij medium, om volledige menging van alle plasmiden mogelijk te maken. Voeg 32 μL LipoD293-reagens toe aan 500 μL serumvrije DMEM en vortex om volledig te mengen. Meng beide volumes goed door elkaar. Laat de plasmiden en de lipoD293 20 minuten complexeren.
- Voeg druppelsgewijs toe aan een kweekkolf met2 cellen van 75 cm die 70% confluent HEK293T cellen bevat die 9 ml volledig kweekmedium bevatten. Voeg het transfectiemengsel rechtstreeks aan de cellaag toe met behulp van een serologische pipet (kolf in horizontale richting).
- Vervang het medium door 20 ml verse volledige DMEM 16 uur na transfectie. Oogst supernatant na 72 uren na transfectie. Aliquot viraal supernatans in 1 ml aliquots en bewaren bij -80 °C. Het lentivirale supernatans is stabiel bij -80 °C gedurende ten minste 1 jaar.
4. Lentivirale transductie
- Stel vóór lentivirale transductie een kill-curve vast bij gebruik van een selecteerbaar lentiviraal construct.
- Voor de kill-curve plaatst u de te transduceren cellijn in een plaat met 12 putjes (samenvloeiing ongeveer 10-20%). Voeg een dosiscurve van de selectant toe (geschatte concentraties voor dodingscurves: puromycine 0,5-10 μg/ml, blasticidine 1-20 μg/ml, geneticine (G418) 100-2000 μg/ml, hygromycine 100-2000 μg/ml).
- Vervang het medium om de drie dagen om een stabiele concentratie van de gekozen selectant te garanderen.
- Voeg 1 ml lentiviraal supernatans toe aan 9 ml kweekmedium, met een uiteindelijke concentratie van 8 μg/ml polybreen op 20-40% confluente cellen. Volumes kunnen worden verkleind, met behoud van deze verhouding tussen supernatant en medium.
- 16-24 uur na transductie het medium vervangen. Herhaal indien nodig de vorige stap om de fenotypepenetrantie te verbeteren (controleer de fluorescentie om te beslissen of een nieuwe transductie nodig is).
- Selecteer 48 uur na de transductie de cellen met behulp van het antibioticum dat overeenkomt met de resistentiemarker die in de lentivirale cassette is verwerkt. De concentratie die moet worden gebruikt voor de selectie van de populatie van getransduceerde cellen moet de wildtypepopulatie binnen 7 dagen na toepassing van de selectant doden (d.w.z. de getransduceerde cellen de wildtypepopulatie laten ontgroeien).
- Breng viraal supernatans aan in verschillende multipliciteiten van infectie (MOI's) om ervoor te zorgen dat de transductie en de genetische laesies die door het cellulaire genoom worden opgelopen, de levensvatbaarheid van de cellen of tumorigeniciteit niet negatief beïnvloeden.
5. Kweek van zebravissen
- Op dag 0, 2 dagen voorafgaand aan de implantatie van kankercellen, paren volwassen zebravissen op een "familiekruis"-manier bij kamertemperatuur (Figuur 1).
- Haal het aquarium met zebravissen uit het behuizingssysteem (op 28,5 °C gehouden).
- Verdeel de vissen in kleine kweekclusters in een verhouding van 1:1 mannelijk: vrouwelijk, met 10 vissen per cluster. Plaats de vissen in kleine kweekbakken, in water uit het behuizingssysteem, boven een schuin rooster (schuin, om het ondiepe water na te bootsen waarin zebravissen van nature zouden paaien).
OPMERKING: Geïnduceerd door de temperatuurdaling van 28.5°C naar kamertemperatuur (25°C) en het ingaan van de volgende lichtfase van de donker/lichtcyclus zullen de vissen paaien. - Verwijder vervolgens de volwassenen en breng ze over naar hun behuizingstank.
- Verzamel de eieren en was ze met eiwater en gebruik een zeef. Verdeel de eieren in ongeveer 75-100 per gerecht en houd ze op 28,5°C.
- Maak ongeveer 6 uur na het verzamelen de vaatjes schoon van dode of misvormde embryo's.
- Vervang de volgende ochtend het eiwater en maak de vaat van dode embryo's opnieuw schoon.
6. Cellen oogsten
OPMERKING: Een goede celvoorbereiding is de sleutel tot de implantatieprocedure, het gebruik van een overtollige hoeveelheid cellen zorgt voor een gemakkelijkere verwerking stroomafwaarts. De derde centrifugatiestap is van cruciaal belang, omdat u dan alleen de celpellet overhoudt, de resterende PBS die aan de zijkanten van de centrifugebuis vastzit, overschrijdt het uiteindelijke resuspensievolume aanzienlijk.
- Verwarm alle media en oplossingen die in de celcultuur worden gebruikt voor gebruik voor in een waterbad van 37 °C.
- Voeg 2 ml tryplE toe per kweekkolf van 75 cm2 of 1 ml per kolf van 25 cm2 en incubeer tot alle cellen zijn afgerond. Voor de meeste cellijnen zou 2-5 minuten voldoende moeten zijn. Voor cellen met een hoog epitheelstelsel of fibroblastische cellen moet 5-10 minuten zorgen voor een goede loslating (onvoldoende trypsinisatie zal stroomafwaartse processen belemmeren en de celaggregatie tijdens implantatie vergemakkelijken).
- Tik zachtjes op de zijkant van de kolf om de resterende cellen los te maken.
- Opgeteld bij het oorspronkelijke kweekvolume van het volledige medium. Pipetteer voorzichtig maar grondig op en neer met een serologische pipet om celklonters te schuiven tot eencellige suspensie. Genereer geen schuim tijdens dit proces, aangezien schuim een indicatie is van mechanische afschuiving van de cellen.
- Breng over in een steriele buis van 15 ml en centrifugeer gedurende 5 minuten bij 200 x g bij kamertemperatuur. Aspireer supernatans en voeg 1 ml steriel PBS toe. Resuspendeer de cellen voorzichtig en grondig met behulp van een steriele pipet van 1000 μl.
- Verwijder de celsuspensie van 20 μl voor het tellen en breng de resterende celsuspensie over naar de centrifuge. Centrifugeer gedurende 4 minuten bij 200 x g bij kamertemperatuur.
- KRITIEKE STAP: Verwijder alle PBS, centrifugeer gedurende 30 s bij 200 x g bij kamertemperatuur en verwijder de resterende PBS.
- Verdun de cellen tot 250 cellen/nL in 2% polyvinylpyrrolidon 40 (PVP40, 2% (w/v) in DPBS) als volgt:
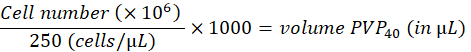
(bijvoorbeeld: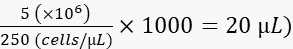
- Resuspendeer de cellen grondig, terwijl de vorming van luchtbellen wordt voorkomen (cellen kunnen ten minste 2 uur worden bewaard in 2% PVP40 zonder verlies van tumoriegeen potentieel).
7. Xenograft modellering
Alle experimenten moeten worden uitgevoerd in overeenstemming met de lokale voorschriften voor dierenwelzijn.
Afhankelijk van de toepassing worden twee belangrijke variaties in de experimentele opzet geclassificeerd: een fenotypebeoordeling (7.1 de pre-screeningfase) en ten tweede 7.2 een screening waarbij de cellen zijn gemodificeerd voorafgaand aan de implantatie of 7.3 waar de embryo's worden behandeld met een chemische remmer.
- Pre-screening en bepaling van tumorigenic potential
- Enen enting zebravislarven van belang (WT, transgene of reporterlijn) bij 2 dpf met een variërend aantal fluorescerende cellen (d.w.z. 200, 400, 600 ±100).
- Screen de larven 16-24 uur na injectie om uitschieters te verwijderen (extreem hoge of lage celaantallen in omloop voor het ectopische model, of cellen in de kop voor het orthotopische model) en verwijder ten onrechte geënte vissen. Geef het aantal larven per experimentele groep aan voor groepsanalyse versus kinetische analyse van dezelfde larven.
- Monitor de zebravislarven met regelmatige tussenpozen (1,2,4,6 dagen na injectie (dpi)) en breng 20 individuen in beeld (zoals beschreven in stap 9 en 10), uit een pool van ±50 larven.
- Monitor het algemene fenotype en de ziekteprogressie en kwantificeer vervolgens met ImageJ (meting van de geïntegreerde dichtheid van het fluorofoorsignaal in de kankercellen).
- Zet de gegevens uit om de groeikinetiek van kankercellen in de zebravis te visualiseren (Figuur 3).
- Wijzig cellen a priori (knock-down of knock-out van een gen van belang) en enting in zebravissen.
- Ent vissen en verwijder alle ongewenste fenotypes (per voorwaarde).
- Stel de individuen in op 1 dpi (20 larven per groep). Individuen kunnen met vaste tussenpozen (1,2,4 en 6 dpi) worden afgebeeld.
- Bij 6 dpi na beeldvorming, euthanaseer de vis door een overdosis tricaïne te nemen (10-voudige overdosering bij 0,4 mg/ml) en gooi deze weg op absorberend papier dat een trechter bekleedt.
- Behandel vissen met medicijnen na implantatie.
- Voorafgaand aan de toepassing van het geneesmiddel op geënte zebravissen, bepaal de maximaal getolereerde dosis (MTD) op zebravissen (titreer van 10 μM - 0,150 nM, met het hoogste volume oplosmiddel als negatieve controle) we hebben de MTD ingesteld als de concentratie waarbij >80% van de individuen de hele behandeling overleeft.
- Verwijder een dag na de injectie de ongewenste fenotypes.
- Verdeel de vissen willekeurig in groepen (36-48 individuen/toestand) en bewaar ze in een plaat met 24 putjes met 6 larven per putje in 1 ml eiwater.
- Breng medicijnen 24 uur na implantatie aan. Gebruik als controle dezelfde hoeveelheid oplosmiddel (DMSO, EtOH enz.) in het hoogste volume dat voor een experimentele groep wordt toegepast.
- Begin met de medicamenteuze behandeling met de maximaal getolereerde dosis. Vervang het eiwater met het medicijn om de dag. Verwijder het eiwater en de dode larven bij elke wissel zo volledig mogelijk.
8. Injectie
OPMERKING: Gebruik een pneumatische pulsregelaar die is gekoppeld aan een persluchtleiding en die een druk van meer dan 100 psi levert. Dit zorgt voor voldoende druk om zowel te injecteren (≈20 psi) als om mogelijke celaggregaten uit te werpen (≈100 psi). De startdruk en -tijd moeten ongeveer 200 ms zijn bij 20 psi. Als een van beide aan het begin van de injectie met meer dan 50% moet worden verlaagd, is de celsuspensie te vloeibaar (cel- of PVP40-concentratie te laag) of is de naaldopening te groot.
- Haal voorzichtig een capillaire naald uit de verpakking. Breek de naald om een opening van ø20 μm te vormen met behulp van een fijne horlogemakerstang.
- Resuspendeer de cellen voorzichtig en grondig met behulp van een pipetpunt van 20 μl. Pipetteerpenspensie in de open glazen capillaire naald met behulp van een lange (microloader) punt. Laad de naald in de micromanipulator.
- Plaats ~20-40 larven verdoofd in 0,04 mg/ml tricaïne op een agaroseschaaltje met behulp van een transferpipet. Verwijder overtollig vocht om de larven te immobiliseren met behulp van een transferpipet. De larven zullen meestal zijwaarts georiënteerd zijn door de aanwezigheid van een nog relatief grote dooierzak.
- Injecteer de larven met ongeveer 200, 400 en 600 cellen via het kanaal van Cuvier (doC) voor een ectopisch model.
- Injecteer op dezelfde manier larven retro-orbitaal (RO). Om het orthotope model te verkrijgen (injecteren van 100 ±50 cellen), wijzigt u de pneumatische pulslengte op de picopomp (begin bij ~20 psi, 200 ms en pas dienovereenkomstig aan). Zorg er tijdens het injectie voor dat de larven niet uitdrogen. Zorg ervoor dat alle (of de meeste) larven worden geïnjecteerd.
- Spoel de geïnjecteerde larven weg met vers eiwater en breng ze over naar een geëtiketteerde, schone petrischaal (met maximaal 150 exemplaren per schaal). Herhaal dit proces totdat er voldoende larven zijn geïnjecteerd.
- Houd de vissen na de implantatie op 34 °C in een bevochtigde broedmachine, waarbij 34 °C de hoogste temperatuur is die gemakkelijk wordt verdragen door zebravissen en die een efficiënte implantatie van kankercellen van zoogdieren mogelijk maakt.
OPMERKING: Over het algemeen hebben we bij injectie van eencellige lijnen in zowel doC als RO een geschatte sterfte als gevolg van mechanische schade van <5% waargenomen (mechanische schade doodt de larven tussen 1-16 uur na injectie).
9. Vertoning
- Met behulp van een stereofluorescentiemicroscoop wordt de vis 1 uur na implantatie gescreend op het juiste fenotype bij het vergelijken van cellen die a priori zijn gewijzigd (of 1 dag na implantatie, bij het screenen van geneesmiddelen, vóór de willekeurige toewijzing in behandelingsgroepen).
- Larven die via de doC zijn geïmplanteerd, moeten tussen 1 uur en 16 uur na implantatie cellen in de staart hebben. Verwijder alle andere vissen, inclusief vissen die een afwijking vertonen, uit het geïnjecteerde bassin.
OPMERKING: Larven die retro-orbitaal zijn geïmplanteerd, mogen alleen cellen hebben in het interstitium achter het oog, larven met cellen verspreid over het hoofd of lichaam worden uit de pool verwijderd. - Maak positief gescreende larven schoon en wijs ze willekeurig toe aan experimentele groepen.
- Houd de vissen na de implantatie op 34 °C in een bevochtigde broedmachine en controleer deze dagelijks. Hematogene verspreiding van cellen die via de doC zijn geïmplanteerd, is bijna onmiddellijk, terwijl metastatische verspreiding van cellen die in de RO-holte zijn geïmplanteerd, zich na 2-4 dagen zal verspreiden.
10. Epifluorescente beeldvorming van zebravislarven
- Verdoof zebravislarven met 0,2 mg/ml tricaine, hetzij door tricaïne aan het water van de vis toe te voegen, hetzij door een subpopulatie vissen te verplaatsen van de onderhoudsschaal naar een schaal met 0,2 mg/ml tricaïne.
- Bewaar zebravissen in een schaaltje met tricaine totdat ze stil blijven staan, totdat stimulatie van de zijlijn geen vlieggedrag meer induceert.
- Breng de vis over naar een met agarose bedekte petrischaal, ongeveer 10 per gerecht. Verwijder het grootste deel van het water door het ene uiteinde van de schaal voorzichtig op te tillen (zodat het water zich voorzichtig in het onderste uiteinde van de petrischaal kan verzamelen). Als je het zorgvuldig doet, zullen alle vissen op één lijn liggen, met de staart naar beneden.
- Stel je alle vissen voor vanaf de bovenkant van de schaal tot de bodem. Was de vis vervolgens af met eiwater in een schaal zonder tricaine.
- Herhaal dit totdat er voldoende individuen in beeld zijn.
- Breng de larven vervolgens terug naar de 34 °C of cull (bij 6 dpi) door overdosering met tricaine (d.w.z. 0,5 mg/ml, incubatie gedurende 10 minuten, alvorens weg te gooien op absorberend papier dat een trechter bekleedt).
11. Confocale beeldvorming van (geënte) zebravislarven
- Verdoof zebravissen met 0,2 mg/ml tricaïne zoals eerder beschreven.
- Plaats een confocale schaal met glazen bodem onder een stereomicroscoop en stel scherp op de bodem van de schaal. Breng 5-10 larven over naar een confocale schaal met glazen bodem. Verwijder zoveel mogelijk water.
- Bedek de larven met 42 °C, 1% laagsmeltende agarose opgelost in eiwater. Zorg ervoor dat de agarose voor gebruik is afgekoeld tot minimaal 42 °C; Hogere temperaturen kunnen de larven schaden of doden.
- Gebruik de stereomicroscoop om de larven snel maar voorzichtig te oriënteren en naar beneden te duwen, met behulp van een ingekorte microladerpunt. Als een ventrale oriëntatie vereist is, houd de larven dan op hun plaats met de tang van een horlogemakerstang (zonder het embryo aan te raken).
- Terwijl de agarosesets de oriëntatie van de larven fijn aanpassen. Laat de larven volledig uitharden voordat u ze overbrengt naar de confocale microscoop.
12. De confocale microscoop instellen
- Schakel de groene (488 nm) en rode (564 nm) excitatielaserlijnen in. Plaats de confocale schaal in de houder van de confocale microscoop. Beweeg met behulp van de epifluorescentie de lichtbundel zodat deze samenvloeit met de eerste vis (stand x en y). Door het oculair stel je de focus in op het midden van de larven (instelling z).
- Stel 700 versterking in op beide fluorescerende kanalen, 1-5% laservermogen. Verhoog het laservermogen en verlaag de offset tot ongeveer het volledige dynamische bereik. Verzadig het signaal niet te veel, maar verbeter het signaal om slechts een paar verzadigde pixels te laten zien.
- Stel bij het vastleggen van een steek het begin en einde van de larven in op één as ( x of y), als het langs één as wordt geplaatst, kan een heel embryo worden afgebeeld in 1 x 4 segmenten en kan het worden nabewerkt tot één afbeelding met behulp van ImageJ.
- Verwijder na het maken van de beeldvorming de larven uit de agarose door deze voorzichtig rond de ingebedde larven te scheuren met behulp van een horlogemakertang. Anders, euthanaseer de larven door een overdosis onverdunde tricaïne, bedek de agarose met een laag tricaine en broed 10 minuten.
13. Gegevensanalyse
- Open de afzonderlijke datasets in ImageJ/Fiji (d.w.z. controle, drug A, drug B, drug A+B) afzonderlijk, te beginnen met de voertuigbesturing.
- Open de analysemacro (geannoteerd script beschikbaar) (http://doi.org/10.5281/zenodo.4290225).
- In het kort doet de macro-analyse het volgende: alle geopende beelden aaneengeschakeld (één voorwaarde); splitst de beelden op in de afzonderlijke kanalen waaruit het beeld bestaat; sluit alle accessoirekanalen (verlaat het kankercelkanaal); voert een drempelalgoritme uit op de gehele aaneengeschakelde sequentie; meet de geïntegreerde dichtheid van elk afzonderlijk beeld; en slaat de metingen op als een Excel-blad in de hoofdmap.
- Voer de macro-analyse uit op alle voorwaarden.
- Combineer metingen (in het algemeen minimaal n=2*20) en verwijder uitschieters (Q-test in Graph pad Prism v8).
- Normaliseer de metingen naar oplosmiddelcontrole of naar dag 1 (afhankelijk van het type experiment, de eerste voor een experiment met medicijnremming en de laatste voor een groeikinetiekexperiment). Druk metingen uit als genormaliseerde kankercelbelasting (y-as ) in de tijd of toestand (x-as ) zoals weergegeven in respectievelijk Figuur 3 en Figuur 4.
Resultaten
We hebben stap voor stap instructies gegeven voor een snelle en gemakkelijke aanpak om van een nieuwe cellijn naar de analyse ervan te gaan. We beginnen met de overexpressie van een fluorescerende tracer met behulp van een lentivirale overexpressiecassette (stap 3 en 4). Dit wordt gevolgd door celvoorbereiding om ervoor te zorgen dat het volume tijdens het injecteren zo min mogelijk dood volume is, waardoor hoge celaantallen in zowel de doC als de retro-orbitale ruimte kunnen worden geïnjecteerd (stappen 6 en 7). Vervolgens voeren we semi-high throughput data-acquisitie uit met behulp van stereofluorescerende microscopie en confocale microscopie met een hogere vergroting voor kwalitatieve analyse van de verspreiding van kankercellen in het hele lichaam (Figuur 2 en stappen 10, 11 en 12). Er moet zorg worden besteed aan het verkrijgen van gegevens, om de reproduceerbaarheid voor zowel stereo als confocale microscopische beeldvorming te garanderen, de algemene instellingen en standaardisatie worden afgebakend (stappen 11 en 12). Gegevensanalyse wordt besproken (met behulp van imageJ/Fiji) 16, samen met standaardisatie met behulp van imageJ-macro's (stap 13).
In stap 3 noemden we de transiënte labeling van (kanker)cellen om een snelle pre-screening uit te voeren om het tumorigene potentieel van een nieuwe kankercellijn te beoordelen. Een belangrijk voorbehoud is dat, hoewel gemakkelijk te gebruiken en lang levend, de voorbijgaande kleuring die hierin wordt beschreven, de mogelijkheid heeft om artefacten te vormen (d.w.z. er moet voor worden gezorgd dat celfragmenten kunnen worden onderscheiden van hele cellen, zoals uitgebreid werd uitgevoerd door Fior en collega's 9). Onze ervaring is dat de vorming van deze artefacten direct verband houdt met de extreme stabiliteit van de vlek en de helderheid (zelfs na celdood), waarbij celfragmenten worden verspreid en opgenomen door immuuncellen, waarvan vervolgens ten onrechte kan worden geconcludeerd dat ze afkomstig zijn van actieve metastase.
In beide beschreven modellen, de systemische implantatie via de doC en de gelokaliseerde implantatie in de retro-orbitale ruimte, is een grondige screening van de larven één dag na injectie van het grootste belang. Zoals te zien is in figuur 2B , moeten alle larven die een mechanische verplaatsing van de geënte cellen in het hoofdgebied vertonen (voorbij de retro-orbitale plaats) in het retro-orbitale model en cellen in de dooierzak, of die een oedeem vertonen in de geïnjecteerde doC-pool, worden verwijderd. Alle negatief geselecteerde fenotypes worden weergegeven als confocale steken met hoge resolutie in Figuur 2, maar kunnen gemakkelijk worden gezien en verwijderd door middel van stereomicroscopische observatie.
Na verloop van tijd zullen cellen zowel migreren als zich vermenigvuldigen. Voor het retro-orbitale model hebben we infiltratie in naburige weefsels waargenomen voor CRMM1, maar we hebben minder proliferatie waargenomen voor CRMM2. We zagen opvallend genoeg metastasen op afstand tussen 2-4 dpi bij sommige individuen (20%), waarbij we een significant verschil maten bij 6 dpi, zoals weergegeven in figuur 4. Voor beide cellijnen hebben we het proliferatieve potentieel getest bij injectie op beide plaatsen. Voor CRMM1 was er een significante (p<0,0001) toename van het aantal kankercellen voor of op de injectieplaatsen, wanneer weergegeven als genormaliseerde tumorcelbelasting, normaliserend naar dag één voor elk model (7,8-voudige toename, ±3,2 voor het RO-model en een toename van 15-voudig ±8,8 voor het doC-model). CRMM2 vertoonde geen significante groei wanneer deze werd genormaliseerd naar de eerste dag van elk afzonderlijk model (2,4-voudige toename, ±1,9- en 2,3-voudige toename, ±1,14 voor de RO en doC). CRMM1 bleek na implantatie gemakkelijk te prolifereren in zowel retro-orbitaal weefsel als het caudale hematopoëtische weefsel. Cellijn CRMM2 was minder proliferatief in beide modellen, maar interessant genoeg bleek het in staat te zijn tot metastase op afstand wanneer het in de retro-orbitale ruimte werd geïnjecteerd, zoals weergegeven in figuur3B,C.
Na het screenen van de geïnjecteerde larven bij 1 dpi en het willekeurig toewijzen van de individuen aan behandelings- of controlegroepen, werden de vissen gedurende 6 dagen behandeld, waarbij het water dat Vemurafenib bevatte werd ververst (deze remmer kan gemakkelijk worden verwisseld voor elke andere getitreerde antitumorverbinding). We hebben ervoor gekozen om voort te borduren op het eerder gepubliceerde hematogene conjunctivale melanoomverspreidingsmodel dat CRMM114 ent, door de werkzaamheid van Vemurafenib op orthotopisch getransplanteerde CRMM1 te testen. CRMM1 vertoonde een sterke significante reductie van de met Vemurafenib behandelde ectopisch getransplanteerde groep (P<0,0001) en een onvolgroeide maar significante respons voor het orthotopisch getransplanteerde model (p<0,05) zoals weergegeven in figuur 4.
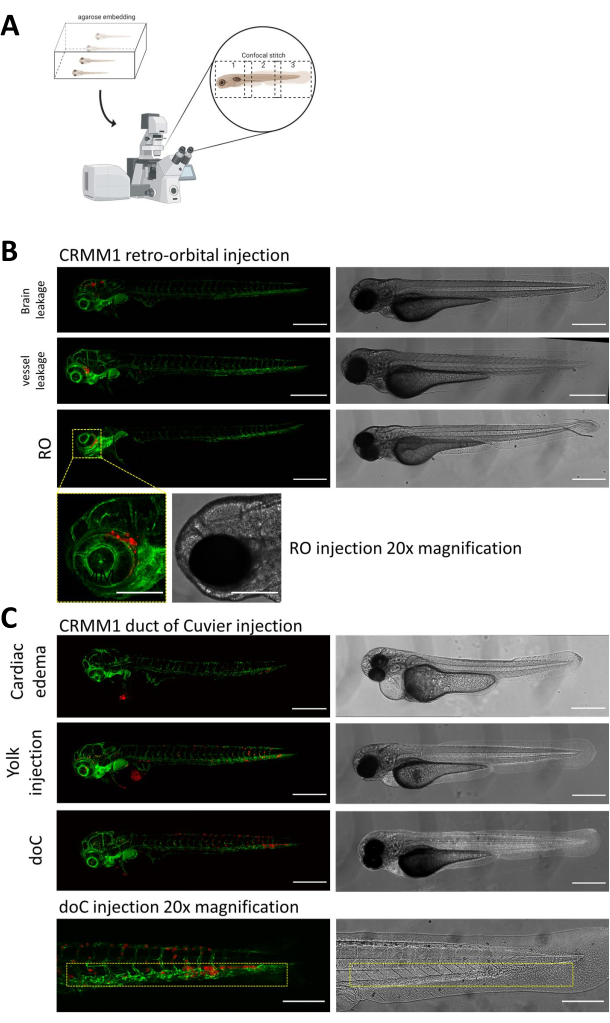
Figuur 2. Fenotypische beoordeling en screening na injectie. A) Schematische weergave van het genereren van confocale steken van zebravissen xenotransplantaat, wat naadloze beelden met hoge resolutie oplevert na integratie van daaropvolgende confocale projectie. Hier worden zebravis xenotransplantaten ingebed in 1% laagsmeltende agarose en gemonteerd op een confocale schaal met glazen bodem (zoals beschreven in stap 11.3). B) Alle mogelijke uitkomsten van retro-orbitale en duct van Cuvier-implantatie worden weergegeven geïnjecteerd in groene fluorescerende bloedvatreporter zebravis (TG:fli:GFP), met cellen gekleurd door lentivirale overexpressie van tdTomato). We duiden de juiste implantatie aan bij 1 dpi (RO-panel) en de ongewenste fenotypes (zowel hersenlekkage als bloedvatlekkage). De laatste twee populaties moeten worden verwijderd om ervoor te zorgen dat ze de stroomafwaartse experimentele bevindingen niet verwarren. C) De ongewenste fenotypes voor de hematogene implantatie door het kanaal van Cuvier (doC) zijn contouren waarbij cardiale oedemateuze larven (cardiaal oedeem) en larven met cellen die in de dooierzak lekken (dooierinjectie) moeten worden verwijderd om interferentie met stroomafwaartse metingen te voorkomen. De correct geïnjecteerde larven worden opgenomen in experimentele groepen zoals beschreven in stap 7.1. (Alle beelden verkregen bij 1 dpi, met behulp van een confocale microscoop, schaalbalken 200 μm. Gele vakken geven metastatische plaatsen aan voor respectievelijk RO- en doC-implantaties, hoofdgebied en caudaal hematopoëtisch weefsel). Klik hier om een grotere versie van deze figuur te bekijken.
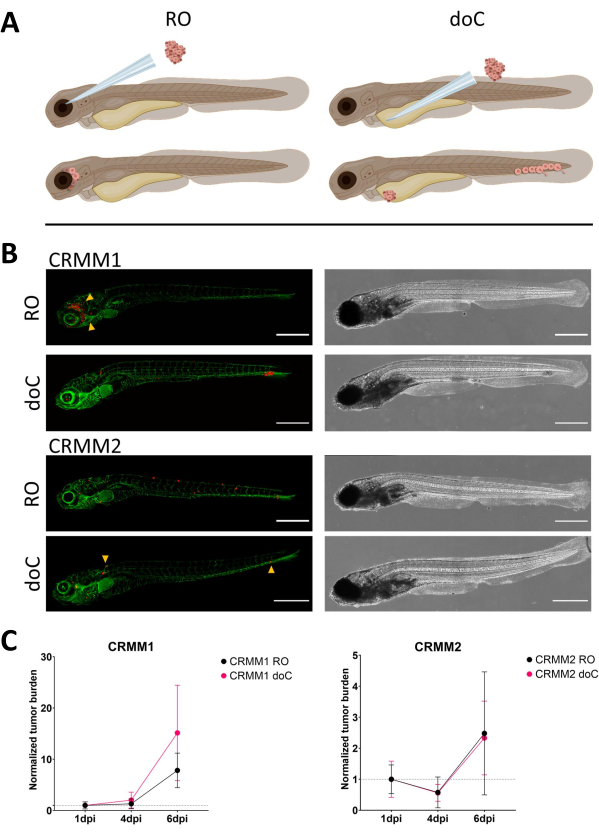
Figuur 3. Vergelijkende analyse van conjunctivale melanoomcellijnen CRMM1 en CRMM2 tonen differentiële metastasen en groeicapaciteit. A) Schematische weergave van injectiemodellen, retro-orbitaal model (RO) en hematogeen implantatiemodel (doC) de gebruikte vissen zijn TG(fli:GFP) groene bloedvatreporters, met cellen die tdTomaat tot overexpressie brengen, weergegeven in rood. B) Representatieve fenotypes van vissen geënt met CRMM1 en CRMM2, CRMM1 vertoont efficiënte implantatie (zowel RO als doC) en kleinschalige invasie in het weefsel rond de RO-implantatieplaats (RO, gele pijlpunten). CRMM2 vertoont een opmerkelijk lagere implantatie-efficiëntie voor beide implantatiemodellen, maar vertoont metastase op afstand wanneer het retro-orbitaal wordt geïnjecteerd (zoals weergegeven in RO, aangeduid met de pijlpunten). (Alle beelden verkregen bij 6 dpi, een confocale microscoop, schaalbalken 200 μm. Gele pijlpunten geven metastatische plaatsen aan voor zowel RO- als doC-implantaties, respectievelijk het hoofdgebied en het caudale hematopoëtische weefsel). C) Kinetische implantatieplots voor zowel CRMM1 als CRMM2, waarbij beide implantatiemodellen worden vergeleken met dag 1 (normaliserend naar dag 1), is er een significante (p<0,0001) toename van genormaliseerde tumorlast voor cellijn CRMM1 (tussen 1 dpi en 6 dpi) waar er een (niet-significante) opwaartse trend is voor CRMM2. CRMM1 onthult een significant verschil tussen RO- en doC-groei, waarbij het doC-model een hogere tumorexpansiesnelheid laat zien (ongeveer 2 keer hoger voor de doC-geënte larven). Grafieken geven het gemiddelde en de standaardfout van het gemiddelde (SEM) weer. Alle groepen werden genormaliseerd naar 1 dpi voor elke individuele aandoening. Klik hier om een grotere versie van deze figuur te bekijken.
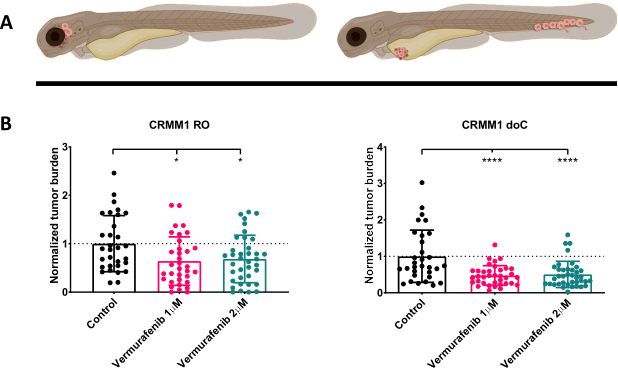
Figuur 4. BRAF V600E-remmer Vemurafenib remt significant zowel RO als doC conjunctivaal melanoom geënte zebravislarven. A) Schematische weergave van zebravis fenotypes, RO en doC modellen. B) Zowel RO- als doC-geënte larven, geïnjecteerd met conjunctivale melanoomcellijn CRMM1, vertonen een significante vermindering van de genormaliseerde tumorlast (respectievelijk p<0,05 en P<0,001). De doC-geënte zebravismodellen duiden op een verbeterde geneesmiddelrespons en een dosisonafhankelijke relatie met geneesmiddelremming, wat wijst op een mogelijke verzadiging van de remming). Grafieken tonen het gemiddelde en de standaardfout van het gemiddelde (SEM), alle groepen werden genormaliseerd naar controle voor elke individuele cellijn. Klik hier om een grotere versie van deze figuur te bekijken.
| Reagens | Volume |
| psPAX2 | 1,71 pmol (12,14 μg) |
| pMD2.G | 0,94 pmol (3,66 μg) |
| Plasmide overbrengen* | 1,64 pmol (bereken exact volume) |
Tabel 1.
Discussie
Hier hebben we een nauwgezette benadering gedefinieerd om primair en gemetastaseerd oculair melanoom in xenotransplantaten van zebravissen te modelleren. Door zowel een gelokaliseerde, orthotope injectie als een systemisch, ectopisch injectiemodel te combineren, hebben we de etiologie van carcinogenese voor een kanker waarvoor voorheen geen diermodellen beschikbaar waren, gerecapituleerd. De inherente transparantie van de vroege zebravislarve maakt het mogelijk om fluorescerend gelabelde kankercellen op dierniveau te volgen, waardoor potentiële metastatische plaatsen gemakkelijk kunnen worden gevisualiseerd17. Bovendien stelt confocale microscopische analyse met hoge vergroting ons in staat om cellen te volgen met een subcellulaire resolutie10.
We hebben stap voor stap instructies gegeven voor een snelle en gemakkelijke aanpak om van een nieuwe cellijn naar het opzetten van het xenotransplantaat en de analyse ervan te gaan. We beginnen met de overexpressie van een fluorescerende tracer met behulp van een lentivirale overexpressiecassette (stap 3 en 4), gevolgd door celvoorbereiding om een zo klein mogelijk dood volume tijdens het injecteren te garanderen. Dit maakt de injectie van hoge celaantallen in zowel de doC- als de retro-orbitale ruimte mogelijk (stap 7 en 8). Vervolgens voeren we semi-high-throughput data-acquisitie uit met behulp van stereofluorescerende microscopie en confocale microscopie met een hogere vergroting voor kwalitatieve analyse van de verspreiding van kankercellen in het hele lichaam (Figuur 2 en stap 9 en 10). Er moet zorg worden besteed aan het verkrijgen van gegevens, om de reproduceerbaarheid voor zowel stereo als confocale microscopische beeldvorming te garanderen, de algemene instellingen en standaardisatie worden afgebakend (stappen 11 en 12). Gegevensanalyse wordt besproken (met behulp van imageJ/Fiji) 16, samen met standaardisatie met behulp van ImageJ-macro's (stap 13).
In stap 3 noemen we de transiënte labeling van (kanker)cellen om een snelle pre-screening uit te voeren om het tumorigene potentieel van een nieuwe kankercellijn te beoordelen. Een belangrijk voorbehoud is dat, hoewel gemakkelijk te gebruiken en lang levend, de voorbijgaande kleuring die hierin wordt beschreven, de mogelijkheid heeft om artefacten te vormen (er moet bijvoorbeeld voor worden gezorgd dat celfragmenten kunnen worden onderscheiden van hele cellen, zoals uitgebreid werd uitgevoerd door Fior en collega's 9). Onze ervaring is dat de vorming van deze artefacten direct verband houdt met de extreme stabiliteit van de vlek en de helderheid (zelfs na celdood), waarbij celfragmenten worden verspreid en opgenomen door immuuncellen, waarvan vervolgens ten onrechte kan worden geconcludeerd dat ze afkomstig zijn van actieve metastase.
Met behulp van deze modellen hebben we de ontwikkeling van primaire tumoren gesimuleerd door de getransplanteerde cellen fysiek op te sluiten in de retro-orbitale tussenruimte. Daaropvolgende grondige screening 1 dag na implantatie zorgt ervoor dat cellen die later in het experiment op een verre plaats worden gevonden, actief zijn gemetastaseerd (geïnvaseerd en verspreid, uiteindelijk om te extravaseren in de gemetastaseerde niche). Implantatie via de doC, de embryonale gemeenschappelijke kardinaalader, maakt een gemakkelijke en zeer reproduceerbare implantatie van grote hoeveelheden cellen mogelijk (met een overschot van 600 cellen wanneer ze goed geconcentreerd zijn), waardoor de primaire stadia van de metastatische cascade (intravasatie) effectief worden omzeild en we ons kunnen concentreren op de latere stadia van de metastatische cascade (adhesie, extravasatie en uitgroei). Hoewel ze krachtige hulpmiddelen zijn als ze op de juiste manier worden gebruikt, moeten beide modellen de eerste dag na de implantatie uitgebreid worden gecontroleerd om ervoor te zorgen dat er geen vals-positieve conclusies worden getrokken tijdens de latere stadia van het experiment.
In lijn met eerdere publicaties hebben we aangetoond dat conjunctivale melanoomlijnen gemakkelijk metastatische kolonies vormen na verspreiding door het bloedcirculatiesysteem van de zebravis14. Hier rapporteren we de uitbreiding van het implantatierepertoire met de retro-orbitale injectie als een orthotopisch model, en de daaropvolgende actieve metastase naar het caudale hematopoëtische weefsel van de cellijn CRMM2. Vervolgens rapporteren we de werkzaamheid van BRAF V600E-specifieke remmer Vemurafenib ook op de primaire vorm van conjunctivaal melanoom wanneer gemodelleerd in zebravislarven.
Met behulp van de bovengenoemde methoden is een bekwame onderzoeker in staat om meer dan honderden geënte larven per dag (ongeveer 200 per uur) van elk voorgesteld model te genereren. In een tijdsbestek van twee weken kan een geneesmiddel zowel worden getitreerd voor de maximaal getolereerde dosis als worden gescreend op het gevestigde xenotransplantaatmodel. Van begin tot eind kan het gebruik van een niet-getransduceerde cellijn tot het hebben van een geneesmiddelgevoeligheidsprofiel in het zebravismodel binnen een maand worden bereikt (aangezien de geïnjecteerde cellijn tumorageen is binnen het zebravismodel). In onze handen hebben slechts 20 larven per experiment en twee biologische herhalingen reproduceerbaar een robuuste remming van geneesmiddelen opgeleverd, wanneer twee individuele experimenten met elkaar in strijd zijn (of geen statistisch significante groeiremming opleveren), kan een derde biologische herhaling worden uitgevoerd.
Door middel van kleine aanpassingen hebben deze modellen ons in staat gesteld om deze implantatiestrategieën snel aan te passen voor onder andere glioblastoom (injectie van de achterste hersenholte), borstkanker (doC-injectie) en osteosarcoom (doC) 18,19,20,21. Deze modellen kunnen vervolgens worden gebruikt voor zowel fundamenteel onderzoek als preklinische screening van zowel enkelvoudige geneesmiddelen als combinatorische geneesmiddelstrategieën. Onlangs hebben we verschillende toedieningsregimes van geneesmiddelen en hun foto-activering beschreven met behulp van deze modellen 13.
Dankbetuigingen
Dit werk werd ondersteund door financiering van het onderzoeks- en innovatieprogramma Horizon 2020 van de Europese Unie in het kader van subsidieovereenkomst nr. 667787 (UM Cure 2020-project, www.umcure2020.org). De Chinese Scholarship Council wordt vriendelijk erkend voor een PhD-beurs aan J.Y.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 2.5mm box filament | Science producten | FB255B | voor het trekken van micro-injectienaalden met behulp van een Sutter P97 of P1000 |
| 3mL overdrachtpipetten | Merck | Z350796 | voor overdracht en selectie van zebravis embryo's |
| Agarose | Milipore | 2120 | 1,5% (w/v) in eierwater, 1,5 g in 100 mL DPBS, in de magnetron om op te lossen, voor het injecteren en stereofluorescentiebeeldvorming van zebravislarven |
| Capillairen: buitenkant boorsiliekaatglas | World precision instruments | BF100-78-10 | Boorsiliekaatglas capillairen gebruikt voor naaldvoorbereiding |
| DMSO | Sigma | D8418 | Vaak gebruikt als oplosmiddel bij medicamenteuze behandelingen, moet worden bewaard bij 2-8°C in het donker. |
| DPBS | Thermo Fischer Scientific | 14190144 | Dulbecco’s fosfaat gebufferde zoutoplossing, zonder Mg2+ en Ca2+ voor het wassen van de cellen, gebrek aan Ca2+ belemmert cel-cel adhesie via cadherines en voorkomt celaggregatie tijdens injectie |
| Eierwater | Instant ocean | SS15-10 | 0,6 mg/L eindconcentratie zee-zout in gedemineraliseerd water |
| GFP coderende lentivirale overdrachtsplasmide | Addgene | Plasmid #106172 | Gegenereerd in Snaar lab, verkrijgbaar bij Addgene |
| Hek293T | ATCC | CRL-3216 | Stabiel cellijn voor het genereren van lentivirale deeltjes, bevat SV40-T antigeen dat nodig is voor de generatie van lentivirale deeltjes |
| Leica sp8 confocal | Leica | Leica TCS SP8 | geautomatiseerde confocale microscoop met 405/488/514/635nm lasers |
| LipodD293 | Signagen | SL100668 | Zeer efficiënt HEK293t geoptimaliseerd transfectie reagens |
| Laagsmeltende agarose | Milipore | 2070 | 1% (w/v) in eierwater 1,5 g in 100 mL DPBS, in de magnetron om op te lossen, voor het inbedden van zebravislarven voor confocale beeldvorming |
| Micro loader tips | Fischer scientific | 10289651 | flexibele microloader tips |
| Micro manipulator | World precision instruments | M3301R | x/y/z handmatige micro manipulator voor micro-injectie |
| Naaldtrekker: P-97 of P-1000 | Sutter | P-97 | naaldtrekker gebruikt voor het genereren van gestandaardiseerde micro-implantatienaalden |
| Nr.5 horlogemakers pincet | VWR | HAMMHSC818-11 | fijn horlogemakers pincet gebruikt voor het breken van rugnaalden |
| Picopump | World precision instruments | SYS-PV820 | pulscontroller die druk levert voor micro-injectie |
| pMD2.G | Addgene | plasmide #12259 | Geschonken door Didier Trono, lentivirale virulentieplasmide van de tweede generatie |
| psPAX2 | Addgene | plasmide #12260 | Geschonken door Didier Trono, lentivirale verpakkingsplasmide van de tweede generatie |
| PVP40 | Sigma-Aldrich | PVP40 | Polyvinylpyrrolidon gemiddeld mol gewicht 40.000) PVP40 2% (w/v) in DPBS, 1 g PVP40 in 50 mL DPBS. Vortex en incubeer bij 37°C om oplossing te vergemakkelijken. Bewaren bij kamertemperatuur. |
| tdTomato coderende lentivirale overdrachtsplasmide | Addgene | Plasmid #106173 | Gegenereerd in Snaar lab, verkrijgbaar bij Addgene |
| overgedragen licht stereomicroscoop | Leica | leica M50 met (MDG33 basis) | leica overgedragen licht microscoop met spiegel verstelbare verlichting. |
| Tricaine | Sigma-Aldrich | E10521 | Ethyl 3-aminobenzoaat methaansulfonaat of MS-222 |
| TryplE | Thermo Fischer Scientific | 12604-01 | Synthetische trypsine vervanger, minder beschadigend voor de cellen en maakt de zachte dispersie van sterk hechtende cellen mogelijk. (Thermo- |
| willco schaal | WillCo wells | GWST-5040 | 50mm glazen bodem schalen, staan het inbedden van maximaal 20 zebravislarven toe, waardoor het mogelijk is om meerdere omstandigheden in één schaal te beeldvormen vanwege het grote optische glasoppervlak |
Referenties
- Yang, J., Manson, D. K., Marr, B. P., Carvajal, R. D. Treatment of uveal melanoma: where are we now. Therapeutic Advances in Medical Oncology. 10, (2018).
- Wong, J. R., Nanji, A. A., Galor, A., Karp, C. L. Management of conjunctival malignant melanoma: A review and update. Expert Review of Ophthalmology. 9, 185-204 (2014).
- Nguyen, D. X., Bos, P. D., Massagué, J. Metastasis: from dissemination to organ-specific colonization. Nature Reviews Cancer. 9, 274-284 (2009).
- White, R. M., et al. Transparent Adult Zebrafish as a Tool for In Vivo Transplantation Analysis. Cell Stem Cell. 2, 183-189 (2008).
- Zon, L. I., Peterson, R. T. In vivo drug discovery in the zebrafish. Nature Reviews Drug Discovery. 4, 35-44 (2005).
- Howe, K., et al. The zebrafish reference genome sequence and its relationship to the human genome. Nature. 496, 498-503 (2013).
- Palmblad, M., et al. Parallel deep transcriptome and proteome analysis of zebrafish larvae. BMC Research Notes. 6, 428(2013).
- Yan, C., et al. Visualizing Engrafted Human Cancer and Therapy Responses in Immunodeficient Zebrafish. Cell. 177, 1903-1914 (2019).
- Fior, R., et al. Single-cell functional and chemosensitive profiling of combinatorial colorectal therapy in zebrafish xenografts. Proceedings of the National Academy of Sciences of the United States of America. 114, 8234-8243 (2017).
- Campbell, P. D., Chao, J. A., Singer, R. H., Marlow, F. L. Dynamic visualization of transcription and RNA subcellular localization in zebrafish. Development. 142, Cambridge. 1368-1374 (2015).
- Campeau, E., et al. A Versatile Viral System for Expression and Depletion of Proteins in Mammalian Cells. PLoS One. 4, 6529(2009).
- vander Helm, D., et al. Mesenchymal stromal cells prevent progression of liver fibrosis in a novel zebrafish embryo model. Scientific Reports. 8, 16005(2018).
- Chen, Q., et al. TLD1433 photosensitizer inhibits conjunctival melanoma cells in zebrafish ectopic and orthotopic tumour models. Cancers. 12, (2020).
- Pontes, K. C. deS., et al. Evaluation of ( fli:GFP ) Casper Zebrafish Embryos as a Model for Human Conjunctival Melanoma. Investigative Opthalmology & Visual Science. 58, 6065(2017).
- Liverani, C., et al. Innovative approaches to establish and characterize primary cultures: an ex vivo 3D system and the zebrafish model. Biology Open. 6, 133-140 (2017).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nature Methods. 9, 676-682 (2012).
- White, R. M., et al. Transparent Adult Zebrafish as a Tool for In Vivo Transplantation Analysis. Cell Stem Cell. 2, 183-189 (2008).
- Mercatali, L., et al. Development of a patient-derived xenograft (PDX) of breast cancer bone metastasis in a Zebrafish model. International Journal of Molecular Sciences. 17, (2016).
- Tulotta, C., et al. Imaging cancer angiogenesis and metastasis in a zebrafish embryo model. Advances in Experimental Medicine and Biology. 916, Springer New York LLC. 239-263 (2016).
- Paauwe, M., et al. Endoglin expression on cancer-associated fibroblasts regulates invasion and stimulates colorectal cancer metastasis. Clinical Cancer Research. 24, 6331-6344 (2018).
- Cao, J., et al. Overexpression of EZH2 in conjunctival melanoma offers a new therapeutic target. Journal of Pathology. 245, (2018).
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar