Synthetisch cystic fibrosis sputum medium (SCFM2) kan worden gebruikt in combinatie met zowel confocale laserscanmicroscopie als fluorescentie-geactiveerde celsortering om bacteriële aggregaten met hoge resolutie te observeren. Dit artikel beschrijft methoden om geaggregeerde populaties te beoordelen tijdens antimicrobiële behandeling als een platform voor toekomstige studies.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Tools voor de real-time beoordeling van een Pseudomonas aeruginosa-infectiemodel
In dit artikel
Samenvatting
Samenvatting
Pseudomonas aeruginosa (Pa) is een van de meest voorkomende opportunistische pathogenen geassocieerd met cystische fibrose (CF). Zodra Pa-kolonisatie is vastgesteld, vormt een groot deel van de infecterende bacteriën biofilms in het sputum van de luchtwegen. Van pa-biofilms geïsoleerd uit CF-sputum is aangetoond dat ze groeien in kleine, dichte aggregaten van ~ 10-1.000 cellen die ruimtelijk georganiseerd zijn en klinisch relevante fenotypen vertonen, zoals antimicrobiële tolerantie. Een van de grootste uitdagingen bij het bestuderen van hoe Pa-aggregaten reageren op de veranderende sputumomgeving is het gebrek aan nutritioneel relevante en robuuste systemen die de vorming van aggregaten bevorderen. Met behulp van een synthetisch CF-sputummedium (SCFM2) kan de levensgeschiedenis van Pa-aggregaten worden waargenomen met behulp van confocale laserscanmicroscopie (CLSM) en beeldanalyse met de resolutie van een enkele cel. Dit in vitro systeem maakt de observatie van duizenden aggregaten van verschillende grootte in real time, drie dimensies en op micronschaal mogelijk. Op individueel en populatieniveau vergemakkelijkt het vermogen om aggregaten te groeperen op fenotype en positie de observatie van aggregaten in verschillende ontwikkelingsstadia en hun reactie op veranderingen in de micro-omgeving, zoals antibioticabehandeling, die met precisie moeten worden gedifferentieerd.
Inleiding
Pseudomonas aeruginosa (Pa) is een opportunistische ziekteverwekker die chronische infecties vaststelt bij immuungecompromitteerde personen. Voor mensen met de genetische ziekte cystic fibrosis (CF), kunnen deze infecties de loop van een leven duren. CF veroorzaakt de opbouw van een stroperig, voedingsrijk sputum in de luchtwegen, dat in de loop van de tijd wordt gekoloniseerd door een verscheidenheid aan microbiële pathogenen. Pa is een van de meest voorkomende CF-pathogenen, koloniseert de luchtwegen in de vroege kinderjaren en stelt moeilijk te behandelen infecties vast1. Pa blijft een belangrijk klinisch probleem en wordt beschouwd als een belangrijke doodsoorzaak bij mensen met CF, ondanks verbeterde therapieregimes in de afgelopen jaren2,3. Dit persistentiefenotype en toenemende antibioticatolerantie hebben Pa een plaats opgeleverd in een groep pathogenen die door zowel de Centers for Disease Control (CDC) als de Wereldgezondheidsorganisatie (WHO) zijn geïdentificeerd als onderzoeksprioriteiten voor de ontwikkeling van nieuwe therapeutische strategieën - de ESKAPE-pathogenen4.
Net als andere ESKAPE-pathogenen komt verworven antibioticaresistentie vaak voor bij Pa, maar er zijn ook veel intrinsieke eigenschappen die bijdragen aan de antimicrobiële tolerantie van Pa. Onder deze is het vermogen van Pa om aggregaten-zeer dichte clusters van ~ 10-1.000 cellen te vormen, die kunnen worden waargenomen bij meerdere infecties, waaronder CF-patiënt sputum5,6. Vergelijkbaar met Pa bestudeerd in andere biofilmsystemen, vertonen Pa-aggregaten klinisch relevante fenotypen zoals verhoogde resistentie tegen antibiotica en activering van cel-celcommunicatie (quorum sensing (QS)). Van aggregaten van Pa is bijvoorbeeld aangetoond dat ze QS-gereguleerd gedrag gebruiken om andere microben te bestrijden en antimicrobiële behandelingen zoals de productie van pyocyanine te verdragen7. Het vermogen om dergelijk gedrag te bestuderen biedt een opwindend inzicht in bacteriële ecosystemen in een omgeving die vergelijkbaar is met die waarin ze in het menselijk lichaam bestaan.
Een van de grootste uitdagingen bij het bestuderen van hoe Pa-aggregaten reageren op de veranderende sputumomgeving is het gebrek aan nutritioneel relevante en robuuste systemen die de vorming van aggregaten bevorderen. Veel van wat bekend is over Pa is ontdekt met behulp van in vitro systemen waarin cellen planktonisch groeien of in een karakteristieke aan het oppervlak gehechte, "paddenstoel" -architectuur die niet in vivo is waargenomen 8. Hoewel klassieke biofilmgroeimodellen, zoals stromingscellen of vaste agar, uitgebreide en waardevolle kennis hebben opgeleverd over bacterieel gedrag en mechanismen van antibioticatolerantie, vertalen deze bevindingen zich niet altijd in vivo. Veel in vitro modellen hebben een beperkt vermogen om de groeiomgeving van de menselijke infectieplaats na te bootsen, waardoor kostbare in vivo studies nodig zijn. Op hun beurt missen veel in vivo modellen de flexibiliteit en resolutie die in vitro technieken bieden.
Synthetische cystic fibrosis sputum (SCFM2) is ontworpen om een omgeving voor Pa-groei te bieden die vergelijkbaar is met die ervaren tijdens chronische infectie in de CF-long. SCFM2 omvat voedingsbronnen geïdentificeerd in slijmolijmoste CF sputa naast mucine, lipiden en DNA. Pa-groei in SCFM2 vereist een bijna identiek gen dat is ingesteld als dat nodig is voor groei in feitelijk sputum en ondersteunt natuurlijke Pa-aggregaatvorming 9,10. Na inenting vormen planktonische cellen aggregaten die in omvang toenemen door expansie. Individuele cellen (aangeduid als migranten) worden vrijgegeven uit aggregaten, migreren naar niet-gecoloniseerde gebieden en vormen nieuwe aggregaten10. Deze levensgeschiedenis kan worden waargenomen met behulp van CLSM en beeldanalyse met de resolutie van een enkele cel. Aggregaten van Pa gevormd in SCFM2 zijn van vergelijkbare grootte als die waargenomen in de CF-long10. Dit model maakt het mogelijk om meerdere aggregaten van verschillende grootte in real-time en in drie dimensies op micronschaal te observeren. Time-lapse microscopie maakt het mogelijk om duizenden (~ 50.000) aggregaten in één experiment te volgen. Het gebruik van beeldanalysesoftware maakt het mogelijk om geaggregeerde fenotypen uit micrografieën te kwantificeren, inclusief geaggregeerd volume, oppervlakte en positie in drie dimensies tot op 0,1 μm, zowel op individueel geaggregeerd als populatieniveau. Het vermogen om aggregaten te groeperen op fenotype en positie maakt de differentiatie van aggregaten in verschillende ontwikkelingsstadia met precisie mogelijk, evenals hun reactie op een veranderende micro-omgeving6,11.
De toepassing van SCFM2 om Pa-aggregaten te bestuderen in lage volumes en high-throughput assays maken het een flexibel, kosteneffectief model. Als gedefinieerd medium biedt SCFM2 uniformiteit en reproduceerbaarheid op meerdere platforms, waardoor een nutritioneel en fysiek relevante methode wordt geboden om Pa-aggregaten in vitro te bestuderen 9. Toepassingen omvatten het gebruik ervan in combinatie met CLSM om ruimtelijke organisatie en antibioticatolerantie bij hoge resolutie te observeren (zoals beschreven in dit methodendocument). De mogelijkheid om experimenten uit te voeren die real-time gegevens op micronschaal opleveren, maakt de studie van intra-species en inter-species interacties mogelijk, omdat ze in vivokunnen voorkomen. SCFM2 is bijvoorbeeld eerder gebruikt om de ruimtelijke dynamiek van cel-celcommunicatie in geaggregeerde populaties te bestuderen via een netwerk van systemen die door Pa worden gebruikt om meerdere genen te reguleren die bijdragen aan virulentie en pathogenese6.
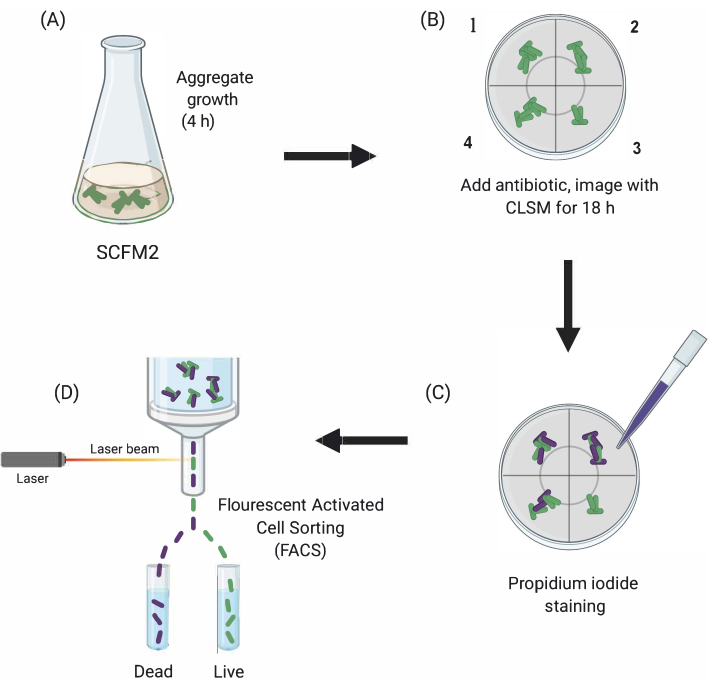
Figuur 1: Grafische weergave van de belangrijkste experimentele stappen. (A) SCFM2 wordt ingeënt met Pa-cellen en mag aggregaten vormen in een kweekschaal met glazen bodem. (B) Aggregaten worden overgebracht naar de confocale microscoop en antibioticum wordt toegevoegd. Afgebeeld zijn drie technische replicaties (kamers 1-3) en een controleput (4) van geënt SCFM2 zonder antibioticabehandeling. Aggregaten worden afgebeeld met behulp van CLSM in de loop van 18 h. (C) Na de eerste 18-h beeldvorming worden aggregaten behandeld met propidiumjodide om dode cellen te visualiseren en afgebeeld met CLSM (D) Aggregaten met het gewenste fenotype worden gescheiden van SCFM2 met behulp van FACS. Afkortingen: SCFM2 = synthetische cystic fibrosis sputum medium; Pa = Pseudomonas aeruginosa; CLSM = confocale laser scanning microscopie; FACS = fluorescentie-geactiveerde celsortering. Klik hier om een grotere versie van deze figuur te bekijken.
Hier wordt het nut van SCFM2 aangetoond om de impact van antibioticabehandeling op Pa-aggregaten in realtime te bestuderen, gevolgd door het gebruik van een celsorteerbenadering om populaties van aggregaten met verschillende fenotypen te isoleren voor downstream-analyse (figuur 1).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
1. Bereid synthetisch cystisch fibrosemedium (SCFM2)
OPMERKING: De bereiding van SCFM2 bestaat uit drie hoofdfasen die hieronder worden beschreven(figuur 2). Voor volledige details en referenties, zie9,10,12.

Figuur 2: Bereiding en inenting van SCFM2-medium. (A) Gebufferde base wordt bereid met behulp van zouten en aminozuren vermeld in tabel 1 en tabel 2. Gebufferde basis kan maximaal 30 dagen bij 4 °C worden bewaard, maar moet worden beschermd tegen blootstelling aan licht. (B) Mucine en DNA worden toegevoegd aan een aliquot van gebufferde base en 's nachts opgelost in oplossing bij 4 °C. (C) Lipide en extra voorraden worden toegevoegd aan de nachtoplossing en geïncubeerd bij 37 °C met agitatie bij 250 tpm gedurende 20 minuten. SFCM2 wordt vervolgens ingeënt met gewassen, logfasecellen bij een OD600 = 0,05. Afkortingen: SCFM2 = synthetische cystic fibrosis sputum medium. Klik hier om een grotere versie van deze figuur te bekijken.
- Sterilisatie van varkensmucine
- Bereid steriele mucine in een eindconcentratie van 5 mg/ml in SCFM2. Weeg bijvoorbeeld voor een volume van 5 ml SCFM2 25 mg type II-mucine in een steriele petrischaal en plaats deze gedurende 4 uur in een ultraviolette (UV) sterilisator, waarbij u elk uur voorzichtig roert.
- Breng na 4 uur de uv-behandelde mucine onder steriele omstandigheden over in geautoclaveerde buizen van 1,7 ml en bewaar bij -20 °C.
- Om volledige sterilisatie te bevestigen, lost u een monster mucine op in een steriele vloeistof, zoals water of Luria Bertani (LB) bouillon, en observeert u onder een microscoop.
OPMERKING: Gesteriliseerde mucine kan tot 6 maanden bij -20 °C worden bewaard.
- Bereiding van gebufferde basis
- Bereid zout- en aminozuurvoorraadoplossingen door de juiste hoeveelheden in gewicht toe te voegen aan gedeoniseerd water zoals vermeld in tabel 1. Filter-steriliseer alle stamoplossingen met behulp van een filter van 0,22 μm, wikkel ze in folie om te beschermen tegen lichtdegradatie en bewaar ze maximaal een maand bij 4 °C.
- Bereid gebufferde base door 190 ml gedeioniseerd water te combineren met aminozuur- en zoutvoorraadoplossingen per in tabel 1vermelde volumes. Stel de oplossing in op pH 6,8 en verhoog tot een eindvolume van 250 ml. Filter-steriliseer met behulp van een filter van 0,22 μm en bewaar tot 30 dagen bij 4 °C.
- Voeg op de avond voor het experiment de gewenste hoeveelheid gebufferde base toe in een glazen kweekkolf en voeg mucine (5 mg / ml zoals beschreven in stap 1.1.1) en gezuiverd zalmsperma-DNA (0,6 mg / ml) toe. Roer voorzichtig, wikkel in folie en laat een nacht bij 4 °C staan om mucine en DNA in oplossing te laten oplossen.
OPMERKING: Dna-aliquots van zalmsperma moeten op ijs worden ontdooid, vortexed en toegevoegd aan gebufferde base en mucine. Tryptofaan, asparagine en tyrosine stock oplossingen moeten worden bereid in oplossingen van NaOH (zie tabel 1 voor concentraties) in plaats van gedeïoniseerd water. Houd de gebufferde basis en alle voorraadoplossingen in folie gewikkeld om te beschermen tegen blootstelling aan licht. De meeste aandelen zullen tot een maand stabiel zijn. Voorraden die verkleuren, mogen niet worden gebruikt en moeten vóór gebruik worden vervangen.
- Toevoeging van aanvullende voorraden
- Voeg op de dag van het experiment de in tabel 2 vermelde voorraden toe aan de gebufferde base die mucine en DNA bevat.
OPMERKING: Bereid een verse FeSO4-oplossing op de dag van het experiment, maar alle andere voorraden kunnen van tevoren worden gemaakt en gedurende 30 dagen worden bewaard bij 4 °C. 1,2-Dioleoyl-sn-glycero-3-fosfocholine (DOPC) bevat chloroform. Wees voorzichtig en gebruik deze niet in de buurt van open vuur. Na toevoeging van DOPC, incubeer SCFM2 bij 37 °C met schudden (250 rpm) gedurende ten minste 20 min (gedurende 5 ml cultuur). Deze incubatietijd zorgt ervoor dat het chloroform in de DOPC kan verdampen. De kolf mag niet luchtdicht zijn; dek in plaats daarvan de opening van de kolf losjes af met folie.
- Voeg op de dag van het experiment de in tabel 2 vermelde voorraden toe aan de gebufferde base die mucine en DNA bevat.
2. Real-time beoordeling van antimicrobiële tolerantie in bacteriële aggregaten
- Bereid overnachtingsculturen voor
- Ent op de avond voor het experiment 5 ml LB-bouillon met verschillende kolonies Pa PAO1-pMRP9-113 uit een LB-agarplaat met antibioticum (carbenicilline 300 μg / ml). Groei 's nachts bij 37 °C met roeren bij 250 tpm.
OPMERKING: Kweek 's nachts culturen met de toevoeging van antibiotica die nodig zijn voor de selectie van vereiste plasmiden (hier, het groene fluorescerende eiwit (GFP) expressie plasmide, pMRP9-1). Merk op dat Pa-cellen moeten worden gewassen voordat SCFM2 wordt ingeënt. LB kan worden vervangen door andere rijke laboratoriummedia voor nachtculturen. Alle bacteriële isolaten moeten worden behandeld met behulp van de juiste BSL-2-richtlijnen in dit protocol.
- Ent op de avond voor het experiment 5 ml LB-bouillon met verschillende kolonies Pa PAO1-pMRP9-113 uit een LB-agarplaat met antibioticum (carbenicilline 300 μg / ml). Groei 's nachts bij 37 °C met roeren bij 250 tpm.
- Ent SCFM2
- Op de dag van het experiment verdunnen de nachtculturen van Pa 1:10 (cultuur: vloeibare media) door 500 μL in te enten in 5 ml verse LB-bouillon. Kweek cellen tot logfase (60-90 min) bij 37 °C met roeren bij 250 rpm.
- Centrifuge log fase culturen bij 10.000 × g gedurende 5 min. Was de cellen door het supernatant te verwijderen en opnieuw te suspenderen in 3 ml filtergesteriliseerde fosfaat-gebufferde zoutoplossing (PBS, pH 7,0). Herhaal dit tweemaal en resuspensatie van de pellet in een eindvolume van 1 ml PBS.
- Meet de absorptie van de gewassen cellen met behulp van een spectrofotometer bij 600 nm (OD600) en bereken het kweekvolume dat nodig is voor een start OD600 van 0,05 in 5 ml SCFM2. Ent Pa in de SCFM2 en vortex zachtjes om cellen overal te verdelen. Pipetteer 1 ml van de geënte SCFM2 in elke kamer van een 4-put, glazen bodem, optische schotel en incubeer gedurende 4 uur statisch bij 37 °C.
OPMERKING: De verdubbelingstijd van Pa-culturen is afhankelijk van de spanning en de beschikbaarheid van zuurstof. In SCFM2, onder de hier beschreven omstandigheden, is de verdubbelingstijd van Pa ~ 1,4 h10.
3. Visualiseren van aggregaten tijdens antibioticabehandeling met confocale laser scanning microscopie (CLSM)
OPMERKING: In deze sectie wordt het gebruik van confocale laserscanmicroscoop en beeldopnamesoftware beschreven voor de beeldvorming van Pa-aggregaten in SCFM2. Het doel is om de resterende (tolerante) bacteriële biomassa na behandeling met antibiotica te observeren en te karakteriseren. De beschreven stappen kunnen met succes worden uitgevoerd op andere confocale microscopen, hoewel de bedieningshandleiding van het instrument moet worden vermeld voor specifieke richtlijnen.
- Beeld Pa-culturen met behulp van een verwarmde kamer of een verwarmde microplaat die op het microscooppodium is aangebracht om een omgevingstemperatuur van 37 °C te handhaven. Start de incubatiemodule ten minste 2 uur voor het begin van het experiment om alle apparaten in staat te stellen de gewenste temperatuur te bereiken en verdere uitzetting en beweging tijdens het verzamelen van gegevens te verminderen.
- Breng na 4 uur SCFM2-culturen met Pa-cellen over naar het verwarmde microscoopstadium. Wijs 3 van de 4 putten aan als technische replicaties voor antibioticabehandeling en beschouw de4e put als een controle zonder behandeling, die alleen Pa-cellen in SCFM2 bevat, zonder antibioticum. Identificeer aggregaten met behulp van brightfield-microscopie op het tabblad Lokaliseren voordat fluorescerende verslaggevers worden opgewonden. Definieer een gebied voor beeldvorming binnen elke put en sla de positie (x-y-z-coördinaten) op met behulp van de module Posities in de beeldvormingssoftware.
- Gebruik een 63x olie-onderdompelingsobjector om Pa-culturen te visualiseren die het GFP-expressieplasmide pMRP9-1 bevatten in SCFM2 met een excitatiegolflengte van 488 nm en een emissiegolflengte van 509 nm. Maak afbeeldingen met de z-stack-optie in de acquisitiemodule met intervallen van 1 μm (totaal 60 segmenten). Gebruik de line-averaging module om achtergrondfluorescentie in het GFP-kanaal te verminderen binnen het totale volume van de 60 μm z-stack beelden (1.093,5 mm3). Maak controlebeelden van niet-geënte SCFM2 door identieke instellingen te gebruiken om de achtergrondfluorescentie voor beeldanalyse te bepalen.
OPMERKING: Afbeeldingen worden verkregen door 512 pixels x 512 pixels (0,26 μm x 0,26 μm pixels) 8-bits z-stackafbeeldingen te produceren die zich op 60 μm van de basis van de coverslip bevinden. - Gebruik de tijdreeksoptie in de beeldbewerkingssoftware om 60 segmenten op elke positie (put) vast te leggen met intervallen van 15 minuten over een periode van 18 uur. Gebruik de vaste focusstrategie in de software om een brandpuntsvlak op te slaan voor elke positie, waarnaar op elk tijdstip tijdens het experiment wordt teruggekeerd.
- Na een totale incubatietijd van 4,5 uur, stelt u elke positie in beeld met behulp van de bovenstaande instellingen om de totale biomassa binnen elk van de vier putten te bepalen vóór de toevoeging van antibiotica.
- Voeg na 6 uur totale incubatie antibioticum met 2x onder de minimale remmende concentratie (MIC) toe aan elke replicatie. Pipetteer direct en voorzichtig in het midden van de put, net onder de lucht-vloeistof interfase. Bewaar alle culturen in de verwarmde confocale kamer.
OPMERKING: Hier werd koltinesulfaat in een concentratie van 140 μg / ml gebruikt. - Begin met beeldvorming na de behandeling met antibiotica door te klikken op de optie Experiment starten in het beeldvormingsprogramma.
OPMERKING: De gebruikte antibioticaconcentratie is afhankelijk van het antibioticum, het Pa-isolaat, en of de gebruiker de dodende of tolerantie-effecten wil onderzoeken. Dit experiment maakt gebruik van een enkele dosis. Extra doses kunnen indien nodig worden toegevoegd zonder culturen te verstoren.
4. Propidiumjodidekleuring van Pa-aggregaten
OPMERKING: Propidiumjodide (PI) wordt vaak gebruikt als een kleuringsreagens om niet-levensvatbare (dode) bacteriële cellen in cultuur te identificeren. Hier wordt het gebruikt om aggregaten te identificeren die gevoelig zijn voor antibioticabehandeling die wordt toegepast in sectie 3. In dit protocol wordt de expressie en detectie van GFP in Pa-cellen gebruikt als de belangrijkste proxy voor de levensvatbaarheid van cellen. Deze laatste stap maakt het mogelijk om confocale beeldvorming opnieuw te gebruiken om de ruimtelijke positionering van levende / dode aggregaten ten opzichte van elkaar te identificeren. Bovendien worden aggregaten geïdentificeerd als levend/dood voor verdere stroomafwaartse celsortering in sectie 5.
- Voeg na 18 uur PI toe aan elke put van de optische bodemschotel met vier kamers die SCFM2-culturen bevat. Volg de instructies van de fabrikant voor het volume van PI en incubatietijd(bijv.~ 2 μL per ml cultuur, ~ 20-30 min).
5. Levende cellen isoleren van aggregaten met behulp van een FACS-benadering
OPMERKING: FACS biedt een krachtig platform om groepen cellen te sorteren en te isoleren volgens een fluorescerend gelabeld fenotype. Hier wordt FACS gebruikt om levende (antibioticatolerante) aggregaten te isoleren uit niet-levensvatbare aggregaten.
- Na het kleuren met propidiumjodide, verwijdert u de culturen uit de incubatie en brengt u over naar een FACS-instrument in een geïsoleerde container om 37 °C te behouden.
- Voer 1 ml aliquots SCFM2 uit met Pa-aggregaten met het laagste debiet.
OPMERKING: Elke aliquot bevat ~15.000 aggregaten. - Om GFP te detecteren, verlicht u de cellen met een laser van 488 nm en registreert u de fluorescerende signaalhoogte bij 530/30 nm. Visualiseer de PI-kleuring door excitatie met een 561 nm laser en noteer de fluorescerende signaalhoogte bij 610/20 nm. Sorteer met een mondstuk van 70 u.
OPMERKING: Gesorteerde aggregaten kunnen op meerdere manieren worden samengevoegd, afhankelijk van de toepassing van de gebruiker. In dit geval werd FACS gebruikt om levensvatbare Pa-aggregaten te sorteren voor downstream RNA-sequencing. Alternatieve toepassingen worden hieronder besproken.
6. Beeldanalyse
OPMERKING: Time-lapse microscopie genereert grote hoeveelheden gegevens. Een 18-uurs experiment voor de observatie van Pa-aggregaten in SCFM2 identificeert ~ 50.000 aggregaten in de loop van de tijd, die het potentieel hebben om te worden gekarakteriseerd voor volume en ruimtelijke positionering. Gebruik een beeldanalysesoftware om de geaggregeerde dynamiek in SCFM2 te kwantificeren:
- Voor geaggregeerde studies in SCFM2, kwantificeer de achtergrond GFP-fluorescentie door een histogram van tellingen in het GFP-kanaal te maken dat wordt geproduceerd voor niet-geënte SCFM2 en SCFM2 geënt met Pa-stam PAO1 met pMRP9-1. Om ervoor te zorgen dat gedetecteerde GFP-voxels correleren met Pa-biomassa, definieert u een GFP+ voxel als ≥1,5x de GFP-achtergrondtellingswaarde.
OPMERKING: De achtergrondfluorescentie wordt gedefinieerd als de hoogste voxelwaarde van drie willekeurig gekozen posities, gemiddeld. Achtergrondtellingen worden, als standaardmaat, afgetrokken van alle pixels in experimentele afbeeldingen door de beeldanalysesoftware. - Na het aftrekken op de achtergrond in de module Overtreffen, produceert u isooppervlakken voor alle resterende voxels.
- Als u afzonderlijke aggregaten wilt detecteren, schakelt u de optie Objecten splitsen in en definieert u aggregaten als objecten met volumes van ≥5 μm3. Gebruik de Vantage-module in de beeldanalysesoftware om het volume, x-y-z en de som van GFP-voxels voor elk afzonderlijk object te berekenen. Exporteer deze gegevens naar een extern statistisch platform.
OPMERKING: Sommige beeldanalysesoftware staat de export van meerdere kwantitatieve fentoypes tegelijk toe, waardoor correlaties kunnen worden berekend. - Filter gegevens die uit de Vantage-module worden geëxporteerd op grootte om ervoor te zorgen dat er geen objecten van <0,5 μm3 (gedispergeerde biomassa) overblijven. Bereken voor elk afzonderlijk object in de afbeelding de afstand tot zichzelf ten opzichte van andere objecten (aggregaten) met behulp van de Vantage-module van de beeldanalysesoftware of handmatig met de volgende vergelijking.
d = sqrt((x2− x1)2 + (y2− y1)2 + (z2− z1)2) (1) - Gebruik SOM- en GEMIDDELDE-berekeningen om de totale biomassa en het gemiddelde totale volume te vinden. U kunt ook gegevens exporteren naar andere statistische platforms of scripts, bijvoorbeeldde verdeling van aggregaten over biomassa zoals besproken in de representatieve resultaten (script niet gepubliceerd in samenwerking met het Whiteley-laboratorium, Georgia Institute of Technology).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Dit werk beschrijft methoden om Pa-aggregaten te observeren met een hoge resolutie en in een omgeving die vergelijkbaar is met die van chronische infectie van de CF-long9,10,12. SCFM2 biedt een in vitro systeem dat de natuurlijke aggregatie van Pa-cellen bevordert in groottes die vergelijkbaar zijn met die waargenomen tijdens de werkelijke infectie10. Het aanpassingsvermogen va...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Dit werk heeft methodologieën geïntroduceerd die kunnen worden gecombineerd om bacteriële geaggregeerde populaties te bestuderen in de aan- en afwezigheid van antibioticabehandeling. Clsm met hoge resolutie maakt de visualisatie mogelijk van veranderingen in geaggregeerde biomassa en de structurele oriëntatie van aggregaten in realtime bij blootstelling aan antibiotica. Bovendien kunnen fysieke en structurele kenmerken van de biomassa die overblijven na behandeling met antibiotica worden gekwantificeerd, met als doel dez...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben geen belangenverstrengeling.
Dankbetuigingen
S.E.D wordt ondersteund door start-upfondsen van de afdeling Moleculaire Geneeskunde, de Universiteit van Zuid-Florida, evenals een CFF-onderzoeksbeurs (DARCH19G0), de N.I.H (5R21AI147654 - 02 (PI, Chen)) en het USF Institute on Microbiomes. We bedanken het Whiteley-lab voor de voortdurende samenwerking met betrekking tot datasets met betrekking tot dit manuscript. Wij danken Dr. Charles Szekeres voor het faciliteren van FACS sortering. Figuren werden gemaakt door A.D.G en S.E.D met behulp van Biorender.com.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Aminozuren | |||
| Alanine | Acros Organics | 56-41-7 | |
| Arginine HCl | MP | 1119-34-2 | |
| Asparagine | Acros Organics | 56-84-8 | Bereid in 0,5 M NaOH |
| Cystine HCl | Alfa Aesar | L06328 | |
| Glutamic acid HCl | Acros Organics | 138-15-8 | |
| Glycine | Acros Organics | 56-40-6 | |
| Histidine HCl H2O | Alfa Aesar | A17627 | |
| Isoleucine | Acros Organics | 73-32-5 | |
| Leucine | Alfa Aesar | A12311 | |
| Lysine HCl | Alfa Aesar | J62099 | |
| Methionine | Acros Organics | 63-68-3 | |
| Ornithine HCl | Alfa Aesar | A12111 | |
| Phenylalanine | Acros Organics | 63-91-2 | |
| Proline | Alfa Aesar | A10199 | |
| Serine | Alfa Aesar | A11179 | |
| Threonine | Acros Organics | 72-19-5 | |
| Tryptophan | Acros Organics | 73-22-3 | Bereid in 0,2 M NaOH |
| Tyrosine | Alfa Aesar | A11141 | Bereid in 1,0 M NaOH |
| Valine | Acros Organics | 72-18-4 | |
| Antibioticum | |||
| Carbenicillin | Alfa Aesar | J6194903 | |
| Dag-voorraden | |||
| CaCl2 * 2H2O | Fisher Chemical | C79-500 | |
| Dextrose (D-glucose) | Fisher Chemical | 50-99-7 | |
| 1,2-dioleoyl-sn-glycero-3-fosfocholine (DOPC) | Fisher (Avanti Polar Lipids) | 4235-95-4 | Schud 15-20 min bij 37 °C om chloroform te verdampen |
| FeSO4 * 7H2O | Acros Organics | 7782-63-0 | Deze voorraad is gelijk aan 1 mg/mL, MOET vers worden gemaakt |
| L-melkzuur | Alfa Aesar | L13242 | pH voorraad tot 7 met NaOH |
| MgCl2 * 6H2O | Acros Organics | 7791-18-6 | |
| N-acetylglucosamine | TCI | A0092 | |
| Bereid vaste stoffen | |||
| Porcine mucine | Sigma | M1778-100G | UV-steriliseren |
| Salmon sperm DNA | Invitrogen | 15632-011 | |
| Kleurstof | |||
| Propidiumjodide | Alfa Aesar | J66764MC | |
| Zouten | |||
| K2SO4 | Alfa Aesar | A13975 | |
| KCl | Alfa Aesar | J64189 | Voeg het vaste materiaal direct toe aan de gebufferde basis |
| KNO3 | Acros Organics | 7757-79-1 | |
| MOPS | Alfa Aesar | A12914 | Voeg het vaste materiaal direct toe aan de gebufferde basis |
| NaCl | Fisher Chemical | S271-500 | Voeg het vaste materiaal direct toe aan de gebufferde basis |
| Na2HPO4 | RPI | S23100-500.0 | |
| NaH2PO4 | RPI | S23120-500.0 | |
| NH4Cl | Acros Organics | 12125-02-9 | Voeg het vaste materiaal direct toe aan de gebufferde basis |
| Consumables | |||
| Conische buisjes (15 mL) | Olympus plastics | 28-101 | |
| Conische buisjes (50 mL) | Olympus plastics | 28-106 | |
| Kweekbuisjes met luchtstromingsdop | Olympus plastics | 21-129 | |
| 35 mm vierkamer glasbodemschaal | CellVis | NC0600518 | |
| Luria Bertani (LB) bouillon | Genessee Scientific | 11-118 | |
| Fosfaat-gebufferde zoutoplossing (PBS) | Fisher Bioreagents | BP2944100 | |
| Pipettips (p200) | Olympus plastics | 23-150RL | |
| Pipettips (p1000) | Olympus plastics | 23-165RL | |
| Serologische pipetten (5 mL) | Olympus plastics | 12-102 | |
| Serologische pipetten (25 mL) | Olympus plastics | 12-106 | |
| Serologische pipetten (50 mL) | Olympus plastics | 12-107 | |
| Ultrapuur water (RNase/DNase vrij); nanopuur water | Genessee Scientific | 18-194 | Nanopuur water gebruikt voor de bereiding van oplossingen in Tabel 1 |
| Spuiten (10 mL) | BD | 794412 | |
| Spuiten (50 mL) | BD | 309653 | |
| 0,22 mm PES-spuitenfilter | Olympus plastics | 25-244 | |
| PS cuvet semi-mico | Olympus plastics | 91-408 | |
| Software | |||
| Biorender | Om de figuren voor te bereiden | ||
| FacsDiva6.1.3 | Becton Dickinson, San Jose, CA | ||
| Imaris | Bitplane | versie 9.6 | |
| Zen Black | |||
| Apparatuur | |||
| FacsAriallu | Becton Dickinson, San Jose |
Referenties
- Ramsay, K. A., et al. The changing prevalence of pulmonary infection in with fibrosis: A longitudinal analysis. Journal of Cystic Fibrosis. 16 (1), 70-77 (2017).
- Bessonova, L., et al. Data from the US and UK cystic fibrosis registries support disease modification by CFTR modulation with ivacaftor. Thorax. 73 (8), 731-740 (2018).
- Breuer, O., et al. Changing prevalence of lower airway infections in young children with cystic fibrosis. American Journal of Respiratory and Critical Care Medicine. 200 (5), 590-599 (2019).
- O'Donnell, J. N., Bidell, M. R., Lodise, T. P. Approach to the treatment of patients with serious multidrug-resistant Pseudomonas aeruginosa infections. Pharmacotherapy. 40 (9), 952-969 (2020).
- Bjarnsholt, T., et al. The in vivo biofilm. Trends in Microbiology. 21 (9), 466-474 (2013).
- Darch, S. E., et al. Spatial determinants of quorum signaling in a Pseudomonas aeruginosa infection model. Proceedings of the National Academy of Sciences of the United States of America. 115 (18), 4779-4784 (2018).
- Zhu, K., Chen, S., Sysoeva, T. A., You, L. Universal antibiotic tolerance arising from antibiotic-triggered accumulation of pyocyanin in Pseudomonas aeruginosa. PLoS Biology. 17 (12), 3000573(2019).
- Ciofu, O., Tolker-Nielsen, T. Tolerance and resistance of Pseudomonas aeruginosa biofilms to antimicrobial agents-how P. aeruginosa can escape antibiotics. Frontiers in Microbiology. 10, 913(2019).
- Turner, K. H., Wessel, A. K., Palmer, G. C., Murray, J. L., Whiteley, M. Essential genome of Pseudomonas aeruginosa in cystic fibrosis sputum. Proceedings of the National Academy of Sciences of the United States of America. 112 (13), 4110-4115 (2015).
- Darch, S. E., et al. Phage inhibit pathogen dissemination by targeting bacterial migrants in a chronic infection model. MBio. 8 (2), 00240(2017).
- Jorth, P., et al. Regional isolation drives bacterial diversification within cystic fibrosis lungs. Cell Host & Microbe. 18 (3), 307-319 (2015).
- Palmer, K. L., Aye, L. M., Whiteley, M. Nutritional cues control Pseudomonas aeruginosa multicellular behavior in cystic fibrosis sputum. Journal of Bacteriology. 189 (22), 8079-8087 (2007).
- Davies, D. G., et al. The involvement of cell-to-cell signals in the development of a bacterial biofilm. Science. 280 (5361), 295-298 (1998).
- Hartmann, R., et al. Quantitative image analysis of microbial communities with BiofilmQ. Nature Microbiology. 6 (2), 151-156 (2021).
- Stacy, A., et al. Bacterial fight-and-flight responses enhance virulence in a polymicrobial infection. Proceedings of the National Academy of Sciences of the United States of America. 111 (21), 7819-7824 (2014).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
