Dit protocol is bedoeld als een hulpmiddel om steatose en de moleculaire, biochemische, cellulaire veranderingen te bestuderen die worden veroorzaakt door de overblootstelling van hepatocyten aan lipiden in vitro.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Een model van experimentele steatose in vitro:hepatocytencelcultuur in lipide-overbelasting-geconditioneerd medium
In dit artikel
Samenvatting
Samenvatting
Metabole disfunctie-geassocieerde leververvetting (MAFLD), voorheen bekend als niet-alcoholische leververvetting (NAFLD), is wereldwijd de meest voorkomende leverziekte vanwege de relatie met obesitas, diabetes type 2 en dyslipidemie. Leversteatose, de accumulatie van lipidedruppeltjes in het leverparenchym, is een belangrijk kenmerk van de ziekte voorafgaand aan de ontsteking die wordt waargenomen bij steatohepatitis, fibrose en eindstadium leverziekte. Lipide accumulatie in hepatocyten kan interfereren met het juiste metabolisme van xenobiotica en endogene moleculen, evenals om cellulaire processen te induceren die leiden tot de vooruitgang van de ziekte. Hoewel de experimentele studie van steatose in vivokan worden uitgevoerd, zijn in vitro benaderingen voor de studie van steatose complementaire hulpmiddelen met verschillende voordelen. Hepatocytencultuur in lipide-overbelasting geconditioneerd medium is een uitstekende reproduceerbare optie voor de studie van leversteatose die de identificatie mogelijk maakt van cellulaire processen die verband houden met lipideaccumulatie, zoals oxidatieve en reticulaire spanningen, autofagie, proliferatie, celdood, enzovoort, evenals andere tests, waaronder de effectiviteit van geneesmiddelen en toxicologische tests, naast vele andere mogelijke toepassingen. Hier was het gericht op het beschrijven van de methodologie van hepatocytencelkweek in lipide-overbelasting geconditioneerd medium. HepG2-cellen werden gekweekt in RMPI 1640 medium geconditioneerd met natriumpalmitaat en natriumoleaat. Belangrijk is dat de verhouding van deze twee lipiden cruciaal is om de accumulatie van lipidedruppeltjes te bevorderen, terwijl de celproliferatie en een matig sterftecijfer behouden blijven, zoals tijdens de ziekte in de lever gebeurt. De methodologie, van de bereiding van de lipide-oplossingsvoorraden, mengsel, toevoeging aan het medium en hepatocytencultuur wordt getoond. Met deze aanpak is het mogelijk om lipidedruppels in de hepatocyten te identificeren die gemakkelijk waarneembaar zijn door olierode O-kleuring, evenals curven van proliferatie / sterftecijfers.
Inleiding
Leververvetting geassocieerd met metabole disfunctie komt wereldwijd veel voor1,2; geschat wordt dat tot 25% van de bevolking wordt getroffen3. Deze ziekte die voorheen bekend stond als niet-alcoholische leververvetting (NAFLD), heeft zijn nomenclatuur bijgewerkt naar metabole disfunctie geassocieerde leververvetting (MAFLD) om de pathogenese die verband houdt met obesitas, insulineresistentie, diabetes type 2 en dyslipidemie nauwkeurig weer te geven, evenals de mogelijke gevallen van de ziekte3,4.
Ongeacht de naam omvat de ziekte een breed spectrum van histopathologische veranderingen die worden gekenmerkt door abnormaal hoge accumulatie van lipiden in de lever (>5% vet in de hepatocyten5)en kan zich ontwikkelen door de lipideaccumulatie die typisch wordt aangetroffen bij eenvoudige steatohepatitis, wat op zijn beurt kan leiden tot de ontwikkeling van fibrose, cirrose, hepatocellulair carcinoom en leverfalen5,6,7,8. Vanwege de toenemende prevalentie wordt verwacht dat MAFLD de eerste indicatie van levertransplantatie en de belangrijkste oorzaak van hepatocellulair carcinoom zal worden9.
Hoewel het wordt beschouwd als een goedaardige of milde vorm van leververvetting, is leversteatose in feite de metabole sleutel in MAFLD10. Verschillende metabole routes worden beïnvloed door lipide accumulatie in de lever, inclusief maar niet beperkt tot lipidesynthese, export enmetabolisme 10. Insulineresistentie, oxidatieve stress, reticulaire stress en cellulaire disfunctie zijn sterk geassocieerd met hepatische lipotoxiciteit11,12. Aan de andere kant zijn vethepatocyten het doelwit van reactieve zuurstofsoorten, waardoor metabolieten worden weergegeven als lipideperoxiden, eiwitcarbonylen en adducten van nucleïnezuren13. Op cellulair niveau kunnen vethepatocyten mitochondriale schade ondergaan14, cellulaire senescentie15, apoptose16, pyroptose12en autofagie17, naast andere gebeurtenissen.
Hepatocyten zijn in hoge mate verantwoordelijk voor het metabolisme, ontgifting en synthese van een breed scala aan moleculen. Veel van deze functies kunnen worden aangetast door de lipide accumulatie waargenomen bij steatose. Daarom is het van groot belang om reproduceerbare hulpmiddelen te hebben die een nauwkeurige evaluatie van steatose mogelijk maken. In die zin zijn in vitro modellen gemakkelijk toepasbaar en zeer reproduceerbaar. Steatose in vitro is gebruikt met verschillende doelen16,18,19. De HepG2-cellen worden veel gebruikt als hepatocytencellijn. Het heeft voordelen zoals gemakkelijk te cultiveren en goed gekarakteriseerd. Misschien is het enige nadeel van HepG2-cellen het feit dat het een kankerverwekkende cellijn is, dus dit moet worden overwogen bij het analyseren van de uitkomsten. Hier wordt de toepassing van een mengsel van vetzuren die veel worden gebruikt in celkweek: palmitinezuur (PA) en oliezuur (OA) getoond. Zowel PA als OA bieden verschillende uitkomsten in cultuur20. PA (C 16:0) is het meest voorkomende verzadigde vetzuur verkregen uit het dieet16. PA wordt beschouwd als een biomarker van de-novo lipogenese, een cruciale stap in de ontwikkeling van NAFLD21. PA blijkt zeer giftig te zijn22; daarom kan het niet worden aanbevolen om steatose in vitrote induceren. OA (C 18:1) is een enkelvoudig onverzadigd vetzuur. In tegenstelling tot PA is gesuggereerd dat OA ontstekingsremmende en antioxiderende eigenschappen bezit, in staat om PA12tegen te gaan. Zowel PA als OA zijn de belangrijkste vetzuren die aanwezig zijn in de triglyceriden, ongeacht de gezondheidstoestand of ziekte16. Tabel 1 geeft voorbeelden van de hepatocytencultuur met PA, OA en hun mengsel, evenals de gerapporteerde uitkomsten12,23,24,25,26,27. Andere vetzuren zijn ook gebruikt in de hepatocytencultuur, waaronder stearinezuur (C 18:0)28,29,30,linolzuur (C 18:1)28,30,31 en de conjugaten daarvan (CLA)28,32,palmitoleïnezuur (C 16:1)29. Hun gebruik wordt echter het minst vaak gemeld in de literatuur, misschien omdat hun leverrijkdom lager is dan PA en OA16.
In combinatie lijken beide vetzuren op steatose in vitro, waardoor prolifererende cellen worden geleverd, met verhoogde celdood en lagere levensvatbaarheid in vergelijking met controleomstandigheden. Het is vermeldenswaard dat de respectieve zouten van deze vetzuren beschikbaar zijn en ook kunnen worden gebruikt. Een van de belangrijkste problemen bij het beoordelen van lipide-overbelasting in hepatocytencelcultuur wordt gegeven in het onderscheid tussen toxicologische modellen en een model dat steatose het beste weergeeft. Veel modellen kunnen in het eerste geval worden verantwoord. In feite kan het gebruik van PA alleen onder hen worden overwogen, en de hoge mortaliteit is de meest voor de hand liggende uitkomst12,16,23,24,25,26,27. Het gebruik van hoge doses, zelfs in het geval van artrose, kan ook worden beschouwd als een toxicologisch model. Het hier getoonde protocol is in hogere overeenstemming met de ontwikkeling van steatose, omdat het een lage mortaliteit vertoont in vergelijking met die waargenomen in andere modellen en het mogelijk maakt om het gedurende meerdere dagen te volgen met progressieve lipideaccumulatie zoals het optreedt in NAFLD. De mogelijkheid om milde en ernstige steatose te beoordelen door middel van experimentele omstandigheden wordt als een ander voordeel beschouwd.
| Vetzuren | Voorwaarden | Resultaten | Referentie | ||
| PA | Concentratie: 200 μM | Accumulatie van lipiden | Yan et al, 201925. | ||
| Tijd blootstelling: 24 uur | Hepatocytenschade | ||||
| Transaminases verhoging | |||||
| PA | Concentratie: 50, 100 en 200 μM | Accumulatie van lipiden | Xing et al, 201924. | ||
| Tijd blootstelling: 24 uur | |||||
| PA | Concentratie: 250 μM, 500 μM, 750 μM en 1.000 μM | Accumulatie van lipiden | Wang et al, 202026. | ||
| Tijd blootstelling: 24 uur | Progressieve vermindering van de levensvatbaarheid van cellen | ||||
| Mix van OA/PA | Concentratie: 1 mM | Accumulatie van lipiden | Xiao et al, 202027. | ||
| Tijd blootstelling: 24 uur | Rapporteert geen lipotoxiciteit | ||||
| Prijs: 2OA:1PA | |||||
| Mix van OA/PA | Eerste stimulatie met 200 μM en 400 μM PA en vervolgens tweede stimulatie met 200 μM artrose | Lipide accumulatie. | Zeng et al, 202012. | ||
| Concentratie: 400 μM PA: 200 μM OA | Bewijs van lipotoxiciteit geïnduceerd door PA werd verminderd door stimulatie van artrose. | ||||
| Prijs: 2PA:1OA | |||||
| Tijd blootstelling: 24 uur | |||||
| Mix van OA/PA | Concentratie: 400 μM PA: 200 μM OA | Accumulatie van lipiden | Chen et al, 201823. | ||
| Prijs: 2PA:1OA | |||||
| Tijd blootstelling: 24 uur | |||||
| Mix van OA/PA | Concentratie: 50 en 500 μM | Generatie van twee soorten steatose: milde steatose en ernstige steatose. | Campos en Guzmán 2021 | ||
| Prijs: 2PA:1OA | Simuleert chronische blootstelling van lipide-overbelasting | ||||
| Tijd blootstelling: 24 h, 2 dagen, 3 dagen en 4 dagen. | |||||
Tabel 1. Hepatocytencultuur in steatogene omstandigheden. De tabel toont het type vetzuur dat wordt gebruikt, de gehandhaafde omstandigheden en de waargenomen uitkomsten in hepatocytencultuur. PA: Palmitinezuur. OA: Oliezuur.
Ten slotte is dit model niet alleen van toepassing op de studie van steatose en leververvetting, maar ook op de hepatische metabole, synthetische en ontgiftingsroutes in de context van steatose. Ook kan in vitro geïnduceerde steatose bewijs leveren voor de identificatie van potentiële markers van de ziekte en therapeutische doelen.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
1. Standaard en geconditioneerde mediumbereiding
- Om standaard RPMI 1640 te bereiden, vult u RPMI 1640 kweekmedium aan met 10% (v / v) foetaal runderserum (FBS, eerder geïnactiveerd door warmte) en 1% (v / v) penicilline-streptomycine-oplossing. Bewaar het medium bij 4 °C.Steriliseer met behulp van 0,22 μm filters.
- Om palmitaat stockoplossing te bereiden, bereidt u een 50 mM-oplossing van palmitaat in de standaard RPMI 1640 eerder aangevuld met 1% runderserumalbumine (lipidenvrij). Een volume van 5-10 ml van deze voorraad is voldoende. Steriliseer de stamoplossing met behulp van filters van 0,22 μm. Bewaren bij 4 °C beschermd tegen licht gedurende maximaal 1 maand.
- Om oleaatvoorraadoplossing te bereiden, bereidt u een 50 mM-oplossing van oleaat in de standaard RPMI 1640, eerder aangevuld met 1% runderserumalbumine (lipidenvrij). Een volume van 10 ml is voldoende. Steriliseer de stamoplossing met behulp van filters van 0,22 μm. Bewaren bij -20 °C beschermd tegen licht gedurende maximaal 1 maand.
- Om steatogene medium uit de eerder bereide voorraden te bereiden, bereidt u een 1-delig palmitaat: 2-delig oleaat steatogene medium op twee mogelijke niveaus: milde en ernstige steatose.
- Milde steatose: Bereid 100 ml van een 1-delig palmitaat: 2-delig oleaat (50 μM) mengen in standaard RPMI 1640. Steriliseer met behulp van 0,22 μm filters. Bewaren bij 4 °C gedurende maximaal 1 week.
- Ernstige steatose: Bereid 100 ml van een 1-delig palmitaat: 2-delig oleaat (500 μM) mengen in standaard RPMI 1640. Steriliseer met behulp van 0,22 μm filters. Bewaren bij 4 °C gedurende maximaal 1 week.
- Alternatieve bereiding voor de stamoplossingen.
- Bereid beide stamoplossingen met behulp van de respectieve vetzuren met behulp van vrij lipide albumine zoals hierboven aangegeven.
- Bij gebrek aan vrije lipide albumine, gebruik palmitaat en oleaatzouten.
- Los palmitaat of oleaat op in 2 ml absolute ethanol en meng vervolgens in het uiteindelijke volume van standaard RPMI 1640 (5-10 ml). Los oleaat direct op door te roeren in standaard RPMI 1640 kweekmedium.
- verdamping van ethanol toestaan door te broeden in een waterbad bij 70 °C; Meng.
- Steriliseer in alle gevallen beide stamoplossingen met behulp van filters van 0,22 μm. Bewaar palmitaat stock oplossing bij 4 °C en oleate stock oplossing bij - 20 °C. Bescherm beide oplossingen tegen licht. Deze oplossingen zijn 1 maand stabiel.
2. Pre-cultuur
- Zaai 100.000 HepG2-cellen per put in een 24-well plaat. Voeg 1 ml standaard RPMI 1640 toe.
- Voorincubeer bij 37 °C en 5% CO 2 gedurende24 uur, waardoor celaanhechting mogelijk is.
3. Steatogene cultuur
- Gooi na het voorkweek het standaard RPMI 1640-medium weg en voeg het steatogene medium dienovereenkomstig toe.
- Gooi het supernatant weg en voeg elke 24 uur vers steatogene medium toe.
4. Beoordeling van de levensvatbaarheid en mortaliteit
- Zaai 100.000 HepG2-cellen per put in een 24-well plaat. Voeg 1 ml standaard RPMI 1640 toe.
- Voorincubeer gedurende 24 uur bij 37 °C en 5% CO2.
- Vervang standaard RPMI 1640 medium voor het steatogene medium.
- Incubeer gedurende 24 uur, 2 dagen, 3 dagen en 4 dagen om de 24 uur het steatogene medium verversen.
- Gooi na de juiste tijd het supernatant weg.
- Bevrijd cellen van de put door 500 μL 0,05% Trypsine-EDTA toe te voegen. Incubeer gedurende 5 min bij 37 °C en 5% CO2.
- Verzamel de geresuspendeerde cellen in een microbuisje.
- Centrifugeer bij 300 x g en gooi het supernatant weg.
- Voeg 200 μL standaard RPMI 1640 toe en resuspend de cellen.
- Voeg 15 μL 0,4% Trypan blauwe oplossing toe in een verse microbuis. Meng met 15 μL van de vorige celsuspensie.
- Tel de gekleurde en niet-gekleurde cellen in een hemocytometer.
- Bereken de levensvatbaarheid en sterftecijfers dienovereenkomstig.
Levensvatbaarheid =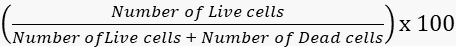
Mortaliteit =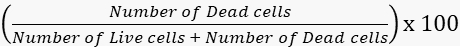
5. Lipide kleuring met Olie-Rode O
- Doe een celkweekdekplaat in elke put in een plaat met 24 putten.
- Zaad 100.000 HepG2-cellen per put. Voeg 1 ml standaard RPMI 1640 toe.
- Voorincubeer bij 37 °C en 5% CO2 gedurende 24 uur.
- Vervang standaard RPMI 1640 medium voor het steatogene medium.
- Incubeer gedurende 24 uur, 2 dagen, 3 dagen en 4 dagen en ververs het steatogene medium om de 24 uur.
- Gooi na de juiste tijd het supernatant weg.
- Wassen met 1 ml fosfaat gebufferde zoutoplossing (PBS). Gooi het supernatant weg.
- Fixeren met 1 ml 4% paraformaldehyde in PBS.
- Incubeer gedurende 1 uur bij kamertemperatuur.
- Gooi het teveel aan paraformaldehyde weg.
- Spoel de cellen af met 1 ml gedestilleerd water.
- Voeg 1 ml 70% isopropanol toe en incubeer gedurende 5 minuten.
- Gooi het teveel aan isopropanol weg. Een PBS-wasbeurt is op dit moment niet nodig.
- Voeg 1 ml olierode O-oplossing toe en incubeer gedurende 30 minuten.
- Gooi het teveel aan olierode O-oplossing weg.
- Spoel af met 1 ml gedestilleerd water.
- Voeg 500 μL hematoxyline-oplossing toe. Incubeer gedurende 3 min.
- Gooi het teveel aan hematoxyline-oplossing weg.
- Spoel af met 1 ml gedestilleerd water.
- Observeer onder de microscoop bij een vergroting van 400x (Objectief 40x, Oculair 10x).
6. Morfometrische beoordeling van lipidengehalten
- Selecteer en maak willekeurig foto's van 10 optische velden uit het volledige gebied van de put. Herhaal dit voor elke put.
- Beoordeel het percentage rood gekleurd gebied met behulp van de Color Threshold tool in de ImageJ-software volgens Ferreira en Rasband33.
- Vergelijk het gekleurde gebied met het volledige gebied van het optische veld met behulp van de tool Deeltjes analyseren in de ImageJ-software volgens Ferreira en Rasband33.
- Bereken het gemiddelde percentage van elke put.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Hepatocyten gekweekt in het steatogene medium vertonen groei over het hele oppervlak van de put; vette hepatocyten vertonen echter een lagere groeisnelheid in vergelijking met cellen die in controlemedium zijn gekweekt. De voorgestelde verhouding en concentratie van OA en PA, garanderen celoverleving tijdens de kweek. Het zaaien van 1 x10 5 cellen per put in 24-putplaten zorgt voor een optimale samenvloeiing zoals weergegeven in figuur 1.
De levensvatba...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Dit protocol is bedoeld om een strategie te bieden om steatose in vitrote bestuderen . Celcultuur is een krachtig hulpmiddel om cellulaire, moleculaire, biochemische en toxicologische aspecten van de cellen die aan verschillende omstandigheden worden blootgesteld te bestuderen. Met deze aanpak kan steatose niet alleen worden gevisualiseerd als een stadium van de complexe ziekte die MAFLD is, maar ook als de overmatige blootstelling van hepatocyten aan lipiden en de mogelijke uitkomsten als gevolg van een dergeli...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Dit werk werd gefinancierd door Consejo Nacional de Ciencia y Tecnología (Conacyt, CB-221137). Adriana Campos is promovendus aan Programa de Doctorado en Ciencias Biomédicas, Universidad Nacional Autónoma de México, en werd ondersteund door Conacyt (CVU: 1002502).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Biosafety cabinet | ESCO Airstream | AC2-452+C2:C26 | Class II Type A2 Biologische veiligheidscabinet |
| Bottle top filter | Corning, VS | 430513 | Niet-pyrogeen, polystyreen, sterieel. 1 filter/zak. 0.22 μm, 500 mL. |
| Bovine serum albimun (BSA) | Gold Biotechnology, VS | A-421-10 | BSA Vrij van vetzuren voor celcultuur |
| Culture media RPMI 1640 | ThermoFisher-Gibco, VS | 31800-022 | - |
| Fetaal bovien serum (FBS) | ThermoFisher-Gibco, VS | A4766801 | - |
| Hemocytometer | Marienfeld, DE | 640010 | - |
| HepG2 cellijn | ATCC, VS | HB-8065 | Menselijk hepatocellulair carcinoom. |
| Bevochtigde incubator | Thermo Electronic Corporation, VS | Model: 3110 | Temperatuur (37 °C ± 1 °C), vochtigheid (90% ± 5%), CO2 (5% ± 1%) |
| Omgekeerd microscoop Eclipse | NIKON, JPN | Model: TE2000-S | - |
| Isopropanol | Sigma-Aldrich, VS | I9030-4L | - |
| Oil Red O Kit | Abcam, VS | ab150678 | Kit voor histologische visualisatie van neutraal vet. |
| Paraformaldehyde | Sigma-Aldrich, VS | P6148-500G | - |
| Penicilline/streptomycine | ThermoFisher-Gibco, VS | 15140-122 | Antibiotica 10.000 U/mL Penicilline, 10.000 μg/mL Streptomycine |
| pH meter | Beckman, VS | Model: 360 PH/Temp/MV Meter | - |
| Fosfaat gebufferde zoutoplossing | ThermoFisher-Gibco, VS | 10010-023 | - |
| Serologische pipetten | Sarstedt, AUS | 86.1253.001 | Niet-pyrogeen, sterieel, 5 mL |
| Serologische pipetten | Sarstedt, AUS | 86.1254.001 | Niet-pyrogeen, sterieel, 10 mL |
| Natriumbicarbonaat | Sigma-Aldrich, VS | S5761-1KG | Bereiding van cultuurmedia |
| Natriumoleaat | Santa Cruz Biotechnology, VS | sc-215879A | - |
| Natriumpalmitaat | Santa Cruz Biotechnology, VS | sc-215881 | - |
| Spuitfilter | Corning, VS | 431219 | Niet-pyrogeen, sterieel, 28 mm, 0.2 μm. |
| Trypan blauw | Sigma-Aldrich, VS | T6146-25G | - |
| Trypsine 0,05% /EDTA 0,53 mM | Corning, VS | 25-052-Cl | - |
| 24 wel celcultuurcluster | Corning, VS | 3524 | Vlakke bodem met deksel. Behandeld voor weefselcultuur. Niet-pyrogeen, polystyreen, sterieel. 1/Verpakking. |
| 96 wel celcultuurcluster | Corning, VS | 3599 | Vlakke bodem met deksel. Behandeld voor weefselcultuur. Niet-pyrogeen, polystyreen, sterieel. 1/Verpakking. |
Referenties
- Younossi, Z. M. Non-alcoholic fatty liver disease - a global public health perspective. Journal of Hepatology. 70 (3), 531-544 (2019).
- Younossi, Z., et al. Global perspectives on nonalcoholic fatty liver disease and nonalcoholic steatohepatitis. Hepatology. 69 (6), 2672-2682 (2019).
- Eslam, M., et al. A new definition for metabolic dysfunction-associated fatty liver disease: An international expert consensus statement. Journal of Hepatology. 73 (1), 202-209 (2020).
- Eslam, M., Sanyal, A. J., George, J. MAFLD: A consensus-driven proposed nomenclature for metabolic associated fatty liver disease. Gastroenterology. 158 (7), 1999-2014 (2020).
- Chalasani, N., et al. The diagnosis and management of nonalcoholic fatty liver disease: Practice guidance from the American association for the study of liver diseases. Hepatology. 67 (1), 328-357 (2018).
- Calzadilla Bertot, L., Adams, L. A. The natural course of non-alcoholic fatty liver disease. International Journal of Molecular Science. 17 (5), 774(2016).
- Reccia, I., et al. Non-alcoholic fatty liver disease: A sign of systemic disease. Metabolism. 72, 94-108 (2017).
- Tomita, K., et al. Free cholesterol accumulation in hepatic stellate cells: Mechanism of liver fibrosis aggravation in nonalcoholic steatohepatitis in mice. Hepatology. 59 (1), 154-169 (2014).
- Byrne, C. D., Targher, G. Nafld: A multisystem disease. Journal of Hepatology. 62, 1 Suppl 47-64 (2015).
- Ipsen, D. H., Lykkesfeldt, J., Tveden-Nyborg, P. Molecular mechanisms of hepatic lipid accumulation in non-alcoholic fatty liver disease. Cellular and Molecular Life Sciences. 75 (18), 3313-3327 (2018).
- Diehl, A. M., Day, C. Cause, pathogenesis, and treatment of nonalcoholic steatohepatitis. New England Journal of Medicine. 377 (21), 2063-2072 (2017).
- Zeng, X., et al. Oleic acid ameliorates palmitic acid induced hepatocellular lipotoxicity by inhibition of ER stress and pyroptosis. Nutrition and Metabolism. 17, London. 11(2020).
- Ore, A., Akinloye, O. A. Oxidative stress and antioxidant biomarkers in clinical and experimental models of non-alcoholic fatty liver disease. Medicina (Kaunas). 55 (2), 26(2019).
- Paradies, G., Paradies, V., Ruggiero, F. M., Petrosillo, G. Oxidative stress, cardiolipin and mitochondrial dysfunction in nonalcoholic fatty liver disease. World Journal of Gastroenterology. 20 (39), 14205-14218 (2014).
- Aravinthan, A., et al. Hepatocyte senescence predicts progression in non-alcohol-related fatty liver disease. Journal of Hepatology. 58 (3), 549-556 (2013).
- Gomez, M. J., et al. A human hepatocellular in vitro model to investigate steatosis. Chemico Biological Interactions. 165 (2), 106-116 (2007).
- Wu, W. K. K., Zhang, L., Chan, M. T. V. Autophagy, NAFLD and NAFLD-related HCC. Advances in Experimental Medicine and Biology. 1061, 127-138 (2018).
- Levy, G., Cohen, M., Nahmias, Y. In vitro cell culture models of hepatic steatosis. Methods in Molecular Biology. 1250, 377-390 (2015).
- Kanuri, G., Bergheim, I. In vitro and in vivo models of non-alcoholic fatty liver disease (NAFLD). International Journal of Molecular Science. 14 (6), 11963-11980 (2013).
- Ricchi, M., et al. Differential effect of oleic and palmitic acid on lipid accumulation and apoptosis in cultured hepatocytes. Journal of Gastroenterology and Hepatology. 24 (5), 830-840 (2009).
- Lee, Y., et al. Serial biomarkers of de novo lipogenesis fatty acids and incident heart failure in older adults: The cardiovascular health study. Journal of the American Heart Association. 9 (4), 014119(2020).
- Alnahdi, A., John, A., Raza, H. Augmentation of glucotoxicity, oxidative stress, apoptosis and mitochondrial dysfunction in Hepg2 cells by palmitic acid. Nutrients. 11 (9), 1979(2019).
- Chen, X., et al. Oleic acid protects saturated fatty acid mediated lipotoxicity in hepatocytes and rat of non-alcoholic steatohepatitis. Life Sciences. 203, 291-304 (2018).
- Xing, J. H., et al. NLRP3 inflammasome mediate palmitate-induced endothelial dysfunction. Life Sciences. 239, 116882(2019).
- Yan, H., et al. Insulin-like Growth Factor Binding Protein 7 accelerates hepatic steatosis and insulin resistance in non-alcoholic fatty liver disease. Clinical and Experimental Pharmacology and Physiology. 46 (12), 1101-1110 (2019).
- Wang, J., Hu, R., Yin, C., Xiao, Y. Tanshinone IIA reduces palmitate-induced apoptosis via inhibition of endoplasmic reticulum stress in Hepg2 liver cells. Fundamental and Clinical Pharmacology. 34 (2), 249-262 (2020).
- Xiao, Z., Chu, Y., Qin, W. IGFBP5 modulates lipid metabolism and insulin sensitivity through activating ampk pathway in non-alcoholic fatty liver disease. Life Sciences. 256, 117997(2020).
- Avila, G., et al. In vitro effects of conjugated linoleic acid (CLA) on inflammatory functions of bovine monocytes. Journal of Dairy Science. 103 (9), 8554-8563 (2020).
- Malhi, H., Bronk, S. F., Werneburg, N. W., Gores, G. J. Free fatty acids induce JNK-dependent hepatocyte lipoapoptosis. The Journal of Biological Chemistry. 281 (17), 12093-12101 (2006).
- Oh, J. M., et al. Effects of palmitic acid on TNF-alpha-induced cytotoxicity in SK-Hep-1 cells. Toxicology In Vitro: An International Journal Published in Association with BIBRA. 26 (6), 783-790 (2012).
- Stellavato, A., et al. In vitro assessment of nutraceutical compounds and novel nutraceutical formulations in a liver-steatosis-based model. Lipids in Health and Disease. 17 (1), 24(2018).
- Pachikian, B. D., et al. Implication of trans-11, trans-13 conjugated linoleic acid in the development of hepatic steatosis. PLoS One. 13 (2), 0192447(2018).
- Ferreira, T., Rasband, W. Analyze. ImageJ User Guide. , Ch. 30 132-135 (2012).
- Geng, Y., Wu, Z., Buist-Homan, M., Blokzijl, H., Moshage, H. Hesperetin protects against palmitate-induced cellular toxicity via induction of GRP78 in hepatocytes. Toxicology and Applied Pharmacology. , 404(2020).
- Geng, Y., et al. Protective effect of metformin against palmitate-induced hepatic cell death. Biochimica et Biophysica Acta - Molecular Basis of Disease. 1866 (3), 165621(2020).
- Sarnyai, F., et al. Effect of cis- and trans-monounsaturated fatty acids on palmitate toxicity and on palmitate-induced accumulation of ceramides and diglycerides. International Journal of Molecular Science. 21 (7), 2626(2020).
- Chen, J. W., et al. Tetrahydrocurcumin ameliorates free fatty acid-induced hepatic steatosis and improves insulin resistance in HepG2 cells. Journal of Food and Drug Analysis. 26 (3), 1075-1085 (2018).
- Burhans, M. S., et al. Hepatic oleate regulates adipose tissue lipogenesis and fatty acid oxidation. Journal of Lipid Research. 56 (2), 304-318 (2015).
- Abenavoli, L., Milanovic, M., Milic, N., Luzza, F., Giuffre, A. M. Olive oil antioxidants and non-alcoholic fatty liver disease. Expert Reviews in Gastroenterology and Hepatology. 13 (8), 739-749 (2019).
- Nagarajan, S. R., et al. Lipid and glucose metabolism in hepatocyte cell lines and primary mouse hepatocytes: A comprehensive resource for in vitro studies of hepatic metabolism. American Journal of Physiology - Endocrinology and Metabolism. 316 (4), 578-589 (2019).
- Hodson, L., Skeaff, C. M., Fielding, B. A. Fatty acid composition of adipose tissue and blood in humans and its use as a biomarker of dietary intake. Progress in Lipid Research. 47 (5), 348-380 (2008).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
