Hier worden niet-invasieve methoden beschreven voor de lokalisatie van fotoreceptormembraaneiwitten en de beoordeling van retinale degeneratie in het drosophila samengestelde oog met behulp van eGFP-fluorescentie.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Onderzoek naar membraaneiwithandel in drosophila-fotoreceptorcellen met behulp van eGFP-gelabelde eiwitten
In dit artikel
Samenvatting
Samenvatting
Membraaneiwithandel reguleert de opname en verwijdering van receptoren en ionkanalen in het plasmamembraan. Dit proces is van fundamenteel belang voor de celfunctie en celintegriteit van neuronen. Drosophila fotoreceptorcellen zijn een model geworden voor het bestuderen van membraaneiwithandel. Naast rhodopsine, dat bij verlichting wordt geïnternaliseerd uit het fotoreceptormembraan en wordt afgebroken, vertoont het transient receptor potential-like (TRPL) ionkanaal in Drosophila een lichtafhankelijke translocatie tussen het rhabdomerale fotoreceptormembraan (waar het zich in het donker bevindt) en het fotoreceptorcellichaam (waarnaar het wordt getransporteerd bij verlichting). Dit intracellulaire transport van TRPL kan op een eenvoudige en niet-invasieve manier worden bestudeerd door eGFP-gelabelde TRPL in fotoreceptorcellen tot expressie te brengen. De eGFP-fluorescentie kan dan worden waargenomen in de diepe pseudopupil of door waterdompelingsmicroscopie. Deze methoden maken detectie van fluorescentie in het intacte oog mogelijk en zijn daarom nuttig voor high-throughput assays en genetische screenings voor Drosophila-mutanten die defect zijn in TRPL-translocatie. Hier worden de voorbereiding van vliegen, de microscopische technieken en kwantificeringsmethoden die worden gebruikt om deze door licht veroorzaakte translocatie van TRPL te bestuderen, in detail uitgelegd. Deze methoden kunnen ook worden toegepast voor mensenhandelstudies op andere Drosophila-fotoreceptoreiwitten, bijvoorbeeld rhodopsine. Bovendien kunnen deze methoden, door gebruik te maken van eGFP-gelabelde rabdomerale eiwitten, worden gebruikt om de degeneratie van fotoreceptorcellen te beoordelen.
Inleiding
Door eiwitten van en naar het plasmamembraan te leveren en te verwijderen, regelt membraaneiwithandel in neuronen de plasmamembraanapparatuur met receptoren en ionkanalen en reguleert als gevolg daarvan de neuronale functie. Misregulatie of defecten in eiwithandel hebben meestal schadelijke effecten op cellen en resulteren in neuronale degeneratie. Bij mensen kan dit neurodegeneratieve ziekten veroorzaken, zoals de ziekte van Alzheimer en Parkinson of Retinitis pigmentosa1. Fotoreceptoren in het samengestelde oog van Drosophila melanogaster zijn een in vivo modelsysteem geworden voor het bestuderen van membraaneiwithandel2. Dit komt niet alleen door de genetische veelzijdigheid van Drosophila die effectieve genetische screenings mogelijk maakt, maar ook omdat alle essentiële componenten van het lichtabsorberende fotoreceptormembraan tot in detail worden gekenmerkt en efficiënte microscopische technieken beschikbaar zijn die op het vliegenoog kunnen worden toegepast. Deze technieken staan centraal in dit artikel.
In Drosophila-fotoreceptorcellen vormt het apicale plasmamembraan een dicht opeengepakte stapel microvilli langs één kant van de cel, rhabdomere genaamd. De rhabdomeres van fotoreceptorcellen R1-6 zijn gerangschikt in een karakteristiek trapeziumvormig patroon, terwijl fotoreceptorcellen R7 en R8 een enkel rhabdomere vormen in het midden van dit trapezium3. Membraaneiwithandel is nodig voor een gereguleerde omzet van rabdomerale membraaneiwitten zoals rhodopsine en de lichtgeactiveerde TRP (transient receptor potential) en TRPL (TRP-achtige) ionkanalen om de juiste hoeveelheid van deze fototransductie-eiwitten in het rabdomere te garanderen. Fotoreceptormembraaneiwitten worden gesynthetiseerd in het endoplasmatisch reticulum en via het Golgi-apparaat naar het rabdomere getransporteerd. Na activering van rhodopsine door licht kan een rhodopsinemolecuul worden geïnactiveerd door absorptie van een tweede foton of kan het uit het rabdomere worden verwijderd door clathrin-gemedieerde endocytose. Endocytosed rhodopsine wordt ofwel afgebroken in het lysosoom of wordt gerecycled naar het rhabdomere 4,5. Het ionkanaal TRPL wordt ook geïnternaliseerd na activering van de fototransductiecascade en ondergaat een lichtafhankelijke translocatie tussen het rhabdomere (waar het zich bevindt wanneer vliegen in het donker worden gehouden) en een ER-verrijkt opslagcompartiment in het cellichaam (waarnaar het binnen enkele uren na verlichting wordt getransporteerd)6,7,8,9,10 . In tegenstelling tot endocytosed rhodopsine worden slechts kleine hoeveelheden TRPL afgebroken via de endolysosomale route, en de meerderheid wordt in plaats daarvan intracellulair opgeslagen en gerecycled naar het rhabdomere bij donkere aanpassing6. TRPL kan dus worden gebruikt voor het analyseren van door licht veroorzaakte handel in plasmamembraaneiwitten. Drosophila fotoreceptorcellen worden ook gebruikt voor het bestuderen van neuronale degeneratie. Fotoreceptorceldegeneratie wordt vaak bepaald door de structuur van rhabdomeres te beoordelen, die desintegreren als gevolg van degeneratieve processen5.
Om de subcellulaire lokalisatie van TRPL en rhodopsine in fotoreceptorcellen of fotoreceptorceldegeneratie te bestuderen, zijn hier twee fluorescentiemicroscopiemethoden toegepast die verschillen met betrekking tot analysesnelheid en resolutie. Een zeer snelle, niet-invasieve methode die kan worden gebruikt voor genetische screening, maar met een beperkte ruimtelijke resolutie, is de detectie van fluorescentie in de diepe pseudopupil (DPP). De DPP is een optisch fenomeen van geleedpotige samengestelde ogen waarvan de geometrische oorsprong in detail is verklaard door Franceschini en Kirschfeld in 197111. Kortom, op verschillende optische vlakken onder de retina-overlay-beelden van rhabdomeres van aangrenzende ommatidia kunnen worden waargenomen. Op een brandpuntsvlak door het midden van de kromming van het oog vormen deze gesuperponeerde projecties een beeld dat lijkt op de trapeziumvormige lay-out van rhabdomeres in een enkel ommatidium dat slechts ordes van grootte groter is. Dit fenomeen kan ook onafhankelijk van exogene expressie van fluorescentie-eiwitten worden waargenomen (bijv. TRPL::eGFP8), die de DPP niettemin gemakkelijker te detecteren maken (figuur 1A-A'')12. Een tweede niet-invasieve methode is wateronderdompelingsmicroscopie die afhankelijk is van beeldvorming van fluorescerend gelabelde eiwitten na het optisch neutraliseren van het dioptrische apparaat van de ogen met water (figuur 1B-C'')12. Met behulp van de onderdompelingsmethode in water kan de relatieve hoeveelheid TRPL::eGFP in het rabdomes of cellichaam kwantitatief worden beoordeeld voor individuele fotoreceptorcellen. Bovendien kunnen niet-translocerende fluorescentie-gelabelde eiwitten worden gebruikt om de integriteit van rhabdomerale te evalueren en om het tijdsverloop van een potentiële degeneratie op een kwantitatieve manier te bepalen, zoals hier beschreven.
Hoewel opnames van de DPP verreweg de gemakkelijkste en snelste van deze methoden zijn om uit te voeren, is de ruimtelijke resolutie van gegevens die ze genereren beperkt. Bovendien zijn er tal van redenen waarom een DPP afwezig kan zijn, die niet noodzakelijkerwijs waarneembaar zijn door DPP-beeldvorming zelf. Omdat de DPP een optelsom van verschillende ommatidia vertegenwoordigt, gaat informatie over individuele cellen verloren. DPP-beeldvorming met lage resolutie heeft dus een belangrijke functie bij het screenen van grote aantallen vliegen, maar moet over het algemeen worden gevolgd door opnames met een hogere resolutie door middel van wateronderdompelingsmicroscopie. Water immersie micrografen maken interpretaties mogelijk over individuele cellen, ontwikkelingsstoornissen, oogmorfologie, eiwitmislokalisatie of retinale degeneratie, evenals kwantificering van deze effecten. Dit protocol beschrijft deze twee technieken in detail.
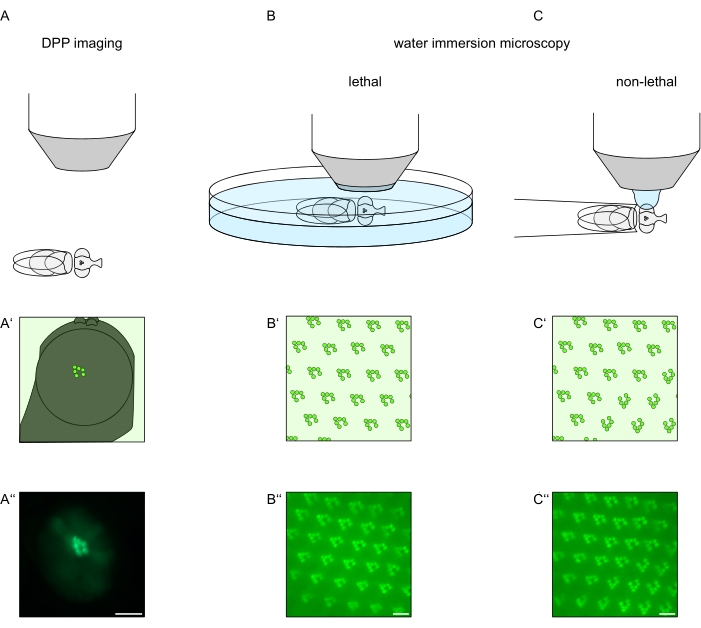
Figuur 1: Overzicht van microscopievariaties voor het Drosophila-oog gepresenteerd in dit protocol. Schematische representaties en voorbeeldige micrografieën van (A-A'') fluorescerende diepe pseudopupil (DPP) beeldvorming, (B-B'') letale waterdompelmicroscopie van fluorescerende rabdomeres en (C-C'') niet-dodelijke waterdruppelmicroscopie van fluorescerende rhabdomeres. Schaalbalk (A''): 100 μm. Schaalstaven (B''-C''): 10 μm. Het cijfer is gewijzigd ten opzichte van referentie13. Klik hier om een grotere versie van deze figuur te bekijken.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
1. Algemene overwegingen
- Gebruik Drosophila-aandelen die een permanent rhabdomeraal gelegen fluorescentie-eiwit tot expressie brengen voor morfologische analyse (bijv. TRP::eGFP, eGFP::NINAC) en translocerende eiwitten voor analyses met betrekking tot eiwithandel (bijv. TRPL::eGFP, Arr2::eGFP).
- Bepaal vooraf de lichtblootstellingsomstandigheden van geselecteerde vliegen voor de experimentele aanpak.
- Voor donkere aanpassing, bewaar de vliegen in donkere dozen gedurende de gewenste periode bij 25 °C. Voor verlichting tot 16 uur in translocatie-experimenten (bijv. TRPL::eGFP die vliegen uitdrukt), houdt u vliegen onder een tl-buis bij kamertemperatuur.
- In experimenten die de degeneratie van fotoreceptoren beoordelen (bijv. TRP::eGFP die vliegen tot expressie brengt), houdt u de vliegen onder een tl-buis bij 25 °C in een 12 uur licht / 12 uur donkere cyclus voor langdurige verlichting van maximaal 28 dagen met wit licht.
- Gebruik voor het verlichten van vliegen met gekleurd licht verschillende gekleurde transparante plastic dozen samen met de tl-buis.
- Als vliegenbestanden met gepigmenteerde ogen worden gebruikt, verouderen dieren precies voor vergelijkende analyse, omdat oogpigmentatie aanzienlijk kan toenemen met de leeftijd.
OPMERKING: Voor gegevensinterpretatie is het belangrijk op te merken dat er een signaalbias bestaat als gevolg van het optische golfgeleidende effect van de rhabdomerale structuur. Dienovereenkomstig zal het fluorescentiesignaal van het rhabdomere altijd tot op zekere hoogte worden versterkt in DPP-beeldvorming en wateronderdompelingsmicroscopie ten opzichte van signalen verkregen uit het cellichaam. Dit wordt het meest prominent waargenomen in gepigmenteerde ogen, waar fluorescentie van buiten de rhabdomeres door deze pigmenten wordt geabsorbeerd en is van bijzonder belang bij intracellulair translocerende fusie-eiwitten moeten worden gedetecteerd. Met betrekking tot kritieke stappen beschouwt deze studie witte en roodogige vliegen dus afzonderlijk. - Met betrekking tot waterdompelingsmicroscopie worden twee variaties beschreven. Een snellere dodelijke variatie en een niet-dodelijke variatie die herstel mogelijk maakt voor latere studies.
2. DPP-beeldvorming
- Bereid de werkruimte voor met de benodigde apparatuur en reagentia zoals weergegeven in figuur 2. Anesthetizevliegen (1-3 dagen oud) van een genotype dat een fluorescentie-eiwit tot expressie brengt in fotoreceptorcellen met CO2 op een flypad. Selecteer dieren voor beeldvorming onder een stereomicroscoop met een conventionele lichtbron en lage vergroting (bijv. 10x).
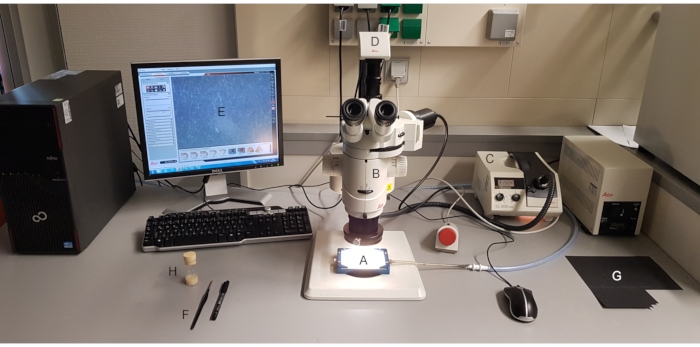
Figuur 2: Werkruimte voor DPP-beeldvorming. Benodigde materialen zijn (A) CO 2-anesthesieapparatuur, (B) stereomicroscoop met een UV-lamp en fluorescentiesfilterset, (C) lichtbron, (D) microscoop gemonteerde camera met (E) software, (F) verfkwast, (G) zwart karton en (H) vliegenflacon. Klik hier om een grotere versie van deze figuur te bekijken.
- Voor DPP-beeldvorming houdt u de geselecteerde vliegen verdoofd en plaatst u een van hen in het midden van het microscoopobjectief op zijn kant, zodat het linker- of het rechteroog het objectief precies radiaal naar voren richt (figuur 3A).
OPMERKING: Aangezien de ommatidiale lay-out van fotoreceptorcellen spiegelsymmetrie vertoont op de dorsoventrale middellijn, kan de DPP het best iets boven of onder de evenaar van het oog worden waargenomen (figuur 3B).
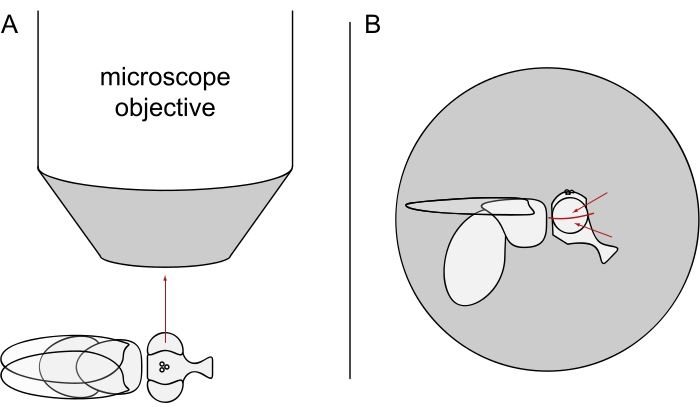
Figuur 3: Positionering van de vlieg onder de stereomicroscoop voor DPP-beeldvorming. (A) Illustratie van de vlieg op zijn kant met één oog radiaal naar het microscoopobjectief gericht. (B) De vliegenkop moet iets omhoog of omlaag worden gedraaid, zodat het objectief zich richt op een punt iets boven of onder de evenaar van het oog, zoals aangegeven door de rode pijlen. Klik hier om een grotere versie van deze figuur te bekijken.
- Verhoog de vergroting om het hele oog te passen (bijv. 100x) en centreer de centrale ommatidia van het oog. Verklein de scherptediepte van de microscoop, bijvoorbeeld door het dubbele irismembraan aan te passen aan een ondiepe stand (figuur 4A-B').
- Schakel de conventionele lichtbron uit en schakel de microscoop UV-lamp op maximale intensiteit in en selecteer de fluorescentiesfilterset van de microscoop op basis van het fluorescentie-eiwit dat in de ogen tot expressie wordt gebracht (figuur 4C-E). Stel het lichtpad in richting de camera die op de microscoop is gemonteerd.
- Gebruik de live imaging-functie in de software om de helderheid van het beeld aan te passen aan een instelling die alleen specifieke signalen van het oog detecteert door de belichtingstijd en winstwaarde aan te passen (bijvoorbeeld respectievelijk 80 ms en 12x). Pas de microscoopfocus "in" het oog (onder het hoornvlies) aan om het gesuperponeerde beeld van de DPP te genereren (figuur 4C-E').
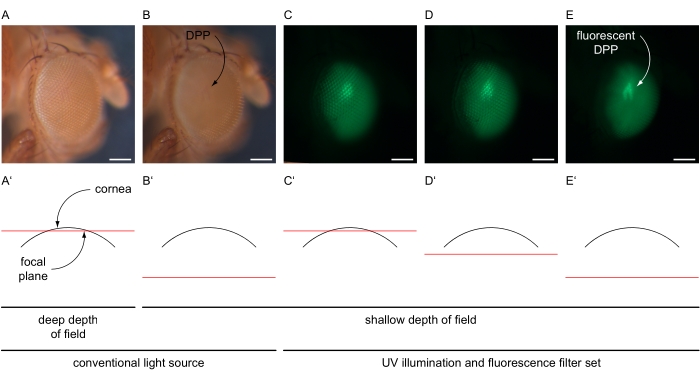
Figuur 4: Illustratie van DPP en fluorescerende DPP-beeldvorming. Voorbeeldige beelden van Drosophila-ogen onder conventionele en UV-verlichting met GFP-filterset, genomen met verschillende brandpuntsvlakken geïllustreerd in schematische doorsneden door het oog. (A) Micrografie opgenomen met heldere instellingen van een conventionele lichtbron, 30 ms belichtingstijd, 1x versterking, diepe scherptediepte en brandpuntsvlak nabij het oppervlak van het hoornvlies zoals geïllustreerd in (A'). (B) Micrografie geregistreerd met heldere instellingen van een conventionele lichtbron, 30 ms belichtingstijd, 1x versterking, geringe scherptediepte en brandpuntsvlak ongeveer 180 μm onder het oppervlak van het hoornvlies zoals geïllustreerd in (B'). DPP aangegeven. (C-E) Micrografie opgenomen met hoge intensiteitsinstellingen van UV-lichtbron en GFP-filterset, belichtingstijd van 80 ms, 12x versterking, geringe scherptediepte en het brandpuntsvlak (C') in de buurt, (D') iets lager, of (E') ongeveer 180 μm onder het oppervlak van het hoornvlies. Fluorescerende DPP wordt aangegeven met een gebogen pijl. Schaalbalk 100 μm. Klik hier om een grotere versie van deze figuur te bekijken.
- Maak een momentopname van de fluorescerende DPP. Schakel de microscoop terug naar zichtbaar licht en het lichtpad terug naar de oculair. Herstel het afgebeelde dier in een vliegenflacon voor verdere procedures volgens het DPP-fenotype (bijv. Kruisen). Ga verder met het volgende dier in stap 2.2.
3. Microscopie van onderdompeling in water
- Vliegvoorbereiding
- Bereid de werkruimte voor met de benodigde apparatuur en reagentia zoals weergegeven in figuur 5. Breng vliegen met vooraf bepaalde leeftijd en verlichtingsomstandigheden over in een voorgekoelde centrifugebuis van 15 ml en verdoof ze door ze gedurende 15 tot 30 minuten op ijs te uitbroeden.
OPMERKING: Neem 1 dag oude, donker aangepaste vliegen mee als referentie. Over het algemeen moeten aan het donker aangepaste vliegen worden overgebracht naar een ijskast met een deksel in het donker. Lichtgeadapteerde vliegen kunnen in kamerlicht op het ijs worden overgebracht.
- Bereid de werkruimte voor met de benodigde apparatuur en reagentia zoals weergegeven in figuur 5. Breng vliegen met vooraf bepaalde leeftijd en verlichtingsomstandigheden over in een voorgekoelde centrifugebuis van 15 ml en verdoof ze door ze gedurende 15 tot 30 minuten op ijs te uitbroeden.
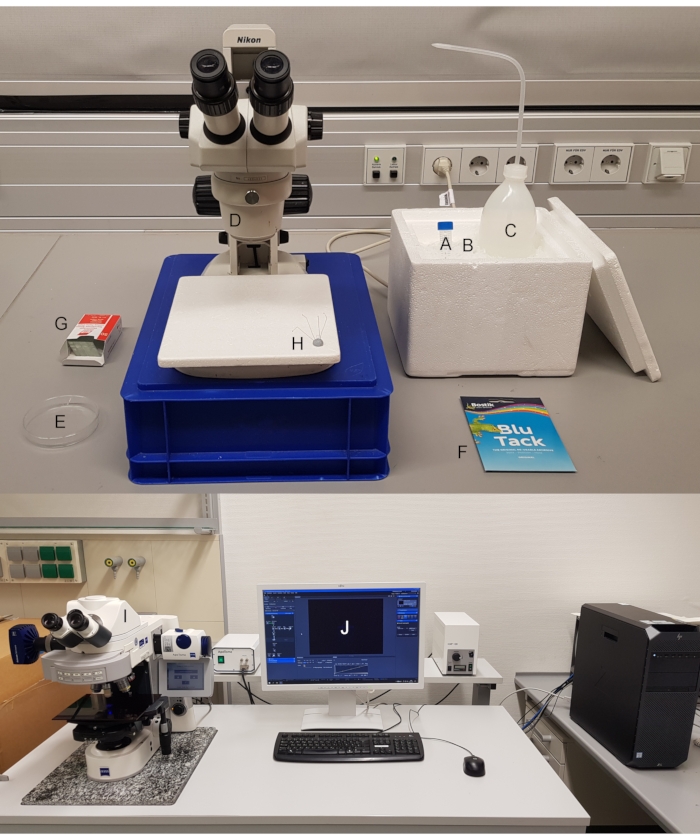
Figuur 5: Werkruimte voor onderdompelingsmicroscopie in water. Benodigde materialen zijn: (A) 15 ml centrifugebuis, (B) ijsvlokken, (C) gekoeld gedestilleerd water, (D) stereomicroscoop, (E) petrischaaltje, (F) plasticine, (G) objectschuif, (H) insectenpennen of pipetpunten en scalpel, (I) fluorescentiemicroscoop met (J) software. Klik hier om een grotere versie van deze figuur te bekijken.
- Selecteer het juiste preparaat uit de twee hieronder beschreven (3.1.3 letale variatie of 3.1.7 niet-dodelijke variatie) en wanneer onderscheid wordt gemaakt tussen gepigmenteerde en niet-gepigmenteerde ogen, volgt u de respectieve stappen.
- Bereid vliegen als volgt voor op de dodelijke variatie.
- Plak een stuk plasticine op een objectplaat en een ander stuk in het midden van een petrischaaltje (bijvoorbeeld 94 mm Ø) en houd ze voorlopig gescheiden. Vul de petrischaal met ijsgekoeld gedestilleerd water en wat ijsvlokken (figuur 6A).
- Leg een met ijs verdoofde vlieg onder een stereomicroscoop bovenop de met plasticine beklede objectglijbaan. Draai de vlieg op zijn rug en prik een insectenpen door het midden van de thorax (figuur 6B). Bevestig de pin horizontaal op de met plasticine beklede objectdia en oriënteer het linker- of rechteroog van de vlieg naar boven (figuur 6C).
- Bevestig de objectschuif, met de plasticinevrije kant naar beneden gericht, voorzichtig in de petrischaal om rotatie van de vlieg te voorkomen. Zorg ervoor dat het vliegenoog bedekt is met water (figuur 6D). Gebruik een voorbereidingsnaald om zorgvuldig eventuele luchtbellen rond het oog te verwijderen en ga onmiddellijk over tot beeldverwerving voor de beste resultaten.
OPMERKING: Aanzienlijke vertraging in beeldacquisitie resulteert in ontwaken en bewegingen van de vlieg die kunnen leiden tot wazige beelden.
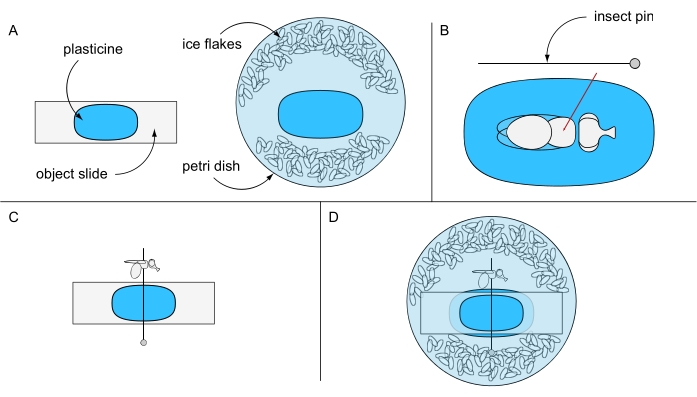
Figuur 6: Voorbereiding op microscopie voor onderdompeling in dodelijk water. Illustratie van (A) plasticine-gecoate objectdia en petrischaal, (B) het vastzetten van een vlieg door thorax op plasticinegrond, (C) vliegoriëntatie op de plasticine-gecoate objectglijbaan en (D) uiteindelijke experimentele opstelling. Klik hier om een grotere versie van deze figuur te bekijken.
- Bereid vliegen als volgt voor op de niet-dodelijke variatie.
- Breng een met ijs verdoofde vlieg met het hoofd over in een pipetpunt van 200 μL en duw de vlieg voorzichtig met perslucht naar de punt.
- Snijd de pipetpunt vlak voor de kop af met een scalpel. Duw de vlieg met een pincet voorzichtig een paar millimeter van de punt af. Snijd de pipetpunt weer af en duw de vlieg met perslucht terug naar de punt, zodat alleen de kop van de vlieg uit de pipetpunt steekt.
- Plak een stuk plasticine op een objectschuif en druk de pipetpunt erin zodat het linker- of rechteroog van de vlieg naar boven gericht is (figuur 7A). Gebruik vlak voor het verkrijgen van de afbeelding een laboratoriumpipet om een grote druppel gekoeld water aan de onderkant van een onderdompelingsdoel in water te hechten (figuur 7B). Ga onmiddellijk over tot beeldacquisitie voor het beste resultaat.
OPMERKING: Aanzienlijke vertraging in beeldacquisitie resulteert in ontwaken en bewegingen van de vlieg die kunnen leiden tot wazige beelden.
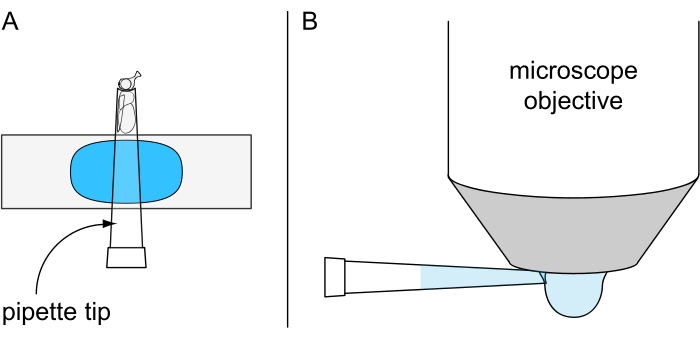
Figuur 7: Voorbereiding op niet-dodelijke waterdruppelmicroscopie. Illustratie van (A) een koud verdoofde vlieg bevestigd in een pipetpunt van 200 μL gemonteerd op een plasticine-gecoate objectglijbaan en (B) de toepassing van gekoelde waterdruppel aan de onderkant van het waterdompelingsobjectief. Klik hier om een grotere versie van deze figuur te bekijken.
- Beeldverwerving
- Plaats de petrischaal (stap 3.1.3) of de objectschuif (stap 3.1.7) met de voorbereide vlieg voorzichtig op het microscooppodium en selecteer een wateronderdompelingsobjectief.
- Verlaag de onderdompelingsdoelstelling voor water handmatig totdat deze in contact komt met het wateroppervlak (stap 3.1.3) of het oog van de vlieg de druppel raakt (stap 3.1.7) (figuur 8A,B).
- Schakel de microscoop UV-lamp in en selecteer de juiste filterset. Gebruik de oculairs om de vlieg onder het objectief te plaatsen en richt de microscoop op het oppervlak van het oog.
- Schakel het lichtpad naar de microscoopcamera en genereer een live beeld in de bijbehorende software. Pas de focus voor de camera aan en evalueer de oriëntatie van het oog, rekening houdend met het feit dat het oog radiaal naar het microscoopobjectief moet kijken, zoals in meer detail geïllustreerd in figuur 8C-E.
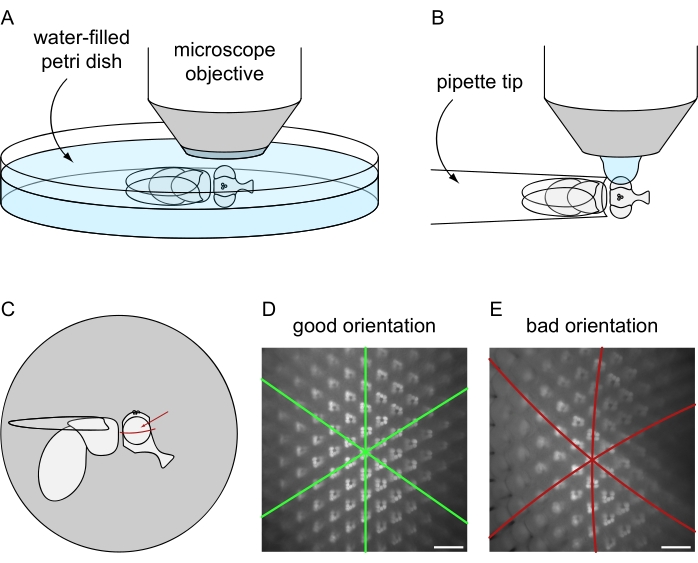
Figuur 8: Positionering van de vlieg onder de fluorescentiemicroscoop voor beeldvorming van wateronderdompeling. Opstelling en eindoriëntatie voor beeldverwerving met behulp van de (A) dodelijke of (B) niet-dodelijke vliegvoorbereidingsprotocollen. (C) Illustratie van vliegoriëntatie voor het verkrijgen van de beste resultaten van microscopiebeelden van onderdompeling in water. Het ideale punt om op het oog te focussen is niet het exacte centrum ten opzichte van de voorste/achterste en dorsale/ventrale assen, maar ligt iets boven de evenaar van het oog, zoals aangegeven door de rode pijl. (D) Voorbeeld van waterafdompelingsbeeld voor een perfect gepositioneerd oog. Alle drie de symmetrieassen van de zeshoekige ommatidiale tegels verschijnen als rechte lijnen en de maximale hoeveelheid ommatidia kan tegelijkertijd scherp zijn. (E) Voorbeeld van een onderdompelingsbeeld in water van een onjuist geplaatst oog. Het beeld bevat gebogen assen en een geringe scherptediepte. Schaalbalk: 20 μm. Klik hier om een grotere versie van deze figuur te bekijken.
- Gebruik de juiste LUT (look up table) in de imaging software om oververzadiging (aangegeven als rode pixels) te detecteren.
- In het geval van niet-gepigmenteerde vliegen, pas je de belichtingstijd zo aan dat de helderste pixels voor elke afbeelding net onder de verzadigingslimiet liggen.
- In het geval van gepigmenteerde vliegen en de dodelijke variatie, pas de belichtingstijd zodanig aan dat alle helderste pixels net onder de verzadigingslimiet liggen in ten minste vijf individuele 1 dag oude, aan het donker aangepaste vliegen. Pas de berekende gemiddelde blootstellingstijd toe op alle andere experimentele omstandigheden (genotypen, verlichtingsomstandigheden, tijdspunten, enz.).
- In het geval van gepigmenteerde vliegen (bijv. Roodogige) en de niet-dodelijke variatie, pas de belichtingstijd zodanig aan dat alle helderste pixels net onder de verzadigingslimiet liggen voor elke 1 dag oude, aan het donker aangepaste vlieg afzonderlijk. Pas deze belichtingstijd toe op alle andere experimentele omstandigheden (verlichtingsomstandigheden, tijdstippen, enz.) van deze vlieg.
- Neem een afbeelding op en sla deze op als een RAW-bestand om alle bijbehorende metagegevens van de opname te archiveren. Exporteer de afbeelding in een .tif indeling voor de volgende kwantificering.
OPMERKING: In het geval van de niet-dodelijke variatie, verlicht de vliegen gedurende 5 minuten met rood licht (bijv. 630 nm) onmiddellijk na beeldacquisitie, als ze bedoeld zijn om te worden gebruikt voor verdere experimenten. Rood licht deactiveert de fototransductiecascade die overmatig is geactiveerd door intens kortegolflicht tijdens beeldacquisitie.
- Data-analyse en kwantificering van relatieve eGFP-fluorescentie in de rhabdomeres van micrografieën voor onderdompeling in water
- Download, installeer en voer de software ImageJ/Fiji uit.
- Pas de ImageJ-instellingen aan door te klikken op Analyseren > Metingen instellen... en vink alleen het vakje voor Gemiddelde grijswaarde aan. Importeer een .tif afbeelding door op Bestand > Openen te klikken... of door te slepen en neer te zetten. Kies een representatief gebied van de afbeelding dat scherp is en vergroot het tot 200% -300% door herhaaldelijk op Ctrl en + samen te drukken .
- Selecteer het gereedschap Ovaal en terwijl u op de Shift-toets drukt, genereert u een cirkelvormige selectie in de afbeelding die aanzienlijk kleiner is dan één fluorescerend rhabdomere. Voordat u de muisknop loslaat, zoekt u naar de exacte grootte die wordt weergegeven onder de werkbalk in het hoofdvenster van ImageJ. Gebruik dezelfde grootte van circulaire selectie voor alle analyses.
OPMERKING: De exacte grootte van de cirkelvormige selectie in pixels of micron is afhankelijk van de specifieke instelling. Gebruik een cirkel ongeveer 1/3 of 1/4 van de rhabdomerale diameter van 1 dag oude, aan het donker aangepaste controlevliegen. - Verplaats de cirkelvormige selectie door er met de muis in te klikken en te slepen of door op de pijltoetsen op het toetsenbord te drukken.
- Om de fluorescentie-intensiteiten binnen de cirkelselectie te meten, verplaatst u de cirkel naar het eerste rhabdomere (r1) en klikt u op Analyseren > meten of gebruikt u de sneltoets Ctrl + M. Er verschijnt een venster Met de gemeten grijswaarde.
- Ga verder met metingen van r2-r6 als herhaalde metingen en een meting van het achtergrondsignaal (b). In het geval van niet-gepigmenteerde vliegen, voer aanvullende metingen uit van de overeenkomstige cellichaamsgebieden (c1-c6) (figuur 9).
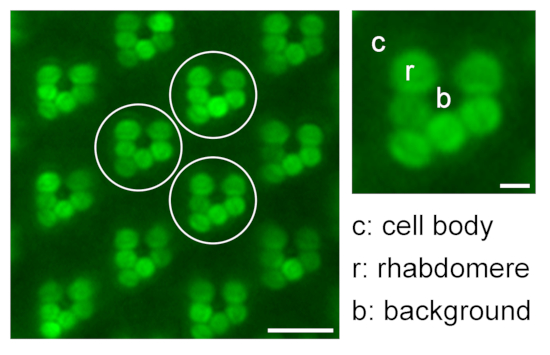
Figuur 9: Kwantificering van relatieve rabdomerale fluorescentie voor translocatiestudies. Een illustratie met betrekking tot de kwantificering van relatieve eGFP-fluorescentie in de rhabdomeres door het meten van de fluorescentie-intensiteit van rhabdomere (r), cellichaam (c) en achtergrond (b) van drie verschillende representatieve ommatidia (witte cirkels) in één wateronderdompelingsmicroscopiebeeld; schaalbalk: 10 μm. Rechts is een uitvergroot ommatidium afgebeeld; schaalbalk: 2 μm. Klik hier om een grotere versie van deze figuur te bekijken.
- Herhaal stap 3.3.5 en 3.3.6 voor nog twee ommatidia, wat resulteert in drie technische replicaties. Markeer de geanalyseerde ommatidia met behulp van het gereedschap Potlood en sla deze afbeelding op voor documentatie.
- Selecteer en kopieer de gemeten grijswaarden in het venster Resultaat en plak ze in spreadsheetsoftware voor verdere berekeningen. Sorteer de waarden van fluorescentie-intensiteit op basis van hun oorsprong in de categorieën rhabdomere (r), cellichaam (c) en achtergrond (b). Bereken de gemiddelde intensiteit van elke categorie (Ir, Ic, Ib).
- Bereken de relatieve hoeveelheid eGFP aanwezig in het rhabdomere (R), met behulp van de volgende formule (1) voor niet-gepigmenteerde en formule (2) voor gepigmenteerde ogen:
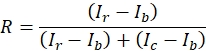 (1)
 (2)
- Ga verder met de volgende afbeelding in stap 3.3.3. Het wordt aanbevolen om beelden van ten minste vijf individuen van elke experimentele groep te gebruiken als biologische replicaties om een betrouwbare meting te krijgen.
- Data-analyse en kwantificering van oogmorfologie door eGFP-fluorescentie in wateronderdompelingsmicrografen
- Download, installeer en voer de ImageJ/Fiji software uit. Importeer een .tif afbeelding door op Bestand > Openen... te klikken of door te slepen en neer te zetten. Kies drie aangrenzende ommatidia in een representatief gebied van de afbeelding die scherp is.
- Evalueer de 18 rhabdomeres van de selectie afzonderlijk op basis van hun eGFP-intensiteit, randscherpte en contrast met betrekking tot het omringende achtergrondsignaal om een degeneratie-index te genereren. Scoor duidelijk zichtbare rhabdomeres met een waarde van 2, zwak zichtbare rhabdomeres met een waarde van 1 en afwezige rhabdomeres met een waarde van 0 (figuur 10).
OPMERKING: Deze manier van kwantificeren resulteert in een score van 36 voor volledig intacte ogen en een score van 0 voor volledig gedegenereerde ogen. Het wordt aanbevolen om de score van 36 tot 100% op de degeneratie-index in te stellen.
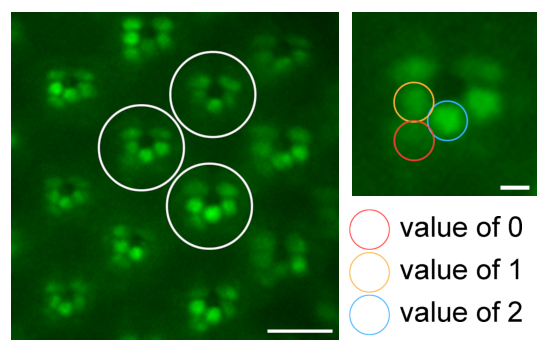
Figuur 10: Kwantificering via rabdomere evaluatie voor degeneratiestudies. Een illustratie met betrekking tot de kwantificering van de oogmorfologie door het scoren van de rhabdomeres van drie verschillende representatieve ommatidia (witte cirkels) in één waterdompelingsmicroscopiebeeld met waarden van 2 (duidelijk zichtbaar; blauwe cirkel), 1 (zwak zichtbaar; oranje cirkel) of 0 (afwezig; rode cirkel). Schaalbalk: 10 μm. Rechts is een uitvergroot ommatidium afgebeeld; schaalbalk: 2 μm. Klik hier om een grotere versie van deze figuur te bekijken.
- Open de volgende afbeelding en ga verder met stap 3.4.2. Het wordt aanbevolen om beelden van ten minste acht individuen van elke experimentele groep te gebruiken als biologische replicaties om een betrouwbare meting te krijgen.
OPMERKING: Aangezien deze kwantificeringsmethode minder objectief is dan de methode voor het kwantificeren van translocatie op basis van fluorescentie-intensiteit, is het aanbevolen aantal replicaties hoger.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Transgene Drosophila-vliegen die een TRPL::eGFP-fusie-eiwit tot expressie brengen onder controle van de rhodopsine 1-promotor zijn gegenereerd. In deze vliegen wordt TRPL::eGFP uitgedrukt in fotoreceptorcellen R1-6 van het samengestelde oog en geeft een verlichtingsafhankelijke lokalisatie weer. Wanneer vliegen in het donker worden gehouden, wordt TRPL::eGFP opgenomen in de buitenste rhabdomeres. Na enkele uren verlichting verplaatst TRPL zich naar het cellichaam waar het wordt opgeslagen in een ER-verrijkt comp...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
De toepasbaarheid van fluorescentie-eiwitten en de eenvoud van screening door DPP-beeldvorming en retinale waterdompelingsmicroscopie is door veel groepen12 succesvol gebleken. Strategieën vergelijkbaar met de hier gepresenteerde zijn gebruikt in verschillende genetische schermen om defecten in rhodopsine-expressieniveaus, homeostase, retinale organisatie of cellulaire integriteit te detecteren met behulp van Rh1: : eGFP17, 18, ...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
We willen onze student-onderzoekers door de jaren heen bedanken. In het bijzonder Nina Meyer, Sibylle Mayer, Juliane Kaim en Laura Jaggy, wiens gegevens in dit protocol zijn gebruikt als representatieve resultaten. Het hier gepresenteerde onderzoek van onze groep werd gefinancierd door subsidies van de Deutsche Forschungsgemeinschaft (Hu 839/2-4, Hu 839/7-1) aan Armin Huber.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
```html
```
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 15 mL centrifuge tube | Greiner Bio-One | 188271 | |
| CO2 anesthesie vliegpad | Flystuff | 59-172 | |
| Koudlichtlamp (KL 1500 LCD) | Zeiss | ||
| Fiji/ImageJ | NIH | ||
| Fluorescentiemicroscoop met UV-lamp, camera, filterset en software (AxioImager.Z1m, Axiocam 530 mono, 38 HE, ZEN2 blue edition) | Zeiss | ||
| Fluorescentiebuis (Lumilux T8, L 30W/840, 4000 K, G13) [1750 Lux, Ee470nm = 298 µW cm-2, Ee590nm = 215 µW cm-2] en [760 Lux, Ee470nm = 173 µW cm-2, Ee590nm = 147 µW cm-2] | Osram | 4050300518039 | |
| Laboratoriumpipet (20-200 µL) | Eppendorf | ||
| Objectglas | Roth | 0656.1 | |
| Petrischaal (94 mm) | Greiner Bio-One | 633102 | |
| Pipettips (200 µL) | Labsolute | 7695844 | |
| Plasticine (Blu-Tack) | Bostik | 30811745 | |
| Stereomicroscoop (SMZ445) | Nikon | ||
| Stereomicroscoop met UV-lamp, camera, filterset en software (MZ16F, MC170 HD, GFP3, LAS 4.12) | Leica |
Referenties
- Wang, X., Huang, T., Bu, G., Xu, H. Dysregulation of protein trafficking in neurodegeneration. Molecular Neurodegeneration. 9. 9, 31(2014).
- Schopf, K., Huber, A. Membrane protein trafficking in Drosophila photoreceptor cells. European Journal of Cell Biology. 96 (5), 391-401 (2017).
- Hardie, R. C. The photoreceptor array of the dipteran retina. Trends in Neurosciences. 9, 419-423 (1986).
- Wang, T., Montell, C. Phototransduction and retinal degeneration in Drosophila. Pflügers Archiv - European Journal of Physiology. 454 (5), 821-847 (2007).
- Xiong, B., Bellen, H. J. Rhodopsin homeostasis and retinal degeneration: lessons from the fly. Trends in Neurosciences. 36 (11), 652-660 (2013).
- Bähner, M., et al. Light-regulated subcellular translocation of Drosophila TRPL channels induces long-term adaptation and modifies the light-induced current. Neuron. 34 (1), 83-93 (2002).
- Cronin, M. A., Lieu, M. -H., Tsunoda, S. Two stages of light-dependent TRPL-channel translocation in Drosophila photoreceptors. Journal of Cell Science. 119, 2935-2944 (2006).
- Meyer, N., Joel-Almagor, T., Frechter, S., Minke, B., Huber, A. Subcellular translocation of the eGFP-tagged TRPL channel in Drosophila photoreceptors requires activation of the phototransduction cascade. Journal of Cell Science. 119, Pt 12 2592-2603 (2006).
- Oberegelsbacher, C., Schneidler, C., Voolstra, O., Cerny, A., Huber, A. The Drosophila TRPL ion channel shares a Rab-dependent translocation pathway with rhodopsin. European Journal of Cell Biology. 90 (8), 620-630 (2011).
- Wagner, K., Smylla, T. K., Lampe, M., Krieg, J., Huber, A. Phospholipase D and retromer promote recycling of TRPL ion channel via the endoplasmic reticulum. Traffic. , (2021).
- Franceschini, N., Kirschfeld, K. Les phénoménes de pseudopupille dans l'oeil compose de Drosophila. Kybernetik. 9 (5), 159-182 (1971).
- Pichaud, F., Desplan, C. A new visualization approach for identifying mutations that affect differentiation and organization of the Drosophila ommatidia. Development. 128 (6), 815-826 (2001).
- Smylla, T. K., Wagner, K., Huber, A. Application of fluorescent proteins for functional dissection of the Drosophila visual system. International Journal of Molecular Sciences. 22 (16), (2021).
- Meyer, N. Mechanisms of the light-dependent translocation of the ion channel TRPL in the photoreceptors of Drosophila melanogaster: Dissertation for obtaining the academic degree Dr. rer. nat. University of Karlsruhe (TH). , Karlsruhe. (2005).
- Meyer, N., Oberegelsbacher, C., Dürr, T. D., Schäfer, A., Huber, A. An eGFP-based genetic screen for defects in light-triggered subcelluar translocation of the Drosophila photoreceptor channel TRPL. Fly. 2 (1), 36-46 (2008).
- Zheng, L., Carthew, R. W. Lola regulates cell fate by antagonizing Notch induction in the Drosophila eye. Mechanisms of Development. 125 (1-2), 18-29 (2008).
- Hibbard, K. L., O'Tousa, J. E. A role for the cytoplasmic DEAD box helicase Dbp21E2 in rhodopsin maturation and photoreceptor viability. Journal of Neurogenetics. 26 (2), 177-188 (2012).
- Huang, Y., Xie, J., Wang, T. A Fluorescence-based genetic screen to study retinal degeneration in Drosophila. PloS One. 10 (12), 0144925(2015).
- Zhao, H., Wang, J., Wang, T. The V-ATPase V1 subunit A1 is required for rhodopsin anterograde trafficking in Drosophila. Molecular Biology of the Cell. 29 (13), 1640-1651 (2018).
- Xiong, L., et al. ER complex proteins are required for rhodopsin biosynthesis and photoreceptor survival in Drosophila and mice. Cell Death and Differentiation. 27 (2), 646-661 (2020).
- Zhao, H., Wang, T. PE homeostasis rebalanced through mitochondria-ER lipid exchange prevents retinal degeneration in Drosophila. PLoS Genetics. 16 (10), 1009070(2020).
- Cerny, A. C., et al. The GTP- and phospholipid-binding protein TTD14 regulates trafficking of the TRPL ion channel in Drosophila photoreceptor cells. PLoS Genetics. 11 (10), 1005578(2015).
- Richter, D. Structural and functional analyses of TRP ion channels in the photoreceptor cells of Drosophila melanogaster: Dissertation for obtaining the academic degree Dr. rer, nat. University of Karlsruhe (TH). , Karlsruhe. (2007).
- Gambis, A., Dourlen, P., Steller, H., Mollereau, B. Two-color in vivo imaging of photoreceptor apoptosis and development in Drosophila. Developmental Biology. 351 (1), 128-134 (2011).
- Hardie, R. C., Liu, C. -H., Randall, A. S., Sengupta, S. In vivo tracking of phosphoinositides in Drosophila photoreceptors. Journal of Cell Science. 128 (23), 4328-4340 (2015).
- Chakrabarti, P., et al. A dPIP5K dependent pool of phosphatidylinositol 4,5 bisphosphate (PIP2) is required for G-protein coupled signal transduction in Drosophila photoreceptors. PLoS Genetics. 11 (1), 1004948(2015).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
