De standaard membraanvoedingstest (SMFA) wordt beschouwd als de gouden standaard voor de beoordeling en identificatie van potentiële antimalariaverbindingen. Dit kunstmatige voedingssysteem wordt gebruikt om muggen te infecteren om de effecten van dergelijke verbindingen op de intensiteit en prevalentie van de Plasmodium falciparum-parasiet verder te evalueren.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Standaard membraanvoedingstest voor de detectie van Plasmodium falciparum-infectie in Anopheles Mosquito Vectors
In dit artikel
Samenvatting
Samenvatting
Malaria blijft een van de meest verwoestende ziekten ter wereld en tot op heden is de Afrikaanse regio nog steeds verantwoordelijk voor 94% van alle gevallen wereldwijd. Deze parasitaire ziekte vereist een protozoaire parasiet, een Anopheles-muggenvector en een gewervelde gastheer. Het geslacht Anopheles omvat meer dan 500 soorten, waarvan er 60 bekend staan als vectoren van de parasiet. Het geslacht Plasmodium-parasiet bestaat uit 250 soorten, waarvan er 48 betrokken zijn bij de overdracht van ziekten. Bovendien heeft de Plasmodium falciparum-parasiet de afgelopen jaren bijgedragen aan naar schatting 99,7% van de malariagevallen in Afrika ten zuiden van de Sahara.
Gametocyten maken deel uit van het seksuele stadium van de parasiet en worden ingenomen door de vrouwelijke mug bij het voeden met een geïnfecteerde menselijke gastheer. Verdere ontwikkeling van de parasiet in de mug wordt versterkt door gunstige omgevingsomstandigheden in het midden van de mug. Hier vindt de fusie van de vrouwelijke en mannelijke gameten plaats en ontstaan de beweeglijke ookineten. De ookineten komen het midgut-epitheel van de mug binnen en volwassen ookineten vormen oöcysten, die op hun beurt beweeglijke sporozoïeten produceren. Deze sporozoïeten migreren naar de speekselklieren van de mug en worden geïnjecteerd als een mug een bloedmaaltijd neemt.
Voor het ontdekken van geneesmiddelen werden muggen kunstmatig geïnfecteerd met met gametocyten geïnfecteerd bloed in de standaard membraanvoedingstest (SMFA). Om infectie in de mug op te sporen en/of de werkzaamheid van antimalariamiddelen te beoordelen, werden de midguts van de vrouwelijke muggen na infectie verwijderd en gekleurd met mercurochroom. Deze methode werd gebruikt om de visuele detectie van oöcysten onder de microscoop te verbeteren voor de nauwkeurige bepaling van oöcystenprevalentie en -intensiteit.
Inleiding
Malaria, bekend als een van de meest destructieve ziekten wereldwijd, vormt nog steeds een grote bedreiging voor verschillende landen - vooral die in de Afrikaanse regio - en draagt bij aan ongeveer 95% van de gevallen wereldwijd1. Deze ziekte wordt veroorzaakt door een protozoaire parasiet en samen met zijn Anopheles-muggenvector kunnen deze boosdoeners grote schade toebrengen aan de menselijke gastheer2. Meer specifiek is de falciparumsoort van het geslacht Plasmodium-parasiet verantwoordelijk voor naar schatting 99% van de malariagevallen in Afrika ten zuiden van de Sahara1. Daarnaast kunnen verschillende belangrijke Anopheles-muggenvectoren (waaronder An. gambiae Giles, An. arabiensis Patton, An. coluzzii Coetzee & Wilkerson sp.n. en An. funestus Giles) de schuld krijgen van meer dan 95% van de parasietoverdracht wereldwijd 3,4,5,6,7,8 . Om het ideale parasiet-vector gezelschap vast te stellen, moet de muggenvector vatbaar zijn voor de parasiet en in staat zijn om deze over te brengen9. Bovendien moeten zowel de vector als de parasiet fysieke barrières overwinnen om de perfecte infectieuze combinatie te vormen - de muggenvector moet de ontwikkeling van parasieten kunnen ondersteunen en de parasiet moet het vermogen hebben om de afweermechanismen van de gastheer te overwinnen10,11.
Gametocyten, het geslachtsstadium van de P. falciparumparasiet, spelen een cruciale rol bij het verbinden van de vector- en parasietpartners12. Seksuele ontwikkeling vindt plaats in vivo en gametocytogenese beschrijft het proces van de differentiatie van volwassen gametocyten in beweeglijke mannelijke microgameten en vrouwelijke macrogameten13. Een ander proces dat plaatsvindt in de mug is exflagellation - het proces waarbij de mannelijke gametocyt transformeert in gameten en tevoorschijn komt uit de rode bloedcellen die tijdens een bloed maaltijd worden opgenomen11. Het exflagelatieproces wordt verder gesuggereerd om te worden versterkt door een gunstige verandering in de omgeving van de mug midgut14. Na exflagellation wordt een zygote gevormd door de fusie van de mannelijke en vrouwelijke gameten13. Uit de zygote ontstaat een beweeglijk ookineet en verplaatst zich van het bloedmeel naar het epitheel van de mug midgut13. Hier rijpt de ookineet en wordt een oöcyst gevormd, die op zijn beurt beweeglijke sporozoïeten13,15 produceert. De sporozoïeten migreren vervolgens naar de speekselklieren van de mug en terwijl de mug een bloedmaaltijd van zijn gastheer neemt, worden deze sporozoïeten in de bloedbaan van de gastheer geïnjecteerd15.
Malariabestrijdingsinterventies, waarbij vectorcontrolestrategieën en het gebruik van effectieve antimalariamiddelen worden gecombineerd, zijn cruciaal geworden in de strijd tegen deze ziekte15. Met een toename van parasiet- en muggenresistentie neemt de urgentie voor de identificatie van nieuwe antimalariaverbindingen toe16. Daarom is de in vivo evaluatie van transmissieblokkerende verbindingen belangrijk16. Na de ontwikkeling van dergelijke effectieve transmissieblokkerende geneesmiddelen is de SMFA gebruikt om te beoordelen of deze verbindingen de seksuele ontwikkeling van P. falciparum in de Anopheles-mug 17,18,19 remmen. Deze test heeft sinds de jaren 1970-1980 erkenning gekregen als de gouden standaard voor het evalueren van transmissieblokkering 20,21. Deze test biedt een goedkoper alternatief dan andere assays zoals RT-qPCR, waarvoor gespecialiseerde apparatuur nodig is. Verder zijn er geen patiënten nodig om de experimenten uit te voeren. Deze test omvat ook de levering van gametocyt-geïnduceerd bloed aan vrouwelijke muggen, die vervolgens worden ontleed om te evalueren of oöcystontwikkeling aanwezig is21. Dit maakt gametocytenkwantificering en de detectie van misvormde oöcysten mogelijk vanwege de verbindingen22. Om een verbinding als effectief te classificeren, moeten de prevalentie (het aandeel muggen dat ten minste één oöcyst in het midgut herbergt) en het aantal oöcysten (intensiteit) in het muggenmiddendarm worden geëvalueerd om infectieremming 17,21,22 te beoordelen.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Zie figuur 1 voor een illustratie van het protocol. Ethische goedkeuring werd verkregen van de Ethische Commissie gezondheidswetenschappen van de Universiteit van Pretoria (506/2018) voor het terugtrekken en gebruiken van menselijk bloed.
1. Gametocytencultuur
OPMERKING: Voorafgaand aan het opzetten van de SMFA werd een gametocytencultuur voorbereid aan de Universiteit van Pretoria (zie Reader et al.22 voor het volledige protocol).
- Bereid een gametocytencultuur voor die bestaat uit stadium V-gametocyten van de NF54-parasietenstam.
- Zorg ervoor dat de gametocytemie van de cultuur tussen 1,5% en 2,5% ligt, met een 50% hematocriet in A + mannelijk serum, waaraan verse rode bloedcellen worden toegevoegd.
- Scheid de cultuur in verschillende kolven en voeg 48 uur voorafgaand aan het uitvoeren van de SMFA 2 μM van elke verbinding toe voor elke respectieve behandeling. Laat de controlegroep onbehandeld.
- Beoordeel de gametocytencultuur kort voordat de SMFA wordt uitgevoerd om de exflagelatie van mannelijke gameten te garanderen, met de aanwezigheid van een 3: 1 vrouw: man-verhouding.
2. Kunstmatige infectie van muggen via de SMFA
OPMERKING: Bioveiligheid: geïnfecteerde muggen moeten worden gehuisvest in een bioveiligheidsniveau 2 (BSL2) -faciliteit met beperkte toegang.
- Plaats met behulp van een mondaspirator 25 ongevoede vrouwelijke An. gambiae muggen in een voedingsbeker van 350 ml. Doe hetzelfde voor elke behandelingsbeker en label de cups duidelijk op basis van of ze moeten worden gebruikt als controle- of behandelingsgroepen. Kies het aantal kopjes per behandeling op basis van het aantal technische replica's dat is inbegrepen.
OPMERKING: Koloniemuggen tussen 5 en 7 dagen oud worden gebruikt in een typische transmissieblokkerende samengestelde evaluatie. Het uithongeren van muggen gedurende 3-4 uur of langer voorafgaand aan de bloedvoeding zal de opname van bloed tijdens SMFA vergemakkelijken. - Sluit het glazen invoersysteem aan op het waterbad en houd de temperatuur op 37 °C.
OPMERKING: De glazen feeder bestaat uit twee armen, die zijn verbonden met de siliconen slang waarop het waterbad is aangesloten (figuur 2). De holle structuur van de feeder laat water circuleren door en onderhoud van de temperatuur van het bloed. - Bereid de darm van de koe (of het synthetische membraan) voor door het in leidingwater te spoelen en in stukken te snijden die voor elke feeder zijn aangebracht. Bedek elke feeder en bevestig het membraan met een elastische band.
OPMERKING: Er was geen ethische goedkeuring nodig voor de darm, omdat het werd gekocht bij een lokale slagerij, waar het aan het publiek wordt verkocht voor voedselbereiding. - Plaats de infectiebekers onder de feeders, waarbij het membraan bovenop het net van de beker ligt.
- Voeg 1 ml met gametocyten geïnfecteerd bloed toe aan de feeders van de controlebekers en met gametocyten geïnfecteerd bloed met toegevoegde verbinding aan elke overeenkomstige mengvoeder en beker.
- Laat de muggen ongeveer 40 minuten voeden met de feeders onbedekt.
OPMERKING: Voedingen vinden plaats onder insectaire omstandigheden (25 °C, 80% relatieve vochtigheid) in het donker. De diameter van een feeder is ongeveer 13 mm. - Verwijder na het voeden de feeders uit de kopjes, spoel de feeders en behandel het overtollige bloed met hypochloriet.
- Verwijder de ongevoede muggen uit de beker door alle muggen op ijs te slaan (gedurende 1-2 minuten) en de niet-gevoede muggen te scheiden van degenen die een bloedmeel hebben genomen. Zoek naar gezwollen en rode buiken (die bloed aangeven) om de gevoede, volledig opgezwollen muggen te onderscheiden van de niet-gevoede muggen (figuur 3).
- Plaats de infectiebekers in de bioveiligheidskamer (aanvullende figuur S1) en voorzie elke beker van een 10% suikerwaterpad, waarbij het suikerwater op alternatieve dagen gedurende 8-10 dagen wordt vervangen.
3. Voorbereiding van geïnfecteerde muggen
OPMERKING: Dit deel van het protocol vindt plaats binnen de BSL2-infectieruimte. Alleen geautoriseerd, getraind personeel mag de infectiekamer betreden waar geïnfecteerde muggen zijn gehuisvest. Muggen worden bewaard in gemodificeerde bekers die slechts één toegangspunt bevatten, dat automatisch wordt afgesloten wanneer de mondaspirator wordt verwijderd. Deze bekers worden in een transparante, thermoplastische container geplaatst om ontsnapping te voorkomen. De container bevindt zich in de infectieruimte achter een dubbeldeurssysteem. Alle noodzakelijke protocollen moeten aanwezig zijn voor accidentele blootstelling aan geïnfecteerde muggen (Supplemental File S1). De protocollen zijn landspecifiek en afhankelijk van de vereisten van de instelling.
- Op dag 8-10 na infectievoeding, sla de geïnfecteerde muggen neer door ze op ijs te plaatsen en ze over te brengen naar gelabelde buizen met 70% ethanol (waardoor de muggen van elke controle- en behandelingsgroep gescheiden blijven).
- Zorg ervoor dat alle muggen dood zijn voordat u de infectieruimte verlaat.
4. Dissecties van geïnfecteerde muggen
OPMERKING: Dit deel van het protocol wordt uitgevoerd in het laboratorium.
- Breng de muggen over in gelabelde petrischalen bekleed met filterpapier, waarbij de controle- en testgroepen gescheiden blijven.
- Plaats een druppel fosfaatgebufferde zoutoplossing (PBS) op een microscoopglaasje (gemarkeerd volgens de controle-/testgroep) en breng een individuele mug over van het filterpapier naar de PBS.
- Verwijder het midgut uit het geïmmobiliseerde, geïnfecteerde monster door de thorax van de mug vast te pinnen met de ontleednaald terwijl u het7e buiksegment met de tang trekt.
- Met de darm die wordt blootgesteld en zichtbaar, zoekt u naar de Malpighian tubuli (figuur 4A, B) om de darm van de eierstokken te onderscheiden. Verwijder het uit de PBS, breng het over naar een druppel van 0,1% mercurochroom op een nieuwe microscoopglaasje en laat de darm 8-10 minuten vlekken.
- Plaats na het kleuren een coverslip op de gekleurde darm en bekijk de darm onder brightfield-verlichting bij 20x-40x vergroting (figuur 4C, D).
- Noteer de aanwezigheid van en het aantal oöcysten per midgut voor elke controle- en behandelingsgroep (Aanvullend dossier S2).
- Bereken de transmissieblokkadeactiviteit met behulp van vergelijking (1):
%TBA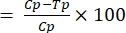 (1)
waarbij TBA = transmissieblokkerende activiteit (vermindering van de oöcystenprevalentie); p = oöcystenprevalentie; C = controle; en T = behandeling. - Bereken de transmissiereducerende activiteit met behulp van vergelijking (2):
%TRA = (2)
waarbij TRA = transmissiereducerende activiteit (vermindering van oöcystintensiteit); I = oöcystintensiteit; C = controle; en T = behandeling.
OPMERKING: De TBA is mogelijk niet significant verminderd, maar er kan een significant verschil worden waargenomen in de TRA en vice versa. Dit is afhankelijk van het chemische materiaal dat wordt geëvalueerd. - Statistische analyse uitvoeren met behulp van de niet-parametrische t-test (Mann-Whitney).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Het totale aantal ontleedde controlemonsters was 47, met een gemiddelde tot 89% prevalentie en een intensiteit van 9,5 oöcysten per midgut (tabel 1, zoals eerder gepubliceerd22). Voor de verbinding MMV1581558 bereikte de steekproefomvang een totaal van 42 exemplaren, met een oöcystenprevalentie van 36% en een gemiddelde intensiteit van 1,5 oöcysten. Dit toont een vermindering van de oöcystenprevalentie van 58% en een TRA van 82% voor alle drie de biologische replicaties (t...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Om dit protocol met succes uit te voeren, moet aandacht worden besteed aan elke stap, ook al kan het een vervelend en moeizaam proces zijn. Een van de belangrijkste stappen is ervoor te zorgen dat de gametocytencultuur van goede kwaliteit is en dat deze bestaat uit volwassen gametocyten, met de juiste man/vrouw-verhouding, voordat de SMFA23,24 wordt gestart. Tijdens de SMFA is het ook cruciaal om de gametocytencultuur op de juiste temperatuur te houden om te voor...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben geen belangenconflicten te onthullen.
Dankbetuigingen
De auteurs willen Graag Onze erkentelijkheid betuigen. Lyn-Mari Birkholtz en Dr. Janette Reader van de afdeling Biochemie, Genetica en Microbiologie, Instituut voor Duurzame Malariabestrijding, aan de Universiteit van Pretoria, voor het kweken en leveren van de gametocytencultuur. De parasiestam is verkregen van deze laatste afdeling (geen onderdeel van deze publicatie). Het Department of Science and Innovation (DSI) en de National Research Foundation (NRF); South African Research Chairs Initiative (UID 64763 tot LK en UID 84627 tot LMB); de NRF Communities of Practice (UID 110666 aan LMB en LK); en de South African Medical Research Council Strategic Health Innovation Partnerships (SHIP) zijn ook erkend voor fondsen van de DSI.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Bovine intestine/ | Slachterij | ||
| Compound MMV1581558 | MMV | Pandemie-responsbox | |
| Dissectie naalden | WRIM | Op maat gemaakt | |
| Falcon tube | Lasec | ||
| Glazen voeder | Glastechniek Peter Coelen B.V. | ||
| Graphpad Prism (8.3.0) | Graphpad | ||
| Mercurochrome | Merck (Sigma-Aldrich) | 129-16-8 | |
| Microscoopglaasjes | Merch (Sigma-Aldrich) | S8902 | |
| Parafilm | Cleansafe | ||
| PBS-tabletten | ThermoFisher Scientific | BP2944 | |
| Perspex bioveiligheidskast | Wits University | Gemaakt door de aannemers bij Wits | |
| Kunststof bekers (350 mL) | Plastic Land |
Referenties
- World Malaria Report. World Health Organization. , Available from: https://www.who.int/publications/i/item/9789240040496 (2021).
- Takken, W., Verhulst, N. O. Host preferences of blood feeding mosquitoes. Annual Review of Entomology. 58, 433-453 (2013).
- Gillies, M. T., Coetzee, M. Supplement to the Anophelinae of Africa south of the Sahara Afrotropical region. Publications of the South African Institute for Medical Research. 55, 1(1987).
- Gillies, M. T., De Meillon, B. The Anophelinae of Africa south of the Sahara. Publications of the South African Institute for Medical Research. 54, (1968).
- Antonio-Nkondjio, C., et al. Complexity of the malaria vectorial system in Cameroon: contribution of secondary vectors to malaria transmission. Journal of Medical Entomology. 43, 1215-1221 (2006).
- Sinka, M. E., et al. The dominant Anopheles vectors of human malaria in Africa, Europe and the Middle East: occurrence data, distribution maps and bionomic précis. Parasites and Vectors. 3, 117(2010).
- Coetzee, M., Hunt, R. H., Wilkerson, R., Della Torre, A., Coulibaly, M. B., Besansky, N. J. Anopheles coluzzii and Anopheles amharicus, new members of the Anopheles gambiae complex. Zootaxa. 3619, 246-274 (2013).
- Kyalo, D., Amratia, P., Mundia, C. W., Mbogo, C. M., Coetzee, M., Snow, R. W. A geo-coded inventory of anophelines in the Afrotropical Region south of the Sahara: 1898-2016. Wellcome Open Research. 2, 57(2017).
- Cohuet, A., Harris, C., Robert, V., Fontenille, D. Evolutionary forces on Anopheles: What makes a malaria vector. Trends in Parasitology. 309, (2009).
- Weathersby, A. B. The role of the stomach wall in the exogenous development of Plasmodium gallinaceum as studies by means of haemocoel injections of susceptible and refractory mosquitoes. The Journal of Infectious Diseases. 91, 198-205 (1952).
- Ally, A. S. I., Vaughan, A. M., Kappe, S. H. I. Malaria parasite development in the mosquito and infection of the mammalian host. The Annual Review of Microbiology. 63, 195-221 (2009).
- Delves, M. J., et al. Male and female Plasmodium falciparum mature gametocytes show different responses to antimalarial drugs. American Society for Microbiology Journal. , (2013).
- Sinden, R. E. Sexual development of malarial parasites in their mosquito vector. Transactions of the Royal Society of Tropical Medicine and Hygiene. 75, (1981).
- Garcia, G. E., Wirtz, R. A., Barr, J. R., Woolfitt, A. Xanthurenic acid induces gametogenesis in Plasmodium, the malaria parasite. Journal of Biological Chemistry. 15, 12003-12005 (1998).
- Oaks, S. C. Jr, Mitchell, V. S., Pearson, G. W., et al. Malaria: Obstacles and Opportunities. , National Academic Press. ISBN 0-309-54389-4 (1991).
- Le Manach, C., et al. Identification and profiling of a novel Diazaspirol[3.4]octane chemical series active against multiple stages of the human malaria parasite Plasmodium falciparum and optimization efforts. Journal of Medicinal Chemistry. 64, 2291-2309 (2021).
- Cibulskis, R. E., et al. Malaria: global progress 2000-2015 and future challenges. Infect Diseases of Poverty. 5, 61(2016).
- Smith, T. A., Chitnis, N., Briet, O. J., Tanner, M. Uses of mosquito-stage transmission-blocking vaccines against Plasmodium falciparum. Trends in Parasitology. 27, 190-196 (2011).
- Boyd, M. F. Epidemiology: factors related to the definitive host. Malariology. Boyd, M. F. , W.B. Saunders. Philadelphia. 608-697 (1949).
- Ponnudurai, T., van Gemert, G. J., Bensink, T., Lensen, A. H., Meuwissen, J. H. Transmission blockade of Plasmodium falciparum: its variability with gametocyte numbers and concentration of antibody. Transactions of The Royal Society of Tropical Medicine. 81, 491-493 (1987).
- Rutledge, L. C., Ward, R. A., Gould, D. J. Studies on the feeding response of mosquitoes to nutritive solutions in a new membrane feeder. Mosquito News. 24 (4), (1964).
- Reader, J., et al. Multistage and transmission-blocking targeted antimalarials discovered from the open-source MMV Pandemic Response Box. Nature Communications. 12, 269(2021).
- Bousema, T., et al. Mosquito feeding assays for natural infections. PLoS One. 7 (8), (2012).
- Churcher, T., et al. Measuring the blockade of malaria transmission - An analysis of the standard membrane feeding assay. International Journal for Parasitology. 42, 1037-1044 (2012).
- Medley, G. F., et al. Heterogeneity in patterns of malarial oocyst infections in the mosquito vector. Parasitology. 106, 441-449 (1993).
- Miura, K., et al. Transmission-blocking activity is determined by transmission reducing activity and number of control oocysts in Plasmodium falciparum standard membrane-feeding assay. Vaccine. 34, 4145-4151 (2016).
- Sattabongkot, J., Maneechai, N., Rosenberg, R. Plasmodium vivax: gametocyte infectivity of naturally infected Thai adults. Parasitology. 102 (01), 27-31 (1991).
- Vallejo, A. F., Garcia, J., Amado-Garavito, A. B., Arevalo-Herrera, M., Herrera, S. Plasmodium vivax gametocyte infectivity in sub-microscopic infections. Malaria Journal. 15 (1), 48(2016).
- Ponnudurai, T., Lensen, A. H. W., van Gemert, G. J. A., Bolmer, M. G., Meuwissen, J. H. E. Feeding behavior and sporozoite ejection by infected Anopheles stephensi. Transactions of the Royal Society of Tropical Medicine and Hygiene. 85, 175-180 (1991).
- Miura, K., et al. Qualification of standard membrane-feeding assay with Plasmodium falciparum malaria and potential improvements for future assays. PLoS One. 8, 57909(2013).
- Griffin, P., et al. Safety and reproducibility of a clinical trial system using induced blood stage Plasmodium vivax infection and its potential as a model to evaluate malaria transmission. PLoS Neglected Tropical Diseases. 10, 0005139(2016).
- Delves, M. J., Sinden, R. E. A semi-automated method for counting fluorescent malaria oocysts increases the throughput of transmission blocking studies. Malaria Journal. 9, 35(2010).
- vander Kolk, M., et al. Evaluation of the standard membrane feeding assay (SMFA) for the determination of malaria transmission-reducing activity using empirical data. Parasitology. 130, 13-22 (2005).
- van der Kolk, M., de Vlas, S. J., Sauerwein, R. W. Reduction and enhancement of Plasmodium falciparum transmission by endemic human sera. International Journal for Parasitology. 36, 1091-1095 (2006).
- Singh, M., et al. Plasmodium's journey through the Anopheles mosquito: A comprehensive review. Biochimie. 181, 176-190 (2021).
- Vos, M. W., et al. A semi-automated luminescence based standard membrane feeding assay identifies novel small molecules that inhibit transmission of malaria parasites by mosquitoes. Scientific Reports. 5, 18704(2015).
- Azevedo, R., et al. Bioluminescence method for in vitro screening of Plasmodium transmission-blocking compounds. Antimicrobial Agents and Chemotherapy. 61, (2017).
- Okell, L. C., Bousema, T., Griffin, J. T., Ouedraogo, A. L., Ghani, A. C., Drakeley, C. J. Factors determining the occurrence of submicroscopic malaria infections and their relevance for control. Nature Communications. 3, 1237(2012).
- Pasay, C. J., et al. Piperaquine monotherapy of drug-susceptible Plasmodium falciparum infection results in rapid clearance of parasitemia but is followed by the appearance of gametocytemia. The Journal of Infectious Diseases. 214, 105-113 (2016).
- Stone, W. J., et al. A scalable assessment of Plasmodium falciparum transmission in the standard membrane-feeding assay, using transgenic parasites expressing green fluorescent protein-luciferase. The Journal of Infectious Diseases. 210, 1456-1463 (2014).
- Hasan, A. U., et al. Implementation of a novel PCR based method for detecting malaria parasites from naturally infected mosquitoes in Papua New Guinea. Malaria Journal. 8, 182(2009).
- Stone, W. J., et al. The relevance and applicability of oocyst prevalence as a read-out for mosquito feeding assays. Scientific Reports. 3, 3418(2013).
- Marquart, L., Baker, M., O'Rourke, P., McCarthy, J. S. Evaluating the pharmacodynamic effect of antimalarial drugs in clinical trials by quantitative PCR. Antimicrobial Agents and Chemotherapy. 59, 4249-4259 (2015).
- McCarthy, J. S., et al. tolerability, pharmacokinetics, and activity of the novel long-acting antimalarial DSM265: a two-part first-in-human phase 1a/1b randomised study. TheLancet Infectious Diseases. 17, 626-635 (2017).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
