Hier presenteren we een goedkope kwantitatieve methode die gebruik maakt van deuteriumoxide en gaschromatografie massaspectrometrie (GCMS) voor de analyse van totaal vetzuur de novo lipogenese in bruin vetweefsel in vivo.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Kwantitatieve bepaling van de novo vetzuursynthese in bruin vetweefsel met behulp van deuteriumoxide
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Vetzuursynthese is een complexe en zeer energieverslindende metabole route met een belangrijke functionele rol bij de controle van de metabole homeostase van het hele lichaam en andere fysiologische en pathologische processen. In tegenstelling tot andere belangrijke metabole routes, zoals glucoseverwijdering, wordt de vetzuursynthese niet routinematig functioneel beoordeeld, wat leidt tot onvolledige interpretaties van de metabole status. Bovendien is er een gebrek aan openbaar beschikbare gedetailleerde protocollen die geschikt zijn voor nieuwkomers in het veld. Hier beschrijven we een goedkope kwantitatieve methode die gebruik maakt van deuteriumoxide en gaschromatografie massaspectrometrie (GCMS) voor de analyse van de novo synthese van totale vetzuren in bruin vetweefsel in vivo. Deze methode meet de synthese van de producten van vetzuursynthase onafhankelijk van een koolstofbron, en is potentieel nuttig voor vrijwel elk weefsel, in elk muismodel en onder elke externe verstoring. Details over de monstervoorbereiding voor GCMS en stroomafwaartse berekeningen worden verstrekt. We richten ons op de analyse van bruin vet vanwege de hoge niveaus van de novo vetzuursynthese en de cruciale rol bij het handhaven van metabole homeostase.
Inleiding
Obesitas en bijbehorende stofwisselingsziekten zijn een pandemie die huidige en toekomstige generaties in gevaar brengt 1,2. Algemeen vereenvoudigd als gevolg van de onbalans tussen energie-inname en -verbruik, beïnvloedt de metabole ontregeling die gepaard gaat met obesitas een groot aantal metabole routes die worden gecontroleerd door omgevings- en endogenefactoren3. Er zijn echter maar een paar routes die routinematig worden getest in diermodellen van metabole ontregeling.
De verwijdering van glucose wordt bijvoorbeeld routinematig gemeten door middel van glucose- en insulinetolerantietests, waarschijnlijk vanwege de eenvoud van het gebruik van draagbare glucosemeters4. De relatieve snelheid van glucose en lipide-oxidatie in het hele lichaam wordt ook routinematig geschat op basis van de respiratoire uitwisselingsratio van indirecte calorimetrietests 5,6. De meeste andere aspecten van het metabolisme worden echter niet routinematig functioneel beoordeeld. Dit leidt tot onvolledige interpretaties van de metabole status en gemiste therapeutische opties. Een van de belangrijkste dergelijke routes is de novo lipogenese.
De novo lipogenese (DNL) is het proces waarbij nieuwe vetzuren worden gegenereerd uit voorlopers. Glucose wordt beschouwd als de belangrijkste precursor die bijdraagt aan DNL7 voor het hele lichaam, maar van andere precursoren, zoals acetaat, fructose, lactaat en aminozuren met vertakte ketens, is aangetoond dat ze relevante koolstofbronnen zijn op een ruimtelijke en conditieafhankelijke manier 8,9,10,11,12. DNL levert een belangrijke bijdrage aan de metabole homeostase en is essentieel voor een normale ontwikkeling13. Bovendien zijn veranderingen in DNL in verband gebracht met kanker 14,15 en metabole 16,17,18 en hart- en vaatziekten 19,20.
De DNL-route bestaat uit de belangrijkste enzymatische componenten ATP-citraatlyase (ACLY), acetyl-CoA-carboxylase (ACC1/2) en vetzuursynthase (FAS) die voornamelijk palmitaat produceren, een verzadigd vetzuur met 16 koolstofatomen. Oneven ketens en vetzuren met vertakte ketens kunnen echter ook met lagere snelheden wordengeproduceerd9. Elongases en desaturasen modificeren deze vetzuren verder, waardoor een breed scala aan vetzuren ontstaat die nuttig zijn voor een verscheidenheid aan functies (bijv. energieopslag op lange termijn en manipulatie van de membraanvloeibaarheid).
De expressie van de DNL-enzymatische machinerie wordt gecontroleerd door een klein aantal transcriptiefactoren. De meest beschreven tot nu toe zijn de familie van sterolregulerende elementbindende eiwitten (SREBP), koolhydraatresponselementbindende eiwitten (ChREBP) en lever-X-receptoren (LXR)21,22,23,24,25,26. Ondanks een schijnbare overlapping in hun functies, zijn individuele regulaties op basis van celtypedominantie en fysiologische of pathologische aandoeningen gerapporteerd21,22,27,28.
Opmerkelijk is dat een aantal remmers voor geselecteerde stappen van de DNL-route zijn goedgekeurd voor klinisch gebruik of zich in de preklinische of klinische ontwikkelingsstadia bevinden voor een aantal ziekten, waaronder obesitas, niet-alcoholische leververvetting/niet-alcoholische steatohepatitis (NAFLD/NASH) en hart- envaatziekten. Deze inspanningen onderstrepen de relevantie van DNL voor gezondheid en ziekte.
In de afgelopen jaren is het gebruik van methoden om de novo vetzuursynthese kwantitatief te beoordelen toegenomen30. De meest gebruikelijke methode om dit te beoordelen is het gebruik van zwaar gelabeld water (D2O), waarbij de zwaar gelabelde waterstof tijdens de synthese zowel direct als indirect wordt opgenomen in acylketens, via deuteriumuitwisseling met de waterstofatomen van de DNL-substraten NAPDH, acetyl-CoA en malonyl-CoA. Hoewel deze aanpak aan populariteit wint, is er een gebrek aan openbaar beschikbare gedetailleerde protocollen die geschikt zijn voor nieuwkomers in het veld. Hier schetsen we een methode voor het kwantitatief beoordelen van de de novo synthese van FAS-producten met behulp van D2O en gaschromatografie massaspectrometrie (GCMS), met berekeningen die eerder zijn ontwikkeld door Lee et al.31. Deze methode meet de novo vetzuursynthese onafhankelijk van een koolstofbron, en is potentieel bruikbaar voor vrijwel elk weefsel, in elk muismodel en onder elke externe verstoring. Hier richten we ons op de analyse van bruin vetweefsel (BAT) vanwege de hoge niveaus van DNL en de cruciale rol bij het handhaven van metabole homeostase.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Alle experimenten werden goedgekeurd door de Institutional Animal Care and Use Committee van het Cincinnati Children's Hospital Medical Center.
1. Bereiding van D2O
OPMERKING: Om experimentele variatie te voorkomen, moet u voldoende oplossing/drinkwater bereiden voor alle muizen voor de duur van het experiment.
- Voor intraperitoneale injectie: genereer 0,9% w/v zoutoplossing D 2 O door 9 g NaCl op te lossen per liter D 2 O. Filtreerdoor een niet-pyrogeen filter van0,2μm om te steriliseren.
- Voor het drinken van D 2 O-water: genereer 8% v/v D2 O-verrijkt water dat als drinkwater kan worden gebruikt door 80 ml D2O per 920ml gewoon drinkwater te mengen. Regulier drinkwater kan worden verkregen uit de muizenfaciliteit. Filtreer door een niet-pyrogeen filter van 0,2 μm om te steriliseren.
2. Modulatie van de BBT-activiteit door temperatuuracclimatisatie
- Scheid de muizen zodat er 2 weken voor het begin van de temperatuuracclimatisatie twee muizen per kooi zijn. Verander de watertoevoer naar waterflessen zodat de muizen zich kunnen aanpassen aan alle kooien en deze op 22 °C kunnen houden.
- Bereid de muiskamers 1 week voor aanvang van de temperatuuracclimatisatie voor door de juiste temperaturen in te stellen: 30 °C voor thermoneutraliteit, 22 °C voor kamertemperatuur en 18 °C voor blootstelling aan koude.
- Vervang aan het begin van de temperatuuracclimatisatie de kooien door nieuwe zonder omgevingsverrijking (om nesten te voorkomen). Verplaats de kooien naar hun respectievelijke temperaturen.
OPMERKING: Kooien die zijn toegewezen aan thermoneutraliteit blijven gedurende 4 weken op 30 °C. Kooien die op kamertemperatuur zijn toegewezen, blijven gedurende 4 weken op 22 °C. Kooien die zijn toegewezen aan blootstelling aan kou worden geleidelijk kouder volgens een wekelijks schema: 18 °C voor de eerste week, 14 °C voor de tweede week, 10 °C voor de derde week en 6 °C voor de vierde week. - Vervang vuile kooien wekelijks voor alle omstandigheden. Vervang bovendien voedsel- en waterflessen door nieuwe die vooraf zijn aangepast op de juiste temperatuur gedurende ten minste 24 uur.
OPMERKING: Houd rekening met de hoeveelheden voedsel die elke week worden toegevoegd, vooral voor muizen in de kou, omdat ze een aanzienlijk grotere hoeveelheid voedsel zullen consumeren in vergelijking met normale omstandigheden. Zorg voor voedsel ad libitum.
3. Toediening van D2O
- Injecteer elk dier met 0,9% g/v zoutoplossing-D2O bij 35 μl/g lichaamsgewicht, 12 uur tot 3 dagen vóór de afname van het weefsel, via intraperitoneale injectie met behulp van een spuit van 1 ml en een naald van 26 g.
OPMERKING: Zie het discussiegedeelte voor meer informatie over het selecteren van een geschikte etiketteringstijd. - Vervang de waterflessen door flessen met 8% v/v D2O verrijkt drinkwater.
4. Verzameling, verwerking en opslag van plasma en weefsel
- Aan het einde van het experiment offert u de muizen op met behulp van goedgekeurde methodologieën (bijv. overdosis kooldioxide gevolgd door cervicale dislocatie).
- Gebruik warmte-/koelpads of andere methoden om plotselinge temperatuurveranderingen vóór euthanasie te voorkomen die de resultaten kunnen beïnvloeden. Euthanaseer de muizen volgens goedgekeurde methodologieën. Ga onmiddellijk verder met het verzamelen van bloed en weefsel.
- Verzamel bloed door middel van een hartpunctie met behulp van een naald van 26 G en bewaar het in een ethyleendiaminetetra-azijnzuur bloedafnamebuisje. Bewaar het bloed op ijs tot verdere verwerking.
- Snijd de huid open langs de middelste lijn van de rug van de muis vanaf het onderste deel van de borstholte tot aan het bovenste deel van de nek, terwijl u de huid omhoog trekt om te voorkomen dat de weefsels onder de huid worden aangetast. De interscapulaire BAT bevindt zich tussen de schouderbladen onder een dunne laag wit vetweefsel en bestaat uit twee piramidale lobben.
- Reinig het weefsel door het te wassen in ijskoude fosfaatgebufferde zoutoplossing (PBS). Dep op een papieren handdoek om overtollige vloeistof te verwijderen, weeg op een analytische weegschaal en verzamel in een microbuisje.
- Vries het weefsel onmiddellijk in met vloeibare stikstof. Ook andere BBT-depots kunnen worden opgehaald.
- Centrifugeer de bloedmonsters bij 10.000 x g gedurende 10 minuten bij 4 °C. Verzamel het plasma na het centrifugeren voorzichtig zonder de rode bloedcelkorrel te verstoren. Breng het over naar een nieuwe ijskoude microbuis en vries het snel in vloeibare stikstof in.
- Bewaar bruine vet- en plasmamonsters bij -80 °C tot gebruik.
5. Lipide-extractie uit vetweefsel
- Voordat u met de extractie begint
- Bereid een 1 mM-oplossing van hexadeceenzuur31 in methanol in een glazen injectieflacon. Dit zal dienen als de interne vetzuurstandaard.
- Koel de benodigde hoeveelheid chloroform (CHCl 3) en methanol (CH3OH) voor in een vriezer van -80 °C of op droogijs.
OPMERKING: De antioxidant di-tert-butyl-4-methylfenol (BHT) kan aan deCHCl 3 worden toegevoegd in een concentratie van 0,01% g/v (2,5 mg/25 ml) om oxidatie van de dubbele bindingen in onverzadigde vetzuren te voorkomen. - Pre-label microcentrifugebuisjes voor elk weefselmonster en een extra buisje dat moet worden gebruikt voor een blanco-extractie.
LET OP: CH 3 OH enCHCl 3 zijn zeer vluchtig en giftig bij inademing. Alleen gebruiken in zuurkasten.
OPMERKING: Verschillende merken microcentrifugebuisjes hebben verschillende niveaus van achtergrondpalmitaat en mogelijkheden om lekkage van oplosmiddelen te voorkomen. We raden aan om eerst verschillende buizen te testen, om er zeker van te zijn dat lekkage van oplosmiddelen wordt voorkomen en dat de buizen minimale niveaus van verontreinigend palmitaat bevatten. Zie Yao et al.32 voor verdere bespreking.
- Haal de monsters uit de vriezer en leg ze op droogijs.
- Plaats de vooraf geëtiketteerde microcentrifugebuis op een analytische balans en tarreer de balans. Plaats een pincet en een scalpel/stalen scheermesje 10-20 seconden op droogijs om af te koelen.
- Gebruik het pincet om het ingevroren weefselmonster uit het buisje te halen en op een plastic weegboot te plaatsen. De weegboot kan op een plat blok droogijs of een ander voorgekoeld oppervlak worden geplaatst.
- Gebruik het scalpel of stalen scheermesje om een klein deel van het weefsel te ontleden, overeenkomend met 5-15 mg in gewicht. Plaats in de microcentrifugebuis en noteer het exacte gewicht. Herhaal dit voor elk preparaat. Monsters kunnen op dit punt in de vriezer worden bewaard of kunnen worden voortgezet naar de onderstaande stappen voor lipide-extractie.
NOTITIE: Zorg ervoor dat het scalpel goed wordt schoongemaakt met 70% ethanol tussen de monsters en dat tussen elk monster een nieuwe weegboot wordt gebruikt.
- Voeg aan elk monster 1 μL/mg 10 mM hexadeceenzuur 31 (C16:0-d31) toe.
LET OP: De volgende stappen (5.4 tot 5.8) moeten worden uitgevoerd onder een zuurkast vanwege het inademingsrisico van de oplosmiddelen. - Voeg 250 μL CH 3 OH, 250 μL H2O en 500 μLCHCl 3 toe aan elk monster met drie roestvrijstalen kralen van 5 mm. Plaats de buisjes in een voorgekoeld blok van een maalmolen en meng de monsters met een trillingsfrequentie van 25 Hz gedurende 5 minuten, of gebruik de richtlijnen die door de fabrikant worden aanbevolen voor weefselmonsters. Verwijder de kralen met behulp van een magneet.
- Centrifugeer de monsters bij 12.000 x g gedurende 10 minuten bij 4 °C.
OPMERKING: Na centrifugatie moet een duidelijke bifasische scheiding worden waargenomen waarbij de bovenste waterige fase polaire metabolieten bevat en de onderste organische fase lipiden en vetzuren. Als er geen scheiding wordt gezien, voeg dan 250 μL H2O toe en herhaal de vortex- en centrifugatiestappen. - Neem met behulp van een micropipet een vast volume van de onderste fase van elk monster in overeenkomstig geëtiketteerde microcentrifugebuisjes.
- Voeg 500 μlCHCl 3 toe aan het resterende monster en herhaal stap 5.6-5.7.
- Plaats de monsters onder stikstofgas of in eenCHCl 3-bestendig gekoeld centrifugaalvacuüm bij 4 °C tot ze volledig droog zijn. Gedroogde monsters kunnen bij -20 °C worden bewaard totdat ze klaar zijn voor derivatisatie.
OPMERKING: De bovenste laag van elk monster kan op dit punt ook worden verzameld en gedroogd zoals in stap 5.9 om polaire metabolieten te analyseren.
6. Bereiding van methylesters van vetzuren (FAME's) en GCMS-analyse
- Met zuur gekatalyseerde verestering en transesterificatie ter voorbereiding van FAME's
LET OP: De volgende stappen moeten worden uitgevoerd onder een zuurkast vanwege het inademingsrisico van de oplosmiddelen.- Als de monsters in de vriezer zijn bewaard, droog ze dan 5 minuten onder stikstof om er zeker van te zijn dat er geen water aanwezig is.
- Gebruik oplosmiddelen van MS-kwaliteit om 98 ml watervrij CH3OH in een glazen mediafles te pipetteren. Voeg langzaam 2 ml watervrij zwavelzuur toe in de zuurkast om 2% H2SO4 in CH3OH te maken. Meng door de gesloten fles rond te draaien.
- Voeg 500 μL 2% H2SO4 in CH3OH-oplossing toe aan elk monster en draai kortstondig.
- Incubeer de monsters op een warmteblok bij 50 °C gedurende 2 uur.
- Haal de monsters uit het warmteblok en voeg 100 μL verzadigde NaCl-oplossing en 500 μL hexaan toe aan elk monster.
- Draai de monsters krachtig bij kamertemperatuur gedurende 1 minuut. Laat de monsters 1 minuut staan; Hierna zouden twee fasen zichtbaar moeten zijn.
- Vang de bovenste fase op in een nieuwe microcentrifugebuis (zie de opmerking in punt 5.1.3 voor de juiste keuze van de microcentrifugebuis).
- Om de opbrengst te maximaliseren, herhaalt u stap 6.1.5-6.1.7 en verzamelt u het tweede monster in dezelfde gelabelde buisjes.
- Droog de monsters bij kamertemperatuur onder stikstofgas.
- Resuspendeer de monsters in 20 μL/mg hexaan, ten opzichte van het oorspronkelijke weefselgewicht, en breng ze onmiddellijk over in een glazen GC-injectieflacon met een glazen inzetstuk.
NOTITIE: Werk snel tijdens het overbrengen van monsters om verdamping tot een minimum te beperken.
- GCMS-analyse
- Om de abundantie van FAME-isotopologen te bepalen, injecteert u de monsters op een enkele quadrupool-gaschromatografie-massaspectrometer (GCMS).
OPMERKING: Hoewel veel kolomtypen kunnen worden gebruikt om palmitaat te detecteren, is het volgende temperatuurprogramma opgesteld voor een GCMS-kolom die is ontwikkeld voor de scheiding van vetzuur cis/trans-isomeren, zoals beschreven in de materiaaltabel. Deze kolom heeft een lengte van 50 m met een binnendiameter van 0,25 mm. - Injecteer 1 μl monster in een gesplitste/gesplitste inlaat bij een inlaattemperatuur van 270 °C, met helium als draaggas, stromend met een snelheid van 1 ml/min. Gebruik een splitless injectie voor weinig voorkomende vetzuren met een totale stroom van 19 ml/min, een septumspoeling van 3 ml/min en een spoelstroom naar splitventilatie van 15 ml/min bij 0,75 min. Gebruik een splitverhouding van 10:1-40:1 voor vetzuren met een hoog overvloedig gehalte, zoals palmitaat en oleaat.
- Gebruik de volgende ovenparameters: een begintemperatuur van 80 °C; verhoging met stappen van 20 °C/min tot 170 °C; verhoging met stappen van 1 °C/min tot 204 °C; verhoging met stappen van 20 °C/min tot 250 °C; en vervolgens 10 minuten op 250 °C houden.
- Gebruik de volgende parameters van de massaselectieve detector (MSD): een elektronenimpactionisatiemodus van 70 eV en scan over het bereik van 50-400 m/z met een scansnelheid van 1.562 (u/s) en een frequentie van 4,1 scans/s. Gebruik een overdrachtsleiding bij 280 °C, een ionenbron bij 230 °C en een quadrupool bij 150 °C.
NOTITIE: Er kunnen andere kolommen worden gebruikt, maar het temperatuurprogramma zal variëren. - Monstersequentie: Randomiseer de volgorde van injectie en injecteer ten minste twee of drie blanco hexaandeeltjes aan het begin van de sequentie, na elk vijfde monster binnen de sequentie, en twee of drie aan het einde van de sequentie.
- Gebruik instrumentspecifieke software of gratis vrij toegankelijke software zoals Metabolite-Detector33 om de ionen in tabel 1 voor elke methylester van vetzuren te integreren.
OPMERKING: We hebben ionen geschetst die M1-M5-isotopologen bedekken in tabel 1 waarvan we hebben vastgesteld dat ze de hoeveelheid deuteriumopname dekken met dit etiketteringsvenster. Het kan echter nodig zijn dit uit te breiden als de novo flux aanzienlijk hoger is en/of een langere etiketteringstijd wordt gebruikt. - Gebruik de abundantie van elk geïntegreerd ion om een massa-isotomeerverdeling te genereren, waarbij de ionenintensiteiten kunnen worden omgezet in fractionele abundantie, zodat de som van de massa-isotomeerverdeling gelijk is aan één. Zie de voorbeeldspreadsheet in het aanvullende bestand.
OPMERKING: Om de deuteriumopname nauwkeurig te bepalen, moet vervolgens correctie van de natuurlijke isotopenabundantie worden toegepast om rekening te houden met de aanwezigheid van natuurlijk voorkomende isotopen zoals 13C, 15N en 2H. Dit wordt uitgevoerd door een correctiematrix toe te passen zoals uiteengezet door Fernandez et al.34,35, en kan niet worden uitgevoerd door de MID van een niet-gelabelde gemeten metaboliet af te trekken van een gelabelde metaboliet. In de praktijk raden we het gebruik van vrij verkrijgbare software zoals fluxfix 36, polyMID37 of IsoCor38 aan om ruwe gegevens om te zetten in fractionele MID's, en we hebben de formule voor isotopencorrectie voor de methylesterproducten van FAS in tabel 1 gegeven. - Gebruik de volgende formule om de hoeveelheid aanwezig palmitaat te bepalen:
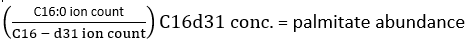
waarbij het aantal ionen verwijst naar de som van alle palmitaatisotopologen die in tabel 1 zijn geïntegreerd en C16:0-d 31 verwijst naar de interne standaard hexadeceen-d31. De inwendige standaard vormt een aparte piek ten opzichte van die van het endogene palmitaat. De relatieve abundantie van andere vetzuren kan ook worden bepaald, maar voor volledige kwantificering kan het nodig zijn om interne standaarden voor vetzuurspecifieke isotopen (met massaverschuivingen die groter zijn dan die waargenomen bij de incorporatie van D2O) of externe standaardcurven te gebruiken. Gebruik het blanco geëxtraheerde monster om de hoeveelheid achtergrondpalmitaat te bepalen en trek dit af van de uiteindelijke weefselwaarde. - Bereken de molaire verrijking (ME) van palmitaat met de volgende vergelijking:

waarin Mi de genormaliseerde, fractionele abundantie van een palmitaatisotopolo is, en n het aantal mogelijke palmitaatisotopogen. Bijvoorbeeld, de ME van een palmitaatmolecuul met de volgende fractionele verdeling, M1 = 0,25, M2 = 0,08, M3 = 0,02, is: (0,025*1) + (0,08*2) + (0,02*3) = 0,245 (zie aanvullend bestand).
- Om de abundantie van FAME-isotopologen te bepalen, injecteert u de monsters op een enkele quadrupool-gaschromatografie-massaspectrometer (GCMS).
7. Deuteriumacetonuitwisseling van plasmamonsters om de verrijking van lichaamswater te bepalen
- Reactie
- Bereid 10 standaarden deuterium voor in water, variërend van 0-9% v/v.
- Bereid een 5% v/v aceton/acetonitril-oplossing met 4 μl per monster, met inbegrip van de normen van stap 5.1.1.
- Combineer in gelabelde, safe-lock microcentrifugebuisjes 10 μL van elk plasmamonster of standaard, 4 μL van 10 M NaOH en 4 μL van 5% aceton/acetonitril. Voer dit in drievoud uit voor elk monster.
- Meng de monsters voorzichtig door te pipetteren. Laat de monsters een nacht bij kamertemperatuur incuberen.
- Extractie
- Voeg na incubatie 450-550 mg Na2SO4 toe aan elk monster.
- Voeg in de zuurkast 600 μLCHCl 3 toe aan elke buis en draai krachtig gedurende 15 s.
- Centrifugeer de monsters gedurende 2 minuten bij 300 x g.
- Breng onder een zuurkast drievoud van 80 μl aliquots van het supernatans uit elk monster over in geëtiketteerde, glazen GCMS-injectieflacons met glazen inzetstukken en dop.
- GCMS-analyse
- Scheid monsters op een kolom (30 m, 0,25 mm ID, Agilent DB-35MS) en analyseer ze op de bijgevoegde massaspectrometer.
- Injecteer 1 μL monster in een gesplitste/gesplitste inlaat, met een splitsingsverhouding van 40:1, een heliumstroom van 1 ml/min en een inlaattemperatuur van 270 °C.
- Gebruik de volgende ovenparameters: een begintemperatuur van 60 °C, verhoog met stappen van 20 °C/min tot 100 °C, verhoog met stappen van 50 °C/min tot 220 °C en houd vervolgens gedurende 1 minuut op 220 °C.
- Gebruik de volgende parameters van de massaselectieve detector (MSD): elektronenimpactionisatiemodus bij 70 eV met geselecteerde ionenbewaking van 58 en 59 m/z. Gebruik een overdrachtsleiding bij 280 °C, een ionenbron bij 230 °C en een quadrupool bij 150 °C.
NOTITIE: Andere kolommen met weinig afloop, gebonden, verknoopte kolommen met gemiddelde polariteit kunnen worden gebruikt, maar het temperatuurprogramma kan variëren.
- Stel de methode voor vloeistofmonsternemers zo in dat deze begint met een CHCl 3-wassing en vervolgens een willekeurige volgorde van de monsters, inclusief extraCHCl 3-wasstappen om de zes monsters.
OPMERKING: Als aceton wordt gebruikt als naaldspoeling voor de autosampler, vervang deze dan door CHCl 3 of hexaan en injecteer meerdere blancoCHCl 3-monsters totdat een verontreinigende acetonpiek niet langer zichtbaar is in het chromatogram. - Bij deze methode elueert een acetonpiek na ongeveer 1,25 min. Integreer de gegevens en bereken de fractionele abundantie van acetonverrijking volgens de stappen 6.2.6-6.2.7, met een aanpassing om pieken te analyseren met een m/z-verhouding van 58-60, zoals aangegeven in tabel 1.
- Gebruik de standaarden om een standaardcurve te genereren om het percentage lichaamswaterverrijking (p) van de testmonsters te bepalen, gebaseerd op de fractionele verrijking van aceton.
- Scheid monsters op een kolom (30 m, 0,25 mm ID, Agilent DB-35MS) en analyseer ze op de bijgevoegde massaspectrometer.
8. In vivo de novo lipogenese-berekeningen
- Bereken de fractie van nieuw gesynthetiseerde vetzuren (FNS) die directe producten zijn van FAS (d.w.z. palmitaat, oneven ketenvetzuren en mmBCFA's) in elk monster met de volgende vergelijking:
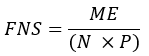
waarbij ME de gemiddelde molaire verrijking van een palmitaatmolecuul is (stap 6.2.9), p de deuteriumverrijking in water uit het overeenkomstige plasmamonster (stap 7.3.4) en N het aantal uitwisselbare waterstofatomen op palmitaat waarin een deuterium kan worden opgenomen. - Bepaal N met behulp van de onderstaande vergelijking die is vastgesteld door Lee et al.31:
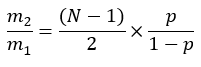
- Bepaal de molaire hoeveelheid nieuw gesynthetiseerde vetzuren (MNS) door:
MNS = FNS x totale hoeveelheid vetzuren (nmol/mg weefsel).
OPMERKING: Als u bijvoorbeeld een palmitaatmolaire verrijking (ME) van 0,245, een deuteriumverrijking in lichaamswater (p) van 0,045 en een berekend N-getal van 22 verkrijgt, is de fractionele synthese van palmitaat 0,247. Als de hoeveelheid palmitaat in het weefsel 2 mmol/mg is, dan is de mmol nieuw gesynthetiseerd palmitaat 0,494 mmol/mg (zie aanvullend dossier).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Op basis van de D 2 O-dosering beschreven in stap 1, vinden we doorgaans dat lichaamswater wordt verrijkt in het bereik van2,5% tot 6%, en dat een basisniveau van deuteriumverrijking in lichaamswater snel wordt bereikt in 1 uur en gedurende de duur van het onderzoek wordt gehandhaafd via 8% verrijkt drinkwater (Figuur 1). Continue steady-state lichaamswaterverrijking is een aanname van de berekeningen die in stap 6 zijn gebruikt, en daarom raden we aan om de kinetiek van ...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Het begrijpen van de balans en interactie tussen complexe metabole routes is een onmisbare stap in de richting van het begrijpen van de biologische basis van metabole gerelateerde ziekten. Hier tonen we een niet-invasieve en goedkope methodologie om veranderingen in de novo vetzuursynthese te bepalen. Deze methode is gebaseerd op eerder gepubliceerde methoden die berekeningen ontwikkelden voor het schatten van de novo syntheseflux uit vetzuurdeuteriumverrijking31 en voor het gebr...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
We danken de lableden van Sanchez-Gurmaches en Wallace voor waardevolle discussies. Dit werk werd ondersteund door subsidies van de American Heart Association (18CDA34080527 aan JSG en 19POST34380545 aan RM), de NIH (R21OD031907 aan JSG), een CCHMC Trustee Award, een CCHMC Center for Pediatric Genomics Award en een CCHMC Center for Mendelian Genomics & Therapeutics Award. Dit werk werd gedeeltelijk ondersteund door NIH P30 DK078392 van het Digestive Diseases Research Core Center in Cincinnati. De inhoud valt uitsluitend onder de verantwoordelijkheid van de auteurs en vertegenwoordigt niet noodzakelijkerwijs de officiële standpunten van de National Institutes of Health. RT en MW werden ondersteund door een UCD Ad Astra Fellowship.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 4 mL glazen injectieflacons | Fisher Scientific | 14-955-334 | |
| 0,2 µm filter | Olympus Plastic | 25-244 | |
| 26G naaldsyringes | BD | 309597 | |
| Aceton | Merck | 34850 | |
| Acetonitril | Merck | 900667 | |
| Blauwe GC-schroefdop met septum | Agilent | 5190-1599 | |
| Centrifuge | Eppendorf | 5424R | |
| Chloroform | Sigma | 366927 | |
| Deuteriumoxide | Sigma | 151882 | |
| Di-tert-butyl-4-methylfenol (BHT) Select FAME-kolom | Merck | B1378 | |
| Di-tert-butyl-4-methylfenol (BHT) Select FAME-kolom | Agilent | CP7419 | |
| EDTA-buis | Sarstedt | 411395105 | |
| Ethanol | Merck | 51976 | |
| Hexadecenoic-d31-zuur | Larodan | 71-1631 | |
| Hexaan | Merck | 34859 | |
| Methanol | Merck | 34860 | |
| Microcentrifugebuis | Olympus Plastic | 24-282 | |
| Omgevingskamer voor muizen | Caron | Caron 7001-33 | |
| Kaliumchloride | Fisher Bioreagents | BP366-500 | |
| Kaliumfosfaat | MP Biomedicals | 194727 | |
| SafeLock microcentrifugebuizen | Eppendorf | 30120086 | |
| GC-fles met schroefdop van barnsteen | Agilent | 5182-0716 | |
| Natriumchloride | Fisher Bioreagents | BP358-212 | |
| Natriumhydroxide | Merck | S5881 | |
| Natriumfosfaat, dibasisch | Fisher Bioreagents | BP332-500 | |
| Natriumsulfaat | Merck | 239313 | |
| Zwavelzuur | Merck | 258105 | |
| Flesinzet | Agilent | 5183-2088 |
Referenties
- The Lancet, Diabetes Endocrinology. Childhood obesity: a growing pandemic. The Lancet. Diabetes & Endocrinology. 10 (1), 1(2022).
- Gonzalez-Muniesa, P., et al. Obesity. Nature Reviews Disease Primers. 3, 17034(2017).
- Müller, T. D., Blüher, M., Tschöp, M. H., DiMarchi, R. D. Anti-obesity drug discovery: advances and challenges. Nature Reviews Drug Discovery. 21 (3), 201-223 (2021).
- Virtue, S., Vidal-Puig, A. GTTs and ITTs in mice: simple tests, complex answers. Nature Metabolism. 3 (7), 883-886 (2021).
- Müller, T. D., Klingenspor, M., Tschöp, M. H. Revisiting energy expenditure: how to correct mouse metabolic rate for body mass. Nature Metabolism. 3 (9), 1134-1136 (2021).
- Virtue, S., Lelliott, C. J., Vidal-Puig, A. What is the most appropriate covariate in ANCOVA when analysing metabolic rate. Nature Metabolism. 3 (12), 1585(2021).
- Hellerstein, M. K. De novo lipogenesis in humans: metabolic and regulatory aspects. European Journal of Clinical Nutrition. 53 Suppl 1, S53-S65 (1999).
- Zhao, S., et al. Dietary fructose feeds hepatic lipogenesis via microbiota-derived acetate. Nature. 579 (7800), 586-591 (2020).
- Wallace, M., et al. Enzyme promiscuity drives branched-chain fatty acid synthesis in adipose tissues. Nature Chemical Biology. 14 (11), 1021-1031 (2018).
- Zhao, S., et al. ATP-citrate lyase controls a glucose-to-acetate metabolic switch. Cell Reports. 17 (4), 1037-1052 (2016).
- Green, C. R., et al. Branched-chain amino acid catabolism fuels adipocyte differentiation and lipogenesis. Nature Chemical Biology. 12 (1), 15-21 (2016).
- Zhang, Z., et al. Serine catabolism generates liver NADPH and supports hepatic lipogenesis. Nature Metabolism. 3 (12), 1608-1620 (2021).
- Chirala, S. S., et al. Fatty acid synthesis is essential in embryonic development: fatty acid synthase null mutants and most of the heterozygotes die in utero. Proceedings of the National Academy of Sciences. 100 (11), 6358-6363 (2003).
- Icard, P., et al. ATP citrate lyase: A central metabolic enzyme in cancer. Cancer Letters. 471, 125-134 (2020).
- Fhu, C. W., Ali, A. Fatty acid synthase: an emerging target in cancer. Molecules. 25 (17), 3935(2020).
- Lawitz, E. J., et al. Acetyl-CoA carboxylase inhibitor GS-0976 for 12 weeks reduces hepatic de novo lipogenesis and steatosis in patients with nonalcoholic steatohepatitis. Clinical Gastroenterology and Hepatology. 16 (12), 1983e3-1991e3 (2018).
- Smith, G. I., et al. Insulin resistance drives hepatic de novo lipogenesis in nonalcoholic fatty liver disease. The Journal of Clinical Investigation. 130 (3), 1453-1460 (2020).
- Imamura, F., et al. Fatty acids in the de novo lipogenesis pathway and incidence of type 2 diabetes: A pooled analysis of prospective cohort studies. PLoS Medicine. 17 (6), e1003102(2020).
- Lai, H. T. M., et al. Serial plasma phospholipid fatty acids in the de novo lipogenesis pathway and total mortality, cause-specific mortality, and cardiovascular diseases in the cardiovascular health study. Journal of the American Heart Association. 8 (22), e012881(2019).
- Ference, B. A., et al. Mendelian randomization study of ACLY and cardiovascular disease. The New England Journal of Medicine. 380 (11), 1033-1042 (2019).
- Herman, M. A., et al. A novel ChREBP isoform in adipose tissue regulates systemic glucose metabolism. Nature. 484 (7394), 333-338 (2012).
- Sanchez-Gurmaches, J., et al. Brown fat AKT2 Is a cold-induced kinase that stimulates ChREBP-mediated de novo lipogenesis to optimize fuel storage and thermogenesis. Cell Metabolism. 27 (1), 195e6-209e6 (2018).
- Wang, X., et al. Nuclear protein that binds sterol regulatory element of low density lipoprotein receptor promoter. II. Purification and characterization. The Journal of Biological Chemistry. 268 (19), 14497-14504 (1993).
- Briggs, M. R., Yokoyama, C., Wang, X., Brown, M. S., Goldstein, J. L. Nuclear protein that binds sterol regulatory element of low density lipoprotein receptor promoter. I. Identification of the protein and delineation of its target nucleotide sequence. The Journal of Biological Chemistry. 268 (19), 14490-14496 (1993).
- Yokoyama, C., et al. SREBP-1, a basic-helix-loop-helix-leucine zipper protein that controls transcription of the low density lipoprotein receptor gene. Cell. 75 (1), 187-197 (1993).
- Chen, G., Liang, G., Ou, J., Goldstein, J. L., Brown, M. S. Central role for liver X receptor in insulin-mediated activation of Srebp-1c transcription and stimulation of fatty acid synthesis in liver. Proceedings of the National Academy of Sciences. 101 (31), 11245-11250 (2004).
- Denechaud, P. D., et al. ChREBP, but not LXRs, is required for the induction of glucose-regulated genes in mouse liver. The Journal of Clinical Investigation. 118 (3), 956-964 (2008).
- Crewe, C., et al. SREBP-regulated adipocyte lipogenesis is dependent on substrate availability and redox modulation of mTORC1. JCI Insight. 5 (15), e129397(2019).
- Batchuluun, B., Pinkosky, S. L., Steinberg, G. R. Lipogenesis inhibitors: therapeutic opportunities and challenges. Nature Reviews Drug Discovery. 21 (4), 283-305 (2022).
- Wallace, M., Metallo, C. M. Tracing insights into de novo lipogenesis in liver and adipose tissues. Seminars in Cell & Developmental Biology. 108, 65-71 (2020).
- Lee, W. N., et al. In vivo measurement of fatty acids and cholesterol synthesis using D2O and mass isotopomer analysis. The American Journal of Physiology. 266 (5 Pt 1), E699-E708 (1994).
- Yao, C. H., Liu, G. Y., Yang, K., Gross, R. W., Patti, G. J. Inaccurate quantitation of palmitate in metabolomics and isotope tracer studies due to plastics. Metabolomics. 12, 143(2016).
- Hiller, K., et al. MetaboliteDetector: comprehensive analysis tool for targeted and nontargeted GC/MS based metabolome analysis. Analytical Chemistry. 81 (9), 3429-3439 (2009).
- Fernandez, C. A., Des Rosiers, C., Previs, S. F., David, F., Brunengraber, H. Correction of 13C mass isotopomer distributions for natural stable isotope abundance. Journal of Mass Spectrometry. 31 (3), 255-262 (1996).
- Midani, F. S., Wynn, M. L., Schnell, S. The importance of accurately correcting for the natural abundance of stable isotopes. Analytical Biochemistry. 520, 27-43 (2017).
- Trefely, S., Ashwell, P., Snyder, N. W. FluxFix: automatic isotopologue normalization for metabolic tracer analysis. BMC Bioinformatics. 17 (1), 485(2016).
- Jeong, H., et al. Correcting for naturally occurring mass isotopologue abundances in stable-isotope tracing experiments with PolyMID. Metabolites. 11 (5), 310(2021).
- Millard, P., et al. IsoCor: isotope correction for high-resolution MS labeling experiments. Bioinformatics. 35 (21), 4484-4487 (2019).
- Brunengraber, D. Z., et al. Influence of diet on the modeling of adipose tissue triglycerides during growth. American Journal of Physiology. Endocrinology and Metabolsim. 285 (4), E917-E925 (2003).
- Svensson, R. U., et al. Inhibition of acetyl-CoA carboxylase suppresses fatty acid synthesis and tumor growth of non-small-cell lung cancer in preclinical models. Nature Medicine. 22 (10), 1108-1119 (2016).
- Hellerstein, M. K., Neese, R. A. Mass isotopomer distribution analysis: a technique for measuring biosynthesis and turnover of polymers. The American Journal of Physiology. 263 (5 Pt 1), E988-E1001 (1992).
- Hellerstein, M. K., Neese, R. A. Mass isotopomer distribution analysis at eight years: theoretical, analytic, and experimental considerations. The American Journal of Physiology. 276 (6), E1146-E1170 (1999).
- Kelleher, J. K., Masterson, T. M. Model equations for condensation biosynthesis using stable isotopes and radioisotopes. The American Journal of Physiology. 262 (1 Pt 1), E118-E125 (1992).
- Kelleher, J. K., Nickol, G. B. Isotopomer spectral analysis: utilizing nonlinear models in isotopic flux studies. Methods in Enzymology. 561, 303-330 (2015).
- Argus, J. P., et al. Development and application of FASA, a model for quantifying fatty acid metabolism using stable isotope labeling. Cell Reports. 25 (10), 2919.e8-2934.e8 (2018).
- Guilherme, A., et al. Control of adipocyte thermogenesis and lipogenesis through β3-adrenergic and thyroid hormone signal integration. Cell Reports. 31 (5), 107598(2020).
- Guilherme, A., et al. Neuronal modulation of brown adipose activity through perturbation of white adipocyte lipogenesis. Molecular Metabolism. 16, 116-125 (2018).
- Guilherme, A., et al. Adipocyte lipid synthesis coupled to neuronal control of thermogenic programming. Molecular Metabolism. 6 (8), 781-796 (2017).
- Lodhi, I. J., et al. Inhibiting adipose tissue lipogenesis reprograms thermogenesis and PPARgamma activation to decrease diet-induced obesity. Cell Metabolism. 16 (2), 189-201 (2012).
- McCormack, J. G., Denton, R. M. Evidence that fatty acid synthesis in the interscapular brown adipose tissue of cold-adapted rats is increased in vivo by insulin by mechanisms involving parallel activation of pyruvate dehydrogenase and acetyl-coenzyme A carboxylase. The Biochemistry Journal. 166 (3), 627-630 (1977).
- Trayhurn, P. Fatty acid synthesis in vivo in brown adipose tissue, liver and white adipose tissue of the cold-acclimated rat. FEBS Letters. 104 (1), 13-16 (1979).
- Negron, S. G., Ercan-Sencicek, A. G., Freed, J., Walters, M., Lin, Z. Both proliferation and lipogenesis of brown adipocytes contribute to postnatal brown adipose tissue growth in mice. Science Reports. 10 (1), 20335(2020).
- Schlein, C., et al. Endogenous fatty acid synthesis drives brown adipose tissue involution. Cell Reports. 34 (2), 108624(2021).
- Mottillo, E. P., et al. Coupling of lipolysis and de novo lipogenesis in brown, beige, and white adipose tissues during chronic beta3-adrenergic receptor activation. Journal of Lipid Research. 55 (11), 2276-2286 (2014).
- Adlanmerini, M., et al. Circadian lipid synthesis in brown fat maintains murine body temperature during chronic cold. Proceedings of the National Academy of Sciences. 116 (37), 18691-18699 (2019).
- Yu, X. X., Lewin, D. A., Forrest, W., Adams, S. H. Cold elicits the simultaneous induction of fatty acid synthesis and beta-oxidation in murine brown adipose tissue: prediction from differential gene expression and confirmation in vivo. FASEB Journal. 16 (2), 155-168 (2002).
- Kushner, D. J., Baker, A., Dunstall, T. G. Pharmacological uses and perspectives of heavy water and deuterated compounds. Canadian Journal of Physiology and Pharmacology. 77 (2), 79-88 (1999).
- Diraison, F., Pachiaudi, C., Beylot, M. Measuring lipogenesis and cholesterol synthesis in humans with deuterated water: use of simple gas chromatographic/mass spectrometric techniques. Journal of Mass Spectrometry. 32 (1), 81-86 (1997).
- Yang, D., et al. Assay of low deuterium enrichment of water by isotopic exchange with [U-13C3]acetone and gas chromatography-mass spectrometry. Analytical Biochemistry. 258 (2), 315-321 (1998).
- Fu, X., et al. Measurement of lipogenic flux by deuterium resolved mass spectrometry. Nature Communications. 12 (1), 3756(2021).
- Shah, V., Herath, K., Previs, S. F., Hubbard, B. K., Roddy, T. P. Headspace analyses of acetone: a rapid method for measuring the 2H-labeling of water. Analytical Biochemistry. 404 (2), 235-237 (2010).
- Argus, J. P., Yu, A. K., Wang, E. S., Williams, K. J., Bensinger, S. J. An optimized method for measuring fatty acids and cholesterol in stable isotope-labeled cells. Journal of Lipid Research. 58 (2), 460-468 (2017).
- Belew, G. D., Jones, J. G. De novo lipogenesis in non-alcoholic fatty liver disease: Quantification with stable isotope tracers. European Journal of Clinical Investigation. 52 (3), e13733(2022).
- Zhang, Z., Chen, L., Liu, L., Su, X., Rabinowitz, J. D. Chemical basis for deuterium labeling of fat and NADPH. Journal of the American Chemical Society. 139 (41), 14368-14371 (2017).
- Belew, G. D., et al. Transfer of glucose hydrogens via acetyl-CoA, malonyl-CoA, and NADPH to fatty acids during de novo lipogenesis. Journal of Lipid Research. 60 (12), 2050-2056 (2019).
- Diraison, F., Pachiaudi, C., Beylot, M. In vivo measurement of plasma cholesterol and fatty acid synthesis with deuterated water: determination of the average number of deuterium atoms incorporated. Metabolism. 45 (7), 817-821 (1996).
- Ajie, H. O., et al. In vivo study of the biosynthesis of long-chain fatty acids using deuterated water. The American Journal of Physiology. 269 (2 Pt 1), E247-E252 (1995).
- Schloerb, P. R., Friis-Hansen, B. J., Edelman, I. S., Solomon, A. K., Moore, F. D. The measurement of total body water in the human subject by deuterium oxide dilution; with a consideration of the dynamics of deuterium distribution. The Journal of Clinical Investigation. 29 (10), 1296-1310 (1950).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
