Een chromatine-immunoprecipitatie (X-ChIP) test tegen de histonmarkering H3K4me3 voor het modelorganisme Exaiptasia diaphana wordt gepresenteerd. De specificiteit en effectiviteit van de test worden bevestigd door kwantitatieve PCR en next-generation sequencing. Dit protocol maakt het mogelijk om meer onderzoek te doen naar eiwit-DNA-interacties in de zeeanemoon E. diaphana.
Methodenartikel
Chromatine-immunoprecipitatie in het Cnidariaanse modelsysteem Exaiptasia diaphana
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Histon posttranslationele modificaties (PTM's) en andere epigenetische modificaties reguleren de chromatine-toegankelijkheid van genen tot de transcriptiemachinerie, waardoor het vermogen van een organisme om te reageren op omgevingsstimuli wordt beïnvloed. Chromatine-immunoprecipitatie in combinatie met high-throughput sequencing (ChIP-seq) is op grote schaal gebruikt om eiwit-DNA-interacties op het gebied van epigenetica en genregulatie te identificeren en in kaart te brengen. Het gebied van de cnidaire epigenetica wordt echter gehinderd door een gebrek aan toepasbare protocollen, deels vanwege de unieke kenmerken van modelorganismen zoals de symbiotische zeeanemoon Exaiptasia diaphana, waarvan het hoge watergehalte en de slijmhoeveelheden moleculaire methoden belemmeren. Hier wordt een gespecialiseerde ChIP-procedure gepresenteerd, die het onderzoek naar eiwit-DNA-interacties in de genregulatie van E. diaphana vergemakkelijkt. De verknopings- en chromatine-extractiestappen werden geoptimaliseerd voor efficiënte immunoprecipitatie en vervolgens gevalideerd door ChIP uit te voeren met behulp van een antilichaam tegen het histonmerk H3K4me3. Vervolgens werden de specificiteit en effectiviteit van de ChIP-test bevestigd door de relatieve bezetting van H3K4me3 rond verschillende constitutief geactiveerde genloci te meten met behulp van kwantitatieve PCR en door sequencing van de volgende generatie voor analyse op genoombrede schaal. Dit geoptimaliseerde ChIP-protocol voor de symbiotische zeeanemoon E. diaphana vergemakkelijkt het onderzoek naar de eiwit-DNA-interacties die betrokken zijn bij de reacties van organismen op veranderingen in de omgeving die symbiotische cnidarians, zoals koralen, beïnvloeden.
Inleiding
Het rapport van 2022 van het Intergovernmental Panel on Climate Change (IPCC) benadrukt dat, ondanks het groeiende bewustzijn en de mitigatie-inspanningen, steeds intensere en frequentere mariene hittegolven koraalriffen een hoog risico lopen op uitgebreide verbleking en massale sterfte in de komende decennia1. Om de inspanningen voor het behoud en herstel van koraalriffen te informeren, worden de huidige en verwachte effecten van veranderende milieuomstandigheden op benthische cnidarians op meerdere biologische niveaus onderzocht om de onderliggende mechanismen van responsen veerkracht te begrijpen.
De beschikbaarheid van onderzoeksinstrumenten die van toepassing zijn op benthische cnidarians is van cruciaal belang om deze uitdaging aan te gaan, en de ontwikkeling van deze instrumenten vereist een actieve inspanning om kennis en technologieën die op andere gebieden zijn ontwikkeld, over te dragen aan mariene organismen3. De belemmeringen voor het werken met veel koraalsoorten worden deels weggenomen door gebruik te maken van modelsystemen, zoals de zeeanemoon Exaiptasia diaphana (ook wel Aiptasia genoemd)4. Deze snelgroeiende, facultatief symbiotische zeeanemonen zijn relatief gemakkelijk te houden in laboratoriumomstandigheden, planten zich zowel seksueel als ongeslachtelijk voort en missen het calciumcarbonaatskelet5. Het vrij toegankelijke referentiegenoom5 van E. diaphana vergemakkelijkt het gebruik van epigenetische methoden die sequencing vereisen. Kenmerken zoals een hoog watergehalte, slijmproductie en lage weefselhoeveelheden per individu vormen echter een uitdaging voor het opstellen van reproduceerbare protocollen, waardoor epigenetisch onderzoek naar E. diaphana en andere cnidarians met vergelijkbare kenmerken wordt afgeremd.
Epigenetische modificaties kunnen het fenotype veranderen zonder de genomische nucleotidesequentie van een organisme te veranderen door chromatine-geassocieerde processen te reguleren6. Cnidariaanse epigenetische regulatie wordt meestal onderzocht in de context van evolutionaire geschiedenis en ontwikkeling 7,8,9,10, symbiose vestiging en onderhoud 11,12,13, en reactie op veranderingen in het milieu 14,15. In het bijzonder zijn variaties in patronen van DNA-methylering, die in de meeste gevallen de toevoeging van een methylgroep aan een cytosinebase inhouden, waargenomen als reactie op veranderende omgevingsomstandigheden zoals opwarming13 en verzuring van de oceaan16. Er is ook aangetoond dat DNA-methylatiepatronen intergenerationeel erfelijk zijn, wat de rol van epigenetica benadrukt bij de acclimatisatie van koraal aan omgevingsstressoren17. In vergelijking met DNA-methylatie zijn er relatief weinig onderzoeken gedaan naar andere belangrijke epigenetische regulatoren, zoals niet-coderende RNA's11,18,19, transcriptiefactoren 9,10 of histon posttranslationele modificaties (PTM's) bij cnidarians20. Het onderzoek naar DNA-geassocieerde eiwitten is bijzonder veeleisend omdat de beschikbare methoden toegang vereisen tot een referentiegenoom van het onderzoeksorganisme en duur zijn vanwege de grote steekproefomvang en de vereiste antilichamen met hoge specificiteit3. Met een grote verscheidenheid aan chemische groepen die PTM's vormen bij specifieke histonresiduen, blijft het begrijpen van chromatinemodificatielandschappen in cnidarians, vooral in de context van dreigende milieustress, een grote uitdaging.
Het doel van dit werk is om het onderzoek naar histon PTM's, histonvarianten en andere chromatine-geassocieerde eiwitten in cnidarians te bevorderen door een geoptimaliseerd chromatine-immunoprecipitatie (ChIP) protocol te presenteren voor het koraalmodel E. diaphana (origineel protocol door Bodega et al.21). ChIP kan worden gecombineerd met kwantitatieve PCR om locusspecifieke eiwit-DNA-interacties te karakteriseren of next-generation sequencing (NGS) om deze interacties over het hele genoom in kaart te brengen. Over het algemeen zijn eiwitten en DNA omkeerbaar verknoopt, zodat het eiwit van belang (POI) gebonden blijft aan dezelfde locus waarmee het in vivo is geassocieerd. Hoewel de gebruikelijke vernettingsmethode die veel wordt gebruikt in het zoogdiermodelsysteem meestal wordt beperkt tot 15 minuten of minder bij kamertemperatuur, werd de verknopingsbenadering geoptimaliseerd om de formaldehyde effectiever door het slijm te laten dringen dat door E. diaphana wordt geproduceerd. Het weefsel wordt vervolgens snel ingevroren in vloeibare stikstof, gehomogeniseerd en gelyseerd om de kernen uit de cellen te extraheren. Het verlies van materiaal in deze stappen wordt vermeden door slechts één lysisbuffer te gebruiken en vervolgens direct over te gaan op sonicatie, waarbij het chromatine wordt gefragmenteerd in ~300 bp lange fragmenten. Deze fragmenten worden geïncubeerd met een antilichaam dat specifiek is voor de POI tot op PTM-niveau. Het antilichaam-eiwit-DNA-immunocomplex wordt neergeslagen met behulp van magnetische kralen die binden aan de primaire antilichamen, waardoor alleen de DNA-segmenten worden geselecteerd die geassocieerd zijn met de POI. Na cross-link omkering en opschoning van het neerslag, kunnen de verkregen DNA-segmenten worden gebruikt voor qPCR of DNA-bibliotheekconstructie voor sequencing om de segmenten in kaart te brengen in een referentiegenoom en zo de loci te identificeren waarmee de POI is geassocieerd. Meer details over overwegingen voor elke stap zijn te vinden in Jordán-Pla en Visa22.
Protocol
Een procedureel overzicht is te vinden in figuur 1. De ChIP-Seq-gegevens zijn beschikbaar in het NCBI Sequence Read Archive (SRA) onder BioProject-code PRJNA931730 (https://www.ncbi.nlm.nih.gov/bioproject/PRJNA931730).
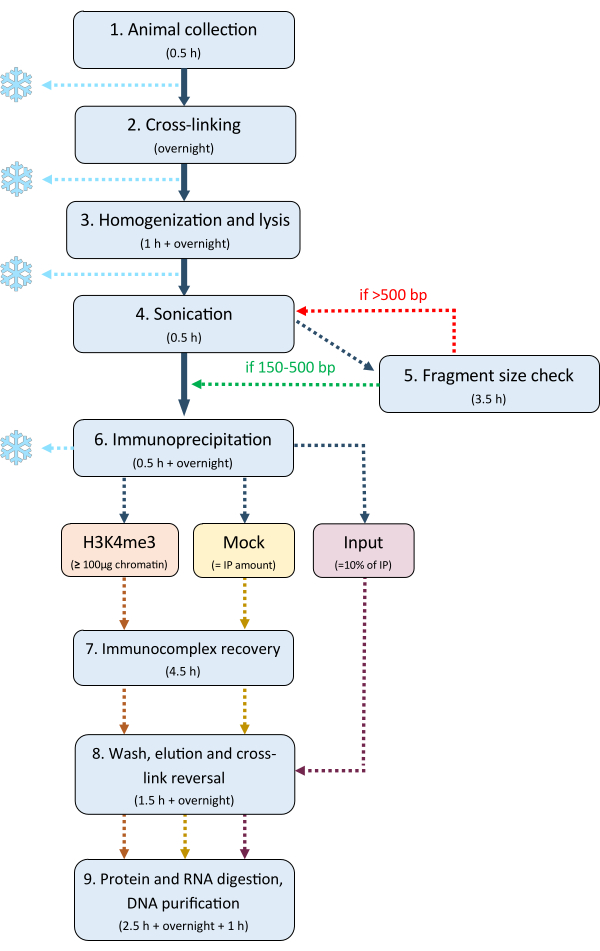
Figuur 1: ChIP-protocol workflow. Overzicht van de workflow van het ChIP-protocol, inclusief de geschatte duur van elke stap en optionele stoppunten. Klik hier om een grotere versie van deze figuur te bekijken.
1. Dieren inzameling
- Maak met een plastic spatel voorzichtig 20 symbiotische E. diaphana (stam CC7) met een pedaaldiameter van ~5 mm of groter los van de aquariumwanden en pipetteer ze in een buis van 15 ml.
OPMERKING: Optimalisatie van het aantal anemonen op basis van hun grootte en het aantal IP's dat bedoeld is, wordt aanbevolen. Anemonen kunnen snel worden ingevroren in vloeibare stikstof (LN2) en ten minste 1 maand worden bewaard bij -80 °C voordat met de ChIP wordt begonnen. Anders is het raadzaam om meteen te werk te gaan om te voorkomen dat de anemonen zich op de wanden van de buis van 15 ml nestelen.
2. Verknoping
- Bereid 10 ml 0,5% verknopingsbuffer voor (tabel 1).
- Laat de anemonen naar de bodem van de buis zakken, of draai ze een paar seconden in een centrifuge, oplopend tot ~3.500 x g bij kamertemperatuur, en verwijder vervolgens overtollig zeewater met een vacuümpomp. Was ze in 1x DPBS door ze op te hangen en verwijder vervolgens de DPBS.
- Breng de anemonen met een pincet of een plastic spatel over in de 0,5% verknopingsbuffer om te voorkomen dat de overtollige buffer wordt overgebracht. Incubeer op een rotator bij 12 tpm en 4 °C gedurende 1 uur.
- Bereid ondertussen 10 ml 1% verknopingsbuffer voor (tabel 1).
- Net als in stap 2.2 verwijdert u de buffer van 0,5% en vult u de buis opnieuw met de buffer voor verknoping van 1%. Incubeer op een rotator bij 12 tpm en 4 °C gedurende een nacht.
NOTITIE: Zorg ervoor dat alle anemonen zijn opgehangen en niet aan elkaar hechten door de buis voorzichtig om te keren. - Bereid de volgende dag 10 ml blusbuffer uit een glycinevoorraad van 2 M (tabel 1).
- Verwijder de 1% vernettingsbuffer zoals in stap 2.2 en suspendeer de anemonen in de blusbuffer om de verknopingsreactie te stoppen. Incubeer op een rotator bij 12 rpm en 4 °C gedurende 20 min.
- Verwijder de blusbuffer zoals in stap 2.2 en was de anemonen twee keer in DPBS. Als u meerdere monsters hanteert, houd de anemonen dan in DPBS terwijl u de stappen 3.2-3.4 monster voor monster doorloopt.
OPMERKING: Het experiment kan worden onderbroken door het monster snel in te vriezen en het op dit moment maximaal 1 maand bij -80 °C te bewaren. Verwijder overtollig DPBS door de tube op een papieren zakdoekje te legen voordat u deze invriest en opbergt.
Tabel 1: Oplossingen en buffers die worden gebruikt in het ChIP-protocol. De ingrediënten en hun respectievelijke concentraties worden vermeld voor elke buffer die in het protocol wordt gebruikt. Klik hier om deze tabel te downloaden.
3. Homogenisatie en lysis
- Bereid de lysisbuffer (tabel 1) vers op de dag (2 ml per monster) en voeg 100x proteaseremmercocktail (PIC, zie materiaaltabel) toe tot een eindconcentratie van 1x. Reinig een porseleinen vijzel en stamper met ethanol en begin met het koelen van al het gereedschap met LN2.
- Decanteer de DPBS en leg de anemonen op een papieren zakdoekje om zoveel mogelijk vloeistof te verwijderen. Giet wat LN2 in de vijzel en zet de anemonen over met een pincet.
- Begin met het voorzichtig breken van het weefsel met de stamper en maal vervolgens tot het monster een fijn poeder is. Blijf indien nodig LN2 bijvullen om ontdooien te voorkomen.
- Plaats 2 ml lysisbuffer in een tube van 5 ml op ijs. Verzamel het monster met een spatel en breng het over in de lysisbuffer, zodat het monster oplost in de buffer. Laat het monster 1 minuut op ijs rusten en meng vervolgens door inversie. Herhaal stap 3.2-3.4 voor alle andere monsters en reinig alle apparatuur grondig met ethanol tussen de monsters.
OPMERKING: Minimaliseer het verlies van het monster zoveel mogelijk in deze stap. - Was een Dounce weefselmolen (zie Materiaaltabel) met lysisbuffer, breng het monster over en dounce 20-30 keer met een strakke stamper.
- Breng het monster terug in de buis, was de weefselmolen met ethanol en gedestilleerd water en herhaal stap 3.5 voor alle monsters.
- Incubeer de monsters op een rotator bij ~14 rpm en 4 °C gedurende een nacht.
- Gebruik Trypanblauw om te controleren of de lysis onder de microscoop is geslaagd (20x vergroting) door het te mengen met 10 μL monster in een verhouding van 1:1. Als de kleurstof de kernen binnendringt, is de lysis succesvol.
OPMERKING: Het experiment kan op dit punt worden gepauzeerd door het monster maximaal 2 maanden bij -80 °C te bewaren.
4. Sonificatie
- Draai het monster kort in een centrifuge op ~2,000 x g gedurende 3-5 s bij kamertemperatuur om eventuele vloeistof van de dop en wanden te verwijderen.
- Haal het lysaat 10 keer door een naald van 25 G en een spuit van 1 ml om eventuele aggregaten te breken.
- Plaats het monster in een ijsbad om het zo koel mogelijk te houden tijdens de sonicatie.
- Reinig de sonicatienaald met ethanol. Plaats het monster in de sonicator (zie Materiaaltabel) met de naald 1 cm boven de bodem van de buis en zonder de wanden aan te raken.
- Stel de inschakelduur in op 50% en de output op 0. Start de sonicator en zorg ervoor dat er geen schuim in het monster wordt geproduceerd (anders stopt u en past u de naaldpositie opnieuw aan). Verhoog het uitgangsvermogen langzaam tot 2 en soniceer vervolgens gedurende 2 minuten.
- Schakel de sonicator uit, stel het uitgangsvermogen weer in op 0 en laat het monster 2 minuten rusten en afkoelen.
- Herhaal stap 4.5-4.6 voor een totaal van vier sonicatie- en cooldownsets per sample. Verwijder het monster, bewaar het op ijs en herhaal dit met andere monsters. Reinig de sonicatornaald met ethanol tussen de monsters en aan het uiteinde.
OPMERKING: De sonicatie-intensiteit en het cyclusaantal moeten mogelijk worden geoptimaliseerd om de laagste sonicatie-intensiteit te bereiken, terwijl fragmenten van 150-500 bp groot worden.
5. DNA-extractie en controle van de fragmentgrootte
OPMERKING: Voordat u naar het IP-adres gaat, moet de grootte van de fragmenten worden gecontroleerd. Als de fragmenten te groot zijn (>500 bp), moet het aantal sonicatiecycli en/of de sonicatie-intensiteit worden verhoogd; Als ze te klein zijn (<150 bp), moet de sonicatietijd en/of intensiteit worden verminderd.
- Houd het monster op ijs terwijl u de controle van de fragmentgrootte uitvoert op een subset van het monster. Breng een subset van 100 μl over in een verse tube van 1,5 ml.
- Voeg 8 μL RNase-cocktail toe (zie Materiaaltabel) en incubeer bij 42 °C gedurende 30 minuten terwijl het schudt op 700 tpm.
- Voeg 2 μL proteïnase K toe (zie Materiaaltabel). en incubeer bij 55 °C gedurende 1 uur terwijl het schudt bij 700 tpm.
- Draai het monster om door het gedurende ten minste 1 uur bij 95 °C te incuberen terwijl het bij 700 tpm schudt.
- Bereid een 1% agarosegel met 1x TAE-buffer en 0,01% ethidiumbromide (zie materiaaltabel) of een alternatieve gelbeits.
- Extraheer het DNA uit het monster met behulp van een zuiveringskit volgens de instructies van de fabrikant (zie Materiaaltabel).
- Om de fragmentatiegrootte van het geëxtraheerde DNA te controleren, laadt u de agarosegel met een ladder en een monster. Meng 4 μL van 1 kbp ladder met 1 μL 6x paarse laadkleurstof en doe het in een putje van de agarosegel. Meng 20 μL DNA met 4 μL 6x paarse laadkleurstof voor een eindconcentratie van 1x en pipetteer in een putje. Herhaal dit voor alle monsters.
- Laat de gel ongeveer 30 minuten op 100 V draaien en breng vervolgens de gel in beeld door deze op een dienblad te laden, in het gelbeeldvormingssysteem te plaatsen en de instructies van de software van het betreffende systeem te volgen (zie Materiaaltabel). Beslis of u verder gaat op basis van de fragmentatiegroottes, die gemiddeld tussen 150-500 bp moeten liggen (figuur 2).
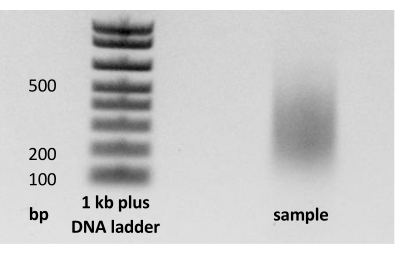
Figuur 2: Controle van de fragmentgrootte. Na de sonicatie wordt een subset van het monster ontkoppeld, gezuiverd en op een agarosegel uitgevoerd om ervoor te zorgen dat het chromatine is geschoren tot fragmentgroottes tussen 150-500 bp. Klik hier om een grotere versie van deze figuur te bekijken.
6. Immunoprecipitatie (IP)
- Controleer met een pipet het volume van het hoofdmonster dat tijdens de DNA-extractie op ijs is bewaard. Voeg 10% Triton X-100 toe tot een eindconcentratie van 1%.
- Draai het monster gedurende 10 minuten rond op 20.000 x g bij 4 °C en breng het supernatans vervolgens met een pipet over in een schone buis.
OPMERKING: Het experiment kan hier worden onderbroken door het monster maximaal 2 maanden in te vriezen bij -80 °C. De details van de volgende IP-stappen moeten voor elk experiment worden aangepast en geoptimaliseerd. De hoeveelheid antilichaam per IP moet mogelijk worden geoptimaliseerd. - Gebruik de lysisbuffer als blanco en meet de chromatineconcentratie volgens de instructies van een beschikbaar DNA-concentratiemeetsysteem (zie Materiaaltabel).
- Afhankelijk van het monstervolume en het aantal geplande IP's, verhoogt u het totale volume van het monster door 10% Triton X-100 en 100x PIC (zie materiaaltabel) toe te voegen aan de eindconcentraties van respectievelijk 1% en 1x. Het wordt aanbevolen om 100 μg chromatine te gebruiken in een totaal volume van 1.000 μL.
- Verdeel het volume voor elk IP-adres over een afzonderlijke buis van 1,5 ml met een lage retentie (zie Materiaaltabel). Plaats voor ChIP-qPCR het equivalente volume van het monster in een ander buisje van 1.5 ml als een schijncontrole. Neem 10% van het volume van de IP's als invoerregeling en bewaar deze bij -20 °C.
- Voeg 4 μg antilichaam (hier H3K4me3-antilichaam, zie materiaaltabel) toe aan elk respectievelijke IP-adres. Voeg niets toe aan de schijn. Incubeer de IP-reacties en de mock op de buisrotator bij 12 tpm en bij 4 °C 's nachts.
7. Herstel van de immunocomplexen met magnetische kralen
OPMERKING: Vermijd altijd uitdroging van de magnetische kralen; Houd ze bedekt met vloeistof of vul de oplossingen zo snel mogelijk bij. Werk altijd aan het ene monster na het andere.
- Keer de magnetische kralen voorzichtig om (zie Materiaaltabel) om te mengen.
- Bereid 10 ml blokkeringsoplossing (tabel 1) vers op de dag en meng voorzichtig.
- Knip de punt van een pipetpunt af om de diameter te vergroten en breng 50 μL magnetische kralen over in aparte buisjes (één buisje per IP en één voor de mock).
- Voeg 1 ml blokkeeroplossing toe aan elke buis en incubeer ze op een rotator bij 12 tpm en 4 °C gedurende 30 minuten.
- Plaats de kralen in de blokkeeroplossing op een magnetisch rek en wacht tot ze gescheiden zijn. Centrifugeer ondertussen de IP-reacties bij 2.000 x g gedurende 3-5 s bij kamertemperatuur om eventuele resten van de wanden te verwijderen.
- Gebruik een pipet om de blokkeringsoplossing te verwijderen en weg te gooien, en spoel vervolgens de kralen van de muur met een van de monsters of de mock. Plaats het mengsel terug in de respectievelijke buis met lage retentie en ga dan verder met het volgende monster.
- Incubeer alle buizen op een rotator bij 12 rpm en 4 °C gedurende 3 uur.
8. Was, elutie en omkering van de kruisverbinding
- Bereid de wasbuffers en TE-zoutbuffer voor (tabel 1) tijdens de incubatie van het immunocomplexherstel.
- Na de incubatie plaatst u de IP's en mock op het magnetische rek en wacht u ongeveer 10-20 s totdat de magneten zijn gescheiden.
- Gooi het overschot weg en voeg 1 ml wasbuffer toe met weinig zout. Herhaal dit met alle reacties en verwijder dan de buisjes van het magnetische rek en meng tot de kralen zijn opgehangen.
- Incubeer op een rotator bij 12 tpm en 4 °C gedurende 5 min.
- Plaats de buizen op het magnetische rek, verwijder de wasbuffer met weinig zout, voeg vervolgens 1 ml wasbuffer met veel zout toe en incubeer zoals in stap 8.4.
- Herhaal stap 8.3-8.5 nog een keer voor in totaal vier wasbeurten met afwisselend weinig en veel zout.
OPMERKING: De wasbuffer met veel zout is erg agressief en mag slechts precies 5 minuten in elke wasstap worden gebruikt. - Verwijder het supernatans en gooi het weg met een pipet en was met 1 ml TE-zoutbuffer; Herhaal dit nog een keer. Spoel na de tweede wasbeurt eventuele parels uit de dop van de buis.
- Maak de elutiebuffer (tabel 1) tijdens de wasbeurten. Na het weggooien van de tweede TE-zoutbufferwasbeurt, voegt u 210 μL elutiebuffer toe aan elke reactie.
- Hang de magnetische kralen op en elute bij 65 °C, schudden bij 700 tpm gedurende 15 minuten.
- Plaats de reacties op het magnetische rek, vang het eluaat op en plaats het in een vers buisje van 1,5 ml.
- Herhaal het elutieproces met nog eens 210 μL elutiebuffer en voeg het eluaat toe aan de eerste batch voor een eindvolume van 420 μL elute per IP en mock.
- Haal de invoer uit de vriezer en voeg de elutiebuffer toe tot een totaal volume van 420 μL.
- Draai alle eluaten en de input om door ze 's nachts bij 65 °C en 700 tpm te incuberen.
9. Eiwit- en RNA-vertering en DNA-zuivering
- Verdun de SDS-concentratie (zie materiaaltabel) tot 0,5% door 420 μL TE-zoutbuffer toe te voegen aan het eluaat en de input.
- Voeg voor de RNA-vertering 10 μl RNase-cocktail toe (zie materiaaltabel) en incubeer bij 42 °C bij 700 tpm gedurende 30 minuten.
- Voeg voor de eiwitvertering 8 μl proteïnase K (zie materiaaltabel) toe aan alles en incubeer gedurende 1 uur bij 55 °C bij 700 tpm.
- Volg voor DNA-zuivering het "Ren Lab ENCODE Tissue Fixation and Sonication Protocol for MicroChIP"23 met enkele aanpassingen:
- Bereid de tubes voor met Phase Lock gel (zie Materiaaltabel) door de gel naar de bodem van de tube te draaien op 20.000 x g gedurende 1 minuut bij kamertemperatuur.
- Voeg onder een zuurkast één monster en hetzelfde volume fenol:chloroform:isoamylalcohol (25:24:1) toe aan elke buis. Schud de buisjes krachtig en draai ze kort rond tot ze een schuimige witte laag vormen.
LET OP: Het mengsel is giftig, bijtend en een gevaar voor de gezondheid. - Centrifugeer gedurende 10 minuten op 4 °C en 20.000 x g. Controleer of de waterfase vrij is.
- Breng de waterige fase over in een vers buisje met behulp van een pipet. Er zijn twee verse buisjes per monster nodig, afhankelijk van het waarschijnlijke monstervolume. Breng in dat geval de helft van het monster over van de eerste naar een tweede buis.
- Voeg 1/10 van het volume in 3 M natriumacetaat (NaAc, bijv. 40 μl voor een monster van 400 μl) en 10 μl 5 mg/ml lineair acrylamide toe aan elk monster en keer het om om te mengen.
- Voeg 2x het monstervolume in 100% ethanol toe (bijv. 800 μL voor een monster van 400 μL) en schud krachtig. Draai niet terug, dit kan het DNA beschadigen.
- Incubeer bij -20 °C 's nachts of bij -80 °C gedurende 30 min.
- Koel de centrifuge af tot 4 °C en draai de monsters vervolgens 30 minuten rond op 15.000 x g om het DNA te pelleteren.
- Decanteer de pellets voorzichtig en was ze vervolgens met 1 ml 70% EtOH. Centrifugeer gedurende 5 minuten op maximale snelheid bij 4 °C.
- Voorzichtig decanteren en dan opnieuw een paar seconden centrifugeren. Gebruik een pipet om alle ethanol te verwijderen. Als er nog een klein beetje over is, kan het helpen om nog een keer te draaien.
- Resuspendeer de pellets in 30 μl nucleasevrij water (zie materiaaltabel).
OPMERKING: Als er meerdere buisjes per monster zijn, resuspendeer dan één pellet in 30 μl, breng het over naar het volgende buisje en resuspendeer de volgende pellet in dezelfde 30 μl.
- Meet de DNA-concentratie en bewaar het monster vervolgens bij -20 °C.
Resultaten
Volgens het bovenstaande protocol werd DNA geassocieerd met de trimethylering van histon 3 lysine 4 (H3K4me3) immunoprecipiteerd. Het antilichaam van ChIP-seq-kwaliteit werd eerder gebruikt op de zeeanemoon Nematostella vectensis7 en werd hier gevalideerd door de immunofluorescerende kleuring van weefselsecties van E. diaphana (Figuur 3). Hoewel de DNA-opbrengst afhankelijk is van de hoeveelheid inputmateriaal, lag deze regelmatig rond de 100 ng/μL. De verkregen DNA-fragmenten werden geanalyseerd door middel van sequencing en qPCR (primerlijst in aanvullend dossier 1).
Een sequencingdiepte van 40 miljoen lezingen leverde ~17,6 miljoen uniek in kaart gebrachte lezingen op. Na kwaliteitscontroles werden de ruwe metingen bijgesneden en in kaart gebracht op het E. diaphana-genoom met behulp van Bowtie24 (zie Materiaaltabel). De modelgebaseerde analyse van de ChIP-Seq-gegevens met MACS (zie materiaaltabel) identificeerde in totaal 19.107 pieken25. Zoals verwacht voor H3K4me3, bevonden de meeste pieken zich in de buurt van de transcriptionele startplaats (TSS), en de frequentie van het aantal pieken daalde sterk aan beide zijden van de TSS, maar vooral in de richting van het genlichaam (Figuur 4).
Uit de sequentiegegevens werden drie genen met hoge pieken rond hun TSS's geïdentificeerd, en qPCR-primers werden ontworpen om zich te richten op verschillende loci van hoge pieken binnen deze genen. De qPCR-gegevens werden genormaliseerd met behulp van de methode voor het percentage van invoer (Figuur 5). Er werd een hoge verrijking van H3K4me3 waargenomen ten opzichte van de invoer- en schijnbesturingen. Het percentage input varieerde tussen 2,7% en 10,7%, waarbij verschillen in verrijking werden waargenomen tussen genen en tussen verschillende loci binnen hetzelfde gen.
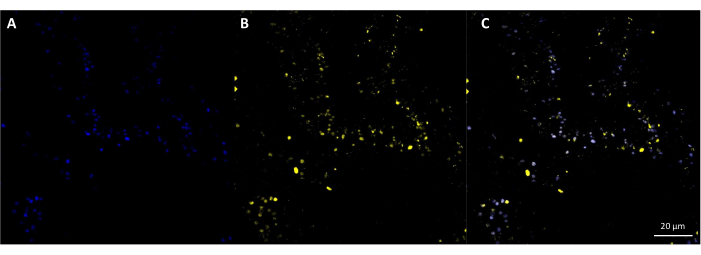
Figuur 3: Immunofluorescerende kleuring van H3K4me3. Een deel van het E. diaphana-weefsel werd gekleurd met (A) blauwe Hoechst-nucleïnezuurkleuring en (B) een geel fluorofoor-gelabeld secundair antilichaam tegen het primaire antilichaam tegen H3K4me3. (C) Een overlapping van A en B die co-lokalisatie in de kern aantoont. Schaalbalk = 20 μm. Klik hier om een grotere versie van deze figuur te bekijken.
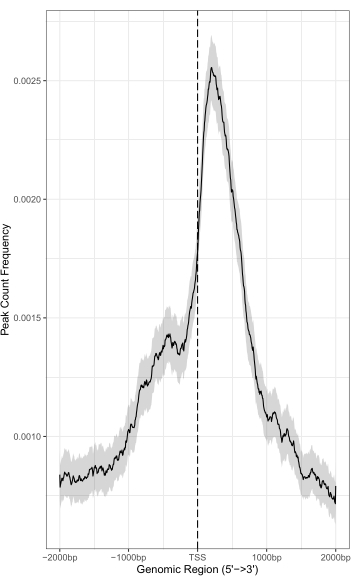
Figuur 4: Hoge frequentie van het aantal pieken rond de transcriptionele startplaats. De verdeling van de piektelfrequentie van H3K4me3-modificatie die zich uitstrekt over stroomopwaarts (−) en stroomafwaarts (+) 2.000 bp rond de transcriptionele startplaats (TSS). Klik hier om een grotere versie van deze figuur te bekijken.
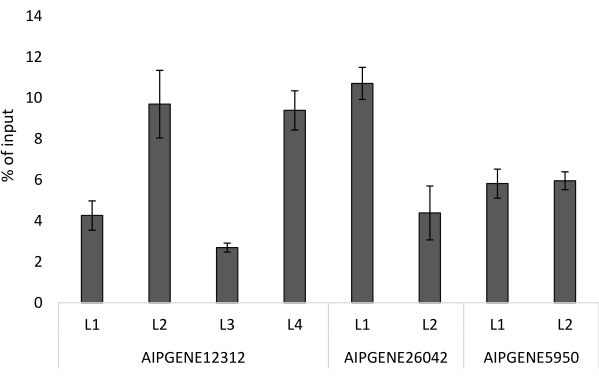
Figuur 5: H3K4me3 ChIP-qPCR in Exaiptasia diaphana. De resultaten worden weergegeven als een percentage (%) van de input. Voor ChIP-qPCR werd gekozen voor loci in de buurt van de transcriptionele startplaats van de respectievelijke genen (AIPGENE12312, AIPGENE26042 en AIPGENE5950). Foutbalken geven de standaarddeviatie tussen replicaten aan, n = 3. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullend dossier 1: Lijst van primers die voor qPCR worden gebruikt. Klik hier om dit bestand te downloaden.
Discussie
Volgens bovenstaand protocol werd het verkregen DNA met succes gebruikt voor ChIP-qPCR en ChIP-Seq. Hetzelfde algemene piekprofiel voor H3K4me3 dat eerder werd gerapporteerd van andere organismen 26,27,28 werd hier verkregen, met de hoogste piek rond de TSS en hoge verrijking op de verwachte plaatsen in de ChIP-qPCR. Het relatief hoge aantal multiply mapped reads in de ChIP-Seq-gegevens kan zijn veroorzaakt door PCR-duplicaten. Het aantal uniek in kaart gebrachte lezingen kan worden verhoogd door wijzigingen in het voorbereidingsprotocol voor de DNA-bibliotheek om PCR-duplicaten te verminderen. Er zijn verschillende normalisatiemethoden voor ChIP-qPCR-gegevens, waarbij het percentage van de invoermethode dat hier wordt gepresenteerd, vaker wordt gebruikt. Deze methode normaliseert de IP en mock samples direct naar de input, met als nadeel dat de input tijdens de ChIP anders wordt verwerkt dan de IP en mock samples, wat fouten kan introduceren. De alternatieve vouwverrijkingsmethode normaliseert het signaal van het IP op basis van het signaal van de mock met behulp van dezelfde primersets, waardoor een signaal-over-achtergrondverhouding ontstaat. De signaalintensiteit van de mock-sample kan echter sterk variëren, wat op zijn beurt grote effecten heeft op de gegevens. Een gedetailleerde bespreking van ChIP-qPCR en datanormalisatie is te vinden in Haring et al.29.
Een belangrijke aanpassing in de hierboven gepresenteerde methode in vergelijking met gangbare ChIP-protocollen is de veel langere verknopingstijd, van ongeveer 15 minuten voor histon-eiwitten tot een nachtelijke incubatie. Het belangrijkste doel van deze aanpassing is om de penetratie van het fixeermiddel formaldehyde door de slijmlaag in het diepere weefsel van E. diaphana te vergemakkelijken om de eiwit-DNA-interacties in de kern te behouden. Optimalisatie van deze stap is van cruciaal belang om voldoende verknoping te garanderen om de eiwit-DNA-interacties te behouden zonder zo veel te verknopen dat het afschuiven van het chromatine door sonicatie ineffectief wordt. Het toevoegen van reinigingsmiddelen zoals SDS kan ook de sonicatie-efficiëntie verhogen29. Bovendien bleek een lange incubatie met formaldehyde de homogenisatiestap te vergemakkelijken en resulteerde dit in een fijner en gelijkmatiger gemalen monster in vergelijking met verse of bevroren anemonen die vóór de verknopingsstap werden gehomogeniseerd. De aanbevolen bereiken van fragmentlengtes variëren tussen 100 bp en 1.000 bp29,30 en kunnen afhankelijk zijn van het doeleiwit. Het is van cruciaal belang dat elke gebruiker de sonicatieomstandigheden optimaliseert om de gewenste fragmentlengte te bereiken met zo min mogelijk sonicatievermogen, aangezien oversonicatie de eiwitten kan denatureren en dus de IP31 kan beïnvloeden. Een andere beperking van ChIP is de hoeveelheid materiaal die nodig is, wat vooral relatief kleine organismen zoals anemonen treft; Dit probleem is verholpen door het verlies van monsters tussen de stappen te verminderen. Na het homogeniseren van het monster werd het onmiddellijk gelyseerd, waarbij verschillende gebruikelijke stappen voor de bereiding van kernen werden overgeslagen. De monsterpool verkregen uit 20 anemonen bevatte over het algemeen voldoende chromatine voor drie IP's en zowel proef- als invoercontroles. De hoeveelheid uitgangsmateriaal (d.w.z. het aantal anemonen) zou in de toekomst verder kunnen worden verminderd, vooral bij het uitvoeren van een ChIP met slechts één doeleiwit. Afhankelijk van de beoogde stroomafwaartse methode moeten de controles worden aangepast; voor ChIP-qPCR moet worden overwogen om aanvullende controles29 op te nemen, terwijl voor ChIP-seq de mock kan worden weggelaten ten gunste van een invoercontrole.
Hoewel de validatie van antilichamen buiten het bestek van dit protocol valt en hier dus slechts kort is aangestipt, is het een cruciale stap voordat ChIP wordt uitgevoerd. Vooral bij het gebruik van commerciële antilichamen op ongewervelde soorten kan de beschikbaarheid van specifieke antilichamen voor de gewenste doelen een beperking zijn. In de eerste stap werd de H3 N-terminale staartsequentie van E. diaphana en andere modelorganismen, waaronder zebravissen en muizen, vergeleken en bleek sterk geconserveerd te zijn12. De specificiteit van het antilichaam werd vervolgens getest met behulp van immunofluorescentie, die de signalen van het nucleïnezuur en het antilichaam co-lokaliseerde. Het piekprofiel van H3K4me3 rond de TSS, verkregen uit de sequentiegegevens, geeft verder vertrouwen met betrekking tot de specificiteit van het antilichaam.
Een andere overweging met betrekking tot de specificiteit van antilichamen is de mogelijkheid van enige interactie met de symbiotische dinoflagellaten die E. diaphana, evenals vele andere anthozoën, in hun cellen hosten. Transcriptoomanalyses in dinoflagellaten van de geslachten Lingulodinium32 en Symbiodinium33 hebben histoncoderende genen gevonden, waaronder kernhiston H3 en verschillende H3-varianten bij lage expressieniveaus, en de mate van functioneel behoud van de histoncode is onduidelijk34. Marinov en Lynch34 vergeleken de sequentieconservering van H3-variant N-terminale staarten binnen en tussen dinoflagellaatsoorten, en Symbiodiniaceae-soorten vertoonden een hoge divergentie rond lysine 4 in de staartsequentie, vooral wanneer de congruentie van aangrenzende aminozuren met lysine 4 als een factor wordt beschouwd. Er is ook aangetoond dat deze regio afwijkt van andere modelsoorten zoals Arabidopsis thaliana, Drosophila melanogaster en Saccharomyces cerevisiae, die overeenkomen met de sequentie van E. diaphana12. Daarom is het risico op onbedoelde interactie van het antilichaam tegen H3K4me3 met dinoflagellaat H3 laag. Bovendien zijn de sequenties alleen uitgelijnd met het genoom van E. diaphana en moeten de qPCR-primers specifiek zijn voor E. diaphana-sequenties , waardoor een extra filtratielaag wordt geboden van onbedoeld neergeslagen sequenties.
Het gepresenteerde ChIP-protocol levert voldoende DNA op voor qPCR en sequencing van de volgende generatie, en hoewel individuele optimalisatie door elke gebruiker waarschijnlijk nodig zal zijn, biedt het een startpunt voor meer onderzoek naar eiwit-DNA-interacties bij benthische cnidarians, mogelijk in de context van symbiose en veranderingen in het milieu.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 1 kb Plus DNA Ladder | Invitrogen | 10787018 | |
| 100% Ethanol | |||
| 15 mL falcon tubes | |||
| 16% Formaldehyde Solution (w/v), Methanol-free | Thermo scientific | 28906 | |
| 5 mL tube | |||
| 5PRIME Phase Lock tubes | Quantabio | 2302820 | Phase lock gel - light |
| AGANI needle 25 G | Terumo | AN*2516R1 | |
| Agarose | |||
| Bovine Serum Albumin | Sigma-Aldrich | A7030 | |
| Bowtie | open source, available from https://bowtie-bio.sourceforge.net/index.shtml | ||
| Branson sonifier 250 | Branson | Sonicator | |
| Centrifuge | Eppendorf | 5430 R | Met rotoren voor 15 mL en 1,5 mL buizen |
| ChIP-grade antibody (here polyclonal H3K4me3 antibody) | Diagenode | C15410003 | |
| Complete EDTA-free Protease Inhibitor Cocktail | Roche | 11873580001 | 2 tablets/mL water voor 100x stock |
| Cover glass | vwr | 48393 194 | |
| Disposable Spatula | vwr | 80081-188 | |
| DNA purification kit (here QIAGEN QIAquick PCR purification kit) | QIAGEN | 28104 | |
| Dounce tissue grinder | Wheaton | tight pestle | |
| Dulbecco's Phosphate Buffered Saline (DPBS) 1x | gibco | 14190-094 | |
| Dynabeads Protein G | Thermo Fisher Scientific | 10004D | |
| EDTA | Sigma-Aldrich | 3609 | |
| EGTA | Sigma-Aldrich | 324626 | |
| Electrophoresis system | |||
| Ethidium bromide | |||
| FASTQC v0.11.9 | software | ||
| Gel Doc EZ Documentation System | Bio-Rad | 1708270 | Gel imaging system |
| Glycine | Sigma-Aldrich | 50046 | |
| Injekt-F Tuberculin syringe 1 mL | B. Braun | 9166017V | |
| Linear acrylamide (5 mg/mL) | Invitrogen | AM9520 | |
| Low-retention 1.5 mL tube | |||
| Magnetic separation rack | voor 1,5 mL buizen | ||
| Microscope | |||
| Microscope slide | |||
| Model-based Analysis of ChIP-Seq (MACS) | open source | ||
| Mortar and pestle, porcelain | |||
| NanoDrop 2000c spectrophotometer | Thermo scientific | ND-2000C | |
| N-lauroylsarcosine | Sigma-Aldrich | 61739 | |
| Nuclease-free water | |||
| Pasteur pipette | |||
| Phenol:Chloroform:Isoamyl Alcohol Mixture (25:24:1) | Sigma-Aldrich | 77617 | |
| Proteinase K (20 mg/mL) | Ambion | AM2546 | |
| Purple Loading Dye 6x | New England BioLabs | B7024S | |
| Qubit 2.0 Fluorometer | Invitrogen | ||
| RNase Cocktail Enzyme Mix | Invitrogen | AM2286 | RNase A = 500 U/mL, RNase T1 = 20000 U/mL |
| Sodium acetate | Sigma-Aldrich | S2889 | |
| Sodium chloride | Sigma-Aldrich | S9888 | |
| Sodium deoxycholate | Sigma-Aldrich | 30970 | |
| SYBR Safe DNA Gel Stain | Invitrogen | S33102 | |
| TAE buffer | |||
| Thermomixer | Eppendorf | 5384000012 | |
| Tris base | Sigma-Aldrich | 10708976001 | |
| Triton X-100 solution | Sigma-Aldrich | 93443 | |
| Trypan Blue Stain (0.4%) | Gibco | 15250-061 | Gevaar: kan kanker veroorzaken. Verdacht van schade aan de vruchtbaarheid of het ongeboren kind |
| Tube rotator SB3 | Stuart | ||
| UltraPure SDS Solution, 10% | Invitrogen | 15553027 | |
| Vacuum pump |
Referenties
- Pörtner, H. -O. 2022: Summary for Policymakers. Climate Change 2022: Impacts, Adaptation, and Vulnerability. Contribution of Working Group II to the Sixth Assessment Report of the Intergovernmental Panel on Climate Change. , Cambridge University Press. Cambridge, UK. (2022).
- Cziesielski, M. J., Schmidt-Roach, S., Aranda, M. The past, present, and future of coral heat stress studies. Ecology and Evolution. 9 (17), 10055-10066 (2019).
- Eirin-Lopez, J., Putnam, H. Marine environmental epigenetics. Annual Review of Marine Science. 11, 335-368 (2021).
- Rädecker, N. Using Aiptasia as a model to study metabolic interactions in cnidarian-Symbiodinium symbioses. Frontiers in Physiology. 9 (214), (2018).
- Baumgarten, S. The genome of Aiptasia, a sea anemone model for coral symbiosis. PNAS. 112 (38), 11893-11898 (2015).
- Strahl, B. D., Allis, C. D. The language of covalent histone modifications. Nature. 403 (6765), 41-45 (2000).
- Schwaiger, M. Evolutionary conservation of the eumetazoan gene regulatory landscape. Genome Research. 24 (4), 639-650 (2014).
- Zhang, X., Jacobs, D. A broad survey of gene body and repeat methylation in cnidaria reveals a complex evolutionary history. Genome Biology and Evolution. 14 (2), evab284(2022).
- Schwaiger, M. An ancestral Wnt-Brachyury feedback loop in axial patterning and recruitment of mesoderm-determining target genes. Nature Ecology & Evolution. 6 (12), 1921-1939 (2022).
- Ozment, E., et al. Cnidarian hair cell development illuminates an ancient role for the class IV POU transcription factor in defining mechanoreceptor identity. Elife. 10, e74336(2021).
- Baumgarten, S., et al. Evidence for miRNA-mediated modulation of the host transcriptome in cnidarian-dinoflagellate symbiosis. Molecular Ecology. 27 (2), 403-418 (2018).
- Li, Y. DNA methylation regulates transcriptional homeostasis of algal endosymbiosis in the coral model Aiptasia. Science Advances. 4 (8), eaat2142(2018).
- Rodriguez-Casariego, J. A., Cunning, R., Baker, A. C., Eirin-Lopez, J. M. Symbiont shuffling induces differential DNA methylation responses to thermal stress in the coral Montastraea cavernosa. Molecular Ecology. 31 (2), 588-602 (2021).
- Putnam, H. M., Davidson, J. M., Gates, R. D. Ocean acidification influences host DNA methylation and phenotypic plasticity in environmentally susceptible corals. Evolutionary Applications. 9 (9), 1165-1178 (2016).
- Weizman, E., Levy, O. The role of chromatin dynamics under global warming response in the symbiotic coral model Aiptasia. Communications Biology. 2, 282(2019).
- Liew, Y. J. Epigenome-associated phenotypic acclimatization to ocean acidification in a reef-building coral. Science Advances. 4 (6), eaar8028(2018).
- Liew, Y. J. Intergenerational epigenetic inheritance in reef-building corals. Nature Climate Change. 10 (3), 254-259 (2020).
- Liew, Y. J., et al. Identification of microRNAs in the coral Stylophora pistillata. PLoS One. 9 (3), e91101(2014).
- Huang, C., et al. Identification of long non-coding RNAs in two anthozoan species and their possible implications for coral bleaching. Scientific Reports. 7, 5333(2017).
- Rodriguez-Casariego, J. A., et al. Coral epigenetic responses to nutrient stress: Histone H2A.X phosphorylation dynamics and DNA methylation in the staghorn coral Acropora cervicornis. Ecology and Evolution. 8 (23), 12193-12207 (2018).
- Bodega, B., et al. A cytosolic Ezh1 isoform modulates a PRC2-Ezh1 epigenetic adaptive response in postmitotic cells. Nature Structural & Molecular Biology. 24 (5), 444-452 (2017).
- Jordán-Pla, A., Visa, N. Considerations on experimental design and data analysis of chromatin immunoprecipitation experiments. Chromatin Immunoprecipitation., edited by Visa, N., Jordán-Pla, A. Visa, N., Jordán-Pla, A. , Humana Press. Totowa, NJ. 9-28 (2017).
- ENCODE. Ren Lab ENCODE Tissue Fixation and Sonication Protocol for MicroChIP. , Stanford University. Available from: https://www.encodeproject.org/documents/ (2023).
- Langmead, B., Trapnell, C., Pop, M., Salzberg, S. L. Ultrafast and memory-efficient alignment of short DNA sequences to the human genome. Genome Biology. 10, R25(2009).
- Feng, J., Liu, T., Qin, B., Zhang, Y., Liu, X. S. Identifying ChIP-seq enrichment using MACS. Nature Protocols. 7, 1728-1740 (2012).
- Howe, F. S., Fischl, H., Murray, S. C., Mellor, J. Is H3K4me3 instructive for transcription activation. BioEssays. 39 (1), e201600095(2017).
- Zhang, Z., Shi, L., Dawany, N., Kelsen, J., Petri, M. A., Sullivan, K. E. H3K4 tri-methylation breadth at transcription start sites impacts the transcriptome of systemic lupus erythematosus. Clinical Epigenetics. 8, 14(2016).
- Li, X. High-resolution mapping of epigenetic modifications of the rice genome uncovers interplay between DNA methylation, histone methylation, and gene expression. The Plant Cell. 20, 2-276 (2008).
- Haring, M. Chromatin immunoprecipitation: optimization, quantitative analysis and data normalization. Plant Methods. 3, 11(2014).
- Landt, S. G. ChIP-seq guidelines and practices of the ENCODE and modENCODE consortia. Genome Research. 22 (9), 1813-1831 (2012).
- Raha, D., Hong, M., Snyder, M. ChIP-Seq: A method for global identification of regulatory elements in the genome. Current Protocols in Molecular Biology. Chapter 21, Unit 21.19.1-Unit 21.19.14 (2010).
- Roy, S., Morse, D. A full suite of histone and histone modifying genes are transcribed in the dinoflagellate Lingulodinium. PLoS One. 7 (4), e34340(2012).
- Bayer, T., et al. Symbiodinium transcriptomes: Genome insights into the dinoflagellate symbionts of reef-building corals. PLoS One. 7 (4), e35269(2012).
- Marinov, G. K., Lynch, M. Diversity and divergence of dinoflagellate histone proteins. G3 Genes, Genomes, Genetics. 6 (2), 397-422 (2016).
Herprints en machtigingen
