Het neusepitheel is de primaire barrièreplaats waar alle respiratoire pathogenen voorkomen. Hier schetsen we methoden om primaire neusepitheelcellen te gebruiken die zijn gekweekt als lucht-vloeistofinterface (ALI)-culturen om menselijke interacties tussen coronavirus en gastheer in een fysiologisch relevant systeem te karakteriseren.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Infectie van primaire neusepitheelcellen gekweekt op een lucht-vloeistofinterface om menselijke interacties tussen coronavirus en gastheer te karakteriseren
In dit artikel
Samenvatting
Samenvatting
Drie hoogpathogene menselijke coronavirussen (HCoV's) - SARS-CoV (2002), MERS-CoV (2012) en SARS-CoV-2 (2019) - zijn ontstaan en hebben de afgelopen 20 jaar aanzienlijke volksgezondheidscrises veroorzaakt. Vier extra HCoV's veroorzaken elk jaar een aanzienlijk deel van de verkoudheidsgevallen (HCoV-NL63, -229E, -OC43 en -HKU1), wat het belang benadrukt van het bestuderen van deze virussen in fysiologisch relevante systemen. HCoV's komen de luchtwegen binnen en brengen een infectie tot stand in het neusepitheel, de primaire plaats waar alle respiratoire pathogenen worden aangetroffen. We gebruiken een primair neusepitheelkweeksysteem waarin van patiënten afkomstige neusmonsters worden gekweekt op een lucht-vloeistofinterface (ALI) om gastheer-pathogeen interacties op deze belangrijke schildwachtplaats te bestuderen. Deze culturen recapituleren vele kenmerken van de in vivo luchtwegen, waaronder de aanwezige celtypen, ciliaire functie en slijmproductie. We beschrijven methoden om virale replicatie, gastheerceltropisme, virusgeïnduceerde cytotoxiciteit en aangeboren immuuninductie in nasale ALI-culturen na HCoV-infectie te karakteriseren, met behulp van recent werk waarin letale en seizoensgebonden HCoV's als voorbeeldworden vergeleken 1. Een beter begrip van gastheer-pathogeen interacties in de neus heeft het potentieel om nieuwe doelen te bieden voor antivirale therapieën tegen HCoV's en andere respiratoire virussen die waarschijnlijk in de toekomst zullen opduiken.
Inleiding
Tot op heden zijn zeven menselijke coronavirussen (HCoV's) geïdentificeerd die een reeks aandoeningen van de luchtwegen veroorzaken2. De veel voorkomende of seizoensgebonden HCoV's (HCoV-NL63, -229E, -OC43 en -HKU1) worden doorgaans geassocieerd met pathologie van de bovenste luchtwegen en veroorzaken jaarlijks naar schatting 10%-30% van de verkoudheidsgevallen. Hoewel dit het typische klinische fenotype is dat geassocieerd wordt met de veel voorkomende HCoV's, kunnen deze virussen een significantere ziekte van de onderste luchtwegen veroorzaken bij risicopopulaties, waaronder kinderen, oudere volwassenen en immuungecompromitteerdepersonen. Drie pathogene HCoV's zijn de afgelopen 20 jaar ontstaan en hebben aanzienlijke noodsituaties op het gebied van de volksgezondheid veroorzaakt, waaronder ernstig acuut respiratoir syndroom (SARS)-CoV, Middle East respiratory syndrome (MERS)-CoV en SARS-CoV-2. Dodelijke HCoV's worden in verband gebracht met ernstigere pathologie van de luchtwegen, wat duidelijk wordt geïllustreerd door het sterftecijfer van >34% geassocieerd met MERS-CoV-gevallen (894 sterfgevallen op meer dan 2.500 gevallen sinds de opkomst in 2012)5,6. Het is belangrijk op te merken dat de dodelijke HCoV's ook een reeks aandoeningen van de luchtwegen veroorzaken, van asymptomatische infecties tot dodelijke longontsteking, zoals te zien is bij de aanhoudende COVID-19-pandemie7.
HCoV's komen, net als andere respiratoire pathogenen, de luchtwegen binnen en vestigen een productieve infectie in het neusepitheel8. Verspreiding naar de onderste luchtwegen wordt verondersteld geassocieerd te zijn met aspiratie van de mond-/neusholte naar de long, waar HCoV's een significantere pathologie van de onderste luchtwegen veroorzaken 9,10,11. De neus dient dus als het eerste portaal voor het binnendringen van virussen en is de primaire barrière tegen infectie met zijn robuuste mucociliaire klaringsmachinerie en unieke aangeboren immuunmechanismen die gericht zijn op het voorkomen van verdere virale verspreiding naar de lagere luchtwegen12,13. Van neusepitheelcellen is bijvoorbeeld gemeld dat ze hogere dan gemiddelde basale niveaus van antivirale interferonen en interferon-gestimuleerde genen tot expressie brengen, wat aangeeft dat neuscellen mogelijk voorbereid zijn op vroege reacties op respiratoire virussen14,15,16.
We hebben eerder van patiënten afgeleide primaire neusepitheelcellen gebruikt die zijn gekweekt op een lucht-vloeistofinterface (ALI) om HCoV-gastheerinteracties in de neus te modelleren, waar HCoV-infecties beginnen. Nasale ALI-culturen zijn tolerant voor zowel pathogene (SARS-CoV-2 en MERS-CoV) als veel voorkomende HCoV's (HCoV-NL63 en HCoV-229E) en bieden verschillende voordelen ten opzichte van traditionele luchtwegepitheelcellijnen zoals A549 (een longadenocarcinoomcellijn)16,17. Na differentiatie bevatten nasale ALI-culturen een heterogene cellulaire populatie en vertonen ze veel van de functies die van het in vivo neusepitheel worden verwacht, zoals mucociliaireklaringsmachines18. Neuscellen bieden ook voordelen ten opzichte van kweeksystemen van de lagere luchtwegen (zoals menselijke bronchiale epitheelcellen, HBEC's), aangezien de verwerving van neusepitheelcellen via cytologisch poetsen aanzienlijk minder invasief is in vergelijking met het gebruik van technieken zoals bronchoscopie voor het bereiken van HBEC's 19,20,21.
Dit artikel beschrijft methoden voor het gebruik van dit nasale ALI-kweeksysteem om HCoV-gastheerinteracties in het neusepitheel te karakteriseren. We hebben deze methoden toegepast in recent gepubliceerde werken om SARS-CoV-2, MERS-CoV, HCoV-NL63 en HCoV-229E 1,16,17 te vergelijken. Hoewel deze methoden en representatieve resultaten de nadruk leggen op de studie van HCoV's in dit neuscelmodel, is het systeem zeer aanpasbaar aan andere HCoV's en andere respiratoire pathogenen. Verder kunnen deze methoden breder worden toegepast op andere ALI-kweeksystemen om virale replicatie en cellulair tropisme te onderzoeken, evenals cytotoxiciteit en aangeboren immuuninductie na infectie.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Het gebruik van neusmonsters werd goedgekeurd door de University of Pennsylvania Institutional Review Board (protocol # 800614) en de Philadelphia VA Institutional Review Board (protocol # 00781).
1. Infectie van nasale ALI-culturen
OPMERKING: Verwerving van klinische monsters, evenals groei en differentiatie van nasale ALI-culturen, valt buiten het bestek van dit artikel. Specifieke methoden voor het kweken van primaire neusepitheelcellen zijn te vinden in recent gepubliceerde werken die gebruik maken van deze culturen18,22,23. De onderstaande protocollen kunnen desgewenst ook worden toegepast op in de handel verkrijgbare nasale epitheliale ALI-culturen. De hieronder beschreven protocollen en volumes zijn van toepassing op 24-wells plaattranswell-inzetstukken (6,5 mm diameter, 0,33cm2 membraanoppervlak). Als u ALI-culturen gebruikt die op grotere transwells worden gekweekt (d.w.z. platen met 12 putjes, 12 mm diameter, 1,12cm2 oppervlak), pas dan de volumes proportioneel aan om de grootte van de transwell weer te geven.
- Dag voor infectie:
- Was ALI-culturen 3x apicaal met fosfaatgebufferde zoutoplossing (PBS) (voeg ~200 μL opgewarmde PBS toe, plaats gedurende 5 minuten in een incubator van 37 °C, zuig PBS op en herhaal).
- Vervang het basale medium (500 μL).
- Laat culturen balanceren bij de temperatuur waarbij infecties 's nachts zullen worden uitgevoerd (d.w.z. als ze bij 33 °C infecteren, plaats dan culturen in een incubator van 33 °C na PBS-wasbeurten).
OPMERKING: HCoV's geassocieerd met verkoudheid, zoals HCoV-229E en HCoV-NL63, repliceren naar verluidt efficiënter bij 33 °C. Bovendien is de temperatuur van het in vivo neusepitheel 33 °C (dit verschilt van de temperatuur van de long, die 37 °C is).
- Verdun het virus indien nodig in serumvrije Dulbecco's Modified Eagle Medium (DMEM) om de gewenste multipliciteit van infectie (MOI) te bereiken in een totaal inoculumvolume van 50 μL.
OPMERKING: Infecties zijn meestal uitgevoerd bij MOI = 5 (hoge MOI); infecties met MOI = 0,5 (laag MOI) zijn echter ook gebruikt voor SARS-CoV-2 en verkoudheids-geassocieerde HCoV's, en deze resulteren in vergelijkbare piekvirale titers, maar met variabele kinetiek (beide MOI zijn acceptabel). - Voeg inoculum apicaal toe en plaats de culturen gedurende 1 uur terug in de incubator.
- Schud de platen voorzichtig om de 15 minuten tijdens infectie (houd de plaat stevig in beide handen, schommel naar voren en naar achteren en van links naar rechts om een gelijkmatige adsorptie van viraal inoculum te garanderen).
- Na 1 uur incubatie, het virale inoculum aspireren en elke geïnfecteerde cultuur 3x wassen met PBS om ervoor te zorgen dat het virale inoculum wordt verwijderd (voeg voor elke wasbeurt 200 μL PBS toe, incubeer gedurende 5 minuten en aspireer of verwijder met een pipet).
- Verzamel desgewenst de derde PBS-wasbeurt om te bevestigen dat het invoervirus voldoende is verwijderd.
- Vervang het basale medium tijdens infectie elke 72 uur door vers medium op geïnfecteerde ALI's.
2. Opvang van apicale oppervlaktevloeistof (ASL) en titratie van het uitgescheiden virus
- Voeg op vooraf bepaalde tijdstippen na infectie 200 μL PBS toe aan de apicale kamer van elke geïnfecteerde transwell.
OPMERKING: Relevante tijdstippen variëren afhankelijk van HCoV van belang en variëren van 24 uur tot 192 uur na infectie (zie de sectie representatieve resultaten voor virale replicatiegegevens voor verschillende HCoV's). - Pipetteer PBS 5x op en neer om een maximale opvang van apicaal uitgescheiden virus te garanderen en verzamel het volledige volume in een microcentrifugebuis (dit is het ASL-monster).
OPMERKING: ASL omvat uitgestoten virale deeltjes naast slijm en andere producten die apicaal worden uitgescheiden door ALI-culturen. - Kwantificeer infectieus virus in ASL via standaard virale plaque-assay (serieel verdunnen van virusbevattende monsters om de concentratie van virale deeltjes te kwantificeren).
OPMERKING: Celtypen en incubatietijd die worden gebruikt voor plaque-assay zijn afhankelijk van het gebruikte virus: SARS-CoV-2 (VeroE6-cellen); MERS-CoV (VeroCCL81-cellen); HCoV-NL63 (LLC-MK2-cellen); HCoV-229E (Huh7-cellen). Bijzonderheden over het uitvoeren van virale plaque-assays vallen buiten het bestek van dit manuscript, maar zijn eerder beschreven in een Journal of Visualized Experiments (JoVE) publicatie24. - Verzamel desgewenst het basale medium op verschillende tijdstippen na infectie om de afwezigheid van basaal vrijgegeven virus te bevestigen. HCoV's worden meestal apicaal vrijgegeven uit neusepitheelcellen, maar bevestigen dit via plaquetest van onverdund basaal medium.
- Bewaar ASL-monsters bij −80 °C als kwantificering door middel van plaquetest niet plaatsvindt op de dag van afname.
3. Kwantificering van intracellulair virus
- Na het verzamelen van het ASL-monster, verplaatst u elke transwell naar een schone plaat met 24 putjes die vooraf is geladen met 500 μL DMEM met 2% foetaal runderserum (FBS) basaal.
OPMERKING: DMEM met 2% FBS wordt gebruikt om het virus te stabiliseren tijdens volgende vries-dooicycli. - Was elke transwell 3x apicaal met PBS om ervoor te zorgen dat het apicaal uitgestoten virus volledig wordt verwijderd.
- Voeg na het aanzuigen om de laatste PBS-was te verwijderen 100 μL DMEM met 2% FBS toe aan het apicale compartiment.
- Verplaats de plaat met transwells met zowel apicale als basale media naar een vriezer van -80 °C en voltooi drie opeenvolgende vries-dooicycli om de cellen te lyseren.
- Na de laatste vries-dooicyclus, poolt u apicale (100 μL) en basale (500 μL) media in een schone buis.
- Centrifugeer bij 500 × g gedurende 10 minuten bij 4 °C om eventuele celresten te pelleteren.
- Verzamel de supernatant. Dit is het intracellulaire virusmonster voor titratie via standaard plaquetest.
OPMERKING: Drievoudige verdunning vindt plaats tijdens het verzamelproces ten opzichte van ASL-verzameling; ASL-monsters worden verzameld in 200 μL PBS, terwijl intracellulair virusmonster wordt verzameld in een totaal volume van 600 μL.
4. Meting van de transepitheliale elektrische weerstand (TEER)
OPMERKING: Voor TEER-metingen moet PBS aangevuld met calcium en magnesium (PBS + Ca 2+/Mg2+) worden gebruikt. Er wordt gebruik gemaakt van een epitheliale volt/ohmmeter die is ingesteld om in ohm af te lezen (zie de tabel met materialen).
- Reinig, balanceer en leeg het EVOM-instrument volgens de instructies van de fabrikant; Gebruik een "lege" transwell zonder toevoeging van neuscellen voor blanking. Registreer blanco TEER-metingen.
NOTITIE: Als u meerdere virussen gebruikt, moet het EVOM-instrument tussen de omstandigheden door streng worden gereinigd om kruisbesmetting te voorkomen (wasbeurten met 70% ethanol gevolgd door gedeïoniseerd water zijn voldoende). - Verplaats elke geïnfecteerde transwell naar een vooraf geëtiketteerde, schone plaat met 24 putjes met 500 μL PBS + Ca 2+/Mg2+ basaal om het resterende basaalmedium uit de transwells te wassen.
- Voeg 200 μL PBS + Ca 2+/Mg2+ toe aan het apicale compartiment van elke transwell.
- Voeg 1 ml PBS + Ca 2+/Mg2+ toe aan de Endohm-6 meetkamer.
- Verplaats elke transwell in de Endohm-6-meetkamer en plaats het deksel van de kamer terug zodat de apicale elektrode in de 200 μL PBS in het apicale compartiment rust; de basale elektrode is ingebouwd in de bodem van de Endohm-6-kamer.
- Laat de EVOM-meting stabiliseren en registreer de onbewerkte TEER-meting.
- Verzamel het ASL-monster zoals hierboven beschreven na het uitvoeren van een TEER-meting als titeren gewenst is (verzamel in de 200 μL PBS + Ca 2+/Mg2+ die is toegevoegd voor TEER-meting).
OPMERKING: ASL-monsterafname kan microscheurtjes in de epitheelbarrière veroorzaken die TEER-metingen kunnen verstoren, dus ASL moet worden verzameld na TEER-meting. Verder mag het basale medium niet onmiddellijk vóór de TEER-metingen worden gewijzigd, omdat dit ook van invloed kan zijn op de TEER-waarden. - Om ruwe TEER-metingen om te zetten in eindmetingen in Ohm/cm2, trekt u de blanco TEER-waarde af en vermenigvuldigt u deze waarde met het oppervlak van het transwellmembraan met behulp van vergelijking (1):
TEER = [TEER-waarde - blanco TEER-waarde] × (oppervlakte van de transwell) (1) - Evalueer TEER voor HCoV's elke 24 uur of 48 uur na infectie; de kinetiek van TEER-veranderingen varieert vaak tussen virussen en vereist probleemoplossing op verschillende tijdstippen.
- Neem bij het meten van TEER altijd nep-geïnfecteerde culturen op en evalueer op elk tijdstip (negatieve controle).
OPMERKING: Voor namaakculturen moeten TEER-metingen stabiel blijven of licht toenemen ten opzichte van de uitgangswaarde nadat de differentiatie van de culturen is voltooid. Het oppervlak van membraansteunen is afhankelijk van de grootte en de fabrikant van transwells; Transwells met 24 putjes hebben doorgaans een oppervlakte van 0,33cm2.
5. Meting van cytotoxiciteit tijdens infectie via lactaatdehydrogenase (LDH)-test
OPMERKING: In dit werk werd het LDH-gehalte in ASL-monsters gekwantificeerd met behulp van een in de handel verkrijgbare cytotoxiciteitsdetectiekit. Het LDH-signaal in het basale medium lag vaak onder de detectiegrens en was vaak minder reproduceerbaar dan LDH gekwantificeerd in ASL-monsters van HCoV-geïnfecteerde culturen.
- Bereid aanvullende controles voor die nodig zijn voor de LDH-test.
- Achtergrondcontrole: gebruik PBS (gebruik PBS dat calcium en magnesium bevat als ASL-monsters op deze manier zijn verzameld).
- Positieve controle (plafondwaarde): behandel ALI's apicaal met Triton X-100. Verzamel Triton-controleputten (gebruik hiervoor meestal drie ALI-culturen op elk tijdstip).
- Voeg 200 μL 2% Triton X-100 in PBS rechtstreeks toe aan het apicale compartiment van de transwell.
- Incubeer gedurende 10-15 minuten om de cellen volledig te laten lysen.
- Verzamel het volledige volume als een Triton-plafondmonster.
- Negatieve controle (lage controle/baseline LDH-afgifte): verzamel ASL van nep-geïnfecteerde ALI-culturen afkomstig van dezelfde donor als geïnfecteerde culturen.
- Verzamel negatieve controle mock ASL volgens de ASL-verzamelprocedure hierboven.
OPMERKING: Dezelfde transwells kunnen worden gebruikt voor deze negatieve controle voor alle tijdstippen, terwijl voor elk tijdstip nieuwe transwells nodig zijn voor de Triton-controle.
- Verzamel negatieve controle mock ASL volgens de ASL-verzamelprocedure hierboven.
- Om naast de LDH-metingen van elk ASL-monster ook de kwantificering van het uitgescheiden virus mogelijk te maken, plaatst u als volgt een optisch heldere zwarte plaat met platte bodem van 96 putjes:
- Verdun alle monsters in PBS met 45 μl monster en 55 μl PBS (totaal volume van 100 μl).
- Behandel Triton positieve controle en mock achtergrondcontrole monsters op dezelfde manier.
OPMERKING: Deze verdunning maakt het mogelijk om elk experimenteel monster in drievoud te laden (45 μL x 3) en voldoende resterend ASL-volume voor titering via plaquetest. - Laad LDH-plaat in drievoud: Triton-plafond, nep-achtergrondcontrole, PBS-regeling en experimentele monsters.
- Bereid het reactiemengsel zoals aangegeven door de fabrikant (kleurstofoplossing + katalysator).
- Voeg 100 μL reactiemengsel toe aan elk putje en incubeer de plaat gedurende 20 minuten bij kamertemperatuur, beschermd tegen licht.
- Meet na 20 minuten de extinctie bij 492 nm.
- Bereken de procentuele cytotoxiciteit ten opzichte van de Triton-plafondwaarde met behulp van vergelijking (2).
Cytotoxiciteit (%)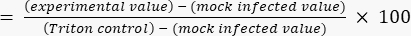 (2)
6. Bereiding van nasale ALI-culturen voor immunofluorescentie (IF) beeldvorming
- Verplaats de transwell naar een verse plaat met 24 putjes en was 3x apicaal met PBS (verzamel de eerste PBS-wasbeurt als ASL bij titeren; voer vervolgens twee extra PBS-wasbeurten uit om overtollig afgeworpen virus te verwijderen dat de IF-kwaliteit zou kunnen belemmeren)
- Bedek na de laatste PBS-wasbeurt de transwell apicaal en basaal met 4% PFA.
- Incubeer gedurende 30 minuten om te fixeren in 4% PFA, verwijder en was vervolgens 3x met PBS.
- Snijd de transwell-steun met de cellen weg met behulp van een geslepen scheermesje of schaar.
- Om het aantal IF-doelen voor elk transwell te verhogen, snijdt u elk membraan doormidden en kleurt u elke helft met verschillende antilichaamcombinaties.
- Permeabiliseer met 0,2% Triton X-100 in PBS gedurende 10 min.
- Blokkeer met 10% normaal ezelinnenserum en 1% BSA in PBST (PBS + 0,2% Triton X-100) gedurende 60 minuten bij kamertemperatuur.
NOTITIE: Bescherm monsters vanaf deze stap tegen blootstelling aan licht. - Incubeer gedurende een nacht bij 4 °C in primaire antilichaamoplossing. Verdun alle antilichamen 1:1.000 in de blokkeerbuffer.
OPMERKING: Representatieve antilichamen voor HCoV-nucleocapsidekleuring, evenals markers van het epitheelceltype en cytoskeletkleuringen, worden hieronder vermeld (zie de materiaaltabel voor informatie over de fabrikant en catalogusnummers).- Gebruik voor HCoV-antigeenkleuring antilichamen die gericht zijn op SARS-CoV-2-nucleocapside, MERS-CoV-nucleocapside en HCoV-NL63-nucleocapside.
- Om epitheelceltypen te identificeren, gebruikt u antilichamen die gericht zijn op bekercelmarker MUC5AC en trilhaarcelmarker type IV β-tubuline.
- Gebruik voor cytoskeletmarkers antilichamen gericht tegen falloïdine (bindt F-actine) en epitheelceladhesiemarker: EpCAM (CD326).
- Incubeer gedurende 60 minuten bij kamertemperatuur in een secundaire antilichaamoplossing; Gebruik secundaire antilichaamkleurstoffen verdund met 1:1.000 in de blokkeerbuffer.
- Nadat de kleuring is voltooid, brengt u het membraan met een spatel over op een glasplaatje, oriënteert u de transwell met de apicale zijde naar het objectglaasje en voegt u de montageoplossing toe. Laat 15-30 minuten intrekken voordat u heldere nagellak rond de randen aanbrengt.
- Verkrijg beelden met behulp van een confocale microscoop (stap van de Z-as: 0,5 μm; sequentieel scannen)1,16,17.
OPMERKING: Na fixatie van culturen in 4% PFA en wassen met PBS, kunnen gefixeerde culturen weken tot maanden bij 4 °C worden bewaard voorafgaand aan kleuring en voorbereiding voor beeldvorming. Na kleuring en montage van membranen kunnen monsters langdurig (>2 jaar) bij 4 °C in het donker worden bewaard.
7. Verzameling van intracellulair eiwit voor westerse immunoblotting of RNA voor RT-qPCR-analyse
- Verzamel ASL zoals hierboven beschreven bij het kwantificeren van virale titers (protocolsectie 2).
- Verplaats de transwell naar een schone plaat met 24 putjes, omdat het schrapen van het membraan kan leiden tot het breken van het inzetstuk.
- Verzamel voor western blot-analyse totaal eiwitlysaat in 125 μL RIPA-buffer (50 mM Tris, pH 8, 150 mM NaCl, 0,5% deoxycholaat, 0,1% SDS, 1% NP40) aangevuld met proteaseremmers en fosfataseremmers.
- Voeg 125 μL RIPA-buffer toe aan het apicale compartiment en incubeer gedurende 5-10 minuten.
- Schraap het membraan met behulp van een P200-pipetpunt om eventuele resterende aangehechte cellen te verwijderen en verzamel het volledige volume (schraap krachtig over het hele oppervlak van het membraan en pipetteer vervolgens meerdere keren op en neer om het hele monster te verzamelen).
- Incubeer eiwitlysaatmonsters op ijs gedurende 10 minuten en centrifugeer vervolgens gedurende 10 minuten op maximale snelheid (20.000 × g) bij 4 °C.
- Meng het supernatans met 4x Laemmli monsterbuffer met β-mercaptoethanol (reductiemiddel) volgens de protocollen van de fabrikant.
- Kook eiwitmonsters gedurende 5 minuten bij 95 °C en voer ze vervolgens uit met behulp van traditionele western blotting-protocollen 1,16,17.
- Gebruik voor het verzamelen van totaal RNA een in de handel verkrijgbare RNA-extractiekit naar keuze.
OPMERKING: Het apicale compartiment van transwell-inserts met 24 putjes heeft een maximaal volume van ~200 μL; Daarom voeren we twee opeenvolgende wasbeurten uit op elke cultuur om het totale aanbevolen volume te bereiken. De onderstaande gegevens komen overeen met de aanbevolen verzameling RNA-monsters in een totaal volume van 350 μL. - Voeg 200 μL lysisbuffer toe aan het apicale compartiment van de geïnfecteerde transwell.
- Laat 5-10 minuten zitten, schraap eventuele resterende cellen van het membraan met behulp van een pipetpunt en verzamel het volledige volume in een gelabelde microcentrifugebuis.
- Voeg 150 μl extra lysisbuffer toe aan het apicale compartiment van de transwell en pipetteer op en neer voordat u het in dezelfde microcentrifugebuis verzamelt.
- Extraheer RNA volgens het protocol van de fabrikant.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
De representatieve cijfers zijn deels overgenomen uit gegevens die te vinden zijn in het manuscript Otter et al.1. Nasale ALI-culturen afkomstig van vier of zes donoren waren geïnfecteerd met een van de vier HCoV's (SARS-CoV-2, MERS-CoV, HCoV-NL63 en HCoV-229E) volgens de hierboven beschreven protocollen, en de gemiddelde apicaal uitgestoten virale titers voor elk virus worden weergegeven in figuur 1A. Hoewel alle vier deze HCoV's productief repliceren in nasale ALI-c...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
De hier beschreven methoden beschrijven een primair epitheelkweeksysteem waarin van de patiënt afgeleide neusepitheelcellen worden gekweekt op een lucht-vloeistofinterface en worden toegepast op de studie van HCoV-gastheerinteracties. Eenmaal gedifferentieerd, recapituleren deze nasale ALI-culturen vele kenmerken van het in vivo neusepitheel, waaronder een heterogene cellulaire populatie met trilhaar-, beker- en basale cellen vertegenwoordigd, evenals intacte mucociliaire functie met robuust kloppende trilhaartj...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
Susan Weiss is lid van de wetenschappelijke adviesraden voor Ocugen. Noam A. Cohen adviseert voor GSK, AstraZeneca, Novartis, Sanofi/Regeron en Oyster Point Pharmaceuticals en heeft een Amerikaans patent, "Therapy and Diagnostics for Respiratory Infection" (10,881,698 B2, WO20913112865), en een licentieovereenkomst met GeneOne Life Sciences.
Dankbetuigingen
Deze studie heeft de volgende financieringsbronnen: National Institutes of Health (NIH) R01AI 169537 (SRW en NAC), NIH R01AI 140442 (SRW), VA Merit Review CX001717 (NAC), VA Merit Review BX005432 (S.R.W. en NAC), Penn Center for Research on Coronaviruses and other Emerging Pathogens (SRW), Laffey-McHugh Foundation (SRW en NAC), T32 AI055400 (CJO), T32 AI007324 (AF).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Alexa Fluor secundaire antilichamen (488, 594, 647) | Invitrogen | Verschillende | |
| BSA (runde serum albumine) | Sigma-Aldrich | A7906 | |
| cOmplete mini EDTA-vrije protease-remmer | Roche | 11836170001 | |
| Cytotoxiciteitsdetectiekit | Roche | 11644793001 | |
| DMEM (Dulbecco's Modified Eagle Media) | Gibco | 11965-084 | |
| DPBS (Dulbecco's Phosphate Buffered Saline) | Gibco | 14190136 | |
| DPBS + calcium + magnesium | Gibco | 14040-117 | |
| Endohm-6G meetkamer | World Precision Instruments | ENDOHM-6G | |
| Epitheelcel-adhesiemarker (EpCAM; CD326) | eBiosciences | 14-9326-82 | |
| Epitheel Volt/Ohm (TEER) Meter (EVOM) | World Precision Instruments | 300523 | |
| FBS (Fetal Bovine Serum) | HyClone | SH30071.03 | |
| FV10-ASW software voor beeldvorming | Olympus | Versie 4.02 | |
| HCoV-NL63 (Human coronavirus, NL63) | BEI Resources | NR-470 | |
| HCoV-NL63 nucleocapsid antilichaam | Sino Biological | 40641-V07E | |
| Hoescht-kleuring | Thermo Fisher | H3570 | |
| Laemmli-monsterbuffer (4x) | BIO-RAD | 1610747 | |
| LLC-MK2 cellen | ATCC | CCL-7 | Om HCoV-NL63 te titratie |
| MERS-CoV (Human coronavirus, Middle East Respiratory Syndrome Coronavirus (MERS-CoV), EMC/2012) | BEI Resources | NR-44260 | |
| MERS-CoV nucleocapsid antilichaam | Sino Biological | 40068-MM10 | |
| MUC5AC antilichaam | Sigma-Aldrich | AMAB91539 | |
| Olympus Fluoview confocale microscoop | Olympus | FV1000 | |
| Phalloidin-iFluor 647 kleuring | Abcam | ab176759 | |
| PhosStop easy pack (fosfatase-remmers) | Roche | PHOSS-RO | |
| Plate reader | Perkin Elmer | HH34000000 | Elke plate reader of ELISA-reader is voldoende; moet absorptie bij 492 nm kunnen meten |
| RIPA-buffer (50 mM Tris pH 8; 150 mM NaCl; 0,5% deoxycholaat; 0,1% SDS; 1% NP40) | Thermo Fisher | 89990 | Kan in-house worden bereid of worden gekocht |
| RNeasy Plus Kit | Qiagen | 74134 | |
| SARS-CoV-2 (SARS-gerelateerd Coronavirus 2, Isolat USA-WA1/2020) | BEI Resources | NR-52281 | |
| SARS-CoV-2 nucleocapsid antilichaam | Genetex | GTX135357 | |
| Triton-X 100 | Fisher Scientific | BP151100 | |
| Type IV β- tubulin antilichaam | Abcam | ab11315 | |
| VeroCCL81 cellen | ATCC | CCL-81 | Om MERS-CoV te titratie |
| VeroE6 cellen | ATCC | CRL-1586 | Om SARS-CoV-2 te titratie |
Referenties
- Otter, C. J., et al. Infection of primary nasal epithelial cells differentiates among lethal and seasonal human coronaviruses. Proceedings of the National Academy of Sciences of the United States of America. 120 (15), 2218083120(2023).
- Fehr, A., Perlman, S. Coronaviruses: An overview of their replication and pathogenesis. Methods in Molecular Biology. 1282, 1-23 (2015).
- Gaunt, E. R., Hardie, A., Claas, E. C. J., Simmonds, P., Templeton, K. E. Epidemiology and clinical presentations of the four human coronaviruses 229E, HKU1, NL63, and OC43 detected over 3 years using a novel multiplex real-time PCR method. Journal of Clinical Microbiology. 48 (8), 2940-2947 (2010).
- Kesheh, M. M., Hosseini, P., Soltani, S., Zandi, M. An overview on the seven pathogenic human coronaviruses. Reviews in Medical Virology. 32 (2), 2282(2022).
- MERS-CoV Worldwide Overview. European Centre for Disease Prevention and Control. , Available from: https://www.ecdc.europa.eu/en/middle-east-respiratory-syndrome-coronavirus-mers-cov-situation-update (2022).
- MERS Situation Update. World Health Organization Regional Office for the Eastern Mediterranean. , Available from: http://www.emro.who.int/health-topics/mers-cov/mers-outbreaks.html (2022).
- Cao, Y., Liu, X., Xiong, L., Cai, K. Imaging and clinical features of patients with 2019 novel coronavirus SARS-CoV-2: A systematic review and meta-analysis. Journal of Medical Virology. 92 (9), 1449-1459 (2020).
- Vareille, M., Kieninger, E., Edwards, M. R., Regamey, N. The airway epithelium: Soldier in the fight against respiratory viruses. Clinical Microbiology Reviews. 24 (1), 210-229 (2011).
- Farzal, Z., et al. Comparative study of simulated nebulized and spray particle deposition in chronic rhinosinusitis patients. International Forum of Allergy and Rhinology. 9 (7), 746-758 (2019).
- Gaeckle, N. T., Pragman, A. A., Pendleton, K. M., Baldomero, A. K., Criner, G. J. The oral-lung axis: The impact of oral health on lung health. Respiratory Care. 65 (8), 1211-1220 (2020).
- Hou, Y., et al. SARS-CoV-2 reverse genetics reveals a variable infection gradient in the respiratory tract. Cell. 182, 429-446 (2020).
- Hariri, B. M., Cohen, N. A. New insights into upper airway innate immunity. American Journal of Rhinology and Allergy. 30 (5), 319-323 (2016).
- Hiemstra, P. S., McCray, P. B., Bals, R. The innate immune function of airway epithelial cells in inflammatory lung disease. European Respiratory Journal. 45 (4), 1150-1162 (2015).
- Hatton, C. F., et al. Delayed induction of type I and III interferons mediates nasal epithelial cell permissiveness to SARS-CoV-2. Nature Communications. 12 (1), 7092(2021).
- Sungnak, W., et al. SARS-CoV-2 entry factors are highly expressed in nasal epithelial cells together with innate immune genes. Nature Medicine. 26 (5), 681-687 (2020).
- Li, Y., et al. SARS-CoV-2 induces double-stranded RNA-mediated innate immune responses in respiratory epithelial-derived cells and cardiomyocytes. Proceedings of the National Academy of Sciences of the United States of America. 118 (16), 2022643118(2021).
- Comar, C. E., et al. MERS-CoV endoribonuclease and accessory proteins jointly evade host innate immunity during infection of lung and nasal epithelial cells. Proceedings of the National Academy of Sciences of the United States of America. 119 (21), 2123208119(2022).
- Lee, R. J., et al. Bacterial D-amino acids suppress sinonasal innate immunity through sweet taste receptors in solitary chemosensory cells. Science Signaling. 10 (495), (2017).
- Brewington, J. J., et al. Brushed nasal epithelial cells are a surrogate for bronchial epithelial CFTR studies. JCI Insight. 3 (13), 99385(2018).
- Comer, D. M., Elborn, J. S., Ennis, M. Comparison of nasal and bronchial epithelial cells obtained from patients with COPD. PLoS One. 7 (3), e32924(2012).
- Vanders, R. L., Hsu, A., Gibson, P. G., Murphy, V. E., Wark, P. A. B. Nasal epithelial cells to assess in vitro immune responses to respiratory virus infection in pregnant women with asthma. Respiratory Research. 20 (1), 259(2019).
- Lee, R. J., et al. Fungal aflatoxins reduce respiratory mucosal ciliary function. Scientific Reports. 6, 33221(2016).
- Patel, N. N., et al. Fungal extracts stimulate solitary chemosensory cell expansion in noninvasive fungal rhinosinusitis. International Forum of Allergy and Rhinology. 9 (7), 730-737 (2019).
- Baer, A., Kehn-Hall, K. Viral concentration determination through plaque assays: Using traditional and novel overlay systems. Journal of Visualized Experiments. 93 (93), e52065(2014).
- Robinot, R., et al. SARS-CoV-2 infection induces the dedifferentiation of multiciliated cells and impairs mucociliary clearance. Nature Communications. 12 (1), 4354(2021).
- Whitsett, J. A. Airway epithelial differentiation and mucociliary clearance. Annals of the American Thoracic Society. 15, S143-S148 (2018).
- Gao, N., Raduka, A., Rezaee, F. Respiratory syncytial virus disrupts the airway epithelial barrier by decreasing cortactin and destabilizing F-actin. Journal of Cell Science. 135 (16), 259871(2022).
- Schmidt, H., et al. IL-13 impairs tight junctions in airway epithelia. International Journal of Molecular Sciences. 20 (13), 3222(2019).
- Huang, Z. Q., et al. Interleukin-13 alters tight junction proteins expression thereby compromising barrier function and dampens rhinovirus induced immune responses in nasal epithelium. Frontiers in Cell and Developmental Biology. 8, 572749(2020).
- Saatian, B., et al. Interleukin-4 and interleukin-13 cause barrier dysfunction in human airway epithelial cells. Tissue Barriers. 1 (2), e24333(2013).
- Coles, J. L., et al. A revised protocol for culture of airway epithelial cells as a diagnostic tool for primary ciliary dyskinesia. Journal of Clinical Medicine. 9 (11), 3753(2020).
- Baldassi, D., Gabold, B., Merkel, O. M. Air−liquid interface cultures of the healthy and diseased human respiratory tract: Promises, challenges, and future directions. Advanced NanoBiomed Research. 1 (6), 2000111(2021).
- Seibold, M. A. Interleukin-13 stimulation reveals the cellular and functional plasticity of the airway epithelium. Annals of the American Thoracic Society. 15, S98-S106 (2018).
- Morrison, C. B., et al. SARS-CoV-2 infection of airway cells causes intense viral and cell shedding, two spreading mechanisms affected by IL-13. Proceedings of the National Academy of Sciences of the United States of America. 119 (16), 2119680119(2022).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
