Het huidige protocol beschrijft de NAD(P)H fluorescentie levenslange beeldvorming van een geëxplanteerde muizendarm geïnfecteerd met de natuurlijke parasiet Heligmosomoides polygyrus, die het mogelijk maakt om metabole processen zowel in gastheer- als parasietweefsels op een ruimtelijk opgeloste manier te onderzoeken.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
NAD(P)H Fluorescentie Lifetime Imaging voor de metabole analyse van de muizendarm en parasieten tijdens nematodeninfectie
In dit artikel
Samenvatting
Samenvatting
Parasieten hebben over het algemeen een negatief effect op de gezondheid van hun gastheer. Ze vormen een enorme gezondheidslast, aangezien ze wereldwijd de gezondheid van de besmette mens of dier op de lange termijn beïnvloeden en dus van invloed zijn op de landbouw- en sociaaleconomische resultaten. Er zijn echter door parasieten aangestuurde immuunregulerende effecten beschreven, met mogelijke therapeutische relevantie voor auto-immuunziekten. Hoewel het metabolisme in zowel de gastheer als de parasieten bijdraagt aan hun afweer en de basis vormt voor de overleving van nematoden in de darm, is het grotendeels onderbelicht gebleven vanwege een gebrek aan adequate technologieën. We hebben NAD(P)H fluorescentie lifetime imaging ontwikkeld en toegepast op geëxplanteerd darmweefsel van muizen tijdens infectie met de natuurlijke nematode Heligmosomoides polygyrus om de metabolische processen in zowel de gastheer als de parasieten op een ruimtelijk opgeloste manier te bestuderen. De benutting van de fluorescentielevensduur van de co-enzymen nicotinamide adenine dinucleotide (NADH) en nicotinamide adenine dinucleotide fosfaat (NADPH), hierna NAD(P)H, die bij verschillende soorten worden bewaard, hangt af van hun bindingsstatus en de bindingsplaats op de enzymen die metabolische processen katalyseren. Door zich te concentreren op de meest tot expressie gebrachte NAD(P)H-afhankelijke enzymen, werden de metabole routes geassocieerd met anaërobe glycolyse, oxidatieve fosforylering/aërobe glycolyse en NOX-gebaseerde oxidatieve burst, als een belangrijk afweermechanisme, onderscheiden, en werd de metabole overspraak tussen de gastheer en parasiet tijdens infectie gekarakteriseerd.
Inleiding
Parasitaire infecties vormen een enorme belasting voor de menselijke gezondheid 1,2. In geïndustrialiseerde landen is een correlatie waargenomen tussen de toename van auto-immuunziekten en de afname van parasitaire infecties. Het is bekend dat parasieten gunstige effecten kunnen hebben door overmatige immuunresponsen van de gastheer te dempen. H. polygyrus is een natuurlijke parasiet die in de darm wordt aangetroffen bij knaagdieren, en van deze parasiet is bekend dat hij immunoregulerende mechanismen induceert die de antiparasitaire immuunrespons van de gastheer verminderen via, naast andere mechanismen, de inductie van regulerende T-cellen (Treg) in de geïnfecteerde gastheer 3,4,5,6,7,8,9,10,11 . Die regulerende mechanismen zijn vooral van belang bij degeneratieve auto-immuunziekten.
De analyse van de metabole overspraak tussen de gastheer en darmnematoden blijft op grote schaal verwaarloosd, hoewel metabolisme een belangrijke rol speelt in zowel de gastheer als parasieten voor verdediging, overleving en functie. We stellen voor om NADH- en NADPH-fluorescentiebeeldvorming aan te passen en toe te passen op twee-fotonexcitatie, een technologie die al op grote schaal wordt gebruikt in verschillende fysiologische en pathofysiologische situaties in zoogdiercellen en -weefsels12, om het metabolisme van gastheer en nematoden in levende weefsels correlatief te onderzoeken.
NADH en NADPH, ook wel NAD(P)H genoemd, zijn alomtegenwoordige moleculen die bewaard blijven in alle op cellen gebaseerde levensvormen en de rol spelen van co-enzymen in verschillende metabole routes. Ze zijn bijvoorbeeld betrokken bij de productie van energie, reductieve biosynthese en de productie van NADPH-oxidase-gemedieerde reactieve zuurstofspecies (ROS), die voornamelijk verband houden met celafweer en celcommunicatie 13,14,15,16,17,20. Beide co-enzymen zenden fluorescentie uit bij ~450 nm bij excitatie van twee fotonen bij 750 nm, waardoor markervrije metabole beeldvorming in cellen en weefsels mogelijk is19,21. Het is mogelijk om zowel NADH als NADPH op te winden met slechts één golflengte vanwege hun vergelijkbare en vrij brede excitatiespectra met twee fotonen21.
De fluorescentielevensduur van het co-enzym NAD(P)H is direct afhankelijk van het enzym waaraan het bindt 18,21,22,23. Vanwege zijn chemische structuur die intramoleculaire energieoverdracht mogelijk maakt, verliest het geëxciteerde NADH- of NADPH-molecuul energie door interne omzettingsprocessen, met een snelheid die afhankelijk is van de bindingseigenschappen, aan de enzymen (katalysator) voordat het ontspant en een fluorescentiefoton uitzendt. Deze levensduur geeft inzicht in de NAD(P)H-bindingsplaats op het enzym en dus in de preferentiële biochemische reactie die plaatsvindt 19,21,22,23,24,25. De fluorescentielevensduur van vrije NADH- en NADPH-moleculen bedraagt ~450 ps, terwijl hun fluorescentielevensduur wanneer ze aan een enzym zijn gebonden veel langer is (~2.000 ps) en afhangt van hun bindingsplaats op het respectieve enzym21.
Er zijn meer dan 370 enzymen betrokken bij NAD(P)H-gekoppelde processen; alleen de meest voorkomende zullen echter kunnen bijdragen aan de resulterende NAD(P)H-fluorescentielevensduur binnen het excitatiebereik van de microscoop. Met behulp van RNASeq-gegevens van zoogdiercellen hebben we de meest voorkomende NAD(P)H-afhankelijke enzymen geïdentificeerd en een fluorescentielevensduurreferentie gegenereerd om de gegevens te interpreteren die zijn gegenereerd in weefsel- en celmonsters18. Daarbij werd in dit werk bijvoorbeeld onderscheid gemaakt tussen de preferentiële activiteit van lactaatdehydrogenase (LDH), die geassocieerd is met anaërobe glycolytische metabole routes, en isociratedehydrogenase (IDH) en pyruvaatdehydrogenase (PDH) activiteit, die voornamelijk betrokken zijn bij aërobe glycolyse/oxidatieve fosforylering metabole routes16,20. Bovendien kan NADPH-binding aan NADPH-oxidasen, de enzymen die voornamelijk verantwoordelijk zijn voor oxidatieve bursts, gemakkelijk worden opgelost vanwege de karakteristieke locatie van deze enzymen in de cel (membraangebonden) en vanwege de bijzonder lange levensduur van NADPH-fluorescentie (3.650 ps)18,24,29,30,32. RNASeq-gegevens van H. polygyrus laten zien dat de referentie die is gegenereerd voor zoogdiercellen ook in aangepaste vorm van toepassing is op deze nematode27.
Vandaar dat in dit werk, door het uitvoeren van NAD(P)H fluorescentie lifetime imaging (FLIM) in vers geëxplanteerde twaalfvingerige darmmonsters van muizen geïnfecteerd met H. polygyrus, informatie werd verkregen over de verhouding tussen vrije en enzymgebonden NAD(P)H, die de algemene metabole activiteit in alle weefsels weergaf, evenals het overwegend actieve enzym in elke pixel van het beeld (d.w.z. het enzym waaraan NAD(P)H bij voorkeur bindt op die specifieke plaats). Het succes van deze experimenten is afhankelijk van de nauwkeurige monstervoorbereiding van de geëxplanteerde darm, de betrouwbare live beeldvorming van de NAD(P)H-fluorescentielevensduur bij subcellulaire resolutie en gestandaardiseerde gegevensevaluatie, zoals besproken in dit protocol.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Alle experimenten zijn uitgevoerd in overeenstemming met de nationale richtlijnen voor dierenbescherming en goedgekeurd door de Duitse dierethische commissie voor de bescherming van dieren (G0176/16 en G0207/19). Het protocol beschrijft NAD(P)H-fluorescentielevensduur, beeldvormingsgegevensverzameling en gegevensevaluatie, waarmee men de algemene metabole activiteit en specifieke metabole routes in zowel de gastheerdarm als de parasieten kan beoordelen bij infectie met het natuurlijke muizendarmaaltje, H. polygyrus. Voor dit doel werden vrouwelijke C57BL/6-muizen van 10-12 weken oud geïnfecteerd met 200 stadium 3-larven (L3). Op verschillende tijdstippen van de infectie werden de geïnfecteerde muizen geofferd en werden de twaalfvingerige darmen weggesneden en voorbereid voor beeldvorming zoals eerder beschreven33. De twaalfvingerige darmen van niet-geïnfecteerde, op leeftijd en geslacht afgestemde muizen werden op dezelfde manier geprepareerd en afgebeeld voor controledoeleinden. Om de weefseleigenschappen te behouden die nodig zijn voor verdere beeldvorming en analyse, moeten de monsters onmiddellijk na explantatie worden verwerkt en moeten de volgende stappen (stappen 1.1-1.7) snel worden uitgevoerd (Figuur 1B).
1. Voorbereiding van het monster
- Snijd stukken van ~1 cm lengte uit de aanvankelijk uitgesneden twaalfvingerige darm.
- Lijm de rechtgetrokken tissuebuis in het midden van een klein petrischaaltje met snel uithardende tissuelijm (47 mm diameter, 10 mm velghoogte, zie materiaaltabel) (Figuur 1A2).
- Breng met een microborstel een dunne laag extra lijm aan op de bodem van de petrischaal over een groot gebied rond het weefsel (Figuur 1A2).
- Maak met een botte schaar een incisie over de gehele lengte van de fysiek gefixeerde darm in de buurt van de bodem van het petrischaaltje (Figuur 1A3).
- Vouw de darm open met een bot pincet zodat de abluminale kant volledig in contact komt met de lijm. De darm ligt dus gefixeerd door de lijm met de luminale kant naar boven gericht (Figuur 1A4).
- Tel in het geval van een geïnfecteerde muis de wormen onder een stereomicroscoop (vergroting 10x) om er zeker van te zijn dat de infectie succesvol was (Figuur 1A5).
- Sluit de darm af met agarose om deze te beschermen tegen uitdroging. Hier werd 0,5%-0,9% agarose gebruikt om het gevoelige darmweefsel te beschermen tegen verbranding vanwege het smeltpunt bij lage temperatuur van ongeveer 38 °C. Zuig 1 ml agarose op in een pipet en sprenkel voorzichtig op de darm met zacht contact tussen de pipetpunt en het weefsel, zodat een dunne laag van ongeveer 0,5 mm dikte het weefsel volledig omsluit (Figuur 1A6).
- Vul de petrischaaltjes met de in agarose verzegelde monsters met PBS (10%) bij kamertemperatuur en sluit ze vervolgens af met het deksel. Maak een beeld van de monsters direct of plaats ze op ijs in een thermisch isolerende doos om in de rij te staan voor metingen. Plaats het eerste voorbereide monster onder het microscoopobjectief op een verwarmingsplaat die is ingesteld op 37 °C (figuur 1A8).
2. Beeldvorming
OPMERKING: Het microscoopsysteem dat wordt gebruikt om NAD(P)H-FLIM uit te voeren in geïnfecteerde en gezonde duodenale weefselmonsters, bestaat uit de apparaten die worden vermeld en beschreven in figuur 2 en de materiaaltabel. Gebruik ImSpector 208 als besturingssoftware voor alle gebruikte modules.
- Om in eerste instantie het interessegebied (ROI) te vinden, plaatst u het monster in de petrischaal onder het doel en beweegt u met de hand langs het x- en y-vlak om een geschikte ROI te vinden door visuele inspectie met behulp van de breedveldfluorescentiemicroscopiemodus.
- Schakel het beeldvormingssysteem over op excitatie van twee fotonen met behulp van PMT-detectie of tijdgecorreleerde detectie van enkelvoudige fotonen (TCSPC) door van modus te wisselen in de software. Zorg er vooral voor dat de omgeving donker en trillingsvrij is, dat de microscoop in lichtdichte gordijnen wordt omsloten en dat u, indien mogelijk, een pneumatisch opgehangen optische tafel gebruikt.
- Dompel de objectieflens onder in de petrischaal met het monster met de besturingssoftware door op het lenssysteempictogram te klikken en aan het muiswiel te draaien om de z-positie te wijzigen.
- Stel de laser af op 765 nm en stel het maximale laservermogen in op 10 %, wat overeenkomt met 30 mW onder het objectief, door de gewenste golflengte in te typen in het golflengtepaneel van de software. Pas indien nodig het laservermogen aan. Meet hieronder een versterking van 40% (~30 mW tot 100 mW) om fotobeschadiging van weefsel en ongewenste metabolische verschuivingen te voorkomen.
- Stel in de software de stapgrootte van de z-trap in op 2 μm, wat overeenkomt met de axiale resolutie van de microscoop bij 765 nm in weefsel.
- Stel de frequentie voor het scannen van lijnen in op 400 Hz in het galvospiegelpaneel, wat resulteert in een pixelverblijftijd van 4,95 μs.
- Stel het gemiddelde van de afbeelding in op twee tot vier afbeeldingen door het gemiddelde getal te kiezen in het vervolgkeuzemenu in de software (d.w.z. scan de ROI twee tot vier keer om vloeiendere afbeeldingen te krijgen). Op deze manier wordt de totale verblijftijd van de pixel verlengd tot 9,9-19,8 μs ten voordele van een hogere signaal-ruisverhouding (SNR) in het analyseproces.
- Stel het gezichtsveld (FOV) van de afbeelding in op 505 pixels x 505 pixels (500 x 500 μm²) door de parameters te kiezen in het FOV-paneel in de software.
- Kalibreer voor elke meting de moduletijd van tevoren om de optimale werking van de TCSPC-elektronica te garanderen door op initialiseren te klikken in het kalibratievenster in het hardwaremenu voor de TCSPC.
- Pas de snelle fotodiode extern aan om de Ti:Sa-laserpulstrein te detecteren met behulp van een snelle oscilloscoop.
OPMERKING: Het signaal van de fotodiode wordt gebruikt om de hPMT-detectie en fotonentelling door de TCSPC te activeren met betrekking tot de excitatiepuls. De detectie wordt elke 12,5 ns (d.w.z. de tijd tussen twee opeenvolgende laserpulsen) herhaald, wat overeenkomt met de herhalingssnelheid van de Ti:Sa-laser (80 MHz). - Definieer het bereik van de meetdiepte door eerst het gemiddelde in te stellen op 1 en de versterking van het laservermogen op ~10%, vervolgens de videomodus te starten (klik op de videoknop ), te zoeken naar de diepte van waaruit het signaal nog steeds kan worden verkregen door nogmaals op het lenssysteempictogram te klikken en het muiswiel te gebruiken om door te gaan naar het monster terwijl de versterking geleidelijk wordt verhoogd.
- Voor de NAD(P)H-FLIM-beelden van de weefselmonsters gemeten in FLIM-modus, stelt u het systeem in op 765 nm bij een maximum van 100 mW nominaal vermogen. Detecteer het fluorescentiesignaal van NAD(P)H (466/60 nm) met de hybride PMT met een versterking van 97%, die in de software is ingesteld. De TCSPC-module telt fotonen over 227 tijdvensters (bins), elk van 55 ps.
- Klik met de rechtermuisknop op het weergegeven beeld tijdens de meting in de software en kies weergave > T-PROFILE om de vervalcurve te visualiseren die door het systeem is verkregen.
- Noteer het aantal bakken vóór de laserpuls in de vervalcurve voor latere analyse.
- Verkrijg de gegevens door op start meting te klikken.
OPMERKING: De gegevens moeten overeenkomen met een specifiek formaat. Elke plak, geregistreerd op elke weefseldiepte, is gescheiden door een afstand van 2 μm en heeft een oppervlakte van 500 μm x 500 μm, en de plakjes worden verkregen als een stapel van plakjes van 500 μm x 500 μm bij 227 x 55 ps (Figuur 3A) tijdstippen. Elke voxel bevat een ruimtelijk opgelost (in het x-vlak en y-vlak) histogram van de aankomsttijd van fotonen. Dit geeft het fluorescentieverval weer (Figuur 3B). Een typisch gemeten volume moet de vorm hebben van een hyperstapel met afmetingen van ~500 μm x 500 μm x 100-300 μm en 227 bakken, waarbij elke plak in het z-vlak de tijdsafhankelijke intensiteitsgegevens bevat zoals hierboven beschreven. Voor een voorbeeldige set meetgegevens resulteert dit in (505 x 505 x 227) x 100 pixels (16 bit) en komt overeen met ongeveer 4 GB.
3. Gegevensanalyse
OPMERKING: Voor de faseanalyse van de NAD(P)H-FLIM-afbeeldingen is het programma voor het berekenen van de levensduur een op maat geschreven code in Python33.
- Gebruik Anaconda met een Python 3.7-distributie op de Spyder IDE (zie Materiaaltabel). De code maakt gebruik van de standaardbibliotheken van Pythons.
- Laad de code in de IDE en voer deze uit. Er wordt een dialoogvenster voor het bestandspad geopend.
- Kies de map met de onbewerkte gegevens die u wilt analyseren. De code is geprogrammeerd om drie parameters te kiezen vóór de analyse via een Tkinter-gebruikersinvoerdialoogvenster met selectievakjes, een vervolgkeuzemenu en tekstvelden.
- Kies een verschuiving in het invoerdialoogvenster. Bepaal de offset als het aantal van de eerste segmenten in de tijdstapel die niet worden geanalyseerd.
OPMERKING: De parameter snijdt de tijdstippen vóór de excitatiepuls. Bij de kalibratie van het systeem en de triggerdiode moet deze waarde ongeveer vijf plakjes zijn of het aantal dode bakken vóór laserexcitatie, zoals beschreven in stap 2.14. - Kies de weergave van de fasediagrammen in het vervolgkeuzemenu van het invoerdialoogvenster. Kies hier het uiterlijk van de gegevenspunten (wolkachtig of topografisch), evenals astikken van de halfcirkeltijdas (enzymen of tijd [ps]), als opties in het vervolgkeuzemenu.
- Klik op OK.
- Controleer of de code twee soorten informatie berekent uit de NAD(P)H-FLIM z-stacks.
- Meet eerst de ruimtelijke informatie van elk volumesegment door de ineenstorting van de TCSPC-stapels, waarbij de 227 in de tijd opgeloste histogrammen voor het tellen van fotonen worden geprojecteerd op een enkel segment dat het intensiteitsprojectiebeeld wordt genoemd (Figuur 3G), en uit de op Fourier gebaseerde analyse van de exponentiële vervalcurven (zoals beschreven door Leben et al.18), en uit het genormaliseerde reële en imaginaire deel voor elke pixel in elk volumesegment (Figuur 3C).
- Verkrijg uit de echte en denkbeeldige beelden de fasediagrammen (Figuur 3D) en het beeld van de gemiddelde fluorescentielevensduur (t) (kleurgecodeerde, ruimtelijk opgeloste gemiddelde vervalconstanten voor elke voxel) (Figuur 3E).
OPMERKING: Zoals beschreven in de inleiding, wordt de fluorescentielevensduur van NAD(P)H, wanneer gebonden aan enzymen, bepaald door de bindingsplaats van het co-enzym aan het respectieve enzym. - Bepaal de bijdrage van het respectieve enzym aan de metabolische activiteit door de vector tussen de fasevector van elke pixel en de fasevector van ongebonden NAD(P)H te genereren en deze op de halve cirkel in de fasediagram te projecteren. De halve cirkel vertegenwoordigt alle mogelijke mono-exponentiële verval van fluorescentielevens in zuivere verbindingen .
- Gebruik de eerder gegenereerde referentie van fluorescentielevensduur van NAD(P)H gebonden aan de meest voorkomende NAD(P)H-afhankelijke enzymen 18,33 (aanvullende figuur 1), en bereken de waarschijnlijkheid van de activering van deze enzymen.
OPMERKING: Aan elke pixel wordt een kleurcode toegekend van het meest dominante enzym (d.w.z. van het enzym waarvoor de hoogste activeringskans wordt berekend), waardoor een enzymkaart wordt geproduceerd (Figuur 3F).
- Bereken uit de verhouding van vrij (ongebonden) tot enzymgebonden NAD(P)H, specifiek uit de vectoriële verhouding in de fasediagram tussen vrije NAD(P)H bij 450 ps en de enzymgebonden toestand, de algemene metabole activiteit als een percentage tussen 0% *alleen ongebonden NAD(P)H) en 100% (alleen enzymgebonden NAD(P)H). Door aan elke pixel een metabolische activiteit (0%-100%) waarde toe te kennen, wordt een (kleurgecodeerde) activiteitenkaart gegenereerd (Figuur 3F).
- Leg de resulterende kaarten over de intensiteitsbeelden om aanvullende morfologische informatie te verkrijgen. Gebruik hier een ImageJ-macro (zie Tabel met materialen) om de tint en verzadiging van het enzym of de activiteitskaarten te overlappen met de helderheid van de intensiteitsbeelden.
- Zorg ervoor dat de macro de hele stapel herhaalt. Voor elke slice (diepte) in de stapel moet het intensiteitsbeeld en de kaart van keuze worden gesplitst in respectievelijk TINT, VERZADIGING en HELDERHEID (afbeelding > type > HSB-stack).
- Scheid de hoofdkanalen voor beide HSB-stacks (Image > stacks > stack naar images).
- Sluit de HUE en VERZADIGING van de intensiteitsstack, evenals de HELDERHEID van de mapstack (close(slicename_HUE), close(slicename_BRIGHTNESS), ...).
- Combineer de resterende kanalen opnieuw om een nieuwe HSB-stapel te vormen, bestaande uit de HUE en SATURATION van het segment van de kaart van interesse en de HELDERHEID van het intensiteitsbeeld (afbeelding > stapelt > afbeeldingen om te stapelen).
- Wijzig het afbeeldingstype in RGB voor een betere visuele weergave (afbeelding > type > RGB-kleur).
4. Segmentatie van weefsels
OPMERKING: Gebruik een vooraf getraind U-Net-gebaseerd netwerk (ILASTIK, zie materiaaltabel) voor het segmenteren van respectievelijk de darmgastheer en het nematodenweefsel, en verder het epitheel en de lamina propria in de gastheer en de gebieden met een hoog NAD(P)H-fluorescentiesignaal en gebieden met een laag NAD(P)H-fluorescentiesignaal in de nematode.
- Open ILASTIK en kies een nieuw project en een nieuwe pixelclassificatie.
- Laad de eerder berekende intensiteitsprojectie uit stap 3.7.1 door te klikken op Nieuwe > Afzonderlijke afbeeldingen toevoegen. Laad willekeurige plakjes uit meerdere metingen in de container.
- Klik op Functieselectie > selecteer functies. Voeg een sigma-waarde van 50 (gewicht zonder eenheid) toe en vink alle functies aan die actief moeten zijn.
OPMERKING: Terwijl de sigma-waarde het gewicht van de kenmerken bepaalt, bepalen de kenmerken de klassen en het vermogen van het netwerk om randen, vormen, textuur of kleur te herkennen. - Klik op Training en geef de labels een naam op basis van het weefsel dat u wilt segmenteren (bijv. Epitheel, Achtergrond, enz.) door erop te klikken. Selecteer een label en kleur alle pixels in de afbeelding die overeenkomen met dat label.
- Herhaal dit voor de andere labels.
- Herhaal dit voor ongeveer de helft van de afbeeldingen in de geladen dataset.
- Klik op Live Update en laat het model de labels voorspellen voor de resterende niet-gelabelde afbeeldingen.
- Corrigeer ongeveer de helft van de uitsluitend voorspelde en niet-gelabelde afbeeldingen door de onjuist geschatte segmentaties opnieuw te labelen en herhaal de live-update.
- Herhaal deze stap totdat het netwerk heeft geleerd om het gewenste weefsel van belang correct in te schatten; Zorg ervoor dat de betrouwbaarheid van het netwerk dat links in de buurt van de labelnamen wordt weergegeven, tussen 95% en 98% ligt.
- Laad een nieuwe dataset zoals beschreven in stap 3.11, dit keer met alle segmenten van één meting, en klik op Voorspellingsexport.
- Kies in het vervolgkeuzemenu "Bron" de optie Eenvoudige segmentatie; kies in "Formaat" de uitvoer in tiff-formaat; en selecteer in "Kies afbeeldingsinstellingen exporteren" de optie Pad opslaan voor de uitvoer. Klik op exporteren.
- Dit creëert binaire maskers voor het weefseltype van interesse. Aangezien ze bestaan uit plakjes waarbij het gesegmenteerde weefsel van belang een pixelwaarde van 1 heeft en de rest een pixelwaarde van 0 heeft (Figuur 3H), vermenigvuldigt u eenvoudig de binaire maskers met de gegenereerde gegevens zoals vermeld in stap 1.1 en stappen 1.4-1.7. Dit leidt tot gemaskeerde gegevens (Figuur 3 I, J, M). Gebruik ImageJ voor deze stap (Proces > Afbeeldingscalculator > vermenigvuldigen).
- Bereken voor elk volumesegment een signaal-ruisverhouding (SNR) op basis van de gemaskeerde intensiteitsafbeeldingen. Gebruik hiervoor een ImageJ-macro. Maak uw programma zo dat het de signaal-ruisverhouding (SNR) berekent op basis van de gesegmenteerde en gemaskeerde afbeeldingen.
- Gebruik de gesegmenteerde achtergrond uit stap 3.21 als achtergrond (BG) en het gesegmenteerde weefsel van belang als signaal (SIG) door elke pixel van elk segment met een waarde groter dan 0 te herhalen met twee geneste for-lussen. Bereken de SNR met de volgende formule33:
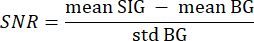
waarbij gemiddelde SIG verwijst naar de gemiddelde waarde van het signaalhistogram, gemiddelde BG verwijst naar de gemiddelde waarde van het achtergrondhistogram en std BG verwijst naar de standaarddeviatie van het achtergrondhistogram. - Gooi volumesegmenten met een SNR-waarde lager dan 5 weg uit verdere analyse.
- Gebruik de gesegmenteerde achtergrond uit stap 3.21 als achtergrond (BG) en het gesegmenteerde weefsel van belang als signaal (SIG) door elke pixel van elk segment met een waarde groter dan 0 te herhalen met twee geneste for-lussen. Bereken de SNR met de volgende formule33:
- Met het Python-script18,33 maak je een enzymfrequentiegrafiek van de enzymkaarten voor elk weefseltype door de enzymen plakgewijs op te tellen en te gemiddelden en ze vervolgens te normaliseren tot een weefselvolume van 100 μm³ (Figuur 3K, N).
- Codeer het script zo dat het de gemaskeerde enzymkaart laadt.
- Herhaal elke pixel, bereken de som van de pixels van hetzelfde enzym en deel vervolgens door het geanalyseerde volume (het totaal van alle pixels).
- Groepeer de berekende abundanties in hun metabolische toestanden en neem het gemiddelde door te delen door het aantal enzymen in elke groep. Schrijf code die metabole toestanden gegroepeerd rond LDH toeschrijft aan anaërobe glycolyse-achtige routes, enzymactiviteit gegroepeerd rond PDH/IDH/GAPDH aan aërobe glycolyse/oxPhos-achtige routes, en NADPH-oxidase-activiteit (NOX-activiteit) aan oxidatieve burst/oxidatieve stress die wordt gebruikt voor verdediging (Figuur 3L, O).
- Gebruik de matplotlib library van Python om de data te visualiseren met boxplots.
- Bereken de activiteit van het weefsel uit de gemaskeerde activiteitenkaarten (Afbeelding 3F) als de gemiddelde waarde over elk volumesegment voor alle pixels met een waarde groter dan 0 met behulp van een ImageJ-macro door Analyseren > Meten uit te voeren.
- Visualiseer alle gegenereerde afbeeldingen naast elkaar met ImageJ/FIJI.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Met behulp van de huidige NAD(P)H-FLIM-procedure 28,29,33 in combinatie met de beschreven faseanalysemethode, werden de metabole activiteit en metabole routes in gezonde en geïnfecteerde twaalfvingerige darmen gemeten op dag 6, dag 10, dag 12 en dag 14 na infectie met het muizen darmaaltje H. polygyrus.
Behoud van levensvatbaarheid van darmweefsel in ...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
De kritieke stappen binnen het protocol vinden plaats tijdens de voorbereiding en bij het vinden van de ROI. Vezels van gedeeltelijk verteerd voedsel vormen een uitdaging voor beeldvorming, voornamelijk vanwege de endogene luminescentie van de vezels die overlappen met de NAD(P)H-fluorescentie, maar ook vanwege hun harmonische generatiesignaal. Het is van groot belang om ROI's te vinden die vrij zijn van ontlasting. We wilden vermijden om gebieden met uitwerpselen te meten. Wassen werd v...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs verklaren geen concurrerende financiële belangen.
Dankbetuigingen
Wij danken Robert Günther voor zijn uitstekende technische ondersteuning. Financiële steun van de Duitse Onderzoeksraad (DFG) in het kader van Grant SPP2332 HA2542/12-1 (S.H.), NI1167/7-1 (R.A.N.), HA5354/11-1 (A.E.H.), en RA2544/1-1 (S.R.), in het kader van Grant SFB1444, P14 (R.A.N., A.E.H.), in het kader van Grant HA5354/8-2 (A.E.H.), en in het kader van Grant GRK2046 B4 en B5 (S.H., S.R.) en HA2542/8-1 (S.H.) worden zeer erkend. W.L. ontving een PhD fellowship van de Berliner Hochschule für Technik, School of Applied Sciences, Berlin in Medical Physics/Physical Engineering.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Agarose | Thermo fisher | J32802.22 | ultra pure |
| Blunt scissors | FST fine science tools | 14108-09 | blund-blund 14 cm |
| Bodipy c12 | thermo fisher | D3822 | 1 mg solid |
| Control units, diode, TCSPC | LaVision Biontech | custom | TrimScope II |
| DMSO | Thermo fisher | D12345 | 3 mL |
| Filters | Chroma | 755 | 466 ± 20, 525 ± 25, 593 ± 20, 655 ± 20 nm |
| Foliodrape sheet | Hartmann | 277500 | |
| Gloves | Sigma-Aldrich | Z423262 | nitril |
| Halogen torch | Leica | Dit item is stopgezet en niet langer verkrijgbaar | KL 1500 LCD |
| hPMT | Hamamatsu, Germany | H7422 | GaAsP |
| Ilastik | Netlify | gratis Software | Java Backend |
| ImageJ | National Institutes of health | gratis Software | FIJI - standard plugins |
| Imspector | LaVision Biontech | - | Vers. 208 |
| Intravital stage | LaVision Biontech | custom | TrimScope II |
| Lens system 20x | Zeiss | custom | W-plan-apochom 20x Waterimmersion NA 1.05 |
| Mercury vapor torch | LaVision Biontech | custom | |
| microbrush | Fisher scientific | 22-020-002 | 85 mm |
| Microscope | LaVision Biontech | custom | TrimScope II |
| Oscilloscope | Rhode & Schwarz | 1326.2000.22 | |
| PBS | Sigma-Aldrich | AM9624 | 0.5 L |
| Petri dish | Sigma aldrich | P5606 | 40 x 15 mm |
| Pipette | thermo fisher | 4651280N | Einkanalpipette |
| Pipette tips | thermo fisher | 94056980 | Spitzen mit Filter |
| PMT | Hamamatsu, Japan | H7422 | GaAsP |
| Python | Python Software foundation | gratis Software | Anaconda 3.7 Spyder IDE, standard librarys met KYTE |
| Sterio microscope | Leica | Dit item is stopgezet en niet langer verkrijgbaar | M26, 6.3x zoom |
| Ti:Sa LASER CHAMELION ULTRA II | Coherent, APE | - | 690-1080 nm instelbaar, 80MHz |
| Tissueglue | 3M | 51115053603 | 3 mL |
| Tweezers | FST fine science tools | 11049-10 | blund, graefe, gebogen |
| Tweezers | FST fine science tools | 91197-00 | Dumont, gebogen |
Referenties
- Hotez, P. J., Fenwick, A., Savioli, L., Molyneux, D. H. Rescuing the bottom billion through control of neglected tropical diseases. Lancet. 373 (9674), 1570-1575 (2009).
- Sartorius, B., et al. Prevalence and intensity of soil-transmitted helminth infections of children in sub-Saharan Africa, 2000-18: A geospatial analysis. The Lancet Global Health. 9 (1), e52-e60 (2021).
- Affinass, N., et al. Manipulation of the balance between Th2 and Th2/1 hybrid cells affects parasite nematode fitness in mice. European Journal of Immunology. 48 (12), 1958-1964 (2018).
- Hartmann, S., et al. Gastrointestinal nematode infection interferes with experimental allergic airway inflammation but not atopic dermatitis. Clinical & Experimental Allergy. 39 (10), 1585-1596 (2009).
- Hepworth, M. R., et al. Mast cells orchestrate type 2 immunity to helminths through regulation of tissue-derived cytokines. Proceedings of the National Academy of Sciences of the United States of America. 109 (17), 6644-6649 (2012).
- Rausch, S., et al. Establishment of nematode infection despite increased Th2 responses and immunopathology after selective depletion of Foxp3+ cells. European Journal of Immunology. 39 (11), 3066-3077 (2009).
- Rausch, S., et al. Parasitic nematodes exert antimicrobial activity and benefit from microbiota-driven support for host immune regulation. Frontiers in Immunology. 9, 2282(2018).
- Steinfelder, S., Rausch, S., Michael, D., Kuhl, A. A., Hartmann, S. Intestinal helminth infection induces highly functional resident memory CD4(+) T cells in mice. European Journal of Immunology. 47 (2), 353-363 (2017).
- Whelan, R. A., et al. A transgenic probiotic secreting a parasite immunomodulator for site-directed treatment of gut inflammation. Molecular Therapy. 22 (10), 1730-1740 (2014).
- Ziegler, T., et al. A novel regulatory macrophage induced by a helminth molecule instructs IL-10 in CD4+ T cells and protects against mucosal inflammation. The Journal of Immunology. 194 (4), 1555-1564 (2015).
- Grantham, B. D., Barrett, J. Amino acid catabolism in the nematodes Heligmosomoides polygyrus and Panagrellus redivivus. 2. Metabolism of the carbon skeleton. Parasitology. 93 (Pt 3), 495-504 (1986).
- Dmitriev, R. I., Intes, X., Barroso, M. M. Luminescence lifetime imaging of three-dimensional biological objects. Journal of Cell Science. 134 (9), 1-17 (2021).
- Mossakowski, A., et al. Tracking CNS and systemic sources of oxidative stress during the course of chronic neuroinflammation. Acta Neuropathologica. 130 (6), 799-814 (2015).
- Qian, T., et al. Label-free imaging for quality control of cardiomyocyte differentiation. Nature Communications. 12, 4580(2021).
- Bayerl, S., et al. Time lapse in vivo microscopy reveals distinct dynamics of microglia-tumor environment interactions-a new role for the tumor perivascular space as highway for trafficking microglia. Glia. 64 (7), 1210-1226 (2016).
- Skala, M. C., et al. In vivo multiphoton microscopy of NADH and FAD redox states, fluorescence lifetimes, and cellular morphology in precancerous epithelia. Proceedings of the National Academy of Sciences of the United States of America. 104 (49), 19494-19499 (2007).
- Skala, M. C., et al. Multiphoton microscopy of endogenous fluorescence differentiates normal, precancerous, and cancerous squamous epithelial tissues. Cancer Research. 65 (4), 1180-1186 (2005).
- Leben, R., Kohler, M., Radbruch, H., Hauser, A. E., Niesner, R. A. Systematic enzyme mapping of cellular metabolism by phasor-analyzed label-free NAD(P)H fluorescence lifetime imaging. International Journal of Molecular Sciences. 20 (22), 5565(2019).
- Chacko, J. V., Eliceiri, K. W. Autofluorescence lifetime imaging of cellular metabolism: Sensitivity toward cell density, pH, intracellular, and intercellular heterogeneity. Cytometry. 95 (1), 56-69 (2019).
- Stringari, C., et al. Phasor approach to fluorescence lifetime microscopy distinguishes different metabolic states of germ cells in a live tissue. Proceedings of the National Academy of Sciences of the United States of America. 108 (33), 13582-13587 (2011).
- Lakowicz, J. R., Szmacinski, H., Nowaczyk, K., Johnson, M. L. Fluorescence lifetime imaging of free and protein-bound NADH. Proceedings of the National Academy of Sciences of the United States of America. 89 (4), 1271-1275 (1992).
- Blacker, T. S., et al. Separating NADH and NADPH fluorescence in live cells and tissues using FLIM. Nature Communications. 5 (1), 3936(2014).
- Blacker, T. S., Duchen, M. R. NAD(P)H binding configurations revealed by time-resolved fluorescence and two-photon absorption. Biophys. J. 122 (7), 1240-1253 (2023).
- Niesner, R., et al. Selective detection of NADPH oxidase in polymorphonuclear cells by means of NAD(P)H-based fluorescence lifetime imaging. Journal of Biophysics. 2008, 602639(2008).
- Vishwasrao, H. D., Heikal, A. A., Kasischke, K. A., Webb, W. W. Conformational dependence of intracellular NADH on metabolic state revealed by associated fluorescence anisotropy. Journal of Biology and Chemistry. 280 (26), 25119-25126 (2005).
- Babior, B. M. NADPH oxidase: An update. Blood. 93 (5), 1464-1476 (1999).
- Hewitson, J. P., et al. Proteomic analysis of secretory products from the model gastrointestinal nematode Heligmosomoides polygyrus reveals dominance of venom allergen-like (VAL) proteins. Journal of Proteomics. 74 (9), 1573-1594 (2011).
- Rakhymzhan, A., et al. Synergistic strategy for multicolor two-photon microscopy: Application to the analysis of germinal center reactions in vivo. Scientific Reports. 7, 7101(2017).
- Bremer, D., et al. Method to detect the cellular source of over-activated NADPH oxidases using NAD(P)H fluorescence lifetime imaging. Current Protocols in Cytometry. 80, 9.52.1-9.52.14 (2017).
- Leben, R., et al. Phasor-based endogenous NAD(P)H fluorescence lifetime imaging unravels specific enzymatic activity of neutrophil granulocytes preceding NETosis. International Journal of Molecular Sciences. 19 (4), 1018(2018).
- Digman, M. A., Caiolfa, V. R., Zamai, M., Gratton, E. The phasor approach to fluorescence lifetime imaging analysis. Biophysics Journal. 94 (2), L14-L16 (2008).
- Lindquist, R. L., Bayat-Sarmadi, J., Leben, R., Niesner, R., Hauser, A. E. NAD(P)H oxidase activity in the small intestine is predominantly found in enterocytes, not professional phagocytes. International Journal of Molecular Sciences. 19 (5), 1365(2018).
- Liublin, W., et al. NAD(P)H fluorescence lifetime imaging of live intestinal nematodes reveals metabolic crosstalk between parasite and host. Scientific Reports. 12, 7264(2022).
- Nhu, N. T. Q., et al. Alkaline pH increases swimming speed and facilitates mucus penetration for Vibrio cholerae. Journal of Bacteriology. 203 (7), e00607(2021).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar