Leishmania Translational Extract (LTE) is een eukaryotisch celvrij eiwitexpressiesysteem dat is afgeleid van de eencellige parasiet Leishmania tarentolae. Dit geoptimaliseerde protocol maakt LTE eenvoudig en kosteneffectief te produceren. Het is geschikt voor verschillende toepassingen die gericht zijn op de multiparallelle expressie en studie van complexe eukaryote eiwitten en hun interacties.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Productie en optimalisatie van LTE, een van Leishmania tarentolae-afgeleid celvrij eiwitexpressiesysteem voor recombinante eiwitproductie
In dit artikel
Samenvatting
Samenvatting
Dit protocol schetst de productie en optimalisatie van een eukaryotisch Cell-Free Protein Expression System (CFPS) afgeleid van het eencellige flagellaat Leishmania tarentolae, aangeduid als Leishmania Translational Extract of LTE. Hoewel dit organisme oorspronkelijk is geëvolueerd als een parasiet van gekko's, kan het gemakkelijk en goedkoop worden gekweekt in kolven of bioreactoren. In tegenstelling tot Leishmania major is het niet-pathogeen voor mensen en vereist het geen speciale laboratoriumvoorzorgsmaatregelen. Een ander voordeel van het gebruik van Leishmania voor CFPS is dat de toevoeging van een enkel antisense-oligonucleotide aan de CFPS, gericht op een geconserveerde splice-leidersequentie aan het 5'-uiteinde van alle eiwitcoderende RNA's, de endogene eiwitexpressie kan onderdrukken. We bieden procedures voor celdisruptie en lysaatverwerking, die zijn vereenvoudigd en verbeterd in vergelijking met eerdere versies. Deze procedures beginnen met eenvoudige kolfculturen. Daarnaast leggen we uit hoe genetische informatie kan worden geïntroduceerd met behulp van vectoren die soortonafhankelijke translatie-initiatieplaatsen (SITS) bevatten en hoe u eenvoudige batchoptimalisatie en kwaliteitscontrole kunt uitvoeren om een consistente kwaliteit van eiwitexpressie te garanderen.
Inleiding
In de jaren 1960 speelden celvrije eiwitexpressiesystemen een cruciale rol bij het blootleggen van de genetische code1. Prokaryote celvrije eiwitexpressiesystemen, voornamelijk gebaseerd op E. coli, domineren momenteel echter zowel laboratorium- als commerciële toepassingen. Hoewel op E. coli gebaseerde systemen voordelen bieden zoals kosteneffectiviteit, schaalbaarheid en hoge expressieopbrengsten, staan ze voor uitdagingen bij het produceren van multidomeineiwitten in hun actieve vormen en het vergemakkelijken van de assemblage van eiwitcomplexen 2,3. Tegenwoordig omvatten veelgebruikte vormen van eukaryote celvrije eiwitsynthese (CFPS) tarwekiemextract (WGE), konijnenreticulocytlysaat (RRL) en insectcellysaat (ICL)4,5,6. Dit werk introduceert een alternatief eukaryotisch celvrij systeem dat zowel eenvoudig als schaalbaar is, gebaseerd op de eencellige flagellaatparasiet Leishmania tarentolae.
Leishmania tarentolae kan gemakkelijk worden gekweekt in kolven met behulp van kosteneffectieve media en kan ook worden opgeschaald in bioreactoren om een hogere celdichtheid te bereiken. De aanwezigheid van endogene mRNA's in cellysaat, die anders zouden kunnen concurreren met geïntroduceerde berichten, kan worden geneutraliseerd met behulp van antisense-oligonucleotiden gericht op de geconserveerde Leishmania-mRNA-splice-leidersequentie7. In tegenstelling tot zijn naaste verwant Leishmania major, die ziekten bij de mens veroorzaakt, infecteert L. tarentolae de moorse gekko (Tarentolae mauritanica), waardoor hij geschikt is voor teelt in PC2-laboratoriumomgevingen zonder dat er speciale voorzorgsmaatregelen nodig zijn. Het is eerder gebruikt als een transgeen organisme voor in vivo eiwitexpressie8.
Om sjabloonpriming in celvrije systemen te vergemakkelijken, zijn universele sequenties ontworpen op basis van polymere RNA-structuren die de translationele initiatie verbeteren9. Deze soortonafhankelijke translatiesequenties (SITS) zijn toepasbaar op zowel prokaryote als eukaryote celvrije systemen en zijn geschikt voor het introduceren van genetische informatie in LTE. Hoewel dit protocol geen gedetailleerde uitleg geeft over de vectorconstructie voor LTE-celvrije eiwitexpressie, vereisen optimalisatie en kwaliteitscontrole geschikte vectoren die fluorofoorfusies bevatten van de gewenste eiwitten die van belang zijn stroomafwaarts van de SITS-site. Voor dit doel zijn geschikte LTE-vectoren gedeponeerd bij de Addgene-genrepository, zoals de pCellFree_G03-vector, die codeert voor een N-terminale eGFP-fusie naar het gewenste eiwit van belang met behulp van Gateway-kloonsites.
LTE heeft zijn waarde bewezen in een breed scala aan toepassingen die eiwitexpressie vereisen, waaronder de analyse van zelfassemblage van eiwitten10,16, de productie van menselijke integrale membraaneiwitten17, onderzoek naar antivirale kandidaatgeneesmiddelen18, de ontwikkeling van biotechnologisch nuttige enzymen19, prototyping van eiwitbiosensoren20,21 en de studie van biologische geneesmiddelen uit haakwormen22. LTE heeft ook een belangrijke rol gespeeld bij het in kaart brengen van eiwit-eiwitinteractienetwerken op het gebied van virologie en cellulaire structuren21,32. LTE is gebenchmarkt om op dezelfde manier te presteren als andere eukaryote celvrije systemen bij het tot expressie brengen van volledige, monodispergeerde en niet-geaggregeerde eiwitten33, terwijl het tegelijkertijd een kosteneffectievere en schaalbaardere productie biedt.
Dit protocol biedt technieken voor het kweken en verstoren van het gastheerorganisme, het bereiden van lysaat en het aanvullen van een voedingsoplossing (FS) voor gekoppelde transcriptie/translatie-eiwitexpressie. Daarnaast bevat het een protocol voor het optimaliseren van productiebatches. In de eerste versie van het Leishmania-celvrije systeem werd ongewenste variatie van batch tot batch waargenomen in expressieniveaus, de fractie van eiwitten van volledige lengte en de aanwezigheid van eiwitaggregaten, wat leidde tot de verwijdering van batches34. Latere protocolverbeteringen werden aangebracht om dit probleem aan te pakken25. Het huidige protocol bouwt voort op deze verbeteringen, waardoor individuele batches kunnen worden geoptimaliseerd voor piekeiwitexpressie en -grootte. Het bereikt dit door de belasting van de celverstoorder (gemeten als optische dichtheid bij 600 nm; OD600 nm) en het normaliseren van de resulterende lysaatoutput met behulp van absorptie bij 280 nm (Abs280 nm). Bovendien bevat het een methode om het lysaat tijdens de productie gedeeltelijk aan te vullen met rNTP en magnesium, met daaropvolgende optimalisatie van deze componenten van de voedingsoplossing tijdens testexpressies. Hoewel deze optimalisatie als een optie in het protocol wordt gepresenteerd, wordt het sterk aanbevolen door de auteurs.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Dit protocol omvat gedetailleerde mediarecepten en stappen die betrekking hebben op kweken, centrifugeren, het meten van GFP-fluorescentie met behulp van een multimode plaatlezer, het meten van cultuur OD600nm en het beoordelen van lysaat Abs280nm. Het behandelt ook de installatie en beeldvorming van SDS-PAGE-eiwitgels. De materialen die nodig zijn of worden voorgesteld voor dit protocol worden vermeld in de spreadsheet Materialen. Het is belangrijk op te merken dat typische laboratoriumbronnen zoals mediacomponenten, centrifuges, buizen, spectrofotometers en gelelektroforese-opstellingen waarschijnlijk door elkaar kunnen worden gebruikt, tenzij anders aangegeven. Figuur 1 geeft een overzicht van het LTE-productieproces.
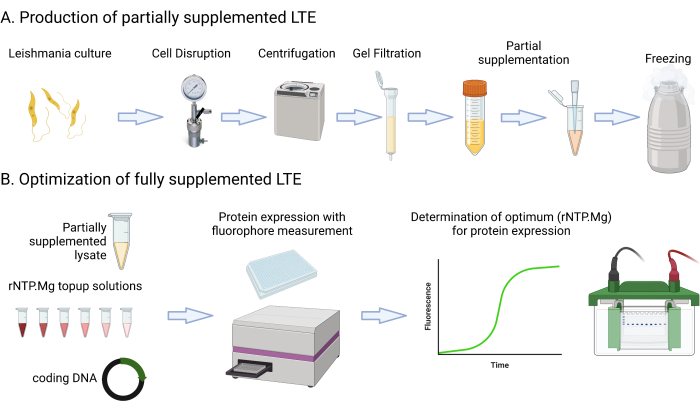
Figuur 1: Overzicht van het LTE-productieprotocol. Deze cartoon geeft een beknopte samenvatting van het LTE-productieprotocol. Klik hier om een grotere versie van deze figuur te bekijken.
1. Groei van Leishmania tarentolae-culturen
- Bereid ten minste 3 l TBGG-groeimedia voor (bactotrypton 12 g/l, gistextract 24 g/l, glycerol 8 ml/l, glucose 1 g/l, KH2PO4 2,3 g/l, K2HPO4 2,5 g/l, zie materiaaltabel). Steriliseer de media met behulp van een filter van 0,22 μm onder vacuüm of een vergelijkbare opstelling.
- Bewaar de media bij kamertemperatuur (RT), waarbij de laatste toevoegingen (Hemin, Antibiotica) net voor de inoculatie met L. tarentolae worden toegevoegd. Hemin (0,25% v/v in 50% triethanolamine) wordt toegevoegd in een dosis van 0,2% v/v, penicilline (10.000 eenheden/ml) plus streptomycine (10.000 μg/ml) mix in een mix van 0,5% v/v.
OPMERKING: Het uitgangspunt van dit protocol is een onderhouden cultuur van 2 x 10 ml van het wildtype L. tarentolae. Onderhoudsculturen worden gekweekt bij 27 °C in standaard weefselkweekkolven van 50 ml met weinig schudden (75 tpm). Dergelijke culturen van 10 ml kunnen voor onbepaalde tijd worden gehandhaafd met ~1/20 verdunningen in steriel (TBGG + hemin, penicilline, streptomycine) om de 2-3 dagen. Een standaard bioveiligheidskast in een PC2-laboratorium wordt aanbevolen; bacteriële besmettingen worden echter meestal voorkomen door de toegevoegde antibiotica, terwijl schimmelinfecties over het algemeen worden ontgroeid door L. tarentolae. - Breid gedurende twee dagen de onderhoudsculturen van L. tarentolae uit tot 200 ml (dag 1) en vervolgens tot 2 l (dag 2) via verdunningen van 1:10 met elke dag een toenemend volume TBGG + hemine/antibiotica. Voer beide verdunningen uit in autoclaaf-gesteriliseerde glazen kolven van 5 L (gevuld tot maximaal 1 L). De tweede verdunning moet 's middags tussen 15-18 uur plaatsvinden, met de bedoeling om de volgende dag tussen 8-11 uur met de lysaatproductie te beginnen.
OPMERKING: Dit protocol gebruikt het minimale startvolume voor LTE-productie (2 x 1 L culturen). Het is ook mogelijk om de cultuur uit te breiden tot 10 L voor LTE-productie door een extra expansiestap op te nemen (bijv. Dag 1: 100 ml; Dag 2: 1 L; Dag 3: 10 L). Hoewel dit protocol gebruik maakt van verbijsterde kolven (zie Tabel met materialen) om L. tarentolae te laten groeien, kunnen optioneel conventionele bioreactoren worden gebruikt die zijn ontworpen voor bacteriegroei met Rushton-waaiers, op voorwaarde dat de roersnelheid onder de 100 tpm wordt gehouden. Verbeterde beluchting en pH-regeling in bioreactoren verlengen over het algemeen de groei in de logfase van de L. tartolae-culturen , waardoor een hogere oogst-OD van600 nm van 10 kan worden gebruikt in stap 1.4. - Registreer de OD600 nm van de cultuur in drievoud via een verdunning van 1:10 in TBGG rechtstreeks in de cuvet van de spectrofotometer. Een geschikt startbereik voor het maken van lysaat is OD600nm = 4.0-8.0.
- Zorg voor extra incubatietijd als OD600nm < 4.0. Een cultuur met OD600nm > 8 is bruikbaar en zal resulteren in een groter volume celvrij expressielysaat, maar met een lagere kwaliteit vanwege het begin van de groeifase van de late log. Plaats de kweekkolven op het ijs in afwachting van de volgende stappen.
OPMERKING: Nauwkeurige meting van de uiteindelijke cultuur OD600nm is van cruciaal belang, omdat deze wordt gebruikt om het uiteindelijke volume voor geconcentreerde cellen te berekenen voorafgaand aan de verstoring. Om het protocol te vereenvoudigen, vervangt deze berekening een pelletweegmethode die in eerdere versies van LTE-fabricage werd gebruikt om de celconcentratie te kalibreren voorafgaand aan verstoring34. Zorg ervoor dat u verdunt in TBGG voor OD600nm-meting , omdat anders osmotische shock de celvorm verandert, waardoor een meetfout ontstaat. Pipetmeng de 1:10 verdunning voor OD600nm meting (direct in de cuvet) seconden voordat de spectrofotometrische meting wordt uitgevoerd, aangezien L. tarentolae-cellen snel bezinken en een kenmerkend troebel uiterlijk hebben. Als het uiteindelijke volume van de expressiecultuur als bij benadering wordt beschouwd, wordt ook aanbevolen om de kolven bij de oogst te wegen (met geschikte lege kolf tarra) om een beter geschat volume te krijgen (bij 1 g = 1 ml). De maximale OD600nm die mogelijk is van de groei van L. tarentolae in verbijsterde kolven is 15-20, hoewel dit niet geschikt is voor de productie van lysaat vanwege het bereiken van de stationaire fase.
2. Concentratie van L. tarentolae-culturen
- De Leishmania-cellen moeten ongeveer 60x worden gewassen en geconcentreerd voordat ze worden verstoord. Bereken het doelvolume voor de celconcentratie op basis van OD600nm = 300 voor het uiteindelijke concentraat. De vergelijking is V = oogstvolume (ml) x (oogst-OD600nm/300). Als u bijvoorbeeld een cultuur van 2 L gebruikt met een oogst-OD600 = 5, is het doelvolume 33 ml.
OPMERKING: Het OD600nm-doel van 300 kan worden gewijzigd; eerdere LTE-productie heeft waarden gebruikt in het bereik van 150-350. Hogere concentraties van cellen die in ontwrichting gaan, zullen de neiging hebben om uiteindelijke celvrije expressiereacties op te leveren met hogere eiwitopbrengsten, maar met een verhoogde neiging van kwetsbare eiwitten om te aggregeren. OD600nm = 300 vertegenwoordigt een geschikt standaarddoel voor LTE-productie. - Breng de geoogste culturen over in geschikte centrifugeflessen en draai ze 10 minuten op 2500 x g bij 4 °C. Decanteer het supernatans voorzichtig in het cultuurafval.
OPMERKING: Het is belangrijk om het verlies van cellen in het afgedankte supernatant tot een minimum te beperken, omdat dit van invloed is op de berekening van de verstoringsbelasting. In eerdere LTE-productieprotocollen werd de concentratie van L. tarentolae-cellen voor disruptie gekalibreerd door het celconcentraat in een testmicrocentrifugebuis te draaien en het pelletgewicht te meten ten opzichte van het totale gewicht34. Dit vereenvoudigde protocol gebruikt in plaats daarvan een theoretisch OD600nm-doel voor het concentraat, gebaseerd op de gemeten oogst-OD600nm, en gaat uit van een laag celverlies tijdens de celconcentratie en het wassen. - Was de celpellet in SEB-buffer (45 mM HEPES-KOH pH 7,6, 250 mM sucrose, 100 mM KOAc, 3 mM Mg(OAc)2, bewaard op ijs) driemaal, telkens centrifugerend bij 2500 x g gedurende 10 minuten bij 4 °C. Resuspendeer voor de eerste wasbeurt elke 1 L gepelleteerde cultuur in 100 ml SEB-buffer en combineer ze vervolgens in een enkele centrifugekolf. Gebruik voor de tweede wasbeurt ook 100 ml SEB voor elke 1 L van de oorspronkelijke cultuur.
OPMERKING: Voeg voor de uiteindelijke resuspensie van de pellet de SEB-buffer toe tot 50% van het uiteindelijke doelresuspensievolume (stap 2.1). Hierdoor kan het gepoolde concentraat zorgvuldig worden bijgevuld tot precies het uiteindelijke doelvolume in stap 2.4. Elke resuspensie moet zo voorzichtig mogelijk zijn om voortijdige lysis van L. tarentolae te voorkomen, bijvoorbeeld door de toegevoegde SEB voorzichtig rond de gedecanteerde pellet te draaien of door SEB te pipetteren over de pellet die aan de wand van de centrifugebuis kleeft. Het kan handiger zijn om supernatanten over te brengen naar kleinere centrifugebuisjes voor de laatste stap. - Giet het geresuspendeerde concentraat in een geschikte volumetrische cilinder van gewassen glas, vul het volume aan tot het doelvolume (stap 2.1) met extra koude SEB en meng voorzichtig.
3. Lysis van L. tarentolae concentraat
- Breng het celconcentraat over in het stikstofcavitatie-apparaat (zie Materiaaltabel) dat is voorgekoeld tot 4 °C, breng het onder druk tot 70 bar stikstof en incubeer gedurende 45 minuten op ijs.
OPMERKING: Hoewel stikstofcavitatieverstoorders geen gebruikelijke laboratoriumartikelen zijn, worden ze wel aanbevolen voor LTE-productie. Alternatieve methoden zoals cellulaire vries-dooi en verstoorders van het type Franse pers zijn uitgeprobeerd; De activiteit van de eiwitexpressie was echter <50% in vergelijking met het gebruik van de stikstofcavitatiemethode. Het stikstofcavitatie-apparaat moet voor gebruik en tussen de runs grondig worden gereinigd, net als alle hergebruikte vaten die vanaf deze stap in contact komen met het cellysaat (zoals de opvangkolf). Een geschikt reinigingsregime omvat wassen met laboratoriumreinigingsmiddelen, gevolgd door grondig spoelen met gedeïoniseerd water. - Open de ontluchting op het stikstofcavitatie-apparaat en verdrijf het resulterende lysaat in een voldoende robuuste container, zoals een vacuümopvangkolf op ijs. Kantel de opvangkolf om ervoor te zorgen dat al het resulterende lysaat bezinkt en in een verse centrifugebuis of een soortgelijk vat kan worden gepipetteerd.
LET OP: Stikstofcavitatieverstoorders vertrouwen op de abrupte overgang van het celconcentraat van 70 bar stikstof naar de omgevingsdruk, bereikt door een sterke stroom van eerst vloeistof en vervolgens stikstof door de uitlaatklep van het apparaat. Het ventileren moet gebeuren met geschikte persoonlijke beschermingsmiddelen (PBM) in een chemische veiligheidskap. Het risico bestaat dat het bestemmingsvat breekt en het lysaat verloren gaat, daarom gebruiken we een stevige vacuümontvanger in plaats van een generieke kolf. Als de uitlaatklep van het apparaat een slang is, plaats de slang dan niet direct in de ontvanger om overmatige drukopbouw op het ontluchtingspunt te voorkomen.
4. Centrifugatie van cellysaat
- Breng het lysaat over in geschikte centrifugebuisjes met een g-sterkte en centrifugeer gedurende 15 minuten bij 4 °C bij 10.000 x g . Verwijder het supernatans in verse, soortgelijke centrifugebuisjes.
- Centrifugeer het lysaat bij 30.000 x g gedurende 15 minuten bij 4 °C en verwijder vervolgens het laatste supernatans in een verse centrifugebuis of een soortgelijke container die op ijs is geplaatst. Maak een schatting van het totale volume.
5. Gelfiltratie van cellysaat
OPMERKING: Gelfiltratie wordt gebruikt om sucrose in de SEB-buffer te verwijderen. Hoewel sucrose helpt bij het stabiliseren van de cellulaire machinerie tijdens celdisruptie, vermindert het de opbrengst als het wordt vastgehouden in eiwitexpressiereacties.
- Plaats een voldoende aantal PD-10 door zwaartekracht gevoede gelfiltratiekolommen (zie Materiaaltabel) in een rekformaat zodat ze in een opvangbak of een soortgelijke container eronder kunnen druppelen, zodat ze het volledige lysaatvolume kunnen filteren met 2.5 ml per kolom. Breng de kolommen vooraf in evenwicht door er vooraf 10 ml EB-buffer van 4 °C (45 mM HEPES-KOH pH 7,6, 100 mM KOAc, 3 mM Mg(OAc)2) doorheen te halen.
OPMERKING: Alle stappen vanaf dit punt hebben baat bij het uitvoeren in een koude ruimte van 4 °C. Het is echter ook geschikt om alle lysaten en reagentia op een ijsbak op een tafelmodel te bewaren. Een uitzondering is de stap van de gelfiltratie, waarbij de auteurs een rek met kolommen in een koelkast van 4 °C plaatsen terwijl ze opnieuw bufferen. In de oorspronkelijke versies van dit protocol werden nieuwe gelfiltratiekolommen 'geblokkeerd' door het lysaat in eerste instantie te bufferen en de eerste output weg te gooien. Hoewel dit niet nodig wordt geacht, moeten kolommen worden gespoeld met EB-buffer en tussen lysaatbatches bij 4 °C worden opgeslagen. Het eerste outputlysaat kan een lagere eiwitexpressieactiviteit hebben dan de daaropvolgende outputs als gevolg van enige achtergrondretentie van lysaatcomponenten op de nieuwe kolom. - Voeg 2,5 ml lysaat toe aan elke kolom en wacht tot het in de kolom terechtkomt. Voeg een extra 0,5 ml EB toe om het lysaat in de kolom te laten bezinken terwijl u het eluaat weggooit.
- Elueer het met gel gefilterde lysaat door een extra 2,5 ml EB aan elke kolom toe te voegen en de output op te vangen door een vers, schoon bakje of een andere bak onder de kolommen te plaatsen.
6. Suppletie van cellysaat
- Gebruik de nanodruppelspectrofotometer (zie Materiaaltabel) om Abs280nm van het gelgefilterde lysaat te meten. Als het hoger is dan 60, verdun het dan om Abs280nm = 60 te bereiken met behulp van een extra EB-buffer van 4 °C.
OPMERKING: Hoewel het beheersen van de invoer van de celdichtheid in verstoring met behulp van OD600nm ongeveer de lysaatuitgangssterkte bepaalt, verbetert het normaliseren van de Abs280nm na lysaatverstoring en verwerking de batchconsistentie van lysaatprestaties verder. Lysate Abs280nm kan naar boven en naar beneden worden aangepast, met gevolgen voor de opbrengst en aggregatie van eiwitexpressie (zie sectie Discussie). Als het niet-aangevuld lysaat een Abs280nm < 60 aangeeft, kan het nodig zijn om meer Leishmania-biomassa op te nemen in de verstoringsstap, d.w.z. de celverstoorderbelasting te verhogen tot OD600nm > 300 in stap 2.1. - Voeg 5x Feeding Solution (5x FS, Tabel 1) toe aan het lysaat in een verhouding van 2:5 en wervel goed door. Doe het in geschikte recipiënten (bijv. 1,5 ml microfuge-buisjes) en vries het snel in vloeibare stikstof in. Als men de optionele stappen 7.1-7.3 voor LTE-expressie-optimalisatie hieronder volgt, gebruik dan de verminderde rNTP.Mg 5x FS uit Tabel 1 in plaats van de standaard 5x FS. Voeg 5 aliquots van 100 μl toe voor invriezen voor gebruik in de optimalisatie-experimenten.
OPMERKING: Invriezen met de standaard 5x FS in een verhouding van 2:5 creëert expressieklare aanvullende LTE, gebruikt bij 7 μL/10 μL expressie (vandaar dat de 5x FS 1x FS wordt in de uiteindelijke reactie). De auteurs raden echter aan om de verdere optionele stappen te volgen waarbij 0,6x de standaardhoeveelheid rNTP's en magnesium wordt verstrekt in de 5x FS. Dit wordt gevolgd door een optimalisatiestap waarbij een equimolaire mix van de twee (aangeduid als rNTP.Mg) wordt toegevoegd om de testreacties aan te vullen tot een geoptimaliseerde waarde. De gedeeltelijke 5x FS bevat ook een oligonucleotide dat de endogene mRNA-expressie uitschakelt (zie de inleiding). De sequentie van het oligonucleotide is CAATAAAGTACAGAAACTGATACTTATATAGCGTT.
7. QC en optimalisatie van de uiteindelijke aangevulde LTE
OPMERKING: De minimaal noodzakelijke stappen om de juiste 'top-up' toevoeging van rNTP.Mg aan het verminderde rNTP en magnesium-aangevuld lysaat te bepalen, omvatten het tot expressie brengen van eGFP of een vergelijkbare fluorofoor (bijv. sfGFP) zonder een fusiepartner. Toenemende concentraties van rNTP.Mg worden aan de reacties toegevoegd om het punt te bepalen waarop het expressieniveau (gemeten als eGFP RFU via een multimode plaatlezer) wordt geoptimaliseerd. Voortijdige beëindigingen van eGFP, die niet fluorescerend zijn, worden duidelijk door het verlagen van de eGFP RFU bij te hoge rNTP.Mg concentraties. Korte-productstoringen van LTE komen echter vaker voor in eiwitten met een grotere expressie (>50 kDa). Daarom is het mogelijk om deze optimalisatie uit te voeren met behulp van een grotere sjabloon dan eGFP, vooral als er een beschikbaar is in een geschikte expressievector, die een fluorofoorfusie oplevert die door LTE voor een bepaalde toepassing of studie moet worden geproduceerd (zie de sectie Representatieve resultaten).
- Ontdooi een aliquot van 100 μl en zet zes expressiereacties van 10 μl op, elk bestaande uit 7 μl gedeeltelijk gesupplementeerd lysaat uit stap 6.2, 1 μl bijvuloplossing volgens tabel 2 en 2 μl ultrapuur water met voldoende DNA-controlesjabloon om een eindconcentratie van 50 ng/μl in de reactie te bereiken.
- Incubeer de reacties gedurende 2 uur bij 25 °C en bewaak de toename van de GFP-fluorescentie met behulp van een multimode plaatlezer.
OPMERKING: Geschikte configuratiewaarden voor GFP zijn excitatie bij 485 nm (bandbreedte 5 nm), emissie bij 516 nm (bandbreedte 5 nm), met een leesinterval van 1 minuut gedurende 2 uur. - Rangschik de uiteindelijke expressiewaarden om de rNTP.Mg concentratie te bepalen die overeenkomt met de hoogste eGFP-RFU. Als er kinetische gegevens beschikbaar zijn, wordt een overmaat aan rNTP.Mg ook aangegeven door een bifasische toename van de eGFP RFU gedurende de expressieperiode van 2 uur (zie de sectie Representatieve resultaten).
- Zodra de geoptimaliseerde top-up rNTP.Mg concentratie is bepaald, voegt u deze toe aan alle verdere eiwitexpressies met behulp van de batch LTE die in de vorige stappen gedeeltelijk is aangevuld.
OPMERKING: Als de aliquotatie in stap 6.2 zorgvuldig wordt uitgevoerd met vaste volumes, kan de aanvulling achteraf aan elke aliquot worden toegevoegd zonder te ontdooien, bijvoorbeeld door de aliquots op droogijs te plaatsen. Deze aliquots zijn nu volledig aangevuld, omdat de juiste rNTP.Mg aanvulling door elk wordt gemengd wanneer ze worden ontdooid en gemengd voor gebruik.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Het doel van celvrije eiwitexpressie is om eiwitten van volledige lengte te produceren in een gevouwen, actieve vorm die geschikt is voor een breed scala aan toepassingen. LTE (Leishmania tarentolae-extract ) is eerder vergeleken met andere prokaryote en eukaryote celvrije expressiesystemen, en toont een hoog vermogen aan om afkapping en aggregatie te voorkomen wanneer het optimaal werkt, vooral in vergelijking met op E. coli gebaseerde celvrije expressie
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Protocollen voor het creëren van LTE zijn de afgelopen tien jaar gepubliceerd7 en hebben periodieke updates ondergaan25,34. Nieuwkomers in de techniek stuiten echter vaak op een steile leercurve, wat resulteert in vertragingen bij het bereiken van hoogwaardige eiwitexpressie met een hoge opbrengst. Soortgelijke uitdagingen zijn gemeld door andere onderzoeksgroepen die met LTE35 werk...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
Er zijn geen concurrerende financiële belangen aanwezig.
Dankbetuigingen
De auteurs willen de vele leden van het Alexandrov-lab bedanken die de afgelopen 10 jaar hebben bijgedragen aan de ontwikkeling van de LTE-systemen, in het bijzonder Sergey Mureev die een pionier was in het systeem en de SITS-ribosoomingangssite ontwikkelde. Figuur 1 is gemaakt door Biorender.com en onder licentie gereproduceerd.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| PD-10 SuperDex 25 Columns | Cytiva | 17085101 | Gel filtratie kolommen |
| Nitrogen Cavitation cell disrupter | Parr Industries | 4635 of 4639 | Celdisruptor |
| Bovine derived Hemin | Sigma-Aldrich | H5533 | Kweekadditief |
| Penicillin/Streptomycin 10000U/ml | Thermo-Fisher | 15140122 | Antibioticummix |
| Optiplate 384 | Perkin-Elmer | 6007290 | Multiwellplaat voor 10ul expressies |
| Oligonucleotide | IDT synthese | Oligo met sequentie CAATAAAGTACAGAAACTGATAC TTATATAGCGTT | |
| Creatine Phosfokinase | Sigma-Aldrich | 9001-15-4 | Enzym |
| Tecan Spark | Tecan | of vergelijkbare multimode platereader | |
| Chemidoc MP Imager | Biorad | of vergelijkbare SDS-PAGE gel imager | |
| 4-12% Bis-Tris Gels | Invitrogen | NW04125 | SDS-PAGE gels |
| Biophotometer | Eppendorf | of vergelijkbare cuvetspectrofotometer | |
| Nanodrop One | Thermofisher | Nanodrop spectrofotometer | |
| Avanti JXN-26 centrifuge | Beckman Coulter | of vergelijkbare centrifuge, met rotors/buizen beoordeeld op 10K en 50K g | |
| 5424R microcentrifuge | Eppendorf | of vergelijkbare microcentrifuge, met 1,5 ml microcentrifugebuizen | |
| Flask Incubator Inova S44i | Eppendorf | of vergelijkbare flach incubatieschudmachine geschikt voor 5L Flessen | |
| 5L glazen kweekflessen | Baffled glazen flessen voor kweekgroei | ||
| Bactotryptone | BD | 211705 | Groeimedium |
| Yeast Extract | Merck | VM930053 | Groeimedium |
| Glycerol | Elke analytische graad | ||
| Glucose | Elke analytische graad | ||
| KH2PO4 | Elke analytische graad | ||
| K2HPO4 | Elke analytische graad | ||
| UltraPure water | Invitrogen | 10977-015 | Of output van elke MilliQ-type waterdispenser |
Referenties
- Nirenberg, M. W., Matthaei, J. H. The dependence of cell-free protein synthesis in E.coli upon naturally occurring or synthetic polyribonucleotides. Proc Natl Acad Sci USA. 47 (10), 1588-1602 (1961).
- Caschera, F., Noireaux, V. Synthesis of 2.3 mg/ml of protein with an all Escherichia coli cell-free transcription-translation system. Biochimie. 99, 162-168 (2014).
- Kelwick, R., Webb, A. J., MacDonald, J. T., Freemont, P. S. Development of a Bacillus subtilis cell-free transcription-translation system for prototyping regulatory elements. Metab Eng. 38, 370-381 (2016).
- Ezure, T., et al. Cell-free protein synthesis system prepared from insect cells by freeze-thawing. Biotechnol Prog. 22 (6), 1570-1577 (2006).
- Harbers, M. Wheat germ systems for cell-free protein expression. FEBS Letters. 588 (17), 2762-2773 (2014).
- Kobs, G. Selecting the cell-free protein expression system that meets your experimental goals. Promega Corporation. 21, 6-9 (2008).
- Kovtun, O., et al. Leishmania cell-free protein expression system. Methods. 55 (1), 58-64 (2011).
- Basile, G., Peticca, M. Recombinant protein expression in Leishmania tarentolae. Mol Biotechnol. 43 (3), 273-278 (2009).
- Mureev, S., Kovtun, O., Nguyen, U. T., Alexandrov, K. Species-independent translational leaders facilitate cell-free expression. Nat Biotechnol. 27 (8), 747-752 (2009).
- Gambin, Y., et al. Single-molecule fluorescence reveals the oligomerization and folding steps driving the prion-like behavior of ASC. J Mol Biol. 430 (4), 491-508 (2018).
- Sierecki, E., et al. Rapid mapping of interactions between human SNX-BAR proteins measured in vitro by AlphaScreen and single-molecule spectroscopy. Mol Cell Proteomics. 13 (9), 2233-2245 (2014).
- Sierecki, E., et al. Nanomolar oligomerization and selective co-aggregation of alpha-synuclein pathogenic mutants revealed by single-molecule fluorescence. Sci Rep. 6, 37630(2016).
- Leitao, A., Bhumkar, A., Hunter, D. J. B., Gambin, Y., Sierecki, E. Unveiling a selective mechanism for the inhibition of alpha-synuclein aggregation by beta-synuclein. Int J Mol Sci. 19 (2), 334(2018).
- Gambin, Y., et al. Single-molecule analysis reveals self assembly and nanoscale segregation of two distinct cavin subcomplexes on caveolae. Elife. 3, e01434(2013).
- Ve, T., et al. Structural basis of TIR-domain-assembly formation in MAL- and MyD88-dependent TLR4 signaling. Nat Struct Mol Biol. 24 (9), 743-751 (2017).
- Guo, Z., et al. Subunit organisation of in vitro reconstituted HOPS and CORVET multisubunit membrane tethering complexes. PLoS One. 8 (12), e81534(2013).
- Ruehrer, S., Michel, H. Exploiting Leishmania tarentolae cell-free extracts for the synthesis of human solute carriers. Mol Membr Biol. 30 (4), 288-302 (2013).
- Varasteh Moradi, S., et al. Mapping Interactions among cell-free expressed Zika virus proteins. J Proteome Res. 19 (4), 1522-1532 (2020).
- Gagoski, D., et al. Cell-free pipeline for discovery of thermotolerant xylanases and endo-1,4-beta-glucanases. J Biotechnol. 259, 191-198 (2017).
- Ergun Ayva, C., et al. Exploring performance parameters of artificial allosteric protein switches. J Mol Biol. 434 (17), 167678(2022).
- Lau, D., et al. Fluorescence biosensor for real-time interaction dynamics of host proteins with HIV-1 capsid tubes. ACS Appl Mater Interfaces. 11 (38), 34586-34594 (2019).
- Ryan, S. M., et al. Novel antiinflammatory biologics shaped by parasite-host coevolution. Proc Natl Acad Sci USA. 119 (36), e2202795119(2022).
- McMahon, K. A., et al. Identification of intracellular cavin target proteins reveals cavin-PP1alpha interactions regulate apoptosis. Nat Commun. 10 (1), 3279(2019).
- Sierecki, E., et al. A cell-free approach to accelerate the study of protein-protein interactions in vitro. Interface Focus. 3 (5), 20230018(2013).
- Johnston, W. A., Moradi, S. V., Alexandrov, K. Adaption of the Leishmania cell-free expression system to high-throughput analysis of protein interactions. Methods Mol Biol. 2025, 403-421 (2019).
- Jung, W., et al. Cell-free formation and interactome analysis of caveolae. J Cell Biol. 217 (6), 2141-2165 (2018).
- Fontaine, F. R., et al. Functional domain analysis of SOX18 transcription factor using a single-chain variable fragment-based approach. MAbs. 10 (4), 596-606 (2018).
- Overman, J., et al. Pharmacological targeting of the transcription factor SOX18 delays breast cancer in mice. Elife. 6, e21221(2017).
- Kubala, M. H., et al. Mammalian farnesyltransferase alpha subunit regulates vacuolar protein sorting-associated protein 4A (Vps4A)--dependent intracellular trafficking through recycling endosomes. Biochem Biophys Res Commun. 468 (4), 580-586 (2015).
- Han, S. P., et al. Cortactin scaffolds Arp2/3 and WAVE2 at the epithelial zonula adherens. J Biol Chem. 289 (11), 7764-7775 (2014).
- Das Gupta, K., et al. Class IIa histone deacetylases drive toll-like receptor-inducible glycolysis and macrophage inflammatory responses via pyruvate kinase M2. Cell Rep. 30 (8), 2712-2728.e8 (2020).
- Leitão, A. D. G., et al. Selectivity of protein interactions along the aggregation pathway of α-synuclein. BioRxiv. , (2021).
- Gagoski, D., et al. Performance benchmarking of four cell-free protein expression systems. Biotechnol Bioeng. 113 (2), 292-300 (2016).
- Johnston, W. A., Alexandrov, K. Production of eukaryotic cell-free lysate from Leishmania tarentolae. Methods Mol Biol. 1118, 1-15 (2014).
- Hunter, D. J. B., Bhumkar, A., Giles, N., Sierecki, E., Gambin, Y. Unexpected instabilities explain batch-to-batch variability in cell-free protein expression systems. Biotechnol Bioeng. 115 (8), 1904-1914 (2018).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
