Tropomoduline 3 (TMOD3) is de laatste jaren steeds vaker onderzocht bij tumoren. Deze studie is de eerste om te melden dat TMOD3 sterk tot expressie komt bij eierstokkanker en nauw verband houdt met platinaresistentie en immuuninfiltratie. Deze resultaten kunnen helpen de therapeutische resultaten voor eierstokkanker te verbeteren.
Methodenartikel
Overexpressie van tropomoduline 3 als marker voor platinaresistentie en immuuninfiltratie bij eierstokkanker
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Het cytoskelet speelt een belangrijke rol bij platinaresistentie bij eierstokkanker. Tropomoduline 3 (TMOD3) is van cruciaal belang bij de ontwikkeling van veel tumoren, maar de rol ervan in de resistentie tegen geneesmiddelen van eierstokkanker blijft onontgonnen. Door gegevens te analyseren uit de databases Gene Expression Omnibus (GEO), The Cancer Genome Atlas (TCGA) en Clinical Proteomic Tumor Analysis Consortium (CPTAC), vergeleek deze studie TMOD3-expressie bij eierstokkanker en normale weefsels, en onderzocht de expressie van TMOD3 na behandeling met platina bij platinagevoelige en platina-resistente eierstokkankers. De Kaplan-Meier-methode werd gebruikt om het effect van TMOD3 op de algehele overleving (OS) en progressievrije overleving (PFS) bij patiënten met eierstokkanker te beoordelen. microRNA's (miRNA's) gericht tegen TMOD3 werden voorspeld met behulp van TargetScan en geanalyseerd met behulp van de TCGA-database. Tumor Immune Estimation Resource (TIMER) en een geïntegreerd repositoryportaal voor interacties tussen tumor en immuunsysteem (TISIDB) werden gebruikt om de relatie tussen TMOD3-expressie en immuuninfiltratie te bepalen. TMOD3-co-expressienetwerken bij eierstokkanker werden verkend met behulp van LinkedOmics, de Search Tool for the Retrieval of Interacting Genes/Proteins (STRING) en The Database for Annotation, Visualization, and Integrated Discovery (DAVID) Bioinformatics. De resultaten toonden aan dat TMOD3 sterk tot expressie kwam bij eierstokkanker en geassocieerd was met de beoordeling, stadiëring en metastase van eierstokkanker. De expressie van TMOD3 was significant verminderd bij met platina behandelde eierstokkankercellen en patiënten. De TMOD3-expressie was echter hoger in platina-resistente eierstokkankercellen en -weefsels in vergelijking met platina-gevoelige. Hogere TMOD3-expressie was significant geassocieerd met een lagere OS en PFS bij patiënten met eierstokkanker die werden behandeld met chemotherapie op basis van platina. miRNA-gemedieerde posttranscriptionele regulatie is waarschijnlijk verantwoordelijk voor hoge TMOD3-expressie in eierstokkanker en platina-resistente eierstokweefsels. De expressie van TMOD3-mRNA werd geassocieerd met immuuninfiltratie bij eierstokkanker. Deze bevindingen geven aan dat TMOD3 sterk tot expressie komt bij eierstokkanker en nauw geassocieerd is met platinaresistentie en immuuninfiltratie.
Inleiding
Eierstokkanker is wereldwijd de op één na hoogste in het sterftecijfer van gynaecologische tumoren1. Het kan op basis van histopathologie in drie typen worden ingedeeld: kiemcel-, gonadale mesenchymale en epitheliale tumoren, waarvan 90% van de patiënten epitheliale eierstokkanker is. Risicofactoren die verband houden met eierstokkanker zijn onder meer aanhoudende ovulatie, verhoogde blootstelling aan gonadotropine en inflammatoire cytokines2. Meer dan 75% van de gevallen van eierstokkanker wordt pas in een vergevorderd stadium ontdekt, wat resulteert in een gebrek aan effectieve behandeling. Patiënten met gevorderde eierstokkanker hebben een slechte prognose, met minder dan 20% van de 5-jaarsoverleving ondanks nieuwe chemotherapieregimes, zoals intraperitoneale toediening en gerichte therapie. De standaardbehandeling voor eierstokkanker bestaat voornamelijk uit een tumorresectiechirurgie gevolgd door chemotherapie met geneesmiddelen zoals platina en paclitaxel. Tumorrecidief komt echter in ongeveer 70% van de gevallenvoor1. Cisplatine oefent zijn therapeutische effecten uit door de DNA-replicatie en transcriptie te verstoren en is momenteel het eerstelijnsmiddel bij chemotherapie tegen eierstokkanker. Een aanzienlijk deel van de patiënten met eierstokkanker is echter platinaresistent3. Meerdere cellulaire processen, zoals geneesmiddeluitvloeiing, cellulaire ontgifting, DNA-reparatie, apoptose en autofagie, zijn van cruciaal belang bij platinaresistentie in eierstokkankercellen 4,5,6.
De verandering in het cytoskelet is een belangrijk mechanisme dat de platinaresistentie bij eierstokkanker beïnvloedt. Onlangs is gemeld dat cytoskelet-gerelateerde genen meestal afwijkend tot expressie worden gebracht en dat het actine-cytoskelet aanzienlijk is gewijzigd in aanwezigheid van door cisplatine veroorzaakte apoptose7. Veel onderzoeken hebben aangetoond dat cisplatine de nanomechanica van eierstokkankercellen moduleert. De celstijfheid van gevoelige cellen neemt dosisafhankelijk toe met platina, voornamelijk bijgedragen door de verstoring van de polymerisatie van actine. Daarentegen vertoonden cisplatine-resistente cellen geen significante verandering in celstijfheid na behandeling met cisplatine8. Bovendien waren de moduli van de Young van cisplatine-gevoelige eierstokkankercellen lager, zoals blijkt uit atomaire krachtmicroscopie. Daarentegen vertonen cisplatine-resistente eierstokkankercellen een cytoskelet dat wordt gekenmerkt door lange actine-stressvezels. Het remmen van Rho GTPase vermindert de stijfheid en verbetert de gevoeligheid voor cisplatine in deze resistente cellen. Omgekeerd verhoogt het activeren van Rho GTPase in cisplatinegevoelige cellen de celstijfheid en vermindert het hun gevoeligheid voor cisplatine9. Het RNA-bindende eiwit met meervoudige splitsing (RBPMS), een tumorsuppressorgen, vermindert de cisplatineresistentie in eierstokkankercellen door de eiwitexpressie van het cytoskeletale netwerk te reguleren en de celintegriteit te handhaven10. Actine-stressvezels zijn meer uitgesproken in A2780/CP-cellen in vergelijking met A2780-cellen. De ontwikkeling van resistentie tegen geneesmiddelen in eierstokkankercellen induceert een uitgebreide reorganisatie van het actine-cytoskelet, waardoor de cellulaire mechanische eigenschappen, beweeglijkheid en intracellulair geneesmiddeltransport worden beïnvloed.
TMOD3 is een cytoskeletregulerend eiwit dat de depolymerisatie van actine voorkomt door de langzaam groeiende (puntige) uiteinden van actinefilamenten af te dekken12. TMOD3 speelt verschillende rollen in verschillende celtypen door de actinedynamiek te reguleren en neemt deel aan verschillende processen, zoals het bevorderen van celvorm, celmigratie en spiercontractie. Er werd aangetoond dat TMOD3-deletie bij muizen leidt tot embryonale dood bij E14.5-E18.5, wat suggereert dat TMOD3 een kritieke factor kan zijn in de embryonale ontwikkeling13. Op basis van zijn biologische functies in stam- en voorlopercellen kan TMOD3 een essentiële rol spelen bij de progressie van tumoren. Bij hepatocellulair carcinoom bevordert TMOD3 de groei, invasie en migratie van hepatocellulair carcinoomcellen door de MAPK/ERK-signaleringsroute14 te activeren en bevordert metastase op afstand door de PI3K-AKT-route te activeren door interactie met de epidermale groeifactorreceptor15. MiRNA-490-3p remt de proliferatie en invasie van hepatocellulaire carcinoomcellen door zich te richten op TMOD316. MiR-145 verbetert de stralingsgevoeligheid van stralingsresistente niet-kleincellige longkanker door TMOD317 te remmen. In vitro experimenten toonden aan dat TMOD3 de invasie van slokdarmkankercellen medieerde door het cytoskelet te reguleren door interactie met lysyloxidasehomoloog 2 (LOXL2)18. Bovendien bleek uit proteomische analyse dat een hoge expressie van TMOD3 mogelijk etoposide-chemoresistentie bij longkanker zou kunnen mediëren via de apoptotische route19. Hoewel TMOD3 de laatste jaren steeds meer wordt bestudeerd in tumoren, zijn er nog steeds geen rapporten over de rol van TMOD3 bij eierstokkanker en chemotherapie.
Uit deze studie bleek dat TMOD3 wordt opgereguleerd bij eierstokkanker. Met name de opregulatie van TMOD3 werd geassocieerd met platinaresistentie. Deze studie evalueerde ook de prognostische waarde van TMOD3 bij eierstokkanker en de correlatie met immuuninfiltratie van de tumor. Deze studie suggereert dat overexpressie van TMOD3 bij eierstokkanker geassocieerd is met platinaresistentie.
Protocol
1. Omnibus voor genexpressie (GEO)
OPMERKING: TMOD3-expressie bij eierstokkanker, bij eierstokkanker behandeld met platinageneesmiddelen en bij geneesmiddelresistente eierstokkanker werd afgeleid van de GEO-datasets. Het studietype van alle datasets was expressieprofilering per array, en de organismen waren Homo sapiens.
- Ga naar de GEO-database (zie Materiaaltabel) en voer trefwoorden in zoals TMOD3, eierstokkanker en resistente of gegevenstoetreding in het zoekvak (zie aanvullende figuur 1A).
- Verdeel de gegevens in verschillende groepen in het vak Groepering definiëren. Kies in het optiemenu Benjamini en Hochberg (Percentage valse ontdekkingen) in het vak Aanpassing toepassen op de P-waarden en klik vervolgens op geanalyseerd in het menu GEO2R. Klik op download volledige tabel om de resultaten te krijgen.
- Onderzoek en plot de gedownloade gegevens met grafische en statistische software (zie aanvullende figuur 1B).
- Gebruik de ongepaarde t-toets voor de vergelijking tussen twee groepen.
2. TNMplot
OPMERKING: TNMplot maakt gebruik van RNA-seq-gegevens van The Cancer Genome Atlas (TCGA), Therapeutic Research to Generate Effective Treatments (TARGET) en Genotype-Tissue Expression (GTEx) repositories20. De expressie van TMOD3 in normaal eierstokweefsel en eierstokkanker werd geanalyseerd met behulp van TNMplot.
- Ga naar de TNMplot-webtool (zie Materiaaltabel) en klik op Tumor en normaal vergelijken.
- Voer TMOD3 in Kies een genenvak in en kies Ovarieel sereus cystadenocarcinoom in Kies weefseldoos .
- Klik op start analyse om de resultaten te krijgen (zie aanvullende figuur 1C).
3. UALCAN
OPMERKING: Het CANcer-gegevensanalyseportaal van de Universiteit van ALabama in Birmingham (UALCAN) is een gebruiksvriendelijke online bron voor het analyseren van openbaar beschikbare kankergegevens21. De expressie van TMOD3 op eiwitniveau in normaal weefsel en eierstokkanker in CPTAC-gegevens werd geanalyseerd met behulp van UALCAN.
- Ga naar UALCAN (zie Tabel met materialen) en klik op het menu Proteomics .
- Voer TMOD3 in het vak Gennamen invoeren in en kies eierstokkanker in het vak CPTAC-gegevensset .
- Klik op Verkennen om de resultaten te krijgen (zie aanvullende figuur 1D).
4. Prognostische analyse van de KM-plotter
OPMERKING: De prognostische waarde van TMOD3 bij eierstokkanker werd geanalyseerd met behulp van Kaplan Meier-plotter (KM-plotter), inclusief totale overleving (OS) en progressievrije overleving (PFS)22.
- Ga naar KM-plotter (zie Tabel met materialen), en klik op Start KM-plotter voor eierstokkanker.
- Plaats TMOD3 in het symboolvak Affy id/Gene .
- Kies Automatisch selecteren beste cutoff in Patiënten splitsen op vak.
- Kies bevat platine in de chemotherapie-optie bij het uitvoeren van prognoseanalyse voor patiënten met chemotherapie op basis van platina.
- Kies TCGA in Gebruik volgende dataset(s) voor het analysevak .
- Klik op Teken Kaplan-Meier-plot om de resultaten te krijgen (zie aanvullende figuur 2).
5. ROC-plotter
OPMERKING: De Receiver Operating Characteristics Curve (ROC) Plotter werd gebruikt om de expressie van TMOD3 te analyseren bij patiënten die resistent of gevoelig zijn voor chemotherapie op basis van platina en maakt validatie van het geïnteresseerde gen als voorspellende marker door ROC-curven mogelijk. Datasets van ROC-plotters op transcriptoomniveau zijn voornamelijk afkomstig uit de TCGA- en GEO-databases en bevatten behandelings- en responsgegevens van 1816 patiënten met eierstokkanker23.
- Ga naar De ROC-plotter (zie Materiaaltabel) en klik op ROC-plotter voor eierstokkanker.
- Plaats TMOD3 in het vak met het gensymbool .
- Kies Terugvalvrije overleving na 6 maanden in het vak Reageert en kies Platin in het vak Behandeling .
- Klik op Berekenen om de resultaten te krijgen (zie aanvullende figuur 3).
6. mRNA-miRNA-analyse
OPMERKING: De miRNA's gericht op TMOD3 werden voorspeld door TargetScan24, en vervolgens werd de correlatie van TMOD3 met deze miRNA's in de TCGA-dataset voor eierstokkanker geanalyseerd door cBioportal25. Vervolgens werd het bovenstaande resultaat gevisualiseerd door Cytoscape26. MiRNA-expressie bij cisplatinegevoelige en geneesmiddelresistente eierstokkankerpatiënten werd geanalyseerd door LinkedOmics27.
- Ga naar TargetScan (zie Tabel met materialen) en voer TMOD3 in het vak Voer een menselijk gen in (zie aanvullende afbeelding 4A).
- Ga naar cBioportal (zie Tabel met materialen).
- Kies de dataset voor sereus cystadenocarcinoom (TCGA, Nature 2011) en voeg TMOD3- en miRNA-symbolen in het vak Genen invoeren in.
- Klik op Submit Query om de correlatiegegevens van TMOD3 met miRNA's in de TCGA-dataset voor eierstokkanker te krijgen (zie aanvullende figuur 4B) en visualiseer vervolgens het resultaat door Cytoscape (zie Tabel met materialen) (zie aanvullende figuur 4C).
- Ga naar LinkedOmics (zie Materiaaltabel) en selecteer TCGA_OV Voorbeeldcohort .
- Kies klinisch in het vak Gegevensset zoeken selecteren en selecteer platinastatus in het vak Kenmerk van zoekgegevensset selecteren.
- Kies miRNASeq in het vak Doelgegevensset selecteren en kies t-test in Statistische methode selecteren.
- Klik op Aanvraag indienen om de resultaten te krijgen (zie aanvullende figuur 4D).
7. Immuno-infiltratie analyse
OPMERKING: De Human Protein Atlas (HPA)-database werd gebruikt om de verdeling van TMOD3 in verschillende immuuncellen te analyseren. TIMER is een handige online database die immuuninfiltratie analyseert die verband houdt met meerdere soorten kanker28. Deze studie gebruikte TIMER om de relatie tussen TMOD3-mRNA-expressie en zuiverheid van eierstokkanker en infiltratie van immuuncellen te analyseren. TISIDB is een online portaal voor interacties tussen tumor en immuunsysteem29. Deze studie gebruikte TISIDB om de correlatie tussen TMOD3 en immunomodulatoren bij eierstokkanker te bepalen.
- Ga naar HPA (zie Tabel met materialen) en voeg TMOD3 in het zoekvak in, dan krijg je het resultaat.
- Kies Immuun om de verdeling van TMOD3 in verschillende immuuncellen weer te geven (zie aanvullende figuur 5A).
- Ga naar TIMER (zie Materiaaltabel) en vul TMOD3 in het vak Gen Symbool in.
- Kies OV in het vak Kankersoorten en klik op Verzenden om het resultaat te krijgen (zie aanvullende figuur 5B).
- Ga naar TISIDB (zie Materiaaltabel) en vul TMOD3 in het vak Gen Symbool in.
- Klik op Verzenden om het resultaat te krijgen (zie aanvullende figuur 5C).
8. TMOD3-co-expressienetwerken bij eierstokkanker
OPMERKING: Genen die samen met TMOD3 tot expressie werden gebracht, werden geanalyseerd door LinkedOmics en TOP50-genen werden weergegeven door heatmaps. TMOD3-interagerende genen werden voorspeld door STRING30. Vervolgens werden de overlappende genen weergegeven door het Venn-diagram. De overlappende genen werden functioneel geannoteerd door DAVID31voor Gene Ontology Biological Process (GO-BP), Gene Ontology Cellular Component (GO-CC), Gene Ontology Molecular Function (GO-MF) en Kyoto Encyclopedia of Genes and Genomes (KEGG) routes.
- Ga naar LinkedOmics en selecteer TCGA_OV Voorbeeldcohort.
- Kies RNAseq in het vak Gegevensset zoeken zoeken en Doelgegevensset selecteren .
- Klik op Submit Query om de resultaten te krijgen van genen die samen met TMOD3 tot expressie zijn gebracht.
- Ga naar STRING (zie Tabel met materialen) en voer TMOD3 in het vak Eiwitnaam in.
- Kies homo sapiens in het vak Organismen en klik op zoeken om het resultaat te krijgen (zie aanvullende figuur 6).
- Ga naar DAVID (zie Tabel met materialen).
- Voeg de overlappende genen in het vak Genenlijst invoeren in en kies ENSEMBL _GENE_SYMBOL in het vak Identificatie selecteren .
- Klik op Verzendlijst om de resultaten te krijgen (zie aanvullende figuur 7).
9. CTD-databank
OPMERKING: De CTD-database is een nieuw hulpmiddel om de relaties tussen chemie, genen, fenotypes, ziekte en het milieu teanalyseren32. De CTD-database voorspelt geneesmiddelen die zich richten op TMOD3. De PubChem-database wordt vervolgens gebruikt om de definitieve moleculaire structuur van het medicijn te bepalen.
- Ga naar de CTD-database (zie Materiaaltabel) en kies Chemical - Gene Interaction Query in het menu Zoeken .
- Voer TMOD3 in het GENE-vak in en klik op zoeken om de resultaten te krijgen (zie aanvullende figuur 8).
- Ga naar de PubChem-database (zie Materiaaltabel) en vul geneesmiddelen in het zoekvak in om de resultaten te krijgen (zie aanvullende figuur 9).
Resultaten
TMOD3-expressie bij eierstokkanker
Ten eerste toonde de GEO-database aan dat de mRNA-expressieniveaus van TMOD3 verhoogd waren in microarray-datasets GSE51088 en GSE66957 (Figuur 1A,B). TMOD3 werd ook sterk tot expressie gebracht bij eierstokkanker in vergelijking met normaal eierstokweefsel door de TNMplot-webtool (Figuur 1C). Analyse van CPTAC-gegevens door de UALCAN-webtool toonde aan dat het eiwitniveau van TMOD3 ook significant hoger was bij eierstokkanker dan bij normaal eierstokweefsel (Figuur 1D). Bovendien toonde de GEO-dataset GSE53963 aan dat de TMOD3-expressie significant hoger was bij eierstokkanker met graad 4 dan bij mensen met graad 2 en 3 (Figuur 1E), en de GSE23554 dataset toonde aan dat TMOD3-niveaus hoger waren bij patiënten met stadium 3 eierstokkanker dan bij patiënten met stadium 1 en 2 (Figuur 1F). Bovendien toonde de GSE131978 dataset aan dat de TMOD3-expressie ook significant hoger was in eierstokkankerweefsels met metastase dan in weefsels zonder metastase (Figuur 1G). Deze resultaten suggereren dat TMOD3 de progressie van eierstokkanker kan beïnvloeden.
Effecten van platina op TMOD3-expressie bij eierstokkanker
Chemotherapie is een belangrijke factor die de progressie van eierstokkanker beïnvloedt33. Om te onderzoeken of TMOD3 de progressie van eierstokkanker beïnvloedt door chemotherapie te beïnvloeden, werd in deze studie eerst waargenomen of de TMOD3-expressie veranderde bij eierstokkanker bij behandeling met chemotherapeutische geneesmiddelen. GSE47856 dataset toonde aan dat het expressieniveau van TMOD3 afnam na behandeling met cisplatine in de CH1-cellijn van eierstokkanker (Figuur 2A). De GSE49577 dataset toonde aan dat de TMOD3-mRNA-expressie lager was bij xenotransplantaatmuizen met eierstokkanker die werden behandeld met carboplatine dan bij onbehandelde muizen (Figuur 2B). Bovendien toonde de GSE63885 dataset ook aan dat de TMOD3-expressie significant was verminderd na chemotherapie op basis van platina bij patiënten met eierstokkanker die zeer gevoelig waren voor platina in vergelijking met patiënten met eierstokkanker die niet met chemotherapie werden behandeld, maar er was geen verschil bij patiënten met eierstokkanker die matig gevoelig waren voor platina (Figuur 2C). De bovenstaande resultaten suggereren dat TMOD3 een mogelijk doelwit van platina is.
TMOD3-expressie bij platinagevoelige of resistente eierstokkanker
Op basis van de bovenstaande resultaten veronderstelde deze studie dat een hoge expressie van TMOD3 bij eierstokkanker de progressie van eierstokkanker zou kunnen beïnvloeden door de platinaresistentie te reguleren. Daarom werd in deze studie eerst de expressie van TMOD3 in geneesmiddelresistente cellijnen of kankerweefsels van patiënten onderzocht aan de hand van meerdere GEO-datasets. Zowel GSE15372 als GSE33482 datasets toonden aan dat de TMOD3-expressie in cisplatine-resistente eierstokkankercellijn a2780 significant hoger was dan die in de cisplatine-gevoelige groep (Figuur 3A,B). De GSE45553 dataset toonde aan dat de TMOD3-expressie in cisplatine-resistente ovariumkankersferoïde expressie significant hoger was dan die van de cisplatine-gevoelige groep (Figuur 3C). Ten slotte bleek uit een uitgebreide analyse van TCGA- en GEO-patiënten met chemotherapie voor eierstokkanker met behulp van de ROC-plotter dat de expressie van TMOD3 significant hoger was bij patiënten met eierstokkanker met platinaresistentie dan bij platina-gevoelige patiënten (Figuur 3D). Bovendien toonde de ROC-curve TMOD3 als een marker voor het bepalen van platinaresistentie bij eierstokkanker (Figuur 3E). De bovenstaande resultaten suggereren dat een hoge expressie van TMOD3 een essentiële rol kan spelen bij platinaresistentie bij eierstokkanker.
Het effect van TMOD3-expressie op het overlevingspercentage van eierstokkankerpatiënten
Prognostische analyse van TCGA-patiënten met eierstokkanker met behulp van een KM-plottertool toonde aan dat een hoge expressie van TMOD3-mRNA significant geassocieerd was met een lage OS en PFS bij totale patiënten of patiënten met platinabehandeling (Figuur 4). Interessant is dat PFS bij patiënten met een platinabehandeling significanter was dan bij het totale aantal patiënten (Figuur 4D). Omdat PFS een betere indicator is voor behandelingsresultaten dan OS, toont de prognostische analyse verder de cruciale rol van TMOD3 aan bij patiënten met op platina gebaseerde chemotherapie voor eierstokkanker.
mRNA-miRNA-analyse van TMOD3 bij eierstokkanker
Post-transcriptionele regulatie gemedieerd door microRNA's is een belangrijk mechanisme dat de genexpressie beïnvloedt. De functie van een gen kan worden voorspeld op basis van de functie van microRNA's die erop gerichtzijn 34. Om het mogelijke mechanisme van verhoogde TMOD3-expressie bij eierstokkanker te onderzoeken, werden eenentwintig microRNA's gericht op TMOD3 geïdentificeerd door TargetScan-voorspelling. Hun correlatie met TMOD3 werd ook gevalideerd in TCGA-monsters van eierstokkanker (Figuur 5A). Van allemaal is aangetoond dat ze tumorchemoresistentie mediëren, en van de meerderheid (17/21) werd aangetoond dat ze geassocieerd zijn met cisplatineresistentie bij eierstokkanker 35,36,37,38,39,40,41,42,43,44,45,46,47,48, behalve has-miR-301a-3p, has-miR -301b-3p, has-miR-365a-5p en has-miR-365b-5p. Bovendien bleek uit analyse van de TCGA-eierstokkankermonsters dat zowel has-miR-454-3p als has-miR-133a-3p het meest significant negatief gecorreleerd waren met TMOD3-expressie (figuur 5A-C). Bovendien bleek has-miR-133a-3p laag tot expressie te komen in cisplatine-resistente eierstokkankers door Linkedomics-analyse (Figuur 5E), terwijl er geen significantie was in has-miR-454-3p (Figuur 5D). Daarom is het mogelijk dat posttranscriptionele regulatie gemedieerd door microRNA's, met name has-miR-133a-3p, verantwoordelijk is voor de hoge expressie van TMOD3 bij cisplatine-resistente eierstokkanker.
Relatie tussen TMOD3-expressie en immuuninfiltratie bij eierstokkanker
Immunotherapie is een nieuwe en veelbelovende therapeutische strategie in vergelijking met chemotherapie en chirurgie. Ongeveer 50% van de patiënten met eierstokkanker heeft spontane infiltratie van meerdere immuuncellen49,50. Bovendien is immunotherapie voor patiënten met eierstokkanker met chemoresistentie interessant. Zo heeft de geprogrammeerde celdood 1 ligand 1 (PD-L1)-remmer Durvalumab, in combinatie met de PARP-remmer Olaparib, goede therapeutische effecten aangetoond bij eierstokkankerpatiënten met platinaresistentie51. De HPA-dataset toonde aan dat TMOD3 wijd verspreid was in verschillende immuuncellen (Figuur 6A,B), wat impliceert dat TMOD3 een belangrijke rol speelt in de immuuncellen. Daarom onderzocht deze studie de correlatie tussen TMOD3 en immuuninfiltratie van eierstokkanker met behulp van TIMER. TMOD3 was negatief gecorreleerd met tumorzuiverheid (Figuur 6C). Dit suggereert dat veel andere cellen eierstokkankerweefsel infiltreren en dat TMOD3 mogelijk eierstokkanker zou kunnen beïnvloeden via deze geïnfiltreerde cellen. De resultaten toonden inderdaad verder aan dat TMOD3-expressie positief gecorreleerd was met B-lymfocyten, CD8+ T-cellen, neutrofielen en dendritische cellen, maar niet met CD4+ T-cellen en macrofagen (Figuur 6D-I). Deze studie onderzocht verder de relatie tussen TMOD3-expressie en immunomodulatoren of chemokines bij eierstokkanker. Het bleek dat TMOD3-expressie significant gecorreleerd was met verschillende immunomodulatoren (Figuur 7A), waaronder gevestigde immuuncontrolepunten zoals Programmed Death 1 (PD1), PD-L1 (CD274) en Cytotoxisch T-lymfocytenantigeen 4 (CTLA4) (Figuur 7B-D). Deze resultaten suggereren dat TMOD3 een belangrijke rol kan spelen bij immuuninfiltratie van eierstokkanker.
TMOD3 co-expressienetwerken bij eierstokkanker
Deze studie onderzocht vervolgens de mogelijke mechanismen van TMOD3 bij de betrokkenheid van eierstokkanker. Ten eerste construeerde deze studie het co-expressienetwerk van TMOD3 bij eierstokkanker. In totaal waren 4774 genen significant geassocieerd met TMOD3 in de TCGA-eierstokkankermonsters die door LinkedOmics werden onthuld. De heatmap toonde de TOP50-genen positief of negatief geassocieerd met TMOD3 (Figuur 8A,B). Vervolgens screende deze studie 295 genen die interageren met TMOD3 met behulp van STRING. Na overlapping van 4774 genen die significant geassocieerd zijn met TMOD3 en 295 genen die interageren met TMOD3, werden 76 genen gescreend (Figuur 8C). Functionele verrijkingsanalyse van deze 76 genen toonde aan dat actine, cytoskelet en focale adhesie het meest verrijkt waren (Figuur 8D). Uit de analyse van de KEGG-routeverrijking bleek dat proteoglycanen bij kanker het meest verrijkt waren (Figuur 8E).
Therapieën met kleine moleculen
Correlaties tussen TMOD3 en potentiële geneesmiddelen of kleine moleculen werden geanalyseerd met behulp van de CTD-database. Er werden in totaal acht geneesmiddelen geïdentificeerd die potentiële remmende effecten hebben op TMOD3 (Figuur 9A), waaronder paracetamol, aristolochinezuur I, bufaline, doxorubicine, foliumzuur, haloperidol, T-2-toxine en tetrachloordibenzodioxine (Figuur 9B-I). De moleculaire structuren van de geïdentificeerde geneesmiddelen werden bepaald door de PubChem-database. Deze geneesmiddelen geven aanwijzingen voor het overwinnen van het proces van geneesmiddelresistentie bij eierstokkanker gemedieerd door TMOD3-overexpressie.
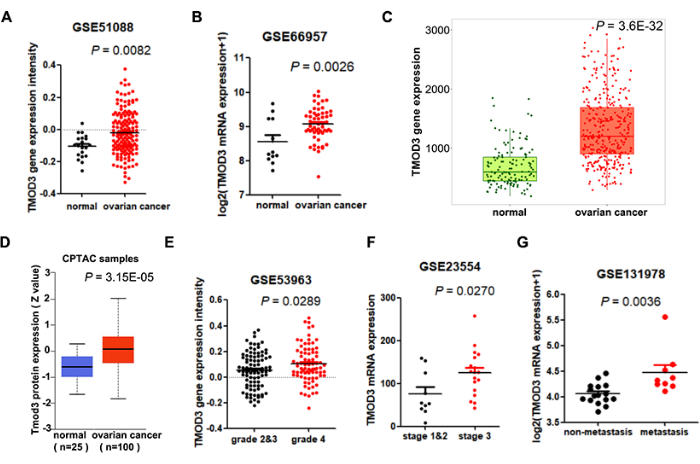
Figuur 1: mRNA- en eiwitexpressieniveaus van TMOD3 in meerdere datasets voor eierstokkanker. (A) Analyse van mRNA-expressie van TMOD3 in normale eierstokweefsels (n = 20) en eierstokkanker (n = 152) door GSE51088 dataset. (B) Analyse van mRNA-expressie van TMOD3 in normale eierstokweefsels (n = 12) en eierstokkanker (n = 57) door GSE66957 dataset. (C) Analyse van mRNA-expressie van TMOD3 in normaal eierstokweefsel (n = 133) en eierstokkanker (n = 374) door TNM-plottertool. (D) Analyse van de eiwitexpressie van TMOD3 in normaal eierstokweefsel (n = 25) en eierstokkanker (n = 100) in CPTAC-gegevens door UALCAN-tool. (E) Analyse van mRNA-expressie van TMOD3 bij eierstokkanker van graad 2 en 3 (n = 94) en eierstokkanker van graad 4 (n = 80) volgens GSE53963 dataset. (F) Analyse van TMOD3-mRNA-expressie bij eierstokkanker van stadium 1 en 2 (n = 10) en eierstokkanker van stadium 3 (n = 18) door GSE23554 dataset. Vul hier tekst in. (G) Analyse van TMOD3-mRNA-expressie bij eierstokkanker met of zonder metastase door de GSE131978 dataset. De gegevens worden weergegeven als gemiddelde ± SEM. Klik hier om een grotere versie van deze figuur te bekijken.
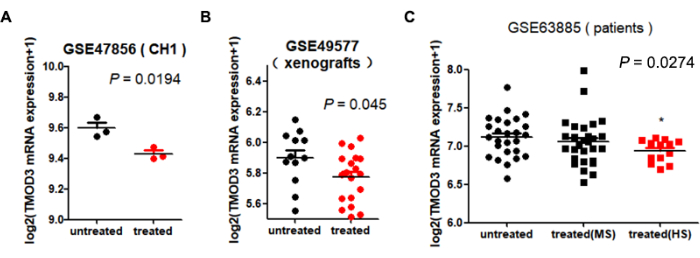
Figuur 2: TMOD3-mRNA-expressieniveaus in eierstokkankercellijnen, getransplanteerde tumoren en patiënten na behandeling met platina. (A) Analyse van TMOD3-mRNA-expressie in met cisplatine behandelde (n = 3) en onbehandelde CH1 (n = 3) eierstokkankercellijnen door de GSE47856 dataset. (B) Analyse van TMOD3-mRNA-expressie in met cisplatine behandelde (n = 12) en onbehandelde TMOD3-mRNA-expressie in CH1 (n = 19) eierstokkankertransplantaties. (C) Analyse van TMOD3-mRNA-expressie bij met cisplatine behandelde eierstokkankerpatiënten met hoogsensitieve (HS, n = 13) en matig gevoelige voor cisplatine (n = 28), evenals bij patiënten zonder cisplatinebehandeling (n = 26). De gegevens worden weergegeven als gemiddelde ± SEM. *vergeleken met onbehandeld, P < 0,05. Klik hier om een grotere versie van deze figuur te bekijken.
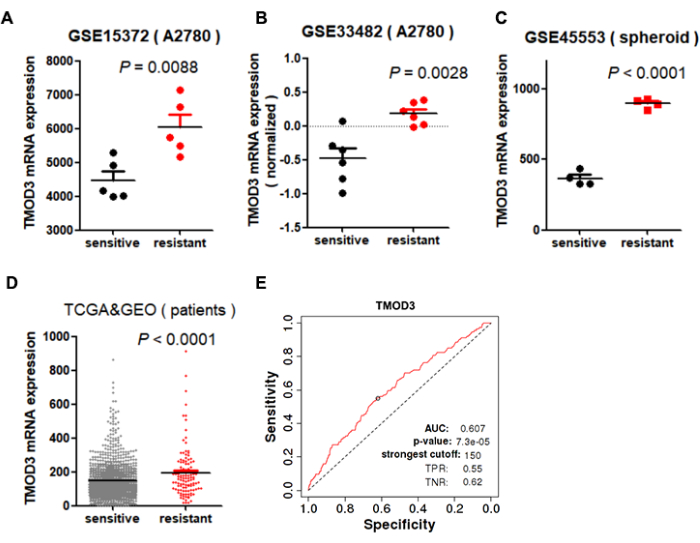
Figuur 3: TMOD3 mRNA-expressieniveaus in platinagevoelige en platina-resistente eierstokkankercellijnen of patiënten. (A,B) TMOD3-mRNA-expressieniveaus in cisplatinegevoelige en cisplatine-resistente A2780-cellijnen werden geanalyseerd door de GSE15372 dataset (A) en GSE33482 dataset (B). (C) TMOD3-mRNA-expressieniveaus in cisplatinegevoelige en cisplatine-resistente eierstokkankersferoïde werden geanalyseerd door de GSE45553 dataset. (D,E) TMOD3-mRNA-expressieniveaus bij platinagevoelige en platina-resistente patiënten met eierstokkanker werden geanalyseerd door de ROC-plottertool (D) en TMOD3 werd geïdentificeerd als een marker voor het bepalen van platinaresistentie door ROC-curven (E). De gegevens worden weergegeven als gemiddelde ± SEM. Klik hier om een grotere versie van deze figuur te bekijken.
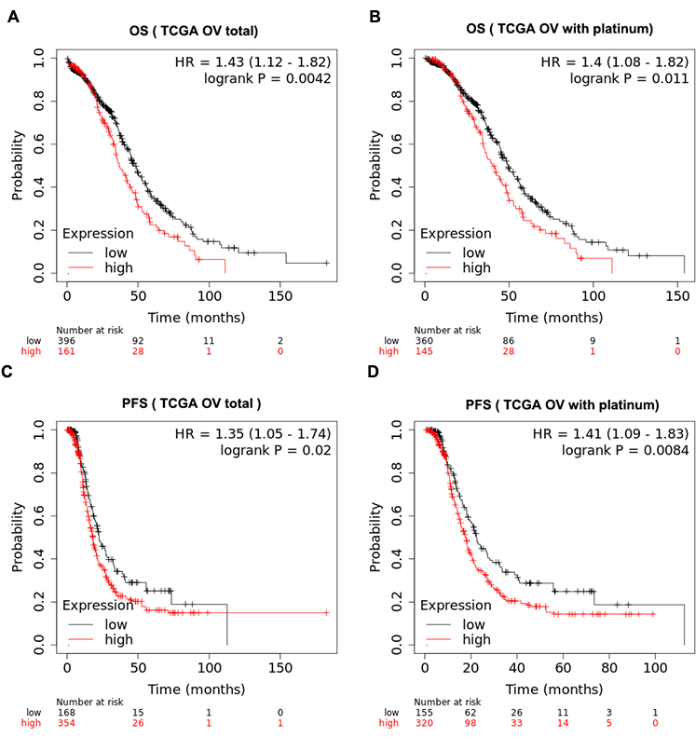
Figuur 4: Correlatieanalyse van TMOD3-mRNA-expressieniveaus met OS en PFS van patiënten met eierstokkanker. (A,B) Correlatieanalyse van TMOD3-mRNA-expressieniveaus met OS bij alle TCGA-patiënten met eierstokkanker (A) of patiënten die chemotherapie op basis van platina krijgen (B). (C,D) Correlatieanalyse van TMOD3-mRNA-expressieniveaus met PFS bij alle TCGA-patiënten met eierstokkanker (C) of patiënten die chemotherapie op basis van platina krijgen (D). Klik hier om een grotere versie van deze figuur te bekijken.
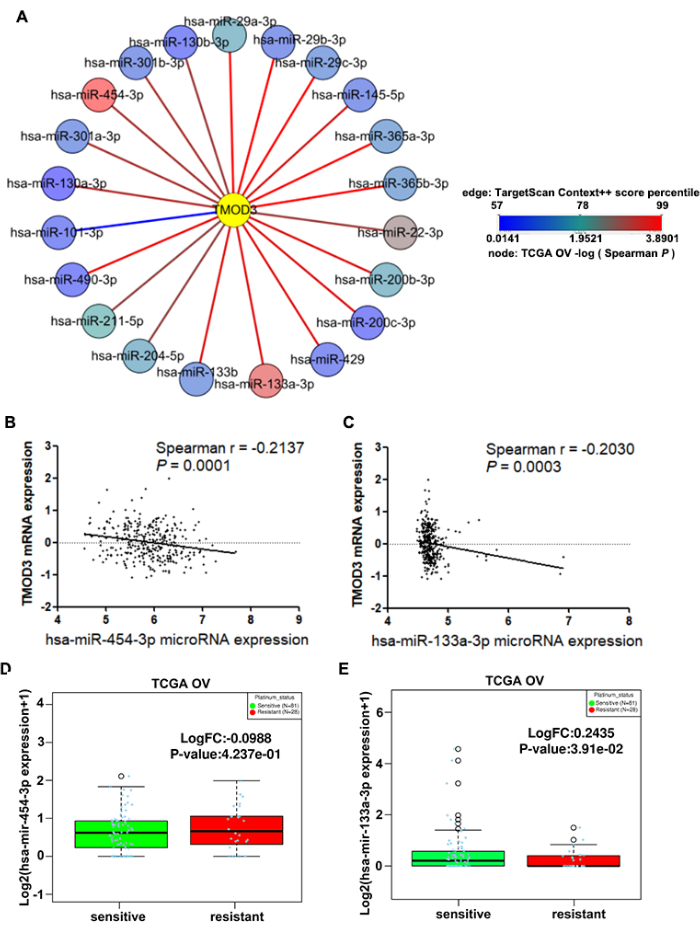
Figuur 5: Bepaling van relaties tussen TMOD3 en geneesmiddelresistentie door mRNA-microRNA-interactieanalyse. (A) Voorspelling van miRNA's gericht tegen TMOD3. De lijnkleur vertegenwoordigt het TargetScan Context++-scorepercentiel en de knooppuntkleur vertegenwoordigt de correlatiesterkte tussen dit miRNA en TMOD3 in de TCGA-dataset voor eierstokkanker. (B,C) Correlatie tussen TMOD3-mRNA-expressieniveaus en has-miR454-3p (B) en has-miR133a-3p (C) in TCGA-eierstokkankermonsters. (D,E) Expressie van has-miR454-3p (D) en has-miR133a-3p (E) in cisplatinegevoelige en resistente eierstokkanker in TCGA-eierstokkankermonsters. De gegevens worden weergegeven als gemiddelde ± SEM. Klik hier om een grotere versie van deze figuur te bekijken.
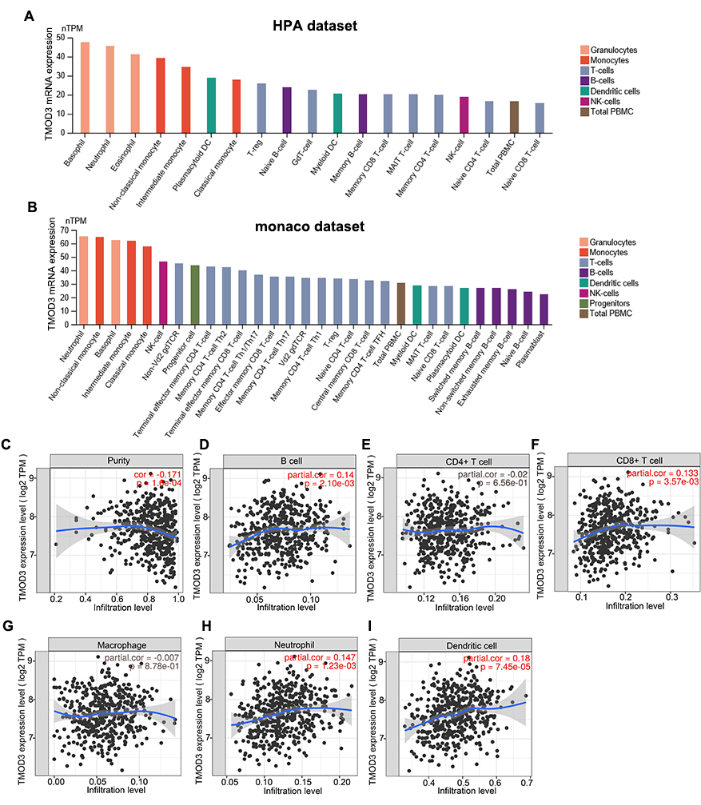
Figuur 6: Correlatie van TMOD3 mRNA-expressieniveaus met infiltratie van immuuncellen bij eierstokkanker. (A,B) TMOD3 mRNA-expressieniveaus van immuuncellen in HPA-dataset (A) en Monaco-dataset (B). (C-I) Correlatie van TMOD3-mRNA-expressieniveaus met tumorzuiverheid bij TCGA-eierstokkanker (C), B-lymfocyten (D), CD4+ T-cellen (E), CD8+ T-cellen (F), macrofagen (G), neutrofielen (H) en infiltratie van dendritische cellen (I). Klik hier om een grotere versie van deze figuur te bekijken.
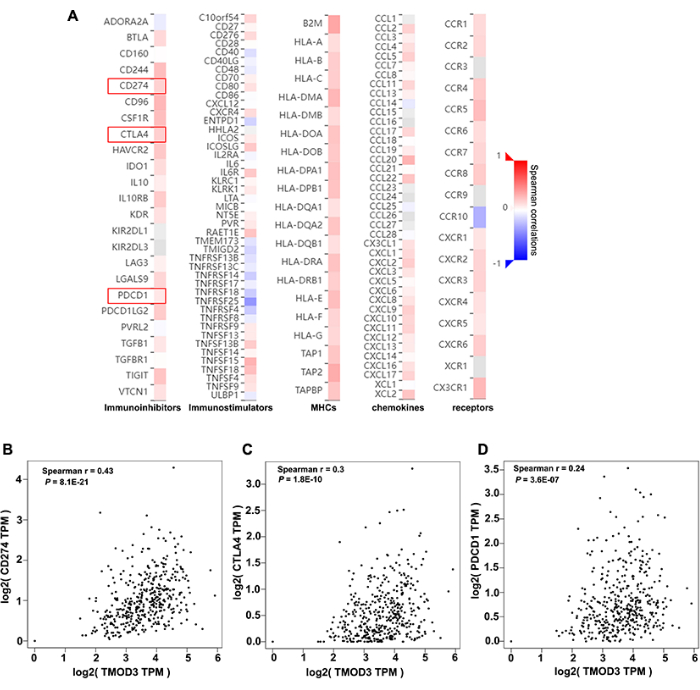
Figuur 7: Correlatieanalyse van TMOD3-mRNA-expressieniveaus met immunoregulerende factoren bij patiënten met eierstokkanker. (A) De heatmap van correlatie tussen TMOD3-mRNA-expressie en immunoregulatoren bij TCGA-eierstokkanker, waaronder immuunremmers, immunostimulatoren, MHC's, chemokinen en receptoren. (B-D) Correlatieanalyse van TMOD3-mRNA-expressieniveaus met immuuncontrolepunten zoals PD1 (B), PD-L1 (CD274) (C) en CTLA4 (D) in TCGA-eierstokkankermonsters. Klik hier om een grotere versie van deze figuur te bekijken.
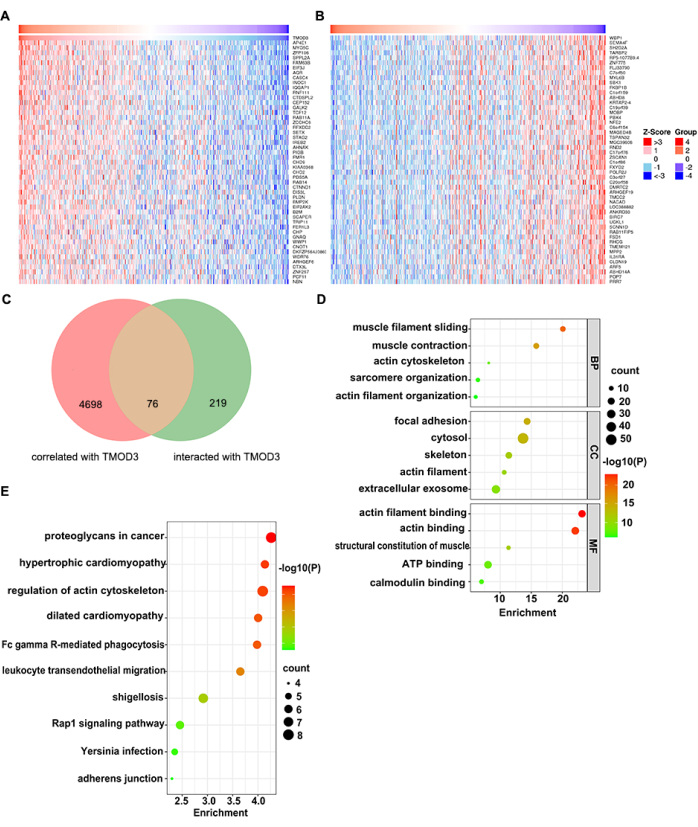
Figuur 8: TMOD3 co-expressie netwerken bij eierstokkanker. (A,B) Heatmaps die de top 50 genen positief (A) en negatief (B) gecorreleerd met TMOD3 tonen in TCGA-datasets voor eierstokkanker met behulp van LinkedOmics. Rood en blauw vertegenwoordigen respectievelijk positief en negatief gecorreleerde genen. (C) Venndiagram van 295 genen die interageerden met TMOD3, en de 4774 genen gecorreleerd met TMOD3 bij TCGA-eierstokkanker. (D) Functionele verrijkingsanalyse van 76 overlappende genen. De bubbelplot toonde de top 5 elementen die aanzienlijk verrijkt waren in BP, CC en MF. (E) De TOP10-routes van de analyse van de verrijking van de KEGG-route. Klik hier om een grotere versie van deze figuur te bekijken.
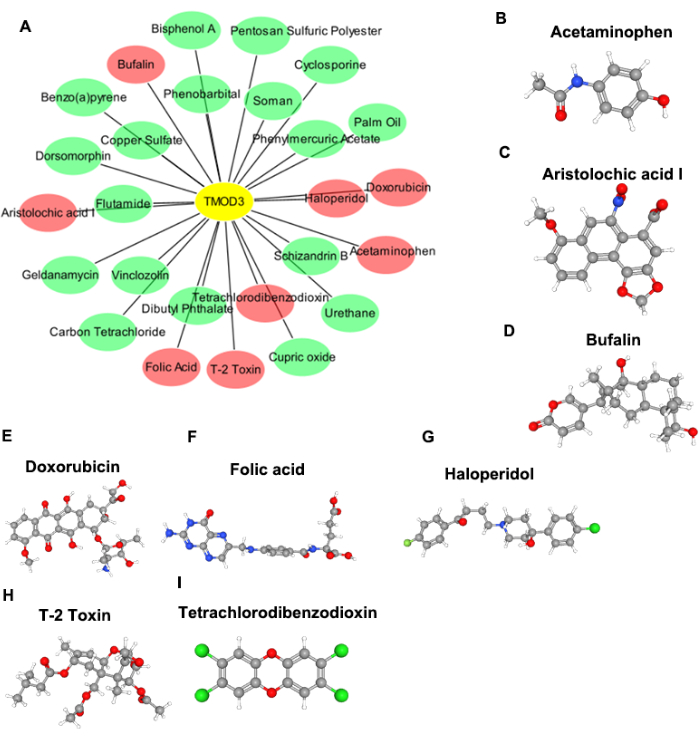
Figuur 9: Voorspelling van potentiële geneesmiddelen of kleine moleculen gericht op TMOD3. (A) Voorspelling van potentiële geneesmiddelen die zich richten op TMOD3 met behulp van de CTD-database, waarbij rood staat voor geneesmiddelen die TMOD3 zouden kunnen remmen. (B-H) De PubChem-database onthult de moleculaire structuren van acht gerichte geneesmiddelen. b) paracetamol, c) aristolochinezuur I, d) bufaline, e) doxorubicine, f) foliumzuur, g) haloperididol, h) T-2-toxine. i) tetrachloordibenzodioxine. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullende figuur 1: Methoden voor het analyseren van mRNA- en eiwitexpressieniveaus van TMOD3 in meerdere datasets voor eierstokkanker. (A) Analyse van de TMOD3-expressie met behulp van de GEO-database. (B) Verdere analyse van gegevens uit de GEO-database met behulp van statistische en grafische software. (C) Analyse van de TMOD3-expressie met behulp van de TNMplot. (D) Analyse van de eiwitexpressie met behulp van de UALCAN. Klik hier om dit bestand te downloaden.
Aanvullende figuur 2: Prognostische analyse met behulp van KM-plotter. Klik hier om dit bestand te downloaden.
Aanvullende figuur 3: Analyse van ROC-curves met behulp van ROC-plotter. Klik hier om dit bestand te downloaden.
Aanvullende figuur 4: Methoden voor mRNA-miRNA-analyse. (A) Voorspelling van miRNA's target TMOD3 met behulp van TargetScan. (B) Correlatieanalyse van TMOD3 met miRNA's met behulp van cBioportal. (C) Visualisatie van correlatieanalyse met behulp van Cytoscape. (D) Analyse van de expressie van miRNA's met behulp van LinkedOmics. Klik hier om dit bestand te downloaden.
Aanvullende Figuur 5: Methoden voor immuno-infiltratieanalyse. (A) Analyse van de TMOD3-verdeling in verschillende immuuncellen. (B) Correlatieanalyse van TMOD3 met immuuninfiltratie met behulp van cBioportal. (C) Correlatieanalyse van TMOD3 met immunomodulatoren met behulp van TISIDB. Klik hier om dit bestand te downloaden.
Aanvullende Figuur 6: Voorspelling van genen die interageren met TMOD3 met behulp van STRING. Klik hier om dit bestand te downloaden.
Aanvullende figuur 7: Functionele annotatie met behulp van DAVID. Klik hier om dit bestand te downloaden.
Aanvullende figuur 8: Voorspelling van geneesmiddelen target TMOD3 met behulp van CTD-database. Klik hier om dit bestand te downloaden.
Aanvullende figuur 9: Analyse van de moleculaire structuur van de geneesmiddelen met behulp van de PubChem-database. Klik hier om dit bestand te downloaden.
Discussie
Het cytoskelet wordt als essentieel beschouwd bij de ontwikkeling en progressie, behandeling en prognose van verschillende tumoren52. Vergeleken met TMOD1, dat beperkt is tot erytrocyten en het cardiovasculaire systeem53, en TMOD2, dat beperkt is tot het zenuwstelsel54, heeft TMOD3 een alomtegenwoordige distributie, wat de studie van TMOD3 in systemische tumoren populairder maakt 14,15,16,17,18,19. Toch zijn er nog steeds geen studies naar TMOD3 bij eierstokkanker. Dit onderzoek bracht de hoge expressie van TMOD3 bij eierstokkanker aan het licht en analyseerde verder de rol ervan bij platinaresistentie en tumorimmuuninfiltratie bij eierstokkanker.
De GEO is 's werelds toonaangevende, volledig openbaar beschikbare databank voor genexpressie. Door de GEO- en TCGA-databases te integreren, toonde deze studie aan dat TMOD3 tot overexpressie werd gebracht bij eierstokkanker uit meerdere onafhankelijke datasets op zowel mRNA- als eiwitniveau. Abnormale genexpressie is een belangrijk mechanisme voor de ontwikkeling van tumoren55, en deze studie vond verder dat TMOD3 significant geassocieerd was met metastase, graden, stadia en prognose van eierstokkanker. Daarom speelt TMOD3 een vitale rol bij eierstokkanker.
Eerdere studies meldden dat cytoskelet-gerelateerde genen meestal afwijkend tot expressie werden gebracht in cisplatine-geactiveerde apoptose, en dat het actine-cytoskelet aanzienlijk was gewijzigd7. Inderdaad, als een eiwit dat de langzaam groeiende (puntige) uiteinden van actinefilamenten afdekt, werd TMOD3 veranderd na behandeling met cisplatine en carboplatine, en GO-termanalyse en KEGG-analyse toonden ook aan dat actine-cytoskelet een potentieel mechanisme zou kunnen zijn voor TMOD3 om het proces bij eierstokkanker te beïnvloeden. Het cytoskelet is echter een complex biologisch proces en deze studie toonde alleen aan dat de expressie van TMOD3 werd beïnvloed door platinageneesmiddelen. Of TMOD3 een direct doelwit is van platinageneesmiddelen en of andere chemotherapeutische geneesmiddelen ook de TMOD3-expressie veranderen, moet verder worden bewezen door moleculair biologische experimenten. In deze studie was de TMOD3-expressie bij patiënten met matige gevoeligheid voor platina niet significant veranderd na chemotherapie op basis van platina, terwijl TMOD3 significant afnam bij hooggevoelige patiënten. Op basis van de hoge expressie van TMOD3 bij eierstokkanker, is het redelijk om te speculeren dat TMOD3 geassocieerd is met platinaresistentie bij eierstokkanker. Met behulp van in vitro experimentele datasets en patiëntdatasets bleek uit deze studie ook dat de TMOD3-expressie significant hoger was in platina-resistente eierstokkankercellijnen of patiënten dan in platina-gevoelige. Late diagnose van de ziekte en terugkeer van de ziekte als gevolg van chemoresistentie droegen bij aan een hoog sterftecijfer bij eierstokkanker 1,2. Er is gemeld dat anti-TMOD3b-autoAb in serum een gevoeligheid van ≥80% bleek te hebben bij de diagnose van rAFS stadium I tot II endometriose en echo-negatieve endometriose56. Deze studie toonde TMOD3 aan als een waardevolle marker voor het bepalen van platinaresistentie. Verdere klinische analyse is echter nodig om te bepalen of TMOD3 een waardevolle biomarker is in alle gevallen waarin platinaresistentie op verschillende tijdstippen of op verschillende niveaus verschijnt.
MicroRNA-gemedieerde posttranscriptionele regulatie is een belangrijk mechanisme voor de afwijkende expressie van chemoresistentie-geassocieerde genen34. In deze studie onthulde de mRNA-miRNA-analyse een mogelijke reden voor de hoge expressie van TMOD3 bij eierstokkanker en platina-resistente eierstokkanker. Het is aangetoond dat miR-133a de gevoeligheid van borstkanker voor doxorubicine verhoogde door de expressie van UCP-257 te downreguleren en de gevoeligheid van de menselijke larynxkankercellijn verhoogde door de expressie van ATP7B58 te downreguleren. In deze studie bleek miR-133a zich ook te richten op TMOD3 en was het significant negatief gecorreleerd met TMOD3 in de TCGA-eierstokkankermonsters. De expressie van miR-133a bij cisplatinegevoelige patiënten met eierstokkanker was ook hoger dan die van cisplatine-resistente patiënten. Dit impliceert dat miR-133a cisplatineresistentie bij eierstokkanker zou kunnen mediëren door TMOD3-expressie te beïnvloeden via posttranscriptionele regulatie. microRNA wordt om verschillende redenen beschouwd als een waardevolle factor bij de diagnose van tumoren. Ten eerste is het mogelijk om miRNA's te detecteren in lichaamsvloeistoffen zoals bloed, urine, colostrum en pleuravocht. Ten tweede zijn circulerende miRNA's zeer stabiel in lichaamsvloeistoffen en worden ze niet beïnvloed door endogene RNases. Ten derde dragen circulerende miRNA's pathologische signalen van verschillende tumorplaatsen of metastatische locaties, waardoor het probleem van tumorheterogeniteit wordt overwonnen59. Immunohistochemie in combinatie met plasma miR-133a kan bijvoorbeeld de specificiteit en gevoeligheid van een vroege diagnose van colorectale kanker aanzienlijk verbeteren60. Daarom verdient de diagnostische toepassing van miR133a bij platinaresistentie van eierstokkanker verder onderzoek.
Studies naar de rol van TMOD3 in immuuncellen zijn beperkt. Correlatieanalyse tussen TMOD3-expressie en infiltratie van immuuncellen bij eierstokkanker is niet eerder uitgevoerd. In deze studie vonden we dat TMOD3 positief gecorreleerd was met het aantal infiltrerende immuuncellen, zoals CD8+ T-cellen en dendritische cellen, in tumorweefsels. Eerdere rapporten van onze groep hebben aangetoond dat TMOD1 de rijping en immuunfunctie van dendritische cellen bevordert61, wat suggereert dat TMOD3 een vergelijkbare rol kan spelen bij eierstokkanker. Bovendien was TMOD3-expressie ook positief gecorreleerd met PD-L1-, PDCD1- en CTLA4-expressie in deze studie. Daarom, hoewel TMOD3 betrokken is bij de rekrutering van immuuncellen in tumorweefsel, kan het ook leiden tot verhoogde expressie van PD-L1, PDCD1 en CTLA4 op het oppervlak van tumorcellen, wat aangeeft dat hoge expressie van dit gen nog steeds een onderdrukkend effect heeft op tumorimmuunresponsen. Het is noodzakelijk om het mechanisme verder te onderzoeken en de haalbaarheid te onderzoeken van het implementeren van immunotherapie bij chemoresistente eierstokkanker door de expressie van TMOD3 te verstoren.
Om de mogelijkheid van TMOD3 als een potentieel therapeutisch doelwit bij chemoresistente eierstokkanker verder te onderzoeken, analyseerde deze studie de interactie tussen TMOD3 en bestaande geneesmiddelen en ontdekte dat verschillende geneesmiddelen de expressie van TMOD3 konden verminderen. Verdere experimentele ondersteuning, waaronder preklinische en prospectieve klinische studies, is echter nodig om te bepalen of patiënten met geneesmiddelresistente eierstokkanker met TMOD3-overexpressie baat kunnen hebben bij remming van TMOD3 of dat TMOD3 een veelbelovend therapeutisch doelwit is.
De huidige studie heeft verschillende beperkingen. Eerst werden de expressie en prognostische significantie van TMOD3 onderzocht via online openbare databases, en daaropvolgende analyses zijn nodig om deze resultaten verder te valideren in cellulaire en dierproeven. Ten tweede moeten in vitro en in vivo experimenten worden ontworpen om de gedetailleerde mechanismen op te helderen waarmee TMOD3 platinaresistentie bij eierstokkanker bemiddelt. Ten derde kan het beter zijn om de rol van TMOD3 in combinatie met single-cell sequencing te onderzoeken om heterogeniteit van kankercellen te voorkomen.
Samenvattend toonden deze resultaten aan dat TMOD3-expressie voor het eerst wordt opgereguleerd bij geneesmiddelresistente eierstokkanker. Deze studie onderzocht ook voorlopig de mogelijke mechanismen en het potentieel ervan als therapeutisch doelwit.
Openbaarmakingen
De auteurs melden geen belangenverstrengeling.
Dankbetuigingen
Dit werk werd ondersteund door subsidies van de National Natural Science Foundation of China (nr. 32171143, 31771280) en subsidies van de Natural Science Foundation van het provinciale ministerie van Onderwijs van Jiangsu (nr. 18KJD360003, 21KJD320004).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| cBioportal | Memorial Sloan Kettering Cancer Center | Correlatieanalyse van TMOD3 met gerichte miRNA's (https://www.cbioportal.org) | |
| CTD database | North Carolina State University | Om de relaties tussen chemie, genen, fenotype, ziekte en omgeving te analyseren (https://ctdbase.org/) | |
| Cytoscape | National Institute of General Medical Sciences of the National Institutes of Health | Netwerkgegevensintegratie, analyse en visualisatie (www.cytoscape.org/) | |
| DAVID | Frederick National Laboratory for Cancer Research | Een uitgebreide set functionele annotatietools voor onderzoekers om de biologische betekenis achter grote lijsten van genen te begrijpen(https://david.ncifcrf.gov/) | |
| GEO | NCBI | Genexpressieanalyse (https://www.ncbi.nlm.nih.gov/geo/) | |
| HPA | Knut & Alice Wallenberg foundation | De Human Protein Atlas (HPA) database hielp bij het analyseren van de verdeling van TMOD3 in verschillende immuuncellen (https://www.proteinatlas.org/) | |
| KM-plotter | Department of Bioinformatics of the Semmelweis University | Prognostische analyse (https://kmplot.com/analysis/) | |
| LinkedOmics | Baylor College of Medicine | Een platform voor biologen en clinici om toegang te krijgen tot, analyseren en vergelijken van kanker multi-omics gegevens binnen en tussen tumortypen (http://www.linkedomics.org/) | |
| PubChem database | U.S. National Library of Medicine | Om de definitieve moleculaire structuur van het medicijn te bepalen | |
| ROC Plotter | Department of Bioinformatics of the Semmelweis University | Validatie van het gen van belang als voorspellende marker (http://www.rocplot.org/) | |
| STRING | Swiss Institute of Bioinformatics | Coexpressie netwerken analyse(https://string-db.org) | |
| TargetScan | Whitehead Institute for Biomedical Research | Voorspelling van miRNA doelwitten (www.targetscan.org/) | |
| TIMER | Harvard University | Systematische analyse van immuuninfiltraten in verschillende kankersoorten (https://cistrome.shinyapps.io/timer/) | |
| TISIDB | The University of Hong Kong | Een webportaal voor tumor en immuunsysteem interactie(http://cis.hku.hk/TISIDB/) | |
| TNMplot | Department of Bioinformatics of the Semmelweis University | Genexpressieanalyse (https://www.tnmplot.com/) | |
| UALCAN | The University of ALabama at Birmingham | Genexpressieanalyse (http://ualcan.path.uab.edu) |
Referenties
- Gaona-Luviano, P., Medina-Gaona, L. A., Magaña-Pérez, K. Epidemiology of ovarian cancer. Chin Clin Oncol. 9 (4), 47(2020).
- Ahmed, N., et al. Ovarian cancer, cancer stem cells and current treatment strategies: A potential role of magmas in the current treatment methods. Cells. 9 (3), 719(2020).
- Song, M., Cui, M., Liu, K. Therapeutic strategies to overcome cisplatin resistance in ovarian cancer. Eur J Med Chem. 232, 114205(2022).
- Binju, M., et al. Mechanisms underlying acquired platinum resistance in high grade serous ovarian cancer - A mini review. Biochim Biophys Acta Gen Subj. 1863 (2), 371-378 (2019).
- El Bairi, K., Singh, S., Le Page, C. Revisiting platinum-resistant ovarian cancer: Advances in therapy, molecular biomarkers, and clinical outcomes. Semin Cancer Biol. 77, 1-2 (2021).
- Freimund, A. E., Beach, J. A., Christie, E. L., Bowtell, D. D. L. Mechanisms of drug resistance in high-grade serous ovarian cancer. Hematol Oncol Clin North Am. 32 (6), 983-996 (2018).
- Shimizu, T., Fujii, T., Sakai, H. The relationship between actin cytoskeleton and membrane transporters in cisplatin resistance of cancer cells. Front Cell Dev Biol. 8, 597835(2020).
- Sharma, S., et al. Correlative nanomechanical profiling with super-resolution f-actin imaging reveals novel insights into mechanisms of cisplatin resistance in ovarian cancer cells. Nanomedicine. 8 (5), 757-766 (2012).
- Sharma, S., Santiskulvong, C., Rao, J., Gimzewski, J. K., Dorigo, O. The role of rho GTPase in cell stiffness and cisplatin resistance in ovarian cancer cells. Integr Biol (Camb). 6 (6), 611-617 (2014).
- Rabelo-Fernández, R. J., et al. Reduced RBPMS levels promote cell proliferation and decrease cisplatin sensitivity in ovarian cancer cells. Int J Mol Sci. 23 (1), 535(2022).
- Seo, Y. H., Jo, Y. N., Oh, Y. J., Park, S. Nano-mechanical reinforcement in drug-resistant ovarian cancer cells. Biol Pharm Bull. 38 (3), 389-395 (2015).
- Parreno, J., Fowler, V. M. Multifunctional roles of tropomodulin-3 in regulating actin dynamics. Biophys Rev. 10 (6), 1605-1615 (2018).
- Sui, Z., et al. Regulation of actin polymerization by tropomodulin-3 controls megakaryocyte actin organization and platelet biogenesis. Blood. 126 (4), 520-530 (2015).
- Jin, C., Chen, Z., Shi, W., Lian, Q. Tropomodulin 3 promotes liver cancer progression by activating the MAPK/ERK signaling pathway. Oncol Rep. 41 (5), 3060-3068 (2019).
- Zheng, H., et al. Tropomodulin 3 modulates EGFR-PI3K-AKT signaling to drive hepatocellular carcinoma metastasis. Mol Carcinog. 58 (10), 1897-1907 (2019).
- Wang, H., Yang, G., Yu, Y., Gu, P. Microrna-490-3p suppresses the proliferation and invasion of hepatocellular carcinoma cells via targeting tmod3. Oncol Lett. 20 (4), 95(2020).
- Li, H., et al. Mir-145 modulates the radiosensitivity of non-small cell lung cancer cells by suppression of TMOD3. Carcinogenesis. 43 (3), 288-296 (2021).
- Zhan, X. H., et al. Loxl2 upregulates phosphorylation of ezrin to promote cytoskeletal reorganization and tumor cell invasion. Cancer Res. 79 (19), 4951-4964 (2019).
- Paul, D., et al. Global proteomic profiling identifies etoposide chemoresistance markers in non-small cell lung carcinoma. J Proteomics. 138, 95-105 (2016).
- Bartha, Á, Győrffy, B. TNMplot.Com: A web tool for the comparison of gene expression in normal, tumor and metastatic tissues. Int J Mol Sci. 22 (5), 2622(2021).
- Chandrashekar, D. S., et al. UALCAN: A portal for facilitating tumor subgroup gene expression and survival analyses. Neoplasia. 19 (8), 649-658 (2017).
- Gyorffy, B., Lánczky, A., Szállási, Z. Implementing an online tool for genome-wide validation of survival-associated biomarkers in ovarian cancer using microarray data from 1287 patients. Endocr Relat Cancer. 19 (2), 197-208 (2012).
- Fekete, J. T., et al. Predictive biomarkers of platinum and taxane resistance using the transcriptomic data of 1816 ovarian cancer patients. Gynecol Oncol. 156 (3), 654-661 (2020).
- Mcgeary, S. E., et al. The biochemical basis of microRNA targeting efficacy. Science. 366, 6472(2019).
- Gao, J., et al. Integrative analysis of complex cancer genomics and clinical profiles using the cBioPortal. Sci Signal. 6 (269), pl1(2013).
- Shannon, P., et al. Cytoscape: A software environment for integrated models of biomolecular interaction networks. Genome Res. 13 (11), 2498-2504 (2003).
- Vasaikar, S. V., Straub, P., Wang, J., Zhang, B. Linkedomics: Analyzing multi-omics data within and across 32 cancer types. Nucleic Acids Res. 46 (D1), D956-D963 (2018).
- Li, T., et al. Timer: A web server for comprehensive analysis of tumor-infiltrating immune cells. Cancer Res. 77 (21), e108-e110 (2017).
- Ru, B., et al. TISIDB: An integrated repository portal for tumor-immune system interactions. Bioinformatics. 35 (20), 4200-4202 (2019).
- Szklarczyk, D., et al. String v11: Protein-protein association networks with increased coverage, supporting functional discovery in genome-wide experimental datasets. Nucleic Acids Res. 47 (D1), D607-D613 (2019).
- Sherman, B. T., et al. A web server for functional enrichment analysis and functional annotation of gene lists (2021 update). Nucleic Acids Res. 50 (W1), W216-W221 (2022).
- Grondin, C. J., et al. Predicting molecular mechanisms, pathways, and health outcomes induced by Juul e-cigarette aerosol chemicals using the comparative toxicogenomics database. Curr Res Toxicol. 2, 272-281 (2021).
- Wang, X., et al. Hif-1α is a rational target for future ovarian cancer therapies. Front Oncol. 11, 785111(2021).
- Liu, X., et al. Downregulation of nek11 is associated with drug resistance in ovarian cancer. Int J Oncol. 45 (3), 1266-1274 (2014).
- Tang, J., et al. Inhibition of lc3b can increase the chemosensitivity of ovarian cancer cells. Cancer Cell Int. 19, 199(2019).
- Wang, T., et al. Mir-211 facilitates platinum chemosensitivity by blocking the DNA damage response (DDR) in ovarian cancer. Cell Death Dis. 10 (7), 495(2019).
- Tian, J., Xu, Y. Y., Li, L., Hao, Q. Mir-490-3p sensitizes ovarian cancer cells to cisplatin by directly targeting abcc2. Am J Transl Res. 9 (3), 1127-1138 (2017).
- Liu, L., et al. Mir-101 regulates expression of ezh2 and contributes to progression of and cisplatin resistance in epithelial ovarian cancer. Tumour Biol. 35 (12), 12619-12626 (2014).
- Li, Z., et al. Exosomes secreted by chemoresistant ovarian cancer cells promote angiogenesis. J Ovarian Res. 14 (1), 7(2021).
- Xue, B., Li, S., Jin, X., Liu, L. Bioinformatics analysis of mrna and miRNA microarray to identify the key miRNA-mRNA pairs in cisplatin-resistant ovarian cancer. BMC Cancer. 21 (1), 452(2021).
- Zong, C., Wang, J., Shi, T. M. Microrna 130b enhances drug resistance in human ovarian cancer cells. Tumour Biol. 35 (12), 12151-12156 (2014).
- Yu, P. N., et al. Downregulation of mir-29 contributes to cisplatin resistance of ovarian cancer cells. Int J Cancer. 134 (3), 542-551 (2014).
- Sheng, Q., et al. Cisplatin-mediated down-regulation of mir-145 contributes to up-regulation of pd-l1 via the c-myc transcription factor in cisplatin-resistant ovarian carcinoma cells. Clin Exp Immunol. 200 (1), 45-52 (2020).
- Luo, Y., Gui, R. Circulating exosomal circfoxp1 confers cisplatin resistance in epithelial ovarian cancer cells. J Gynecol Oncol. 31 (5), e75(2020).
- Liu, J., et al. Mir-200b and mir-200c co-contribute to the cisplatin sensitivity of ovarian cancer cells by targeting DNA methyltransferases. Oncol Lett. 17 (2), 1453-1460 (2019).
- Li, T., et al. Exosomal transfer of mir-429 confers chemoresistance in epithelial ovarian cancer. Am J Cancer Res. 11 (5), 2124-2141 (2021).
- Chen, S., Jiao, J. W., Sun, K. X., Zong, Z. H., Zhao, Y. Microrna-133b targets glutathione s-transferase π expression to increase ovarian cancer cell sensitivity to chemotherapy drugs. Drug Des Devel Ther. 9, 5225-5235 (2015).
- Zhou, Y., et al. Mir-133a targets yes1 to reduce cisplatin resistance in ovarian cancer by regulating cell autophagy. Cancer Cell Int. 22 (1), 15(2022).
- Marth, C., Wieser, V., Tsibulak, I., Zeimet, A. G. Immunotherapy in ovarian cancer: Fake news or the real deal. Int J Gynecol Cancer. 29 (1), 201-211 (2019).
- Wu, A., et al. Integrated analysis of prognostic and immune-associated integrin family in ovarian cancer. Front Genet. 11, 705(2020).
- Lampert, E. J., et al. Combination of PARP inhibitor Olaparib, and PD-l1 inhibitor Durvalumab, in recurrent ovarian cancer: A proof-of-concept phase II study. Clin Cancer Res. 26 (16), 4268-4279 (2020).
- Fife, C. M., Mccarroll, J. A., Kavallaris, M. Movers and shakers: Cell cytoskeleton in cancer metastasis. Br J Pharmacol. 171 (24), 5507-5523 (2014).
- Yao, W., Chu, X., Sung, L. A. Cell type-restricted expression of erythrocyte tropomodulin isoform41 in exon 1 knockout/lacz knock-in heterozygous mice. Gene Expr Patterns. 17 (1), 45-55 (2015).
- Omotade, O. F., et al. Tropomodulin isoform-specific regulation of dendrite development and synapse formation. J Neurosci. 38 (48), 10271-10285 (2018).
- Zhang, Q., Zhong, C., Duan, S. The tumorigenic function of linc00858 in cancer. Biomed Pharmacother. 143, 112235(2021).
- Greenbaum, H., Galper, B. L., Decter, D. H., Eisenberg, V. H. Endometriosis and autoimmunity: Can autoantibodies be used as a non-invasive early diagnostic tool. Autoimmun Rev. 20 (5), 102795(2021).
- Yuan, Y., Yao, Y. F., Hu, S. N., Gao, J., Zhang, L. L. Mir-133a is functionally involved in doxorubicin-resistance in breast cancer cells mcf-7 via its regulation of the expression of uncoupling protein 2. PLoS One. 10 (6), e0129843(2015).
- Wang, X., Zhu, W., Zhao, X., Wang, P. Mir-133a enhances the sensitivity of hep-2 cells and vincristine-resistant hep-2v cells to cisplatin by downregulating atp7b expression. Int J Mol Med. 37 (6), 1636-1642 (2016).
- Han, Y., Li, H. MiRNAs as biomarkers and for the early detection of non-small cell lung cancer (SCLC). J Thorac Dis. 10 (5), 3119-3131 (2018).
- Luo, X., Wu, Y., Ji, M., Zhang, S. Combined plasma microRNA and fecal occult blood tests in early detection of colorectal cancer. Clin Lab. 65 (5), (2019).
- Liu, X., et al. Tropomodulin1 expression increases upon maturation in dendritic cells and promotes their maturation and immune functions. Front Immunol. 11, 587441(2020).
Herprints en machtigingen
