In dit artikel wordt beschreven hoe u een geoptimaliseerd in situ protocol voor pezen kunt uitvoeren. Deze methode bespreekt weefselpreparatie, sectiepermeabilisatie, sondeontwerp en signaalversterkingsmethoden.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Ruimtelijke analyse met hoge resolutie van genexpressieniveaus in pezen
In dit artikel
Samenvatting
Samenvatting
In de afgelopen jaren zijn er veel protocollen ontwikkeld voor transcriptomics met hoge resolutie op veel verschillende medische en biologische gebieden. Matrixrijke weefsels, en in het bijzonder pezen, bleven echter achter vanwege hun lage celaantal, lage RNA-hoeveelheid per cel en hoge matrixinhoud, waardoor ze moeilijk te analyseren waren. Een van de recente en belangrijkste single-cell tools is de ruimtelijke analyse van genexpressieniveaus in pezen. Deze ruimtelijke RNA-instrumenten zijn met name van groot belang in pezen om specifieke cellen van nieuwe en onbekende populaties te lokaliseren, eencellige RNA-seq-resultaten te valideren en histologische context toe te voegen aan de eencellige RNA-seq-gegevens. Deze nieuwe methoden zullen de analyse van RNA in cellen met een uitzonderlijke gevoeligheid en de detectie van enkelvoudige molecuul RNA-doelen op eencellig niveau mogelijk maken, wat zal helpen om pezen moleculair te karakteriseren en peesonderzoek te bevorderen.
In dit methodedocument zullen we ons concentreren op de beschikbare methoden om ruimtelijke genexpressieniveaus op histologische secties te analyseren door gebruik te maken van nieuwe in situ hybridisatietests om doel-RNA in intacte cellen op eencellig niveau te detecteren. Eerst zullen we ons concentreren op hoe het peesweefsel kan worden voorbereid op de verschillende beschikbare testen en hoe doelspecifieke signalen kunnen worden versterkt zonder achtergrondruis maar met hoge gevoeligheid en hoge specificiteit. Vervolgens beschrijft het artikel specifieke permeabilisatiemethoden, de verschillende sondeontwerpen en de momenteel beschikbare signaalversterkingsstrategieën. Deze unieke methoden voor het analyseren van transcriptieniveaus van verschillende genen in eencellige resolutie zullen de identificatie en karakterisering van de peesweefselcellen mogelijk maken in jonge en oude populaties van verschillende diermodellen en menselijke peesweefsels. Deze methode helpt ook bij het analyseren van genexpressieniveaus in andere matrixrijke weefsels zoals botten, kraakbeen en ligamenten.
Inleiding
Pezen zijn bindweefsels die de krachtoverbrenging tussen spier en bot mogelijk maken1. Qua ontwikkeling zijn axiale tenocyten afgeleid van mesenchymale cellen in het sclerotoom van desomieten 2; ledemaatpezen zijn afkomstig van het mesoderm van de laterale plaat; en craniale pezen komen voort uit de craniale neurale kamlijn 3,4. Pees kan worden gekenmerkt door de expressie van de scleraxis transcriptiefactor5, hoewel verschillende markers ook een sleutelrol spelen bij de ontwikkeling van pees, waaronder tenomoduline, hanenkam en vroege groeirespons 1/2 6,7,8,9.
Ondanks de weinige bekende markers van de pees, blijft een meer diepgaande karakterisering over het algemeen een uitdaging omdat de pees cellen bevat die zich uitstrekken over een gradiënt van biomechanische eigenschappen. Van de myotendineuze overgang, het middenlichaam van de pees en de meer verkalkte enthesis, bevinden de peescellen zich in extracellulaire matrices die variëren in trekeigenschappen. Omdat de pees bestand moet zijn tegen de trekspanning die wordt veroorzaakt door het verschil in mechanische sterkte tussen zacht en hard weefsel, is de ruimtelijke organisatie van de cellen in de pees bijzonder belangrijk voor zijn functie. Er is echter weinig bekend over deze peessubpopulaties.
Veel ruimtelijke transcriptomische instrumenten met hoge resolutie kunnen worden gebruikt om te beginnen met het ophelderen van celsubpopulaties, inclusief maar niet beperkt tot eencellig RNA Seq of in situ hybridisatie. Hoewel deze ruimtelijke profileringstesten helpen bij het blootleggen van RNA-expressie in weefsel na microdissectie of sectie, kunnen deze methoden een uitdaging zijn wanneer ze worden uitgevoerd op peesweefsel. Pezen zijn matrixrijke weefsels die voor bijna 86% uit collageen bestaan bij droogmassa10, waardoor het een uitdaging is om de cellen te extraheren voor sequencing. Vanwege zowel de complicaties bij het isoleren van cellen uit de matrix, de hypocellulaire aard van de pees11 als het relatief lage RNA-aantal, is de pees een moeilijk te analyseren weefsel.
In dit artikel presenteren we een methode om nieuwe in situ hybridisatietesten te optimaliseren om ze te benutten voor pezen door methoden voor weefselpreparatie, permeabilisatie en sondeontwerp te bieden. In combinatie met bestaande sequencingtechnologieën kan dit onderzoekers helpen om peessubpopulaties van zich ontwikkelende, volwassen of geblesseerde pezen ruimtelijk te karakteriseren met een verhoogde testgevoeligheid en specificiteit.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Alle dierproeven zijn uitgevoerd in overeenstemming met de richtlijnen van de Institutional Animal Care and Use Committee (IACUC) en AAALAC. Experimenten werden uitgevoerd onder goedgekeurd protocol #2013N000062 in het Massachusetts General Hospital. In deze studie werden C57BL/J6-muizen (5 weken oud en P0) gebruikt. Zie de Materiaaltabel voor details met betrekking tot alle materialen, reagentia en instrumenten die in dit protocol worden gebruikt.
1. Monstervoorbereiding en fixatie
- Euthanaseer muizen in een CO2 -kamer, gevolgd door cervicale dislocatie als secundaire methode van euthanasie. Gebruik vervolgens een schaar om de achterpoten van de muis langs het heupgewricht12 af te knippen. Dompel in een scintillatieflacon de achterpoot van de muis onder in voldoende 4% paraformaldehyde (PFA)-oplossing om het monster volledig te bedekken en fixeer het weefsel gedurende 24 uur.
OPMERKING: In plaats van 4% PFA kan ook 10% formaline worden gebruikt voor fixatie. Na fixatie kan het monster worden opgeslagen in fosfaatgebufferde zoutoplossing (PBS) tot verdere verwerking. Door de hele achterpoot te fixeren, zijn we in staat om de spanning op de pees te behouden en hebben we de mogelijkheid om de enthesie, het middenlichaam van de pees of de myotendineuze overgang te onderzoeken. - Nadat u de PFA uit de scintillatieflacon hebt verwijderd, wast u het monster 3 x 10 minuten met 1x PBS door voldoende PBS toe te voegen om het monster te bedekken. Dompel vervolgens de achterpoten onder in 0,5 M EDTA bij 4 °C met agitatie gedurende 1-2 weken, vervang ze om de 2-3 dagen door verse EDTA.
- Na het verwijderen van de EDTA, wast u het monster 3 x 10 minuten met 1x PBS, dehydrateert u de monsters in 70% EtOH en bedrijk u ze in paraffine in de gewenste richting. Gebruik conventionele FFPE-sectietechnieken om het weefsel met een dikte van 3 μm te snijden en de secties over te brengen op een behandeld, geladen microscoopglaasje (zie materiaaltabel)13.
OPMERKING: Secties kunnen worden opgeslagen in 4 °C voordat u overgaat tot de volgende stappen. - Deparaffinisatie
- Bak de glaasjes 1 uur op een hete plaat op 60 °C en laat de glaasjes vervolgens op kamertemperatuur (RT) komen. Om de paraffinewas van de objectglaasjes te verwijderen, plaatst u de dia's op een glaasjesrek en laat u ze in een kleurschaaltje gevuld met xyleen zakken. Herhaal in vers xyleen gedurende 3 x 5 min.
LET OP: Xyleen is gevaarlijk; Voorzichtig behandelen. - Om de secties te rehydrateren, dompelt u de objectglaasjes 5 minuten per wasbeurt onder in het volgende, allemaal op RT: was 2x in 100% EtOH, 1x in 75% EtOH verdund in dH2O, 1x in 50% EtOH verdund in PBS, 1x in 25% EtOH verdund in PBS en 2x in PBS.
OPMERKING: Alle rehydratatiestappen worden uitgevoerd met de dia's op een glaasjesrek en met de verschillende EtOH-oplossingen in kleurschalen.
- Bak de glaasjes 1 uur op een hete plaat op 60 °C en laat de glaasjes vervolgens op kamertemperatuur (RT) komen. Om de paraffinewas van de objectglaasjes te verwijderen, plaatst u de dia's op een glaasjesrek en laat u ze in een kleurschaaltje gevuld met xyleen zakken. Herhaal in vers xyleen gedurende 3 x 5 min.
2. Aanpassing van RNAscope (gecommercialiseerd ISH) protocol14
- Oplossingen en sondes voorbereiden
- Bereid de TEG-oplossing voor de voorbehandeling van doorgesneden monsters door 25 mM Tris-HCl bij pH 8, 10 mM EDTA en 50 mM glucose te combineren. Maak een voldoende volume voor alle te behandelen monsters of bereid overtollig materiaal; filter-steriliseren en bewaren bij RT; Meng de oplossing goed voordat u deze gebruikt.
- Bereid voldoende 1x wasbuffer voor (zie de materiaaltabel) voor alle wasbeurten en bewaar deze bij RT.
- Verwarm in een waterbad of broedmachine van 40 °C de betreffende sondes gedurende 10 minuten. Bereid vervolgens de sondes voor volgens het ISH-protocol14.
- Voorbehandeling van monsters
- In plaats van de aanbevolen voorbehandelingsoplossing te gebruiken, dompelt u de objectglaasjes onder in een kleurschaaltje met TEG-buffer gedurende 4 uur bij 60 °C.
OPMERKING: De TEG-bufferincubatie kan tot 6 uur worden verlengd als het weefsel bijzonder dicht is of als het ophalen van het antigeen van het RNA-bindingsmotief van belang een uitdaging is. In dat geval kan hier een stoppunt worden toegevoegd, de dia's worden gedroogd en een nacht in een koelkast van 4 °C worden bewaard. - Haal de monsters uit de buffer en laat ze drogen. Teken vervolgens met een hydrofobe barrièrepen rond de monsters, dompel ze onder in een ander kleurschaaltje met protease IV en broed ze 45 minuten in een oven bij 40 °C uit.
OPMERKING: We raden protease IV aan voor volwassen muizen. Als je jongere muizen gebruikt, zoals P0, raden we aan om gedurende 30 minuten een milder enzym, zoals protease III, te gebruiken. Let bij het oplossen van problemen voor verschillende leeftijden op de integriteit van de pees en controleer op degradatie. Als het weefsel dissocieert of degradeert, verkort dan de incubatietijd of verander het gebruikte protease. - Was de monsters opnieuw gedurende 30 minuten in de TEG-buffer en hybridiseer de sondes vervolgens volgens het ISH-protocol14.
- Voeg 50-100 μL montagereagens toe aan de bovenkant van het monster. Leg een dekglaasje op de monsters voor microscopie. Gebruik bij het weergeven een hoge vergroting (40x objectief of hoger) om het signaal te bekijken.
- In plaats van de aanbevolen voorbehandelingsoplossing te gebruiken, dompelt u de objectglaasjes onder in een kleurschaaltje met TEG-buffer gedurende 4 uur bij 60 °C.
3. Aanpassing HCR ISH protocol15
- Nafixatie
- Bereid 4% PFA (in PBS), PBT-oplossing (0,1% Tween-20 in PBS) en proteïnase K in PBS (voorraadconcentratie van 10 mg/ml, eindconcentratie van 5 μg/ml).
- Om met de eerste stap na het fixeren te beginnen, dompelt u de objectglaasjes gedurende 5 minuten onder in een kleurschaaltje met 4% PFA; verwijder vervolgens de 4% PFA-oplossing en bewaar deze voor gebruik in latere stappen. Spoel de objectglaasjes 2 x 5 minuten af in PBT-oplossing en verwijder de PBT-oplossing. Plaats de objectglaasjes gedurende 5 minuten in een kleurschaaltje met proteïnase K-oplossing (5 μg/ml) en spoel ze 2 x 5 minuten af in de PBT-oplossing.
- Begin met de tweede stap na de fixatie en dompel de dia's 5 minuten onder in de PFA van 4%.
OPMERKING: Dit is dezelfde 4% PFA die is bespaard in stap 3.1.2. - Spoel de glaasjes 3 x 5 minuten af in de PBT-oplossing.
OPMERKING: Alle stappen na de fixatie worden uitgevoerd met de dia's op een glaasjesrek en in kleurschalen die de respectievelijke oplossingen bevatten.
- Acetylering
- Bereid de acetyleringsoplossing voor met 625 μl azijnzuuranhydride, 3,3 ml 1 M triethanolamine (TEA) buffer en 246 ml ddH2O. Zorg ervoor dat u goed mengt en onmiddellijk na bereiding gebruikt.
- Plaats de objectglaasjes 10 minuten in de acetyleringsoplossing en spoel vervolgens 3 x 5 minuten in PBT-oplossing. Spoel de dia's af in ddH2O en laat ze 30 minuten aan de lucht drogen. Teken vervolgens rond de monsters met een hydrofobe barrièrepen.
OPMERKING: Alle acetyleringsstappen worden uitgevoerd met de objectglaasjes op een glaasjesrek en in kleurschaaltjes die de respectievelijke oplossingen bevatten
- Kruising
- Verwarm de hybridisatiebuffer voor op 37 °C en verwarm een bevochtigde kamer voor op 37 °C.
LET OP: De buffer bevat formamide, een gevaarlijk materiaal. Als de objectglaasjes niet voldoende droog zijn, dep de randen dan af met een laboratoriumdoekje om overtollig dH2O te verwijderen. - Bereid sondeoplossingen voor door 0.4 pmol van elk sondemengsel toe te voegen aan 100 μL hybridisatiebuffer.
NOTITIE: Als u dHCR-beeldvorming gebruikt, gebruik dan een hogere concentratie sonde om de efficiëntie van de sondehybridisatie te verbeteren. - Bereid 4 L natriumchloride-natriumcitraatbuffer (20x SSC) door 3 M NaCl (701,1 g NaCl in een eindvolume van 4 L) en 0,3 M Na3CH6H5O7•2H2O (352,8 g) te combineren en vervolgens de uiteindelijke pH op 7 te zetten door HCl of 10 N NaOH toe te voegen. Voeg voldoende H2O toe om 4 L te bereiken. Bereid 5x SSCT voor door 20x SSC te verdunnen tot 5x en voeg voldoende 10% Tween 20 toe zodat het 0,1% van het totale volume is.
- Voeg 200 μL hybridisatiebuffer toe aan het monster, plaats de objectglaasjes in een bevochtigde kamer en laat de objectglaasjes 10 minuten incuberen. Verwijder de hybridisatieoplossing en laat de overtollige buffer op het glaasje leeglopen door de randen af te deppen met een laboratoriumdoekje.
- Voeg 100 μL van de bereide sondeoplossing toe aan het monster en plaats een dekglaasje op het monster. Incubeer in een oven een nacht of gedurende ongeveer 12-16 uur in een kamer die is bevochtigd met een oplossing die 5x SSC en 50% formamide bevat. Stel de temperatuur in op 37 °C.
OPMERKING: Aangezien de incubatie 's nachts plaatsvindt, is de toevoeging van het dekglaasje bedoeld om verdamping te minimaliseren. - Laat een hoeveelheid van 5x SSCT-oplossing in een waterbad van 37 °C en een tweede hoeveelheid bij RT staan. Anticipeer op de benodigde hoeveelheden van deze aliquots op basis van het monsternummer en het aantal wasbeurten in de volgende stap.
- Verwarm de hybridisatiebuffer voor op 37 °C en verwarm een bevochtigde kamer voor op 37 °C.
- Was
- Gebruik de eerder voorverwarmde 5x SSCT-oplossing om 75% wasbuffer/25% 5x SSCT, 50% wasbuffer/50% 5x SSCT en 25% wasbuffer/75% 5x SSCT-oplossingen te bereiden.
- Om overtollige sondes te verwijderen, dompelt u de dia's 15 minuten per wasbeurt op 37 °C in serie onder in 75% wasbuffer/25% 5x SSCT, 50% wasbuffer/50% 5x SSCT en 25% wasbuffer/75% 5x SSCT. Laat de dekglaasjes van de monsters afdrijven.
- Incubeer de dia's 2 x 15 minuten met 100% 5x SSCT en dompel ze vervolgens 5 minuten onder in 5x SSCT bij RT.
OPMERKING: De wasstappen kunnen worden uitgevoerd met de dia's op een glaasjesrek en in kleurschalen die de respectievelijke oplossingen bevatten of met de oplossingen toegevoegd als druppels.
- Amplificatie
- Bereid 6 pmol haarspeld h1 en 6 pmol haarspeld h2 voor door 2 μL van een 3 μM bouillon snel af te koelen (verwarm op 95 °C gedurende 90 s en koel af tot RT). Bescherm de haarspelden tijdens dit proces tegen licht.
LET OP: HCR-haarspelden h1 en h2 worden geleverd in een haarspeldopslagbuffer en zijn klaar voor snelle afkoeling. Klik koele h1 en h2 haarspelden in aparte buizen. - Droog de objectglaasjes af door de randen af te deppen met een laboratoriumdoekje. Voeg vervolgens 200 μL amplificatiebuffer toe aan het monster en plaats het 30 minuten in een bevochtigde kamer bij RT. Bereid het haarspeldmengsel voor door snapcooled h1 haarspelden en snapcooled h2 haarspelden toe te voegen aan 100 μL versterkingsbuffer bij RT.
- Verwijder de versterkingsbuffer en laat de overtollige vloeistof op het glaasje weglopen door de randen af te deppen met een laboratoriumdoekje. Voeg 100 μL van het eerder bereide haarspeldmengsel toe en plaats parafilm op het monster. Incubeer de objectglaasjes minimaal 4 uur of een nacht in een donkere, bevochtigde kamer bij RT.
- Om overtollige haarspelden te verwijderen, dompelt u de dia's onder in 5x SSCT in een kleurschaaltje en incubeert u ze 30 minuten bij RT. Herhaal de wash in fresh 5x SSCT gedurende 30 minuten en een derde keer gedurende 5 min.
- Droog de objectglaasjes door de randen te deppen met een laboratoriumdoekje en voeg 50-100 μL montagereagens toe aan het monster. Leg een dekglaasje op de monsters voor microscopie. Gebruik bij het weergeven een hoge vergroting (40x objectief of hoger) om het signaal te bekijken.
- Bereid 6 pmol haarspeld h1 en 6 pmol haarspeld h2 voor door 2 μL van een 3 μM bouillon snel af te koelen (verwarm op 95 °C gedurende 90 s en koel af tot RT). Bescherm de haarspelden tijdens dit proces tegen licht.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
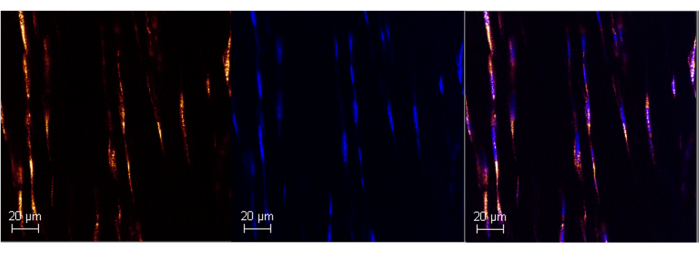
Figuur 1: Poly A RNA-expressie in de achillespees van volwassen muizen met behulp van RNAScope. Representatief beeld van succesvolle Poly A-labeling in de achillespees van de muis (linkerpaneel) met behulp van de gecommercialiseerde ISH-test. Colokalisatie met DAPI bevestigt de specificiteit van de sonde (middelste...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
In dit artikel beschrijven we wijzigingen die zijn aangebracht om bestaande ISH-tools te benutten, zodat ze met een hoge mate van specificiteit en gevoeligheid in peesweefsel kunnen worden gebruikt. Aangezien de pees een weefsel met een hoge matrixdichtheid is, moeten protocolaanpassingen vaak worden gemaakt om een vergelijkbare mate van sondepenetratie en specificiteit te bereiken. Deze specifieke permeabilisatiemethoden en signaalversterkingsstrategieën van het peesweefsel zijn een int...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben geen belangenconflicten te onthullen.
Dankbetuigingen
De auteurs bedanken Jenna Galloway en de leden van Galloway Lab voor hun steun en aanmoediging bij de ontwikkeling en probleemoplossing van deze protocollen.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 1 M triethanolamine buffer | |||
| 10% Formalin oplossing | |||
| 10% Tween-20 | |||
| 20x Saline Sodium Citraat buffer | |||
| 4% PFA | |||
| ACD RNAscope Fluorescent Multiplex Fluorescent Reagent Kit V2 | ACD | 323100 | |
| Acetic Anhydride | |||
| Axio Imager Microscoop | ZEISS | ||
| C57BL/J6 muizen | JAX ID: 000664 | ||
| Dekglasjes | Fisher | 12-541-042 | |
| ddH2O | |||
| ETDA | Thermofisher | AM9262 | |
| EtOH | |||
| Glucose | VWR Chemicals BDH | BDH9230-500G | |
| HCR RNA-FISH Bundel | Molecular Instruments Inc. | ||
| HybEZ II Hybridisatie Systeem | ACD | ||
| Immedge Barrier Pen | Vector Laboratories | H4000 | |
| Leica SPE Confocal Microscoop | Leica | ||
| Parafilm | Fisher | ||
| Fosfaat-gebufferde zoutoplossing (PBS, 1x) | Invitrogen | AM9625 | Verdun 10x PBS in milli-Q water om 1x oplossing te krijgen |
| Protease IV | |||
| Proteinase K | Roche | 3115836001 | |
| RNAscope H2O2 en Protease Reagents | ACD | PN 322381 | Inbegrepen in ACD RNAscope Fluorescent Multiplex Fluorescent Reagent Kit V3 |
| RNAscope Multiplex Fluorescent Detectie Kit | ACD | PN 323110 | Inbegrepen in ACD RNAscope Fluorescent Multiplex Fluorescent Reagent Kit V2 |
| RNAscope Target Retrieval reagenten | ACD | 322000 | Inbegrepen in ACD RNAscope Fluorescent Multiplex Fluorescent Reagent Kit V4 |
| RNAscope Was Buffer | ACD | PN 310091 | Inbegrepen in ACD RNAscope Fluorescent Multiplex Fluorescent Reagent Kit V5 |
| RNAscope Probe Verdunningsvloeistof | ACD | 300041 | |
| Glijplaatje | StatLab | 4465A | |
| Vlekschaal met Deksel | StatLab | LWS20WH | |
| Superfrost Plus Microscoopglaasjes | Fisher | 1255015 | behandelde, geladen glazen |
| Tris-HCl | |||
| Xyleen | Sigma-Aldrich | 534056-4L |
Referenties
- Sharma, P., Maffulli, N. Tendon injury and tendinopathy: healing and repair. Journal of Bone and Joint Surgery. 87 (1), 187-202 (2005).
- Brent, A. E., Schweitzer, R., Tabin, C. J. A somitic compartment of tendon progenitors. Cell. 113 (2), 235-248 (2003).
- Noden, D. M. The role of the neural crest in patterning of avian cranial skeletal, connective, and muscle tissues. Developmental Biology. 96 (1), 144-165 (1983).
- Chen, J. W., Galloway, J. L. The development of zebrafish tendon and ligament progenitors. Development. 141 (10), 2035-2045 (2014).
- Schweitzer, R., et al. Analysis of the tendon cell fate using Scleraxis, a specific marker for tendons and ligaments. Development. 128 (19), 3855-3866 (2001).
- Tsai, S., Nödl, M., Galloway, J. Bringing tendon biology to heel: Leveraging mechanisms of tendon development, healing, and regeneration to advance therapeutic strategies. Developmental Dynamics. 250 (3), 393-413 (2021).
- Kannus, P., et al. Location and distribution of non-collagenous matrix proteins in musculoskeletal tissues of rat. The Histochemical Journal. 30 (11), 799-810 (1998).
- Kannus, P. Structure of the tendon connective tissue. Scandinavian Journal of Medicine & Science in Sports. 10 (6), 312-320 (2000).
- Thorpe, C. T., Birch, H. L., Clegg, P. D., Screen, H. R. C. The role of the non-collagenous matrix in tendon function. International Journal of Experimental Pathology. 94 (4), 248-259 (2013).
- Lin, T. W., Cardenas, L., Soslowsky, L. J. Biomechanics of tendon injury and repair. Journal of Biomechanics. 37 (6), 865-877 (2004).
- Grinstein, M., et al. A distinct transition from cell growth to physiological homeostasis in the tendon. eLife. 8, e48689(2019).
- Villaseñor, S., Grinstein, M. Two-photon microscopy for the study of tendons. Journal of Visualized Experiments. , e65853(2023).
- Qin, C., et al. The cutting and floating method for paraffin-embedded tissue for sectioning. Journal of Visualized Experiments. (139), e58288(2018).
- Wang, F., et al. RNAscope®: A Novel In Situ RNA Analysis Platform for Formalin-Fixed Paraffin-Embedded Tissues. Journal of Molecular Diagnostics. 14 (1), 22-29 (2012).
- Choi, H. M. T., et al. Third-generation situ hybridization chain reaction: multiplexed, quantitative, sensitive, versatile, robust. Development. 145 (12), 165753(2018).
- Jackson, D. J., Herlitze, I., Hohagen, J. A whole mount in situ hybridization method for the gastropod mollusc Lymnaea stagnalis. Journal of Visualized Experiments. (109), e53968(2016).
- Young, A. P., Jackson, D. J., Wyeth, R. C. A technical review and guide to RNA fluorescence in situ hybridization. PeerJ. 8, e8806(2020).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar