Het protocol beschrijft een efficiënte en betrouwbare methode voor het kwantificeren van de poly(A)-lengte van het gen van belang uit het Drosophila-zenuwstelsel , die gemakkelijk kan worden aangepast aan weefsels of celtypen van andere soorten.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Meting van Poly A-staartlengte van Drosophila-larvehersenen en cellijn
In dit artikel
Samenvatting
Samenvatting
Polyadenylering is een cruciale posttranscriptionele modificatie die poly(A)-staarten toevoegt aan het 3'-uiteinde van mRNA-moleculen. De lengte van de poly(A)-staart wordt strak gereguleerd door cellulaire processen. Ontregeling van mRNA-polyadenylering is in verband gebracht met abnormale genexpressie en verschillende ziekten, waaronder kanker, neurologische aandoeningen en ontwikkelingsafwijkingen. Daarom is het begrijpen van de dynamiek van polyadenylatie van vitaal belang voor het ontrafelen van de complexiteit van mRNA-verwerking en posttranscriptionele genregulatie.
Dit artikel presenteert een methode voor het meten van poly(A)-staartlengtes in RNA-monsters geïsoleerd uit Drosophila-larvale hersenen en Drosophila Schneider S2-cellen. We gebruikten de guanosine/inosine (G/I) tailing-benadering, waarbij G/I-residuen enzymatisch worden toegevoegd aan het 3'-uiteinde van mRNA met behulp van gistpoly(A)-polymerase. Deze modificatie beschermt het 3'-uiteinde van het RNA tegen enzymatische afbraak. De beschermde poly(A)-staarten over de volledige lengte worden vervolgens omgekeerd getranscribeerd met behulp van een universele antisense-primer. Vervolgens wordt PCR-amplificatie uitgevoerd met behulp van een genspecifieke oligo die zich richt op het gen van belang, samen met een universele sequentie-oligo die wordt gebruikt voor reverse transcriptie.
Dit genereert PCR-producten die de poly(A)-staarten van het gen in kwestie omvatten. Aangezien polyadenylering geen uniforme modificatie is en resulteert in staarten van verschillende lengtes, vertonen de PCR-producten een reeks maten, wat leidt tot een uitstrijkpatroon op agarosegel. Ten slotte worden de PCR-producten onderworpen aan capillaire gelelektroforese met hoge resolutie, gevolgd door kwantificering met behulp van de afmetingen van de poly(A) PCR-producten en het genspecifieke PCR-product. Deze techniek biedt een eenvoudig en betrouwbaar hulpmiddel voor het analyseren van poly(A)-staartlengtes, waardoor we diepere inzichten kunnen krijgen in de ingewikkelde mechanismen die de mRNA-regulatie regelen.
Inleiding
De meeste eukaryote mRNA's worden posttranscriptioneel gepolyadenyleerd aan hun 3′ eindpunt in de kern door toevoeging van niet-getemplatede adenosines door canonieke poly(A)-polymerasen. Een intacte poly(A)-staart is cruciaal gedurende de hele levenscyclus van mRNA, omdat het essentieel is voor de nucleaire export van mRNA1, de interactie met poly(A)-bindende eiwitten vergemakkelijkt om de translationele efficiëntie te verbeteren2 en weerstand biedt tegen afbraak3. In bepaalde gevallen kan de poly(A)-staart ook extensie ondergaan in het cytoplasma, gefaciliteerd door niet-canonieke poly(A)-polymerasen4. In het cytoplasma verandert de lengte van de poly (A) staart dynamisch en beïnvloedt de levensduur van het mRNA-molecuul. Van talrijke polymerasen en deadenylasen is bekend dat ze de staartlengte 5,6,7 moduleren. De verkorting van poly(A)-staarten correleert bijvoorbeeld met translatie-repressie, terwijl de verlenging van poly(A)-staarten de translatie verbetert 8,9.
Accumulerende genomische studies hebben de fundamentele betekenis van de poly(A)-staartlengte aangetoond in verschillende facetten van de eukaryote biologie. Dit omvat rollen in de ontwikkeling van kiemcellen, vroege embryonale ontwikkeling, neuronale synaptische plasticiteit voor leren en geheugen, en de ontstekingsreactie10. Er zijn tal van methoden en assays ontwikkeld voor het meten van poly(A)-staartlengtes. De RNase H/oligo(dT)-assay maakt bijvoorbeeld gebruik van RNase H in de aan- of afwezigheid van oligo(dT) om poly(A)-staartlengte11,12 te bestuderen. Andere methoden om poly(A)-staart te bestuderen zijn onder meer de PCR-amplificatie van 3'-uiteinden, zoals snelle amplificatie van cDNA-uiteinden, poly(A)-test (RACE-PAT)12,13 en de ligase-gemedieerde poly(A)-test (LM-PAT)14. Verdere wijzigingen van de PAT-test zijn onder meer ePAT15 en sPAT16. Enzymatische G-tailing17,18 of G/I-tailing van het 3'-uiteinde zijn andere variaties van de PAT-test. Verdere modificatie van deze technieken omvat het gebruik van fluorescerend gelabelde primers samen met capillaire gelelektroforese voor analyse met hoge resolutie, ook wel de hoge-resolutie poly(A)-test (Hire-PAT) genoemd19. Deze PCR-gestuurde assays maken een snelle en zeer gevoelige kwantificering van poly(A)-lengtes mogelijk.
Met de ontwikkeling van sequencing van de volgende generatie maakt een high-throughput sequencingmethode, zoals PAL-seq20 en TAIL-seq21, polyadenylatieanalyses op transcriptoombrede schaal mogelijk. Deze methoden bieden echter slechts korte sequentiemetingen van 36-51 nucleotiden. Daarom is FLAM-Seq22 ontwikkeld voor globale staartlengteprofilering van mRNA van volledige lengte en biedt het lange lezingen. Nanopore-technologie23 biedt PCR-onafhankelijke, directe RNA- of directe cDNA-sequencing voor schattingen van poly(A)-staartlengtes. Deze high-throughput methoden zijn echter niet zonder beperkingen. Ze vereisen grote hoeveelheden uitgangsmateriaal, zijn duur en tijdrovend. Bovendien kan het analyseren van zeldzame transcripten een enorme uitdaging zijn met high-throughput-methoden, en PCR-gebaseerde methoden met lage doorvoer bieden nog steeds een voordeel wanneer een klein aantal transcripten moet worden geanalyseerd, voor pilot-experimenten en validatie van andere methoden.
We hebben onlangs aangetoond dat Dscam1-mRNA's korte poly(A)-staarten bevatten in Drosophila, wat een niet-canonieke binding van het cytoplasmatische poly(A)-bindende eiwit op Dscam1 3'UTR vereist met behulp van de G/I-tailing-methode24. Hier bieden we een gestroomlijnde procedure voor weefselvoorbereiding en het kwantificeren van poly(A)-lengte van mRNA's van het Drosophila-zenuwstelsel en Drosophila S2-cellen.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
1. Kweken en selecteren van Drosophila-larven
- Onderhoud/kweek de vliegenstam (w1118, wildtype) op standaard vliegenvoermedium bij 25 °C in een bevochtigde incubator.
- Selecteer 10 zwervende larven van de 3einstar 72 uur na het leggen van de eieren.
- Plaats de larven in een lege petrischaal van 35 mm en was ze voorzichtig door de larven met een pincet over te brengen naar de nieuwe schaal met kraanwater. Doe dit 2x om eventueel achtergebleven voedsel te verwijderen.
2. Isolatie van de hersenen van Drosophila-larven (Figuur 1)

Figuur 1: Dissectie van de hersenen van de Drosophila-larven uit het 3e zwerfstadium van de instar. (A) Schematische tekeningen van de larve van Drosophila. (B-G) Larve dissectie. Klik hier om een grotere versie van deze figuur te bekijken.
- Leg 10 larven op een dissectieschaal met ijskoude PBS.
- Plaats de larve met de achterkant naar boven (te herkennen aan tracheale buizen die over de lengte lopen) en speld elk uiteinde vast aan de onderkant van de schaal, gevolgd door een kleine incisie te maken in de lichaamswand aan het achterste uiteinde.
- Knip de lichaamswand langs de dorsale middellijn naar het voorste uiteinde met behulp van een microdissectieschaar.
- Spoel het inwendige van de larve kort door met een Pasteur pipet 3x met PBS in de schaal om de hersenen bloot te leggen.
- Lokaliseer en til de hersenen op met behulp van de pincet en isoleer ze zorgvuldig met een microdissectieschaar.
- Breng de ontlede hersenen over naar een microcentrifugebuis van 1,5 ml gevuld met ijskoude PBS op ijs; Verzamel alle larvenhersenen. Ga verder met RNA-extractie met behulp van een RNA-microprep-kit zoals beschreven in sectie 4.
OPMERKING: Voer binnen 15 minuten een dissectie uit van 10 larven om weefselbeschadiging en RNA-afbraak te voorkomen.
3. Drosophila S2 Schneider-cellen
- Kweek Drosophila S2-cellen in het medium van Drosophila Schneider aangevuld met 10% foetaal runderserum (FBS) bij 25 °C in een bevochtigde incubator tot een dichtheid van 8 × 10⁶ tot 10 × 106 cellen/ml met een levensvatbaarheid van minimaal 90%.
- Verdun de cellen in een steriel conisch buisje van 50 ml tot 2,5 × 10⁶ cellen/ml met Schneider's Drosophila-medium aangevuld met 10% FBS dat is voorverwarmd tot 25 °C.
- Breng 8 ml van de celsuspensie (20 × 106 cellen) over in een kweekplaat van 100 mm en voeg 4 ml medium toe om tot 12 ml te komen (dag 1).
- Incubeer de gekweekte cellen bij 25 °C in een bevochtigde incubator.
NOTITIE: Cellen hechten zich losjes aan de plaat na 12-16 uur (dag 2). - Transfecteer de cellen met de juiste DNA-plasmiden24.
- Incubeer gedurende 48 uur in een bevochtigde incubator.
- Verzamel na incubatie cellen door 5 ml ijskoude PBS toe te voegen door voorzichtig te pipetteren (dag 4).
- Breng de cellen over in een buisje van 15 ml.
- Pelleteer de cellen door te centrifugeren bij 1.000 × g gedurende 5 minuten bij 4 °C.
- Spoel de cellen 2x af met ijskoud PBS door voorzichtig pipetteren en verzamel de cellen door ze te centrifugeren bij 1.000 × g gedurende 5 minuten bij 4 °C.
- Voer RNA-extractie uit met behulp van een RNA miniprep-kit.
NOTITIE: Voer de volgende stappen uit in een steriele laminaire stroomkap.
4. Totale RNA-extractie uit de hersenen en S2-cellen van Drosophila-larven
- Larvale hersenen: Verwijder PBS door kort te centrifugeren (8 s kort centrifugeren bij 5.000 × g).
- Voeg 600 μL RNA-lysisbuffer toe en homogeniseer 10x met een plastic stamper. Inspecteer de buis visueel onder een stereomicroscoop om volledige lysis te garanderen.
- Centrifugeer bij 1.000 × g gedurende 5 minuten bij 4 °C om weefselresten te verwijderen. Breng het geklaarde supernatans over in een nucleasevrije microcentrifugebuis.
- Isoleer RNA met behulp van een RNA-microprepkit volgens de instructies van de fabrikant.
OPMERKING: Het gebruik van een RNA-microprep-kit is essentieel voor de larvale hersenmonsters vanwege de kleine hoeveelheid RNA die in de monsters aanwezig is. - S2-cellen: Verwijder PBS en isoleer RNA volgens de instructies van de fabrikant.
- Meet de RNA-opbrengst en -kwaliteit door middel van spectrofotometrie en agarosegelelektroforese.
- Bepaal de zuiverheid en hoeveelheid geëxtraheerd RNA door de optische dichtheid van het geëxtraheerde RNA te meten bij respectievelijk A260 nm en A280 nm. Zorg ervoor dat de A260 nm/A280 nm-verhouding ≥2.0 is en dat de RNA-concentratie >350 ng/μL is voor stroomafwaartse toepassingen.
OPMERKING: Een typische RNA-opbrengst van 10 Drosophila-larvenhersenen is ~500-800 ng/μL of 2,5-4 μg in 5 μL. Voor S2-cellen is de opbrengst ~2-3 μg/μL (15-30 μg in 15 μL). Geïsoleerd RNA kan worden opgeslagen bij -80 °C voor langdurige opslag.
- Bepaal de zuiverheid en hoeveelheid geëxtraheerd RNA door de optische dichtheid van het geëxtraheerde RNA te meten bij respectievelijk A260 nm en A280 nm. Zorg ervoor dat de A260 nm/A280 nm-verhouding ≥2.0 is en dat de RNA-concentratie >350 ng/μL is voor stroomafwaartse toepassingen.
5. Bereiding van RNA-gel en elektroforese
- 1,5% denaturerende RNA-gel (100 ml)
OPMERKING: Formaldehyde is giftig bij contact met de huid en inademing van dampen; Hanteer het in een chemische zuurkast.- Los drie agarosetabletten (1,5 g) op in 82 ml MOPS-buffer (aanvullend bestand 1) totdat de tabletten volledig uiteenvallen en fijne deeltjes vormen.
- Verwarm de agarose-suspensie in een magnetron tot de oplossing helder is en alle deeltjes volledig zijn opgelost.
- Koel de oplossing af tot ~60 °C.
- Voeg 18 ml 37% formaldehyde toe en meng door zachtjes te draaien. Giet de oplossing in de gietbak en laat het stollen in een zuurkast.
- Voorbereiding van RNA-monsters en elektroforese
- Verdun het RNA-monster tot 200 ng (in 5 μL) en voeg 5 μL 2x RNA-laadkleurstof toe.
- Verwarm de monsters op 70 °C gedurende 5 minuten in een droog bad.
- Laad 2 μL RNA-ladder in de eerste baan en 10 μL monsters in de aangrenzende banen.
- Voer elektroforese uit in MOPS-buffer bij 100 V gedurende 60 minuten voor een gel van 5 x 6 cm.
NOTITIE: Pas de elektroforesevoorwaarden aan afhankelijk van de amplicongroottes. - Visualiseer de gel op een UV-transilluminator.
OPMERKING: De aanwezigheid van een enkele band ~600 nucleotidegrootte duidt op intacte RNA-bereiding (zie figuur 2A).
6. Poly(A) staartlengtemeting
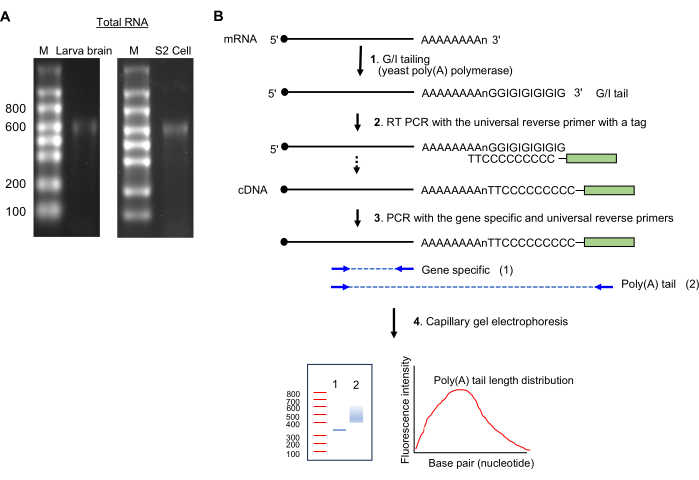
Figuur 2: Voorbereiding van RNA-monsters en de poly(A)-staarttest. (A) De RNA-gelbeelden tonen totaal RNA van de hersenen van de Drosophila-larve (links) en S2-cellen (rechts) op een 1,5% formaldehyde-agarosegel. Enkelstrengs RNA-laddergroottes worden weergegeven in nucleotiden op baan M. Let op een belangrijke RNA-banding op ~600 nt, die afkomstig is van rRNA. (B) Schema's van de poly(A)-staartanalyse. Afkorting: G/I = guanosine/inosine. Klik hier om een grotere versie van deze figuur te bekijken.
- GI-residu (figuur 2B)
- Bewaar de reagentia op ijs en bereid het volgende mengsel (20 μL): tot 14 μL totaal RNA-monster (1 μg), 4 μL 5x Tail-buffermix en 2 μL 10x Tail-enzymmix.
- Incubeer bij 37 °C gedurende 60 minuten in een thermocycler.
- Voeg 1,5 μL van de staartstopoplossing toe; Blijf 2 minuten op ijs staan.
NOTITIE: Ga verder met omgekeerde transcriptie of bewaar de GI-staart RNA-monsters bij -80 °C totdat ze klaar zijn om door te gaan met omgekeerde transcriptie.
- Reverse transcriptie en PCR-amplificatie
- Synthetiseer cDNA door het mengsel te bereiden en te incuberen onder de omstandigheden beschreven in aanvullend bestand 1.
- Verdun de cDNA-monsters en voer PCR uit om DNA te amplificeren zoals aangegeven in aanvullend bestand 1.
7. PCR-productanalyse door middel van agarosegelelektroforese
- Analyseer een kleine portie (2-5 μL) van de PCR-producten uit stap 6.2.2 op een agarosegel van 2,5% door elektroforese bij 100 V gedurende 45 minuten voor kwaliteitscontrole.
- Controleer de specificiteit van PCR voor genspecifieke en staartspecifieke reacties door de volgorde van de gelgeëxtraheerde PCR-banden te bepalen.
8. Capillaire elektroforese
- Voer gelelektroforese met hoge resolutie uit op 1 μL PCR-producten (0,5-5 ng/μL) van genspecifieke en poly(A)-specifieke PCR met behulp van de bioanalysator met een hooggevoelige DNA-kit. Zoek naar goed opgeloste pieken die duiden op een succesvolle run.
9. Data-analyse: poly(A)-staartlengtemeting (figuur 3)

Figuur 3: Poly(A) staartlengte en piekwaarde meting. Klik hier om een grotere versie van deze figuur te bekijken.
- Toegang tot gegevens
- Om toegang te krijgen tot de gegevens, opent u het xad-bestand in de software.
- Selecteer de naam van het voorbeeld of de ladder in het deelvenster Boomstructuur.
OPMERKING: Dit toont het resultaat als elektroferogrammen of gelachtige afbeeldingen voor de geselecteerde monsters. De onderste marker 35 basenpaar (bp) en de bovenste marker 10.380 bp zijn de interne standaarden die worden gebruikt om de laddergegevens (50-7.000 bp) af te stemmen op de gegevens van de monsterputten. - Zoom in en uit op de elektroferogrammen en gelachtige afbeeldingen om de details weer te geven.
- Uitvoeren van piek- en uitstrijkjes
- Om de piekmaten te verkrijgen, opent u het elektroferogram van een geselecteerd monster.
- Klik met de rechtermuisknop op het elektroferogram en selecteer handmatige integratie om handmatig pieken te selecteren door de horizontale lijn te slepen.
- Let op de piekwaarden in de tabel Piek. Identificeer de piek met de grootste piekhoogte. Dit is een piek van poly(A)-staartlengte voor een individueel monster. In het getoonde voorbeeld is dat 346 bp.
- Schakel het pictogram Setpoints weergeven/verbergen in het bovenste menu in en wacht tot er aan de rechterkant een nieuw paneel verschijnt.
- Selecteer Geavanceerd, scrol omlaag naar Uitstrijkje uitvoeren en schakel het selectievakje in. Hiermee wordt de tabel Regio toegevoegd aan het tabblad Elektroferogram.
- Selecteer een elektroferogram uit een voorbeeld en ga naar de tabel Regio, die de menu's Van [bp] en Naar [bp] toont. Om het begin en einde [bp] in te stellen, klikt u met de rechtermuisknop op het elektroferogram en selecteert u Regio om Regio toevoegen toe te voegen.
- Klik met de rechtermuisknop op een cel in de tabel Regio en selecteer Regio's wijzigen om een klein nieuw venster te laten verschijnen waarin aangepaste regio's kunnen worden ingesteld.
OPMERKING: We hebben bijvoorbeeld een regio van 300 bp tot 550 bp gebruikt voor GAPDH. De genspecifieke GAPDH PCR leverde een piek op bij 265 bp. De universele primer (tabel 1) verlengt de lengte van poly(A)-PCR met 35 bp via gloeien naar G/I-staart-RNA's. Het eerste adeninenucleotide op GAPDH-RNA begint dus bij 300 bp (265 + 35). We hebben de maximale poly(A) staartlengte willekeurig beperkt tot 250 (300 + 250 = 550). Uit de regiotabel retourneert het programma de gemiddelde grootte binnen de regio als 387 bp. - Gebruik vergelijking (1) om de poly(A)-staartlengte op het mRNA van belang te berekenen:
Poly(A) staartlengte = (A - B - 35) (1)
Waarbij A de gemiddelde bp is van poly(A)-specifiek PCR-product van elektroferogram (d.w.z. 387 bp voor GAPDH), B de piekbp van genspecifiek PCR-product van elektroferogram (d.w.z. 265 bp voor GAPDH), en "35" de lengte is van de universele omgekeerde primertag.
OPMERKING: Uit de bovenstaande berekening blijkt dat de gemiddelde poly(A)-staartlengte van GAPDH 387 - 265 - 35= 87 bp is.
10. Visualisatie van de lengteverdeling van de poly(A)staart
- Gegevens exporteren als csv-bestand onder Bestand | Exporteren | Voorbeeldgegevens om voorbeeldgegevens op te halen.
OPMERKING: Het geëxporteerde csv-bestand geeft de looptijd weer in plaats van bp op de X-as. - Ga naar een elektroferogram van een monster en vink Maten weergeven aan op het tabblad Elektroferogram om de regiotabel op de regiotabel automatisch te converteren van bp naar runtime. In het voorbeeld komen 70,39 s tot 86,28 s overeen met 300 bp tot 550 bp.
- Open het csv-bestand en selecteer de waarden van 70,39 s tot 86,28 s looptijd om een grafiek te genereren. Als u bp-grootten wilt visualiseren op de X-as in de grafiek, exporteert u het elektroferogram met bp-grootten als een afbeeldingsbestand en legt u het over de grafiek die in de spreadsheet is gegenereerd. Dit komt overeen met de bp-maten op de poly(A)-staartverdeling.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Hier analyseerden we de poly(A) staartlengte van Dscam1 en GAPDH uit de larvale hersenen van Drosophila (Figuur 4). Geïsoleerde RNA's werden gevisualiseerd op een agarosegel voor kwaliteitscontrole. Een enkele RNA-band met een nucleotidegrootte van ongeveer 600 duidt op intacte RNA-voorbereiding (Figuur 2A). RNA's werden onderworpen aan de G/I-tailing en capillaire elektroforese met hoge resolutie met behulp van een Agilent 2100 bioana...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
In dit protocol beschrijven we de techniek om het larvale brein van Drosophila te ontleden uit het zwervende 3e instar-stadium, evenals de monstervoorbereiding van Drosophila S2-cellen. Vanwege de labiele aard van mRNA's vereist het verzamelen van monsters extra voorzichtigheid. Voor larvale hersendissectie mogen de hersenen niet worden beschadigd tijdens isolatie en mogen ze niet voor langere tijd in oplossing worden bewaard. Het is essentieel om de dissectietijd te beperken tot 8-10 minuten...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben geen belangenconflicten om bekend te maken.
Dankbetuigingen
Deze studie werd ondersteund door het National Institute of Neurological Disorders and Stroke Grant R01NS116463 aan JK, en de Cellular and Molecular Imaging Core-faciliteit aan de Universiteit van Nevada, Reno, die werd ondersteund door National Institutes of Health Grant P20GM103650 en gebruikt voor onderzoek dat in deze studie werd gerapporteerd.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 3-(N-morpholino) propanesulfonic acid (MOPS) | Research Product Internation (RPI) | M92020 | |
| Agilent High Sensitivity DNA Kit | Agilent Technologies | 5067-4626 | |
| Agilent software 2100 expert free download demo | Agilent Technologies | https://www.agilent.com/nl/product/automated-electrophoresis/bioanalyzer-systems/bioanalyzer-software/2100-expert-software-228259 | |
| Apex 100 bp-Low DNA Ladder | Genesee Scientific | 19-109 | |
| Bioanalyzer | Agilent 2100 Bioanalyzer G2938C | ||
| Diethyl pyrocarbonate (DEPC) | Research Product Internation (RPI) | D43060 | |
| DNA dye (Gel Loading Dye, Purple (6x) | New England biolabs | B7024S | |
| Drosophila S2 cell line | Drosophila Genomics Resource Center stock #181 | ||
| Drosophila Schneider’s Medium | Thermo Fisher Scientific | 21720024 | |
| Ethidium bromide | Genesee scientific | 20-276 | |
| Fetal bovine serum (FBS) | Sigma-Aldrich | F4135 | |
| Forceps Dumont 5 | Fine Science tools | 11254-20 | |
| Nuclease free water | Thermo Fisher Scientific | AM9932 | |
| PBS 10x | Research Product Internation (RPI) | P32200 | |
| Poly(A) Tail-Length Assay Kit | Thermo Fisher Scientific | 764551KT | |
| RiboRuler Low Range RNA Ladder | Thermo Fisher Scientific | SM1833 | |
| RNA Gel Loading Dye (2x) | Thermo Fisher Scientific | R0641 | |
| RNA microprep kit | Zymoresearch | R1050 | |
| RNA miniprep kit | Zymoresearch | R1055 | |
| Scissors-Vannas Spring Scissors - 2.5 mm Cutting Edge | Fine Science tools | 15000-08 | |
| TopVision Agarose Tablets | Thermo Fisher Scientific | R2802 | |
| Tris-Acetate-EDTA (TAE) | Thermo Fisher Scientific | B49 |
Referenties
- Stewart, M. Polyadenylation and nuclear export of mRNAs. Journal of Biological Chemistry. 294 (9), 2977-2987 (2019).
- Machida, K., et al. Dynamic interaction of poly(A)-binding protein with the ribosome. Scientific Reports. 8 (1), 17435(2018).
- Eisen, T. J., et al. The dynamics of cytoplasmic mRNA metabolism. Molecular Cell. 77 (4), 786-799 (2020).
- Liudkovska, V., Dziembowski, A. Functions and mechanisms of RNA tailing by metazoan terminal nucleotidyltransferases. Wiley Interdisciplinary Reviews RNA. 12 (2), e1622(2021).
- Goldstrohm, A. C., Wickens, M. Multifunctional deadenylase complexes diversify mRNA control. Nature Reviews Molecular Cell Biology. 9 (4), 337-344 (2008).
- Schmidt, M. J., Norbury, C. J. Polyadenylation and beyond: emerging roles for noncanonical poly(A) polymerases. Wiley interdisciplinary reviews RNA. 1 (1), 142-151 (2010).
- Laishram, R. S. Poly(A) polymerase (PAP) diversity in gene expression - Star-PAP vs canonical PAP. FEBS Letters. 588 (14), 2185-2197 (2014).
- Salles, F. J., Lieberfarb, M. E., Wreden, C., Gergen, J. P., Strickland, S. Coordinate initiation of Drosophila development by regulated polyadenylation of maternal messenger RNAs. Science. 266 (5193), 1996-1999 (1994).
- Wreden, C., Verrotti, A. C., Schisa, J. A., Lieberfarb, M. E., Strickland, S. Nanos and pumilio establish embryonic polarity in Drosophila by promoting posterior deadenylation of hunchback mRNA. Development. 124 (15), 3015-3023 (1997).
- Passmore, L. A., Coller, J. Roles of mRNA poly(A) tails in regulation of eukaryotic gene expression. Nature Reviews Molecular Cell Biology. 23 (2), 93-106 (2021).
- Murray, E. L., Schoenberg, D. R. Assays for determining poly(a) tail length and the polarity of mRNA decay in mammalian cells. Methods in Enzymology. 448, 483-504 (2008).
- Salles, F. J., Strickland, S. Analysis of poly(a) tail lengths by PCR: The PAT assay. Methods in Molecular Biology. 118, 441-448 (1999).
- Salles, F. J., Darrow, A. L., O'Connell, M. L., Strickland, S. Isolation of novel murine maternal mRNAs regulated by cytoplasmic polyadenylation. Genes and Development. 6 (7), 1202-1212 (1992).
- Salles, F. J., Strickland, S. Rapid and sensitive analysis of mRNA polyadenylation states by PCR. Genome Research. 4 (6), 317-321 (1995).
- Janicke, A., Vancuylenberg, J., Boag, P. R., Traven, A., Beilharz, T. H. ePAT: A simple method to tag adenylated RNA to measure poly(a)-tail length and other 3' RACE applications. RNA. 18 (6), 1289-1295 (2012).
- Minasaki, R., Rudel, D., Eckmann, C. R. Increased sensitivity and accuracy of a single-stranded DNA splint-mediated ligation assay (sPAT) reveals poly(a) tail length dynamics of developmentally regulated mRNAs. RNA Biology. 11 (2), 111-123 (2014).
- Martin, G., Keller, W. Tailing and 3'-end labeling of RNA with yeast poly(A) polymerase and various nucleotides. RNA. 4 (2), 226-230 (1998).
- Kusov, Y. Y., Shatirishvili, G., Dzagurov, G., Verena, G. M. A new G-tailing method for the determination of the poly(a) tail length applied to hepatitis a virus RNA. Nucleic Acids Research. 29 (12), 57(2001).
- Bazzini, A. A., Lee, M. T., Giraldez, A. J. Ribosome profiling shows that miR-430 reduces translation before causing mRNA decay in zebrafish. Science. 336 (6078), 233-237 (2012).
- Subtelny, A. O., Eichhorn, S. W., Chen, G. R., Sive, H., Bartel, D. P. Poly(a)-tail profiling reveals an embryonic switch in translational control. Nature. 508 (1), 66-71 (2014).
- Chang, H., Lim, J., Ha, M., Kim, V. N. TAIL-seq: Genome-wide determination of poly(a) tail length and 3' end modifications. Molecular Cell. 53 (6), 1044-1052 (2014).
- Legnini, I., Alles, J., Karaiskos, N., Ayoub, S., Rajewsky, N. FLAM-seq: Full-length mRNA sequencing reveals principles of poly(A) tail length control. Nature Methods. 16 (9), 879-886 (2019).
- Garalde, D. R., et al. Highly parallel direct RNA sequencing on an array of nanopores. Nature Methods. 15 (3), 201-206 (2018).
- Singh, M., Ye, B., Kim, J. H. Dual leucine zipper kinase regulates Dscam expression through a noncanonical function of the cytoplasmic poly(A)-binding protein. Journal of Neuroscience. 42 (31), 6007-6019 (2022).
- Macharia, R. W., Ombura, F. L., Aroko, E. O. Insects' RNA profiling reveals absence of "hidden break" in 28S ribosomal RNA molecule of onion thrips, Thrips tabaci. Journal of Nucleic Acids. 2015, 965294(2015).
- Miura, P., Sanfilippo, P., Shenker, S., Lai, E. C. Alternative polyadenylation in the nervous system: to what lengths will 3' UTR extensions take us. Bioessays. 36 (8), 766-777 (2014).
- Sement, F. M., et al. et al Uridylation prevents 3' trimming of oligoadenylated mRNAs. Nucleic Acids Research. 41 (14), 7115-7127 (2013).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
