Er werd een beschermingstest ontwikkeld om de veerkracht van het netvlies tegen overlijden door diabetes/diabetische retinopathie-gerelateerde beledigingen zoals oxidatieve stress en cytokines te controleren.
Methodenartikel
Een test om bescherming van het netvlies te detecteren tegen diabetesgerelateerde sterfte bij muizen
In dit artikel
Samenvatting
Samenvatting
Diabetische retinopathie (DR) is een complexe en progressieve oogziekte die wordt gekenmerkt door twee verschillende fasen in de pathogenese ervan. De eerste fase omvat het verlies van bescherming tegen door diabetes veroorzaakte schade aan het netvlies, terwijl de tweede fase zich concentreert op de accumulatie van deze schade. Traditionele tests richten zich voornamelijk op het evalueren van capillaire degeneratie, wat een indicatie is van de ernst van de schade, en richten zich in wezen op de tweede fase van DR. Ze geven echter slechts indirect inzicht in de vraag of de beschermende mechanismen van het retinale vaatstelsel zijn aangetast. Om deze beperking aan te pakken, werd een nieuwe benadering ontwikkeld om de beschermende mechanismen van het netvlies direct te beoordelen - met name de veerkracht tegen door diabetes veroorzaakte beledigingen zoals oxidatieve stress en cytokines. Deze beschermingstest, hoewel oorspronkelijk ontworpen voor diabetische retinopathie, heeft het potentieel voor bredere toepassingen in zowel fysiologische als pathologische contexten. Samenvattend omvat het begrijpen van de pathogenese van diabetische retinopathie het herkennen van de dubbele fasen van beschermingsverlies en accumulatie van schade, waarbij deze innovatieve beschermingstest een waardevol hulpmiddel biedt voor onderzoek en mogelijk kan worden uitgebreid naar andere medische aandoeningen.
Inleiding
Diabetische retinopathie (DR) is een van de microvasculaire complicaties van diabetes mellitus (DM) en de belangrijkste oorzaak van blindheid bij personen in de werkende leeftijd in ontwikkelde landen. Belangrijke risicofactoren voor diabetische retinopathie zijn de duur en mate van hyperglykemie 2,3,4. Terwijl DM disfunctie veroorzaakt van zowel de vasculaire als de neurale componenten van het netvlies5, is de diagnose van DR gebaseerd op morfologische kenmerken van het retinale vaatstelsel6.
Hyperglykemie-geïnduceerde oxidatieve stress is een van de aanjagers van DR-pathogenese7. Verhoogde oxidatieve stress veroorzaakt wijdverbreide schade, die de functionaliteit van de mitochondriën in gevaar brengt en daardoor het niveau van reactieve zuurstofsoorten verder verhoogt. Deze gebeurtenissen gaan gepaard met lekkage van netvliesvaten, een toename van het niveau van inflammatoire cytokines en de dood van zowel neurale als vasculaire celtypen in het netvlies. Verlies van vasculaire cellen, en dus de functionaliteit van het uitgebreide capillaire netwerk van het netvlies, resulteert in hypoxie, een krachtige stimulus voor een verscheidenheid aan reacties. Dergelijke reacties omvatten verhoogde expressie van vasculaire endotheliale groeifactor (VEGF) die zowel permeabiliteit als angiogenese stimuleert, kardinale kenmerken van de gevorderde, zichtbedreigende stadia van DR - diabetisch macula-oedeem, en proliferatieve diabetische retinopathie6.
Bepaalde kenmerken van DR suggereren dat een organisme (zowel patiënten als proefdieren) een intrinsiek vermogen heeft om deze indicatie te weerstaan. Patiënten ervaren tientallen jaren DM voordat ze gezichtsbedreigende DR 8,9,10,11,12,13 ontwikkelen. Hoewel knaagdiermodellen van DM niet de vergevorderde, gezichtsbedreigende stadia van DR14 ontwikkelen, doet de aanvankelijke/milde vorm van DR die zich manifesteert dit pas na een periode van weken of maanden van DM15,16. Bovendien is DR bij zowel patiënten als proefdieren progressief en neemt de disfunctie/schade aan het netvlies toe naarmate de duur van DM langer duurt. Ten slotte ontwikkelen sommige patiënten met DM nooit DR. In bepaalde gevallen komt dit omdat dergelijke personen diabetes niet lang genoeg ervaren om DR te ontwikkelen. In andere gevallen is het omdat ze buitengewone weerstand tegen DR vertonen; zoals het geval is met deelnemers aan de Medalist-studie, die na 50 of meer jaar DM17 geen DR ontwikkelen. Ondanks deze overtuigende steun voor het bestaan van bescherming tegen DR en de enorme translationele relevantie ervan, is het mechanisme dat ten grondslag ligt aan bescherming niet agressief onderzocht.
De hierin beschreven beschermingstest is ontwikkeld om te onderzoeken waarom DR wordt vertraagd vanaf het begin van DM bij diabetische muizen. De belangrijkste stappen van deze test, toegepast op DM- en niet-DM-muizen, omvatten (1) het toedienen van een submaximale doodsinducerende belediging aan het oog (ex vivo of in vivo), (2) het isoleren van de retinale vasculatuur, (3) het kleuren van de vasculatuur met TUNEL en DAPI, (4) het fotograferen van de resulterende beelden en het kwantificeren van het percentage TUNEL/DAPI dubbelpositieve soorten.
Protocol
Alle dierstudies werden goedgekeurd door het Office of Animal Care and Institutional Biosafety van de Universiteit van Illinois in Chicago. Zeven weken oude mannelijke C57/BL6/J-muizen werden gehuisvest in groepskooien in een pathogeenvrije omgeving op een 12 uur licht/donker-cyclus en kregen gratis toegang tot voedsel en water. Muizen werden geëuthanaseerd door CO2 -verstikking en de ogen werden onmiddellijk ontkernd en verwerkt18. De dieren zijn afkomstig van een commerciële bron (zie Materiaaltabel). De essentiële hulpmiddelen die nodig zijn voor het onderzoek zijn weergegeven in figuur 1.
1. Levering van de doodveroorzakende belediging
- Voer oxidatieve stress uit met TBH (ex vivo).
- Euthanaseer de muizen volgens institutioneel goedgekeurde protocollen en verwijder hun ogen18 (Figuur 2A).
- Plaats de oogbollen rechtstreeks in afzonderlijke putjes van een plaat met 24 putjes die DMEM + 1% BSA bevat, met of zonder 5 mM Tert-butylhydroperoxide (TBH) (zie materiaaltabel); incubeer gedurende 1 uur bij 37 °C. Een positief controlemonster wordt gedurende 10 minuten behandeld met DNase (50 E/100 μL) om DNA te fragmenteren.
OPMERKING: De dosis TBH (het middel dat oxidatieve stress induceert) werd gekozen om een gemakkelijk detecteerbaar en submaximaal niveau van celdood in de geïsoleerde retinale vaten te induceren18. - Fixeer de ogen 's nachts (minimaal 16 uur) in 10% gebufferde formaline.
- Gebruik een cytokinecocktail om ontstekingen op te wekken (in vivo).
- Verdoof de muizen met een intraperitoneale injectie van 100 mg/kg ketamine en 5 mg/kg xylazine.
- Gebruik een aangepaste naald van 33 G (zie Materiaaltabel) om 1 μL/oog van de cytokinecocktail in het glasvocht te injecteren; de injectieplaats bevindt zich op 2-3 mm van de limbus (figuur 2B).
OPMERKING: De cytokinecocktail bevat een verhouding van 1:1:1 van 1 μg/ml TNF-α, 1 μg/ml IL-1β en 1500 E/μL IFN-γ18 (zie materiaaltabel). - 24 uur na de injectie euthanaseren van de muizen (volgens institutioneel goedgekeurde protocollen), hun ogen ontnucleëren en 's nachts fixeren met 10% gebufferde formaline.
OPMERKING: Het experiment kan na fixatie maximaal 1 week worden gepauzeerd en later opnieuw worden gestart.
2. Isolatie van het netvlies
- Snijd de oogbol open.
- Gebruik een rechte pincet om de oogzenuw voorzichtig vast te pakken (Figuur 2C). Houd met de andere hand een micromes vast om een incisie van 2-3 mm achter de limbus te maken.
- Schakel over van het micromes naar een microschaar om evenwijdig aan de limbus te knippen terwijl u de oogbol samen met de oogzenuw draait totdat de oogbol in twee helften is gesneden.
- Gooi de voorste helft van het oog, inclusief de lens, weg (Figuur 2C).
- Verwijder de sclera.
- Gebruik een rechte pincet om de sclera voorzichtig 1-3 mm van het netvlies te tillen.
- Gebruik een microschaar om twee radiale sneden in de sclera te maken, een deel van de weg naar de oogzenuw. Vermijd het doorsnijden van het onderliggende netvlies.
- Gebruik een gebogen pincet om de scleraflap vast te pakken en van het netvlies te scheuren. De RPE-laag komt los met de sclera.
- Was het netvlies.
- Gebruik een microspatel om het geïsoleerde netvlies over te brengen naar een kuiltje in een schaal met 24 putjes die is gevuld met dubbel gedestilleerd water.
- Schud de schaal voorzichtig op middelhoge snelheid bij kamertemperatuur. Ververs het water elke 30 minuten tot 1 uur, minstens 4-5 keer, en laat het dan een nacht staan.
3. Isolatie van het netvlies
- Spijsvertering: Vervang het dubbel gedestilleerde water door 800 μL YL-trypsineoplossing (3% trypsine in 0,1 M Tris-buffer (pH 7,8)). Incubeer bij 37 °C met zacht tot niet schudden gedurende 4 h 15 min19 (Figuur 2D).
NOTITIE: Vermijd snel schudden, omdat dit de vasculatuur kan beschadigen. - Transfer: Doop het brede uiteinde van een glazen transferpipet met YL-trypsine-oplossing om het netvlies over te brengen in een petrischaal van 35 mm met pluisvrij, dubbel gedestilleerd water.
- Verwijder de buitenste kernlaag (fotoreceptoren) (Figuur 2E).
- Draai de halve bol van het netvlies naar beneden. Gebruik de rechte borstel met één haar om het netvlies voorzichtig naar de bodem van de schaal te drukken.
- Gebruik de lusborstel om de fotoreceptoren van het netvlies voorzichtig weg te borstelen. De penseelstreken worden aangebracht in een richting van de oogzenuw naar de periferie van het netvlies. De fotoreceptoren kunnen in grote vellen loskomen omdat ze niet door bloedvaten aan de rest van het netvlies zijn verankerd.
- Gebruik een pipet van 200 μl om de vellen neuraal weefsel te verzamelen en weg te gooien.
- Verwijder het glasvocht.
- Draai de halve bol van het netvlies om zodat deze naar boven wijst. Gebruik een gebogen pincet (A) om het glasvocht zoveel mogelijk vast te pakken onder een ontleedmicroscoop.
OPMERKING: Het glasvocht ziet eruit als een vel transparant weefsel dat aan de oogzenuw of het netvlies is bevestigd. - Gebruik een andere gebogen pincet (B) om het uiteinde van het glasvocht vast te pakken waar het de oogzenuw verbindt. Verwijder het glasvocht door de tang A weg te trekken van de tang B.
- Gooi het glasvocht weg. Onderzoek het overblijfsel van het glasvocht en herhaal deze stap om al het glasvocht te verwijderen, omdat het residu de volgende stappen zal belemmeren.
- Draai de halve bol van het netvlies om zodat deze naar boven wijst. Gebruik een gebogen pincet (A) om het glasvocht zoveel mogelijk vast te pakken onder een ontleedmicroscoop.
- Verwijder het resterende neurale en gliale weefsel (Figuur 2F).
- Draai de halve bol van het netvlies om zodat deze weer naar beneden wijst. Gebruik nogmaals de rechte borstel om het netvlies voorzichtig naar de bodem van de schaal te drukken (gebruik niet de punt van het haar).
- Gebruik de lusborstel om voorzichtig over het vaatstelsel te borstelen van de oogzenuwkop naar de periferie om het resterende neurale weefsel te verwijderen20.
- Draai het netvlies langzaam rond met de rechte borstel en gebruik de lusborstel om alle kleine stukjes neuraal weefsel op het netvlies te verwijderen, totdat het vasculaire netwerk goed is schoongemaakt (Figuur 2G,H).
4. Montage van de geïsoleerde retinale vasculatuur op een microscoopglaasje
- Plaats een microscoopglaasje.
- Plaats een schone montagecassette (zie Tabel met materialen) onder een ontleedmicroscoop. Vul de cassette met dubbel gedestilleerd water.
- Gebruik een zwarte achtergrond onder de ontleedmicroscoop om contrast te genereren om het verlichte transparante vaatstelsel te zien.
- Gebruik een pincet om een schoon, gelabeld microscoopglaasje in de bodem van de montagecassette te plaatsen.
- Breng het retinale vaatstelsel over.
- Doop het brede uiteinde van een glazen transferpipet met YL-trypsine-oplossing.
- Breng het gereinigde netvliesvaatstelsel over en maak het vaatstelsel voorzichtig los in het dubbel gedestilleerde water in de montagecassette en boven het microscoopglaasje.
- Monteer het retinale vaatstelsel.
OPMERKING: Terwijl het vaatstelsel boven het microscoopglaasje zweeft, krijgt het geïsoleerde vaatstelsel zijn normale komvorm.- Gebruik de lusborstel om de halve bol van het netvlies naar boven te draaien en duw het vaatstelsel voorzichtig naar beneden op het glasplaatje en gebruik vervolgens het haar om het geopende vaatstelsel op het midden van het glaasje te plakken. Het vaatstelsel moet aan het objectglaasje blijven plakken als het elkaar raakt.
- Monteer het vaatstelsel plat door het komvormige netvlies van de oogzenuw naar de periferie te borstelen.
- Herhaal het poetsen in alle richtingen totdat het vaatstelsel volledig aan het glaasje blijft plakken.
- Laat het netvlies aan de lucht drogen.
- Zodra het hele netvliesvasculatuur aan het glaasje is bevestigd, haalt u het glaasje uit het water door voorzichtig een rand op te tillen of door langzaam water in de hoek van de cassette af te tappen om stroming te minimaliseren en het er vervolgens uit te trekken (Figuur 2I).
OPMERKING: Het vaatstelsel wordt direct zichtbaar zodra het aan de lucht is gedroogd (Figuur 2J). - Markeer de omtrek van het netvlies op de achterkant van het objectglaasje met een markeerstift.
- Ga verder met het kleuren van het monster zonder pauze.
- Zodra het hele netvliesvasculatuur aan het glaasje is bevestigd, haalt u het glaasje uit het water door voorzichtig een rand op te tillen of door langzaam water in de hoek van de cassette af te tappen om stroming te minimaliseren en het er vervolgens uit te trekken (Figuur 2I).
5. Overlijdensdetectie met TUNEL-kleuring
OPMERKING: Voor details over deze procedure, zie Zheng et al.21. Representatieve beelden van ischemie +/- oxstress-geïnduceerde apoptotische lichamen in geïsoleerde retinale vaten zijn weergegeven in figuur 3.
- Rehydrateer de geïsoleerde vasculatuur met PBS. Spoel het 3 keer in PBS en incubeer vervolgens met 1% Triton X-100 in PBS gedurende 2 minuten op ijs om het geïsoleerde vaatstelsel te permeabiliseren.
- Spoel de objectglaasjes twee keer af met PBS om de resterende Triton X-100 te verwijderen. Droog het gebied rond het monster.
- Voeg 50 μl TUNEL-reactiemengsel (zie materiaaltabel) toe aan het monster. Incubeer het objectglaasje gedurende 60 minuten bij 37 °C in het donker in een bevochtigde atmosfeer.
- Spoel het glaasje 3 keer met PBS om het TUNEL-reactiemengsel te verwijderen. Droog het gebied rond het monster.
- Voeg een druppel DAPI-montagemedia toe om de kernen te kleuren met DAPI en monteer het monster met een dekglas. Bewaren bij 4 °C in het donker.
OPMERKING: Het protocol kan maximaal 1 week worden onderbroken voordat beelden worden vastgelegd. - Fotografeer het resulterende vaatstelsel met een confocale fluorescentiemicroscoop (zie Tabel met materialen). Leg zes tot acht willekeurig geselecteerde velden vast in de verre periferie rond de oogzenuw (Figuur 4).
OPMERKING: Representatieve beelden van cytokine-geïnduceerde apoptotische lichamen in geïsoleerde retinale vaten worden geïllustreerd in figuur 5. - Analyseer de resultaten.
- Voor ex vivo, TBH-behandelde monsters, voert u de volgende stappen uit.
- Tel het aantal apoptotische lichamen (TUNEL/DAPI dubbelpositieve soorten) in elk veld met behulp van afbeelding J (zie Tabel met materialen). Tel het gemiddelde van de apoptotische lichamen in alle velden van een enkele steekproef.
- Bereken de vouwverandering in het aantal apoptotische lichamen tussen een willekeurig geselecteerd paar niet-DM- en DM-monsters.
- Bepaal of er een statistisch significant verschil is met behulp van de tweezijdige leerling-t-toets18.
OPMERKING: Kleurs de controle- en experimentele monsters (niet-DM en DM) bij dezelfde gelegenheid, omdat de mate van TUNEL-kleuring kan variëren, zelfs als ze op dezelfde manier worden gedaan. Aangezien maximaal 10 netvliezen per dag kunnen worden gereinigd en gemonteerd door een ervaren gebruiker, moet u van plan zijn om een gelijk aantal controle- en experimentele netvliezen te verwerken voordat u met dit protocol begint.
- Voor in vivo met cytokines behandelde monsters voert u de volgende stappen uit.
- Tel handmatig het aantal apoptotische lichamen (TUNEL/DAPI dubbelpositieve soorten) in de gehele retinale vasculatuur.
- Bereken de vouwverandering in het aantal apoptotische lichamen tussen een willekeurig geselecteerd paar niet-DM- en DM-monsters.
- Bepaal of er een statistisch significant verschil is met behulp van de tweezijdige student t-toets.
- Voor ex vivo, TBH-behandelde monsters, voert u de volgende stappen uit.
Resultaten
De succesvolle isolatie van retinale vasculatuur resulteert in een vlakke montage van het gehele netwerk van het retinale vasculatuur van de muis, met de architecturale integriteit intact (Figuur 2J). Bij kleuring met periodieke acid-schiff hematoxyline (PASH) is het mogelijk om de twee vasculaire celtypen te onderscheiden: endotheelcellen (EC's) en pericyten (PC's) (Figuur 6). De endotheelcelkernen zijn langwerpig, licht gekleurd en bevinden zich volledig binnen de vaatwanden. Perocytenkernen zijn cirkelvormig, dicht gekleurd en steken uit de capillaire wanden. De PASH-gekleurde monsters onthullen ook acellulaire haarvaten, die geen kernen hebben.
De benadering om de dood op te wekken werd geleid door de volgende redenering. Er werd gespeculeerd dat de bescherming beperkt was, d.w.z. dat deze kon worden overweldigd door een zeer sterke doodsveroorzaking. Bijgevolg werden beledigingen (zowel ischemie/oxidatieve stress als cytokines18) zo geoptimaliseerd dat ze een gemakkelijk detecteerbare toename van de maar toch submaximale mate van overlijden zouden veroorzaken (Figuur 3 en Figuur 5).
Het is belangrijk om te benadrukken dat de aanwezigheid van TUNEL-positieve kernen afhankelijk was van het specifieke type belediging dat werd gebruikt om celdood te veroorzaken. De ischemie/oxidatieve stress-insult leidde tot een trambaanpatroon van celapoptose, zoals geïllustreerd in figuur 3, terwijl de cytokine-insult resulteerde in een duidelijk en goed gedefinieerd patroon, zoals weergegeven in figuur 5. Beide patronen kunnen worden waargenomen in retinale vaten van DR-patiënten22, wat suggereert dat beide soorten middelen celdood bij mensen induceren. Bovendien bieden de waargenomen morfologische verschillen een middel om te evalueren of pathologie werd aangedreven door oxidatieve stress of cytokines.
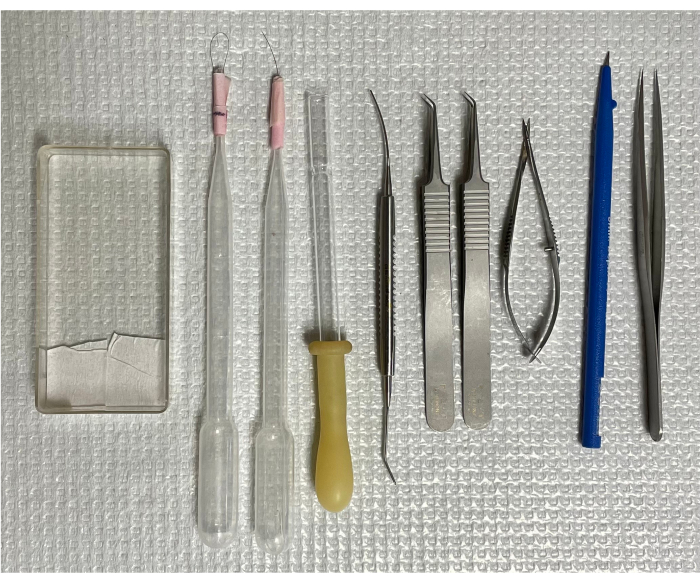
Figuur 1: Hulpmiddelen voor het isoleren van de retinale vasculatuur van muizen. Van links naar rechts: de montagecassette, twee enkelharige borstels, een omgekeerde transferpipet, microspatel, twee gebogen pincetten, veerschaar, micromes en pincetten met rechte punten. Klik hier om een grotere versie van deze figuur te bekijken.
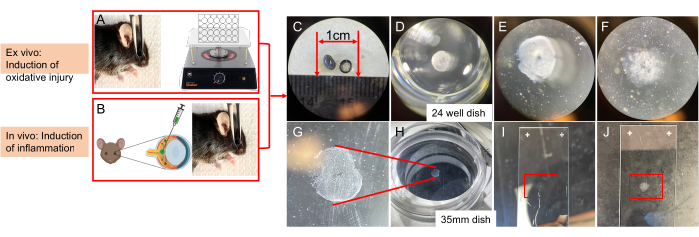
Figuur 2: Schema met de belangrijkste stappen van het toedienen van een dodelijke belediging en vervolgens het isoleren van het netvliesvasculatuur uit een muizenoog. (A) Inductie van ischemie/oxidatief letsel, ex vivo. Na enucleatie wordt de oogbol onderworpen aan ischemie in aanwezigheid van TBH. (B) In vivo toediening (intravitreale injectie) van cytokines. (C) Snijd de oogbol in twee helften. (D) Retinale enzymatische vertering: het verwijderen van de sclera en het wassen van het netvlies in dubbel gedestilleerd water gedurende een nacht. Incuberen in YL-trypsineoplossing bij 37 °C gedurende 4 uur en 15 minuten in een putje met een plaat met 24 putjes. (E) Het verwijderen van de fotoreceptoren. (F) Het verwijderen van het resterende neurale en gliale weefsel. (G) Gereinigd komvormig vasculair netwerk naar boven gericht. (H) Geïsoleerd vasculair netwerk in een schaal van 35 mm met een zwarte achtergrond op de tafel van een ontleedmicroscoop. (I) Plat gemonteerde retinale vasculatuur op een objectglaasje. (J) Aan de lucht gedroogd retinale vasculatuur op een objectglaasje. Dit cijfer is aangepast ten opzichte van Li et al.18. Klik hier om een grotere versie van deze figuur te bekijken.
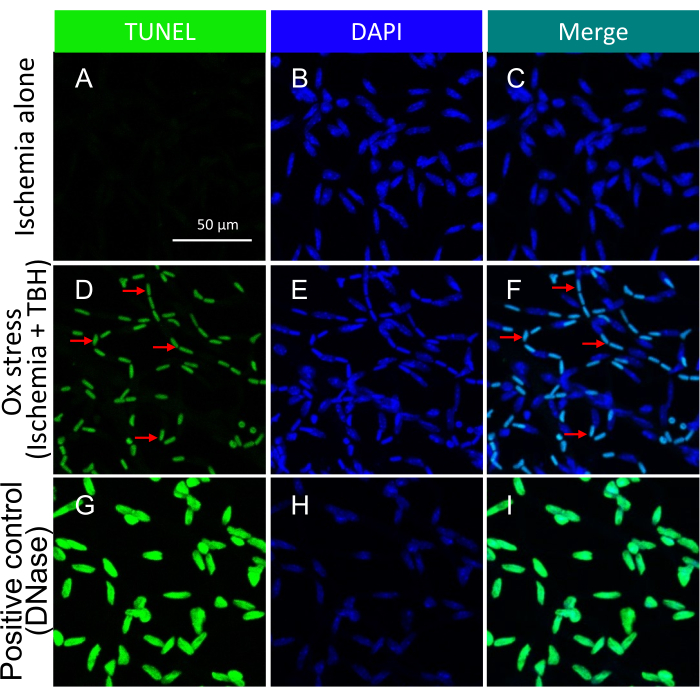
Figuur 3: Detectie van apoptotische lichamen in retinale vaten van muizen die ex vivo zijn behandeld met ischemie +/- TBH. Representatieve beelden van ischemie +/- ox stress-geïnduceerde apoptotische lichamen in geïsoleerde retinale vaten. De kop van elke kolom geeft de kleuring aan. (A-C) Netvliesvaten geïsoleerd uit oogbollen die alleen 1 uur ischemie ondergingen. (D-F) Hetzelfde als (A-C), behalve dat de 1 uur durende belediging een combinatie was van ischemie en oxidatieve stress (5 mM TBH). De rode pijlen wijzen naar representatieve TUNEL/DAPI dubbelpositieve soorten. (G-I) Positieve controle behandeld met DNase. Schaalbalk = 50 μm. Dit cijfer is aangepast ten opzichte van Li et al.18. Klik hier om een grotere versie van deze figuur te bekijken.
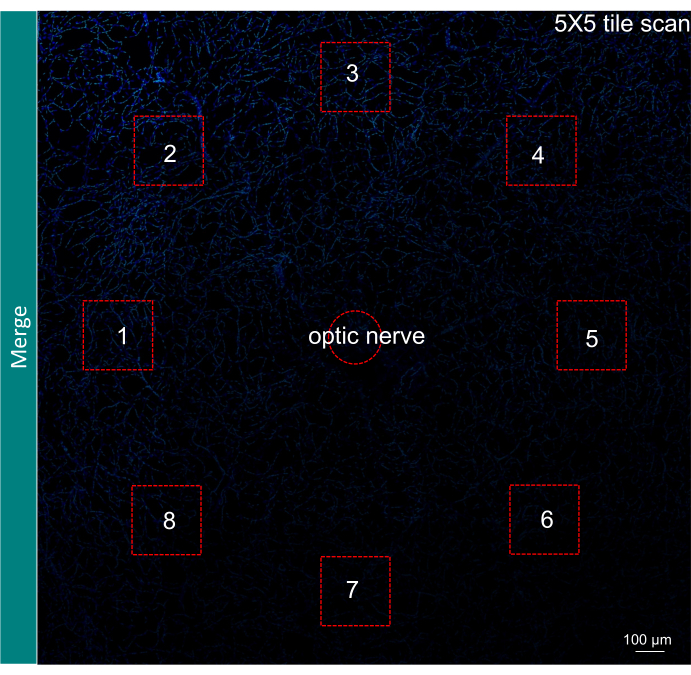
Figuur 4: Illustratie van veldselectie voor kwantificering van de resultaten. Een 5 x 5 tegelscan van het netvlies vasculatuur met de samenvoeging van TUNEL en DAPI signaal. De selectie van zes tot acht velden in de verre periferie rond de oogzenuw wordt weergegeven met rode vierkanten. Vergroting, 200x. Schaalbalk = 100 μm. Klik hier om een grotere versie van deze figuur te bekijken.
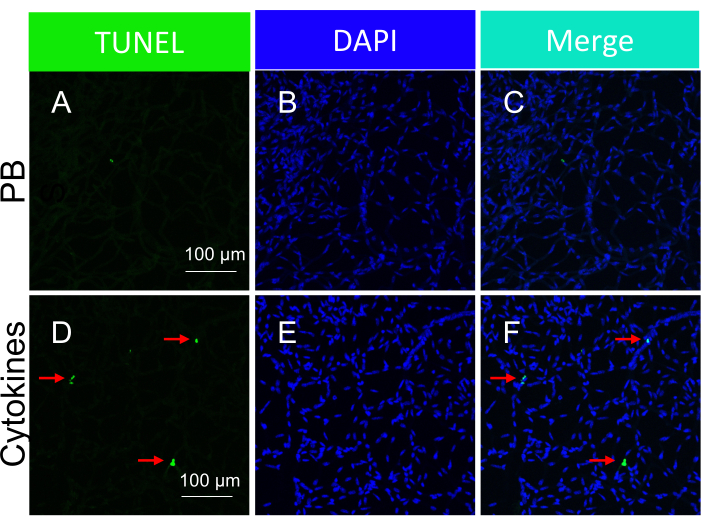
Figuur 5: Detectie van de apoptotische lichaampjes in de netvliesvaten van muizen als reactie op intravitreale injectie van cytokines (in vivo toediening). Representatieve beelden van cytokine-geïnduceerde apoptotische lichamen in geïsoleerde retinale vaten. De kop van elke kolom geeft de kleuring aan. (A-C) Beelden van de netvliesvaten geïsoleerd van muizen die intravitrealisch zijn geïnjecteerd met PBS. (D-F) Hetzelfde als (AC), behalve dat een cytokinecocktail samen met PBS werd geïnjecteerd. De rode pijlen wijzen naar representatieve TUNEL-positieve soorten. Schaalbalken = 100 μm. Dit cijfer is aangepast ten opzichte van Li et al.18. Klik hier om een grotere versie van deze figuur te bekijken.
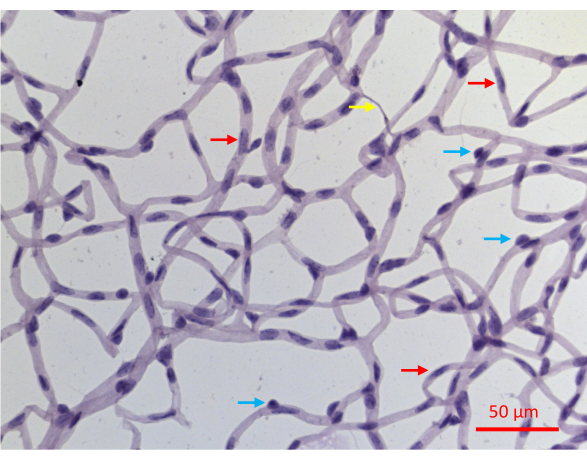
Figuur 6: Een representatief beeld van een PASH-gekleurd netvlies. Retinale vaten van een muis die 20 weken STZ-geïnduceerde DM doormaakte, werden geïsoleerd zoals beschreven in figuur 2, gekleurd met PASH en in beeld gebracht terwijl ze werden verlicht met zichtbaar licht. Perocytenkernen in haarvaten zijn meestal meer cirkelvormig en dicht gekleurd (blauwe pijlen), terwijl langwerpige en minder dicht gekleurde kernen kenmerkend zijn voor endotheelcellen (rode pijlen). De gele pijl wijst naar een acellulair capillair. Schaalbalk = 50 μm. Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
In deze studie werd een test opgesteld om resistentie/kwetsbaarheid van het retinale vaatstelsel voor de dood te detecteren die wordt veroorzaakt door DM/DR-gerelateerde beledigingen zoals ischemie/oxidatieve stress en cytokines. Dit manuscript geeft een gedetailleerde beschrijving van deze test, die een wijziging is van verschillende gepubliceerde protocollen 19,20,21.
Het protocol omvat een aantal cruciale fasen. Ten eerste is het absoluut noodzakelijk om het netvlies zorgvuldig te ontleden, het behoud van het vasculaire netwerk te waarborgen en substantiële scheuren te voorkomen. Dit kan worden bereikt door een incisie 2-3 mm achter de limbus te maken, aangezien het netvlies stevig hecht aan de ora serrata en het scheiden ervan een uitdaging is. Ten tweede, smeer alle instrumenten die in contact komen met de vaten (bijv. eenharige borstels, transferpipet en pincet) in met trypsine door deze gereedschappen tijdens de procedure in de YL-trypsineoplossing te dompelen. Dit voorkomt dat het vaatstelsel zich hecht aan de instrumenten die in dit protocol worden gebruikt. Ten derde, omdat de microvasculatuur bijna onzichtbaar is onder normaal licht, is verhoogde waakzaamheid vereist tijdens het opzuigen van puin en het overbrengen naar het microscoopglaasje om onbedoeld verlies te voorkomen.
Een passende mate van enzymatische vertering van de verschillende lagen van het netvlies is cruciaal; Onvoldoende spijsvertering verhindert de scheiding van neuronaal weefsel van het vasculaire netwerk, terwijl overmatige spijsvertering de vasculaire plexus oplost. Er zijn verschillende verteringstijden gemeld, variërend van 1 uur19 tot 's nachts 23 uur. Op basis van waarnemingen levert een verteringstijd van 4 uur en 15 minuten de meest gunstige resultaten op in vergelijking met een duur van 2 uur, 3 uur en 4 uur. Het is onwaarschijnlijk dat het verlengen van de spijsvertering na dit punt het proces zal verbeteren en in plaats daarvan de integriteit van het vaatstelsel in gevaar kan brengen.
In gevallen waarin het verteerde netvlies zich hecht aan de enkelharige borstel, dompel het haar dan meerdere keren in YL-trypsine-oplossing. Dit vermindert de plakkerige plekken van de borstel. Als de haarborstel nog steeds aan het vaatweefsel hecht, inspecteer deze dan op resterende glasvochtfragmenten en verwijder deze met een pincet.
Het optimale moment voor volledige glasvochtverwijdering is na het elimineren van de fotoreceptoren, maar voorafgaand aan het verwijderen van het resterende neurale en gliale weefsel. Het netvlies blijft stijf totdat fotoreceptoren worden verwijderd. Het extraheren van het glasvocht in dit stadium kan mogelijk het netvlies/vaatstelsel scheuren. De delicate lagen resterend neuraal en gliaweefsel spelen een cruciale rol bij het behoud van de gebogen vorm van de vasculaire structuur. Ze voorkomen dat het netvlies in het midden scheurt wanneer het glasvocht wordt losgemaakt van de oogzenuw.
Als het geïsoleerde vaatstelsel helemaal niet aan het microscoopglaasje hecht, geeft dit aan dat het gedeelte van het objectglaasje waar naar verwachting hechting zal optreden, vuil is. Probeer de vaten over het oppervlak van het glaasje te bewegen om een plakkerige plek te vinden, schakel over naar een ander glaasje of maak het glaasje zorgvuldig schoon en probeer het opnieuw. Als de vaten aan de glijbaan blijven plakken voordat ze zich in hun komachtige vorm ontvouwen, til dan het vaatstelsel van de glijbaan om het weer vrij in het water te laten drijven. Voer deze stap uit met een tang die herhaaldelijk in de YL-trypsine-oplossing is gedompeld.
Er zijn verschillende alternatieve technieken voor het isoleren van het vaatstelsel gerapporteerd, die niet geschikt zouden zijn voor de hierin beschreven beschermingstest. Osmotische lysis is bijvoorbeeld gebruikt om het vaatstelsel te isoleren van niet-gefixeerde netvliesmonsters, waardoor biochemisch onderzoek van het weefsel wordt vergemakkelijkt 24,25. Het is echter mogelijk dat deze procedure de anatomie van het vaatstelsel en de in dit artikel gebruikte benadering niet zo goed behoudt. Evenzo, hoewel de weefselafdrukmethode om grote segmenten van microvasculatuur te isoleren analyse van de elektrotonische architectuur van het vaatstelsel mogelijk maakt26, wordt het hele vaatbed doorgaans niet hersteld.
Deze test is ontwikkeld omdat de bestaande benaderingen voor het monitoren van capillaire degeneratie het probleem van bescherming niet aanpakken. Capillaire degeneratie, die optreedt na langdurige DM, geeft aan of DR zich heeft ontwikkeld. Naast het diagnosticeren van DR is deze uitkomst nuttig om te beoordelen of een middel/therapie DR voorkomt. Bestaande capillaire degeneratietesten spreken echter niet over het onderliggende werkingsmechanisme van het middel. Een dergelijk middel kan pathologische gebeurtenissen voorkomen die DR veroorzaken, zoals verhoogde oxidatieve stress of cytokines. Als alternatief kan het middel bescherming afdwingen door de veerkracht tegen oxidatieve stress en cytokines te vergroten en/of het herstel van schade te bevorderen. Deze nieuwe beschermingstest kan worden gebruikt om te bepalen of het gunstige effect van een bepaalde therapie bestaat uit het versterken van het endogene systeem dat beschermt tegen DM-gerelateerde sterfte.
Een nadeel van deze beschermingstest is dat er geen onderscheid wordt gemaakt tussen de twee celtypen in de netvliesvaten: endotheelcellen (EC's) en pericyten (PC's). Hoewel het uiterlijk van hun kernen in PASH-gekleurde secties specifiek is voor het celtype (Figuur 6), vertoont niet elke kern diagnostische kenmerken. Ongeveer 30% van de kernen kan niet eenduidig worden gedefinieerd als EC of PC, althans gedeeltelijk, omdat de tweedimensionale beelden die worden verkregen uit PASH-gekleurde monsters de driedimensionale structuur van de vasculaire plexus onvolledig oplossen. Dit obstakel kan worden overwonnen door aanvullende analyses, zoals immunofluorescerende kleuring met celtypespecifieke markers. Dergelijke beelden, die de twee celtypen onderscheiden, kunnen samen met TUNEL worden gekleurd om de weerstand/kwetsbaarheid van elk van de vasculaire celtypen te bepalen.
Deze vasculair gerichte test geeft geen informatie over het neurale netvlies. Er kunnen aanvullende tests worden ontwikkeld om dergelijke informatie te verstrekken. In plaats van het netvlies te isoleren, zou bijvoorbeeld een enkele celsuspensie van het hele netvlies kunnen worden gegenereerd en vervolgens kunnen worden geanalyseerd (door middel van fluorescerend geactiveerde celsortering) op weerstand/kwetsbaarheid. De opname van celtype-specifieke markers (zowel neuraal als vasculair) samen met indicatoren van celdood zou een completer beeld geven van de retinale celtypen die het vermogen hebben om te beschermen tegen DM/DR-gemedieerde dood.
Concluderend biedt de hierin beschreven beschermingstest een krachtige benadering voor het onderzoeken van het mechanisme dat verantwoordelijk is voor de vertraging tussen het begin van DM en de manifestatie van DR bij muizen.
Openbaarmakingen
De auteurs hebben geen belangenconflicten te melden.
Dankbetuigingen
Dit werk werd ondersteund door subsidies van de Illinois Society to Prevent Blindness, National Institute of Health (EY031350 and EY001792) en een onbeperkte subsidie van de Research to Prevent Blindness Foundation.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 10% neutral buffered formalin | Fischer Scientific | SF100-4 | Fixatie |
| 24-well plates | Falcon | 353047 | |
| 33 G naald | Hamilton | aangepast | |
| Ammoniumhydroxide | Sigma | 221228-1L-PCA | |
| C57/BL6/J muizen | The Jackson Laboratory | Jax #000664 | |
| Cytokine cocktail | bestond uit een 1:1:1 verhouding van 1 µg/mL TNF-α, 1 µg/mL IL-1 β en 1500 U/µLIFN- γ | ||
| Dissectiemicroscoop | Elke microscoop die een goede visualisatie van de retina mogelijk maakt is voldoende. | ||
| Dumont #3 forceps | Fine Science Tools (FST) | 11231-30 | Rechte punten |
| Dumont #5 forceps | Fine Science Tools (FST) | 11253-25 | Micro-aangeblunde punten |
| Easy-Grip Tissue Culture Dishes | Falcon | 353001 | 35 x 10 mm |
| Glas transferpipet | Fischer Scientific | 1367820A | snij het dunne uiteinde van een Pasteur pipet af en pas het “gebroken” uiteinde aan met een rubberen bulb. |
| Harris gemodificeerde hematoxiline | Sigma | HHS32 | |
| Image J | NIH, Bethesda | https://imagej.nih.gov/ij/ | |
| In Situ Cell Death Detection Kit, Fluorescein | Milipore | 11684795910 | TUNEL reactiemengsel |
| Micro dekglasjes | VWR | 48366-227 | 22 mm x 22 mm |
| Micromes | Sharpoint | 72-1551 | |
| Micro-spatels | Fine Science Tools | 10091-12 | |
| Montage cassette | Elke transparante cassette die iets groter is dan de microscoopplaat | ||
| Periodieke zuur | Sigma | 3951 | |
| Periodieke zuuroplossing | 35 mM periodiek zuur met 12 mM natriumacetaat in H2O | ||
| Permount montagemedium | Fischer Scientific | SP15- 100 | |
| Prism 9 | GraphPad | ||
| Prolog Gold antifade reagens met DAPI | Invitrogen | P36935 | |
| Recombinant humaan IFN- γ | Peprotec | 300-02 | |
| Recombinant humaan IL-1 β | Peprotec | 200-01B | |
| Recombinant humaan TNF-α | Peprotec | 300-01A | |
| Schiff reagens base | Sigma | 3952016 | |
| Schudler Incubatie (buiknavel shaker) | IBI Scientific | BBUAAUV1S | |
| Natriumacetaat | Sigma | 71196 | |
| Steritop steriele vacuümfles | Millipore | SCGPS05RE | Maak gefilterd water |
| Superfrost Plus behandelde microscoopglazen | Fischer Scientific | 12-550-15 | gebruik glazen uit ongeopende doos |
| Tert-butyl hydroperoxide (TBH) | Sigma | 75-91-2 | |
| TRIZMA base | Fischer Scientific | 11-101-5522 | maak 100 mM Tris, pas pH aan tot 7,8 met HCl) |
| Trypsine 1:250 | Amresco | 0458-50G | |
| Twee “borstels” | gemaakt van een enkele zwarte haar vastgeplakt aan het uiteinde van een plastic transferpipet. Eén borstel met een vrije uiteind. De andere borstel met een lus | ||
| Vannas Veerscharen | Fine Science Tools (FST) | 15000-00 | |
| Xyleen | Sigma | 65351-M | |
| YL trypsinoplossing | 3% trypsine in 0,1 M Tris (pH 7,8) | ||
| Zeiss LSM 710 fluorescentiemicroscoop | Zeiss Microscopy |
Referenties
- Teo, Z. L., et al. Global prevalence of diabetic retinopathy and projection of burden through 2045: Systematic review and meta-analysis. Ophthalmology. 128 (11), 1580-1591 (2021).
- Lee, R., Wong, T. Y., Sabanayagam, C. Epidemiology of diabetic retinopathy, diabetic macular edema and related vision loss. Eye Vis (Lond). 2, 21(2015).
- Lima, V. C., Cavalieri, G. C., Lima, M. C., Nazario, N. O., Lima, G. C. Risk factors for diabetic retinopathy: A case-control study. Int J Retina Vitreous. 2, 21(2016).
- Sabanayagam, C., Yip, W., Ting, D. S., Tan, G., Wong, T. Y. Ten emerging trends in the epidemiology of diabetic retinopathy. Ophthalmic Epidemiol. 23 (4), 209-222 (2016).
- Antonetti, D. A., Silva, P. S., Stitt, A. W. Current understanding of the molecular and cellular pathology of diabetic retinopathy. Nat Rev Endocrinol. 17 (4), 195-206 (2021).
- Wong, T., Cheung, C., Larsen, M., Sharma, S., Simó, R. Diabetic retinopathy. Nat Rev Dis Primers. 2, 16012(2016).
- Wu, M. Y., Yiang, G. T., Lai, T. T., Li, C. J. The oxidative stress and mitochondrial dysfunction during the pathogenesis of diabetic retinopathy. Oxid Med Cell Longev. 2018, 3420187(2018).
- Hietala, K., Harjutsalo, V., Forsblom, C., Summanen, P., Groop, P. H. Age at onset and the risk of proliferative retinopathy in type 1 diabetes. Diabetes Care. 33 (6), 1315-1319 (2010).
- Aiello, L. P., et al. Diabetic retinopathy. Diabetes Care. 21 (1), 143-156 (1998).
- Klein, R., Klein, B. E., Moss, S. E., Davis, M. D., Demets, D. L. The wisconsin epidemiologic study of diabetic retinopathy. Prevalence and risk of diabetic retinopathy when age at diagnosis is less than 30 years. Arch Ophthalmol. 102 (4), 520-526 (1984).
- Nathan, D. M., et al. The effect of intensive treatment of diabetes on the development and progression of long-term complications in insulin-dependent diabetes mellitus. N Engl J Med. 329 (14), 977-986 (1993).
- Clustering of long-term complications in families with diabetes in the diabetes control and complications trial. The diabetes control and complications trial research group. Diabetes. 46 (11), 1829-1839 (1997).
- Cruickshanks, K. J., Moss, S. E., Klein, R., Klein, B. E. Physical activity and proliferative retinopathy in people diagnosed with diabetes before age 30 yr. Diabetes Care. 15 (10), 1267-1272 (1992).
- Robinson, R., Barathi, V. A., Chaurasia, S. S., Wong, T. Y., Kern, T. S. Update on animal models of diabetic retinopathy: From molecular approaches to mice and higher mammals. Dis Model Mech. 5 (4), 444-456 (2012).
- Samuels, I. S., Bell, B. A., Pereira, A., Saxon, J., Peachey, N. S. Early retinal pigment epithelium dysfunction is concomitant with hyperglycemia in mouse models of type 1 and type 2 diabetes. J Neurophysiol. 113 (4), 1085-1099 (2015).
- Sergeys, J., et al. Longitudinal in vivo characterization of the streptozotocin-induced diabetic mouse model: Focus on early inner retinal responses. Invest Ophthalmol Vis Sci. 60 (2), 807-822 (2019).
- Sun, J. K., et al. Protection from retinopathy and other complications in patients with type 1 diabetes of extreme duration: The joslin 50-year medalist study. Diabetes Care. 34 (4), 968-974 (2011).
- Li, Y., et al. The slow progression of diabetic retinopathy is associated with transient protection of retinal vessels from death. Int J Mol Sci. 24 (13), 10869(2023).
- Chou, J. C., Rollins, S. D., Fawzi, A. A. Trypsin digest protocol to analyze the retinal vasculature of a mouse model. J Vis Exp. 76, e50489(2013).
- Veenstra, A., et al. Diabetic retinopathy: Retina-specific methods for maintenance of diabetic rodents and evaluation of vascular histopathology and molecular abnormalities. Curr Protoc Mouse Biol. 5 (3), 247-270 (2015).
- Zheng, L., Gong, B., Hatala, D. A., Kern, T. S. Retinal ischemia and reperfusion causes capillary degeneration: Similarities to diabetes. Invest Ophthalmol Vis Sci. 48 (1), 361-367 (2007).
- Mizutani, M., Kern, T. S., Lorenzi, M. Accelerated death of retinal microvascular cells in human and experimental diabetic retinopathy. J Clin Invest. 97 (12), 2883-2890 (1996).
- Weerasekera, L. Y., Balmer, L. A., Ram, R., Morahan, G. Characterization of retinal vascular and neural damage in a novel model of diabetic retinopathy. Invest Ophthalmol Vis Sci. 56 (6), 3721-3730 (2015).
- Dagher, Z., et al. Studies of rat and human retinas predict a role for the polyol pathway in human diabetic retinopathy. Diabetes. 53 (9), 2404-2411 (2004).
- Podestà, F., et al. Bax is increased in the retina of diabetic subjects and is associated with pericyte apoptosis in vivo and in vitro. Am J Pathol. 156 (3), 1025-1032 (2000).
- Puro, D. G. Retinovascular physiology and pathophysiology: New experimental approach/new insights. Prog Retin Eye Res. 31 (3), 258-270 (2012).
Herprints en machtigingen
