Hier presenteren we een protocol dat netwerkfarmacologie en moleculaire dockingtechnieken beschrijft om het werkingsmechanisme van Jiawei Shengjiang San (JWSJS) bij de behandeling van diabetische nefropathie te onderzoeken.
Methodenartikel
Antagonistisch effect van Jiawei Shengjiang San op een rattenmodel van diabetische nefropathie: gerelateerd aan de EGFR/MAPK3/1-signaleringsroute
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
We wilden ons verdiepen in de mechanismen die ten grondslag liggen aan de actie van Jiawei Shengjiang San (JWSJS) bij de behandeling van diabetische nefropathie en het inzetten van netwerkfarmacologie. Met behulp van netwerkfarmacologie en moleculaire dockingtechnieken hebben we de actieve componenten en doelen van JWSJS voorspeld en een nauwgezet "geneesmiddel-component-doelwit"-netwerk geconstrueerd. Genontologie (GO) en Kyoto-encyclopedie van genen en genomen (KEGG) verrijkingsanalyses werden gebruikt om de therapeutische routes en doelen van JWSJS te onderscheiden. Autodock Vina 1.2.0 werd ingezet voor moleculaire dockingverificatie en een 100-ns moleculaire dynamica-simulatie werd uitgevoerd om de dockingresultaten te bevestigen, gevolgd door in vivo dierverificatie. Uit de bevindingen bleek dat JWSJS 227 kruisende doelen deelde met diabetische nefropathie, waardoor een eiwit-eiwitinteractienetwerktopologie werd geconstrueerd. KEGG-verrijkingsanalyse gaf aan dat JWSJS diabetische nefropathie vermindert door lipiden en atherosclerose te moduleren, de PI3K-Akt-signaleringsroute, apoptose en de HIF-1-signaleringsroute, met mitogeen-geactiveerde proteïnekinase 1 (MAPK1), MAPK3, epidermale groeifactorreceptor (EGFR) en serine/threonine-proteïnekinase 1 (AKT1) geïdentificeerd als collectieve doelen van meerdere routes. Moleculaire docking beweerde dat de kerncomponenten van JWSJS (quercetine, palmitoleïnezuur en luteoline) de conformatie met drie cruciale doelen (MAPK1, MAPK3 en EGFR) konden stabiliseren door middel van waterstofbruggen. In vivo onderzoeken wezen op een opmerkelijke toename van het lichaamsgewicht en verlagingen van geglyceerd serumeiwit (GSP), lipoproteïne-cholesterol met lage dichtheid (LDL-C), uridinetrifosfaat (UTP) en nuchtere bloedglucose (FBG) als gevolg van JWSJS. Elektronenmicroscopie in combinatie met hematoxyline en eosine (HE) en periodieke zuur-Schiff (PAS) kleuring benadrukten het potentieel van elke behandelingsgroep bij het verlichten van nierbeschadiging in verschillende mate, met gevarieerde dalingen in p-EGFR, p-MAPK3/1 en BAX, en verhogingen in BCL-2-expressie in het nierweefsel van de behandelde ratten. Concluderend suggereren deze inzichten dat de beschermende werkzaamheid van JWSJS op diabetische nefropathie in verband kan worden gebracht met het onderdrukken van de activering van de EGFR/MAPK3/1-signaleringsroute en het verlichten van apoptose van niercellen.
Inleiding
Diabetes mellitus (DM) is een chronische ziekte die meerdere systemen aantast en verschillende complicaties kan veroorzaken als gevolg van continue hyperglykemie, zoals diabetische nefropathie (DN), retinopathie en neuropathie1. DN is een ernstige complicatie van DM en is goed voor ongeveer 30%-50% van nierziekte in het eindstadium (ESRD)2. De klinische manifestatie is microalbuminurie, die kan evolueren naar ESRD, gekenmerkt door een verhoogd glomerulair volume, mesangiale stromale hyperplasie, en verdikt glomerulaire basale membraan3. De pathogenese van DN is complex en is nog niet volledig opgehelderd. Klinische methoden zoals het verlagen van de bloedglucose, het reguleren van de bloeddruk en het verminderen van proteïnurie worden meestal gebruikt om de voortgang te vertragen, maar het effect is algemeen.
Momenteel is er geen specifiek medicijn gevonden om DN4 te behandelen. Eeuwenlang worden Chinese kruidengeneesmiddelen echter op grote schaal gebruikt bij de behandeling van DM en de complicaties ervan5 en hebben ze de klinische symptomen van patiënten verbeterd en de progressie van de ziekte vertraagd. Vanwege de voordelen van multi-component, multi-target en multi-pathway effecten, wordt verwacht dat Chinese kruidengeneesmiddelen een innovatieve geneesmiddelbron zullen zijn voor de behandeling van DN6.
"Shengjiang san" is ontstaan uit de "Wanbing Huichun" van de arts Gong Tingxian uit de Ming-dynastie. Het boek "Neifu Xianfang" beschrijft het gebruik van Bombyx Batryticatus, Cicadae Periostracum, Curcumaelongae Rhizima en Radix Rhei et Rhizome. Op basis hiervan oefent het, na toevoeging van Hedysarum Multijugum Maxim, Epimrdii Herba en Smilacis Glabrae Rhixoma, de functie van shengjiang san uit van het verhogen van de luciditeit, het verminderen van troebelheid, het vrijgeven van stagnerende "warmte" en het harmoniseren van "qi" en het bloed 7,8. Het verhoogt ook het effect van het versterken van de milt en het versterken van de nieren. De werkzaamheid ervan komt overeen met de pathogenese van DN's "qi" om te stijgen en te dalen in de verkeerde volgorde als gevolg van een tekort aan "vitale energie", overmatige droogte en "hitte" en stagnatie van "warmte" veroorzaakt door een drievoudig energizer 7,8.
Eerdere klinische studies hebben aangetoond dat Chinese kruidengeneesmiddelen zijn gebruikt om DM en de complicaties ervan te behandelen, en van jiawei shengjiang san (JWSJS) is aangetoond dat het de bloedglucose en lipiden reguleert, proteïnurie vermindert en de klinische werkzaamheid van patiënten met vroege DN7 aanzienlijk verbetert. Het vermogen van JWSJS om de urine-eiwit- en bloedglucosespiegels bij DN-ratten te verlagen, is bevestigd door eerdere studies. Dit gebeurt waarschijnlijk door de TXNIP/NLRP3- en RIP1/RIP3/MLKL-signaleringsroutes te remmen, podocytenpyroptose te verminderen en necrotische apoptose in nierweefsels van DN-ratten te voorkomen, waardoor nierbescherming wordt bereikt9. JWSJS kan de expressie van nefrine- en podocine-eiwitten verhogen en podocytenschade bij DN-ratten verminderen, wat suggereert dat JWSJS een remmend effect heeft op podocytenschade. JWSJS heeft een bepaald anti-DN-effect met goede veiligheidsprofielen, maar er is weinig onderzoek naar gedaan en dit werk richt zich vooral op pyroptose en necrotische apoptose. De literatuur is niet voldoende diepgaand of systematisch10. Onze eerdere bevindingen hebben bevestigd dat JWSJS proteïnurie kan verminderen en nierbeschadiging bij DN-ratten kan verlichten7. Er zijn echter maar een paar onderzoeken naar het mechanisme van JWSJS voor DN-behandeling, en deze missen diepgang en systematisering. Deze studie heeft dus tot doel de moleculaire stoffen en werkingsmechanismen van JWSJS voor DN-behandeling te analyseren met behulp van netwerkfarmacologie en een solide basis te bieden voor toekomstig onderzoek.
Netwerkfarmacologie is een opkomende methode om het werkingsmechanisme van geneesmiddelen te bestuderen, waaronder cheminformatica, netwerkbiologie, bio-informatica en farmacologie11,12. De onderzoeksopzet van netwerkfarmacologie lijkt veel op het holistische concept van de traditionele Chinese geneeskunde13,14, en het is een belangrijke methode om het mechanisme van Chinese kruidengeneesmiddelen te bestuderen. Moleculaire docking kan interacties tussen moleculen bestuderen en hun bindingspatronen en affiniteit voorspellen. Moleculair docken is naar voren gekomen als een cruciale techniek op het gebied van computerondersteund geneesmiddelenonderzoek15. Daarom heeft deze studie een JWSJS-DN-target-interactienetwerk geconstrueerd door middel van netwerkfarmacologie en moleculaire dockingmethoden dat een betrouwbare en theoretische basis biedt voor verder onderzoek naar DN-behandeling met JWSJS.
Protocol
Alle dieren werden onderhouden en gebruikt in overeenstemming met de Amerikaanse National Research Council Guide for the Care and Use of Laboratory Animals, 8th Edition, en werden gerapporteerd zoals aanbevolen in de ARRIVE-richtlijnen16,17. De studie werd uitgevoerd in overeenstemming met de China National Research Council Guide for the Care and Use of Laboratory Animals en werd goedgekeurd door de Animal Ethics Committee van de Hebei University of Chinese Medicine (DWLL2019030).
1. JWSJS actieve ingrediënten en doelcollectie
- Voer de medicinale samenstelling JWSJS (Hedysarum Multijugum Maxim, Epimrdii Herba, Smilacis Glabrae Rhixoma, Radix Rhei et Rhizome en Curcumaelongae Rhizoma) in de database van het farmacologiesysteem en het analyseplatform voor traditionele Chinese geneeskundesystemen (TCMSP)18 in om alle chemische componenten op te halen. Volgens absorptie, distributie, metabolisme en uitscheiding (ADME) screenen orale biologische beschikbaarheid (OB) ≥ 30% en geneesmiddelachtige eigenschappen (DL) ≥ 0,18 chemische ingrediënten19,20.
- Gebruik de TCMSP-database (https://old.tcmsp-e.com/ tcmsp.php, versie 2.3) om de overeenkomstige doelen van chemische ingrediënten op te halen.
- Verkrijg de actieve ingrediënten van Bombyx Batryticatus en Cicadae Periostracum door te zoeken in de databases Traditionele Chinese Geneeskunde en Chemische Samenstelling21.
- Voor experimentele geloofwaardigheid selecteert u verbindingen met CAS-nummers (Chemical Abstracts Service) voor dit onderzoek. Download dan 2D-structuurdiagrammen (.sdf-formaat) van actieve ingrediënten van PubChem (https://pubchem.ncbi.nlm.nih.gov/, bijgewerkt in 2021)22.
- Gebruik SwissADME (www.swissadme.ch, bijgewerkt in 2021)23om de componenten met een hoge gastro-intestinale (GI) absorptie te screenen als geneesmiddelgelijkenis (Lipinski, Ghose, Veber, Egan, Muegge) waarvan de ≥ 2 items 'Ja' waren. Dit leidde tot de actieve componenten van Bombyx Batryticatus en Cicadae Periostracum.
- Importeer deze in de TCMSP-database voor doeleiwitvoorspelling (https://old.tcmsp-e.com/tcmsp.php, versie. 2.3)18.
- Standaardiseer de doelen in de UniProt-database (https://www.uniprot.org, bijgewerkt in 2021) met de status ingesteld op Beoordeeld en soorten ingesteld op Mens24.
2. DN-overeenkomstige doelverzameling
- Zoek Diabetische nefropathie via GeneCards (https://www.genecards.org/, versie. 5.1)25, OMIM (https://omim.org/, bijgewerkt in 2021)26, TTD (http://db.idrblab.net/ttd/, bijgewerkt in 2021)27, PharmGKB (https://www.pharmgkb.org/, bijgewerkt in 2021)28 en DrugBank-databases (https://www.drugbank.ca/, bijgewerkt in 2021)29. Verkrijg de doelen van DN na het combineren en ontdubbelen.
- Screening van gemeenschappelijke doelen van JWSJS en DN en netwerkconstructie
- Screen de gemeenschappelijke doelen van JWSJS en DN met behulp van R 4.2.0-software en teken Venn-diagrammen. Importeer de actieve ingrediënten en potentiële doelen van JWSJS in Cytoscape 3.8.0-software30 om een Drug-Ingredient-Target-netwerkdiagram te bouwen dat het verband tussen geneesmiddelen, ingrediënten, doelen en ziekten visualiseert.
- Laat de grootte van het knooppunt de grootte van de gradenwaarde weerspiegelen, waarbij een hogere graadwaarde aangeeft dat het knooppunt belangrijker is in het netwerk.
- Opbouw van een PPI-eiwitinteractienetwerk en screening van kerndoelen
- Analyseer de kruisende genen met behulp van het online platform STRING (versie:11.5) om een eiwit-eiwitinteractienetwerk (PPI) te construeren31. Bouw het netwerk met behulp van een analysemodus voor meerdere eiwitten , stel de soort in op Homo sapiens en stel de minimaal vereiste interactiescore in op >0,930.
- Gebruik Cytoscape 3.8.0 om het netwerk topologisch te analyseren, de betweenness centrality (BC), proximity centrality (CC), degree centrality (DC), Eigenvector centrality (EC), local average connectivity-based method (LAC) en network centrality (NC) waarden voor elk knooppunt te berekenen, en screen de zes knooppunten met alle waarden groter dan de mediaan32. Herhaal dit proces meerdere keren om de kerndoelen van JWSJS voor DN-therapie te identificeren.
- GO-functionele analyses en analyse van KEGG-routeverrijking
- Voer GO- en KEGG-verrijkingsanalyses uit om de biologische processen, moleculaire functies, cellulaire componenten en routes te identificeren die verband houden met de gemeenschappelijke doelen van JWSJS en DN.
- Gebruik de org. Hs.eg.db pakket om de id's van de kruispuntdoelen te verkrijgen en gebruik de clusterProfiler, org. Hs.eg.db-, enrichplot- en ggplot2-pakketten voor verrijkingsanalyses33.
- Screen voor functionele GO-verrijkingsanalyse op de top 10 biologische hits met een gecorrigeerde P-waarde < 0,05 en selecteer top-30 routes met de hoogste verrijking voor KEGG-analyse.
3. Moleculair docken
- Gebruik AutoDock Vina-software om moleculaire docking uit te voeren tussen de JWSJS-kerncomponenten en de kerndoelen voor DN-therapie34.
- Zoek in de PubChem-database om het sdf-bestand van de 2D-structuur van JWSJS-kerncomponenten te verkrijgen. Gebruik ChemBio 3D Ultra14.0-software om de 3D-structuur te genereren en te optimaliseren, sla deze op in mol2-indeling en gebruik deze als ligandbestand.
- Zoek en download het pdb-formaat van de 3D-structuur van de kerndoelen uit de Research Collaboratory for Structural Bioinformatics (RCSB) Protein Data Bank (PDB) database. Gebruik Pymol 2.4.0-software om watermoleculen en liganden uit de eiwitstructuur te verwijderen, sla het op als pdb-formaat en gebruik het als een receptorbestand.
- Importeer het receptor-pdb-bestand in AutoDockTools 1.5.7-software voor hydrogenering, converteer zowel het receptoreiwit als het ligand van het kleine molecuul naar pdbqt-formaat, stel de actieve zak in voor het receptoreiwit met de afstandscoëfficiënt ingesteld op 1.
- Gebruik Autodock vina 1.2.0 voor moleculair docken en bereken de bindingsenergie; als Affiniteit < 0, ga er dan van uit dat het molecuul spontaan bindt aan eiwit, een grotere absolute waarde van Affiniteit duidt op een stabielere binding tussen hen. Visualiseer ten slotte de dockingresultaten met behulp van Pymol 2.3.0 en LigPlot 2.2.5 software.
4. Moleculair dynamische simulatie
- Volg deze stappen om MD-simulaties uit te voeren met behulp van de Desmond-software:
- Gebruik de academische versie 2019-1 van Desmond-software voor het beoordelen van de stabiliteit en flexibiliteit van eiwit-ligandinteracties.
- Moleculair dynamisch (MD) onderzoek uitvoeren op een drietal van de meest veelbelovende ligandcomplexen die zijn afgeleid van dockingstudies. Voer simulaties uit in een SPC-waterige omgeving met 0,15 M NaCl, waarbij de fysiologische ionische omstandigheden worden nagebootst. De simulatiebox is ontworpen om ervoor te zorgen dat de opgeloste stof ten minste 10 Å verwijderd blijft van zijn grenzen. Contraionen worden geïntroduceerd om de elektrische lading van het systeem te neutraliseren. Daarnaast worden periodieke randvoorwaarden toegepast, die worden bepaald door de parameters van het krachtveld OPLS 2005.
- Start een energieminimalisatiefase voor 100 ps met behulp van de standaardparameters van Desmond.
- Zorg voor temperatuur- en drukstabilisatie bij 26,85 °C (300 K) en 1,01325 bar door middel van de Nosé-Hoover-keten en Martyna-Tobias-Klein-methodologieën in alle MD-productiesystemen. De simulatie van de moleculaire dynamica wordt uitgevoerd met een tijdstap van 2 fs voor een totale duur van 100 ns, waarbij de atomaire coördinaten elke 100 ps worden geregistreerd.
- Open de module SID-module (Simulation Interactions Diagram). Laad de gegevensbestanden van de simulatieresultaten in de module.
- Selecteer het gewenste analysetype uit de beschikbare opties in de module (bijv. wortel-gemiddelde-kwadraatafwijking [RMSD], wortelgemiddelde kwadratische fluctuatie [RMSF], waterstofbindingsanalyse, enz.). Specificeer eventuele aanvullende parameters die nodig zijn voor het gekozen analysetype.
- Voer de analyse uit door op de knop Analyseren of Start te klikken.
- Zodra de analyse is voltooid, bekijkt en interpreteert u de resultaten binnen de SID-module-interface. Exporteer resultaten indien nodig voor verder gebruik of presentatie.
5. Validatie van dierproeven
- Dieren en experimenteel ontwerp
OPMERKING: Bij deze studie waren 75 mannelijke Sprague-Dawley-ratten betrokken, die werden verkregen uit een dierlijke productiefaciliteit van SPF-kwaliteit en 8 weken oud waren met een lichaamsgewicht van 150 g ± 20 g (certificaatnummer voor dierlijke productie SCXK [Hebei] 2018-004).- Huisvest de ratten in een dierenlaboratorium op SPF-niveau en verdeel ze willekeurig in normale en modelgroepen na 1 week adaptieve voeding. Geef de normale groep een normaal dieet en de modelgroep een suikerrijk en vetrijk dieet. Na 4 weken vast de ratten, maar ontneem ze geen water gedurende 12 uur.
- Injecteer de modelgroep met een intraperitoneale injectie van streptozotocine (STZ; 35 mg·kg-1). Test na 72 uur de bloedsuikerspiegel door middel van bloedafname van de staartader. Als de nuchtere bloedglucosespiegel ≥16,7 mmol is· L-1, bevestig het als een succesvol diabetisch model.
- Bevestig het succesvolle DN-model door histopathologische veranderingen in de nier van de rat te observeren.
- Verdeel de succesvol gerepliceerde modellen willekeurig in de modelgroep, die JWSJS kreeg van 4,37 g/kg, 8,73 g/kg en 17,46 g/kg (overeenkomend met 3,2, 6,3 en 12,6 keer de klinisch equivalente dosis) en een irbesartan-groep (0,014 g/kg). Elke groep bestond uit 10 ratten. Dien alle geneesmiddelen eenmaal daags toe via een orale maagsonde. Houd dit doseringsschema consequent aan gedurende 4 weken.
- Verdoof de ratten met behulp van een intraperitoneale injectie van 1% pentobarbital-natrium (50 mg/kg) en bevestig de juiste anesthesie door verlies van de terugtrekkingsreflex van het pedaal. Verzamel bloedmonsters van de abdominale aorta voorafgaand aan euthanasie.
- Verzamel de nieren na euthanasie van de ratten met behulp van een intraperitoneale injectie van natriumpentobarbital in een dosis van 150 mg/kg.
OPMERKING: De dieren werden op humane wijze geëuthanaseerd, volgens de meest bijgewerkte richtlijnen (https://www.avma.org/resources-tools/avma-policies/avma-guidelines-euthanasia-animals) van de American Veterinary Medical Association (AVMA) voor euthanasie.
- Histologie-analyses van de nieren
OPMERKING: Nierweefsel werd gefixeerd in 4% paraformaldehyde en gedehydrateerd in ethanol na 48 uur; secties werden ingebed in paraffine. De secties werden in dunne (4 μm) plakjes gesneden voor hematoxyline en eosine (HE) en periodieke zuur-Schiff (PAS) kleuring, en de morfologische veranderingen van de nierhistologie werden waargenomen onder een lichtmicroscoop.- HE kleuring:
- Dewaxing en hydratatie: Behandel de weefselsecties met Xyleen I en II (elk 10 min), absolute alcohol I en II (elk 3 min). Dompel vervolgens de weefselsecties onder in 95%, 90%, 80% en 70% ethanol (elk 2 minuten), gevolgd door een wasbeurt met gedestilleerd water gedurende 5 minuten.
- Plaats de weefselsecties gedurende 5 minuten in de hematoxylinevlek en differentieer de secties vervolgens gedurende 5 s met zoutzuuralcohol.
- Leg het gedeelte 3 minuten in de eosinekleuringsoplossing.
- Uitdroging, klaring en montage: Dehydrateer de secties op verschillende tijdstippen in verschillende ethanolen (70%, 80%, 90%, 95% en absolute ethanolen), maak ze vervolgens schoon in xyleen I en II, gevolgd door montage met neutrale gom.
- PAS-kleuring:
- Volg de stappen voor het van was ontdoen beschreven in stap 5.2.1 en behandel de sectie gedurende ~8 minuten met de periodieke zuurkleuringsoplossing.
- Spoel de secties 2 minuten af in gedestilleerd water en beits ze vervolgens 15 minuten in het donker met het Schiff-reagens.
- Was de secties 10 minuten in kraanwater nadat u ze hebt behandeld met het Schiff-reagens.
- Bestkleur de secties met hematoxyline gedurende 1 minuut en differentieer ze vervolgens gedurende 30 s met HCl-alcohol. Was de secties opnieuw gedurende 5 minuten in kraanwater om de kern blauw te kleuren.
- Elektronenmicroscopie:
- Fixeer de monsters gedurende 3 uur in 2,5% glutaaraldehyde en spoel ze vervolgens gedurende 3 uur in PBS. Behandel de monsters verder gedurende 3 uur in 1% osminezuur en spoel ze vervolgens opnieuw in PBS gedurende 3 uur.
- Uitdrogen door middel van een gegradueerde reeks alcoholbaden die eindigen in aceton (elke stap duurt in totaal ongeveer 2 uur).
- Infiltreer de monsters met een mengsel van epoxypropaan en epoxyhars (1:1) bij kamertemperatuur (RT) gedurende 2 uur, gevolgd door pure epoxyhars bij 37 °C gedurende nog eens 2 uur.
- Hierna harden de monsters uit en harden ze uit bij steeds hogere temperaturen gedurende een periode van 36 uur voordat ze worden gesneden. Dit proces zorgt ervoor dat het weefsel grondig wordt geïnfiltreerd met de hars, die vervolgens wordt gehard om dun snijden voor elektronenmicroscopie mogelijk te maken.
- Dubbele kleuring met 3% uranylacetaat en loodzuur, en observeer en fotografeer de monsters door elektronenmicroscopie binnen 15 minuten.
OPMERKING: De instellingen voor transmissie-elektronenmicroscopie (TEM) zijn als volgt: een vergroting van 7000x in de modus met hoog contrast (Zoom-1 HC-1), met een versnellende spanning van 80,0 kV op een TEM-systeem.
- HE kleuring:
- Immunohistochemie
- Ontwaxen: Plaats de weefselsecties elk 10 minuten in xyleen I en II.
- Rehydratatie: Rehydrateer de gedewaxte weefselsecties door ze achtereenvolgens gedurende 3 minuten in absolute ethanol I en II te plaatsen, gevolgd door 95%, 90%, 80% en 70% ethanol gedurende elk 2 minuten.
- Antigeenextractie: Dompel de weefselsecties onder in 0,1 M citraat-citroenzuurbufferoplossing onder hoge druk gedurende ongeveer 5 minuten en laat ze vervolgens afkoelen tot RT.
- Blokkeren: Om niet-specifieke binding van de antilichamen te voorkomen, blokkeren door de weefselsecties te incuberen met 5% normaal geitenserum bij ongeveer 37 °C gedurende 30 minuten.
- Incubatie van primaire antilichamen: Voeg de primaire antilichamen p-EGFR (verdund 1:200) en p-MAPK3/1 (verdund 1:200) toe aan weefselsecties en incubeer een nacht bij 4 °C in een bevochtigde kamer.
- Incubatie van secundaire antilichamen: Was de secties driemaal met PBS, voeg vervolgens biotine-gelabelde secundaire antilichamen (verdund in PBS volgens de instructies van de fabrikant) toe aan de secties en incubeer bij 37 °C gedurende 30 minuten.
- Breng mierikswortelperoxidase-geconjugeerde streptavidine-werkoplossing aan op de weefselsecties bij 37 °C, gevolgd door driemaal wassen met fosfaatgebufferde zoutoplossing (PBS).
- Voor DAB-ontwikkeling incubeert u de secties met DAB-ontwikkeloplossing (3 minuten in het donker bij RT), gevolgd door spoelen met gedestilleerd water. DAB fungeert als een chromogeen substraat voor het enzym mierikswortelperoxidase (HRP), dat bij oxidatie bruin wordt.
- Gebruik hematoxyline om de kleuring ongeveer 2 minuten tegen te gaan, differentieer de secties met 1% zoutzuuralcohol gedurende 5 s en was vervolgens onder stromend water om blauw te worden.
- Dehydrateer door de secties achtereenvolgens in een reeks ethanol van lage naar hoge concentratie te plaatsen, helder in xyleen I en II, en monteer de secties met neutrale gom.
OPMERKING: Deze procedure duurt ongeveer 18-24 uur, inclusief nachtelijke incubatie van primaire antilichamen. - Selecteer willekeurig drie visuele velden (200x) voor elke sectie en analyseer de kleuringsresultaten van secties met behulp van beeldanalysesoftware. Image Pro Plus 6.0-software is gebruikt door de onderstaande stappen te volgen.
- Importeer eerst een afbeelding van de sectie in de software.
- Dichtheidscorrectie: Voer een dichtheidscorrectie uit om nauwkeurige resultaten te garanderen.
- Navigeer om > kalibratie > intensiteit te meten > nieuwe > standaard optionele dichtheid > opties > afbeelding. Klik vervolgens op een leeg gebied van de afbeelding om de achtergrondwaarde vast te leggen en bevestig deze door op OK te klikken.
- Meetparameters instellen: Stel meetparameters in voor het berekenen van oppervlakte en geïntegreerde optische dichtheid (IOD).
- Klik op Meten > Tellen/Maten > Meten > Selecteer Maten. Selecteer Gebied(100) en IOD en klik vervolgens op OK.
- Ga naar Opties, vink Donkere achtergrond op voorbeeld aan, 4-Connect Pre-Filter en klik op OK.
- Kleurselectie: Om positiviteit nauwkeurig te bepalen, selecteert u kleuren om bevlekte gebieden te detecteren versus niet-bevlekte gebieden.
- Klik op Kleuren selecteren > histogram op basis > HSI. Pas de H-waarde aan volgens de afbeelding terwijl u S en I ongewijzigd laat, variërend van nul tot de achtergrondwaarde. Bevestig vervolgens door op Sluiten te klikken.
- Gegevensverzameling en berekening: Voer gegevensverzameling en -berekening uit door te klikken op Meten > Gegevensverzamelaar > lay-out, waarbij Naam, Gebied (Som) en IOD (Som) zijn geselecteerd. Klik vervolgens op Count > Collect Now > Data List om de gegevens te exporteren voor verdere analyse of opslag.
OPMERKING: Dit resulteerde in een semi-kwantitatieve meting van de eiwitexpressie in elke sectie in termen van IOD/Gebied, die aangeeft hoeveel eiwit aanwezig is ten opzichte van het totale geanalyseerde gebied.
- Western blotting
- Verkrijg het nierweefsel en snijd het in stukjes. Doe deze stukjes in een centrifugebuisje van 1,5 ml, voeg de voorgekoelde eiwitlyse-oplossing toe (50 mM Tris [pH 7,4],150 mM NaCl, 1% Triton X-100, 1% natriumdeoxycholaat, 0,1% natriumdodecylsulfaat [SDS]) en homogeniseer.
- Laat het 30 minuten op ijs staan en centrifugeer vervolgens 20 minuten op 13400 x g bij 4 °C. Bewaar het resulterende monster in een vriezer van -80 °C.
- Gebruik de Bradford-methode om de eiwitten te kwantificeren.
- Bereid de Coomassie Brilliant Blue werkoplossing voor door reagens en gedestilleerd water te mengen in een verhouding van 1:4.
- Stel drie groepen vast: een blanco, een standaardeiwitgroep en een voorbeeldeiwitgroep. Voeg 3 ml Coomassie Brilliant Blue-werkoplossing toe aan elke groep, samen met fysiologische zoutoplossing voor de blanco groep, standaardeiwit voor de standaardgroep en het geëxtraheerde bovendrijvende eiwit voor de monstergroep.
- Nadat u de mengsels 5 minuten hebt laten staan, meet u de absorptiewaarden met behulp van een ultraviolette spectrofotometer.
- Bereken de monsterconcentratie met behulp van deze formule: Eiwitconcentratie (mg/ml) = (Monsterabsorptiewaarde/Standaard buisabsorptiewaarde) x Standaard eiwitconcentratie x 5.
- Voeg een gelijk volume van 6x laadbuffer toe aan elk eiwitmonster. Kook ze 5 minuten op 100 °C voordat u ze afrekent en bewaar ze in een vriezer van -20 °C tot verder gebruik.
- Voer standaard elektroforese, deppen en blokkeren uit.
- Voer standaard SDS-polyacrylamidegelelektroforese (PAGE) uit met behulp van een 12% oplossende gel. Breng een constante spanning van 100 V aan voor de stapelgel en 120 V voor de oplossende gel totdat het verffront de bodem van de gel bereikt.
- Breng eiwitten over op polyvinylideendifluoride (PVDF)-membranen bij 100 V gedurende 2 uur in een koude kamer bij 4 °C met behulp van een nat overdrachtssysteem.
- Blokkeer na eiwitoverdracht de membranen met 5% magere melk in TBST gedurende 1 uur bij RT.
- Verdunde primaire antilichamen EGFR (1:2.000), p-EGFR (1:2.000), MAPK3/1 (1:2.000), p-MAPK3/1 (1:2.000), Bcl-2 (1:2.000), BAX (1:2.000) en CAPDH (1:5.000) in TBST met 5% BSA. Voeg deze verdunde primaire antilichamen toe en incubeer de membranen een nacht bij 4 °C met zachte beweging.
- Nadat u het membraan driemaal met TBST hebt gewassen, voegt u verdunde secundaire antilichamen toe (1:5.000), gevolgd door incubatie gedurende 1 uur. Voer na de kleurontwikkeling een kwantitatieve analyse uit van de doelbanden met behulp van ImageJ-software.
- qPCR-analyse
- Groeperen: Wijs monsters toe aan groepen - Control, DN, Irbesartan, JWSJS-L, JWSJS-M, JWSJS-H.
- RNA-extractie: Voer weefselhomogenisatie en RNA-extractie uit, gevolgd door chloroformadditie, centrifugatie en RNA-precipitatie volgens de instructies van de fabrikant.
- RNA-precipitatie en wassen: RNA neerslaan met isopropanol en wassen met ethanol.
- RNA-oplosbaarheid: Droog de RNA-pellet en los deze op in DEPC-behandeld water.
- cDNA-synthese: Voer omgekeerde transcriptie uit met behulp van specifieke reactiemengsels volgens de instructies van de fabrikant.
- qPCR-amplificatie: Gebruik specifieke primers voor GAPDH, MAPK3, MAPK1 en EGFR voor qPCR en voer amplificatie uit volgens de instructies van de fabrikant.
De volgorde van de inleiding was als volgt:
GAPDH: F-5'-GCAAGTTCAACGGCACAG-3', R-5'-CTCGCTCCTGGAAGATGG-3';
MAPK3: F-5'-AGATCTGTGATTTTGGCCT-3', R-5'-TCAATGGATTTGGTGTAGC-3';
MAPK1: F-5'-CCTCAAGCCTTCCAACCTC-3', R-5'-GCCCACAGACCAAATATCA-3';
EGFR: F-5'-GGGGATGATTATTTCTG-3, R-5'-ATTTTGGTTTTGATTGG-3'.
6. Statistische methoden
- Voer de analyse uit met behulp van geschikte software (bijv. SPSS) en geef de gemeten gegevens weer als het gemiddelde ± de standaarddeviatie(n). Als de gegevens voldoen aan de criteria van normale verdeling en variantiehomogeniteit, vergelijk dan tussen groepen met behulp van eenrichtings-ANOVA en voer meerdere vergelijkingen uit met de Bonferroni-methode.
- Gebruik de T2-test voor meerdere vergelijkingen als de variantie niet homogeen is. Beschouw P < 0,05 als statistisch significant.
Resultaten
Volgens het protocol werden uiteindelijk 90 actieve ingrediënten van JWSJS verkregen uit de analyse na screening en deduplicatie volgens de gestelde normen van OB en DL. Deze omvatten 20 soorten Hedysarum Multijugum Maxim, 23 soorten Epimrdii Herba, 15 soorten Smilacis Glabrae Rhixoma, 16 soorten Radix Rhei et Rhizome, vier soorten Curcumaelongae Rhizoma, 15 soorten Cicadae Periostracum en zes soorten Bombyx Batryticatus-componenten . Omdat er veel actieve ingrediënten in JWSJS zitten, worden er slechts 20 vermeld (zie tabel 1). Na deduplicatie werden uiteindelijk 396 targets verkregen die overeenkomen met de actieve ingrediënten van JWSJS.
Na het zoeken naar ziektegerelateerde genen werden uiteindelijk 3035 DN-gerelateerde doelgenen verkregen na samenvoeging en deduplicatie. De overeenkomstige doelen van DN werden vergeleken en geanalyseerd met de doelen van de actieve ingrediënten van geneesmiddelen. Het kruispunt werd bepaald, wat resulteerde in 227 kruispuntdoelen van JWSJS en DN. Vervolgens werd een Wayne-diagram getekend (zie figuur 1A). Het "drug-ingredient-target" netwerkdiagram werd gebouwd met behulp van de Cytoscape 3.8.0-software (zie figuur 1B) en er werd topologische analyse uitgevoerd. Elk knooppunt werd gerangschikt van hoog naar laag op basis van de graadwaarde. De top vijf geneesmiddelcomponenten waren quercetine, palmitoleïnezuur, luteoline, kaempferol en naringenine, en de top vijf doelen waren PTGS2, PTGS1, NCoA2, AR en ESR1.
Vervolgens werd een PPI-netwerk ontwikkeld voor JWSJS- en DN-kruispuntdoelen (196 knooppunten en 1714 randen met een gemiddelde gradenwaarde van 17,4). Bovendien werden na drie screenings zeven belangrijke doelen verkregen die de belangrijkste doelen van JWSJS voor DN-behandeling kunnen zijn: MAPK14, TP53, MAPK3, MYC, HIF1A, ESR1 en MAPK1 (zie figuur 1C).
Vervolgens werd GO-verrijkingsanalyse uitgevoerd om te speculeren over de biologische kenmerken van het doelwit van JWSJS bij de behandeling van DN. Onder BP, CC en MF zijn de top tien verrijkte inzendingen uitgezet in figuur 1D. De resultaten tonen aan dat JWSJS celproliferatie, differentiatie en apoptose zou kunnen reguleren door te binden met transcriptiefactoren en eiwitkinasen in membraanvlotten en membraanmicrodomeinen, wat resulteert in een therapeutisch effect op DN. KEGG-routeverrijkingsanalyse werd uitgevoerd op de deelnemende doelen om de mogelijke werkingsroutes van JWSJS in DN te onderzoeken. De top dertig verrijkte paden zijn uitgezet in figuur 1E. De resultaten tonen aan dat JWSJS-behandeling van DN zou kunnen inwerken op 181 signaalroutes, voornamelijk met betrekking tot lipide en atherosclerose, de PI3K-Akt-signaleringsroute, chemische carcinogenese, hepatitis, prostaatkanker, apoptose, de HIF-1-signaleringsroute en de TNF-signaleringsroute.
Om de doelen van de eerste 30 met KEGG verrijkte routes verder te onderzoeken, gebruikten we Cytoscape 3.8.0-software om een KEGG-signaleringsrouterelatienetwerkkaart te construeren voor met JWSJS behandelde DN. MAPK1, MAPK3, EGFR en AKT1 bleken doelen te zijn van meerdere routes die samen werken (zie figuur 1F), wat suggereert dat deze eiwitten een centrale rol kunnen spelen bij het mediëren van de effecten van JWSJS op DN.
Om de potentiële doelen van JWSJS bij de behandeling van DN verder te valideren, hebben we vervolgens drie belangrijke doelen gescreend, MAPK1, MAPK3 en EGFR, met hoge graadwaarden in het PPI-netwerk en het KEGG-signaleringsroutenetwerk. Deze werden moleculair gecoupeerd met quercetine, palmitoleïnezuur en luteoline - de drie belangrijkste componenten van JWSJS voor DN-behandeling. De voorwaarden voor het screenen van PDB-ID zijn als volgt: (1) Afkomstig zijn van mensen; (2) De conformationele resolutie ≤ 2,5Å, d.w.z. zo klein mogelijk; (3) De conformationele sequentie moet zo volledig mogelijk zijn, d.w.z. dat het structurele complex informatie over liganden van kleine moleculen moet bevatten; en (4) de kristallijne pH-waarde moet zo dicht mogelijk bij het normale fysiologische bereik van het menselijk lichaam liggen35. Ten slotte waren de PDB-ID's van MAPK1, MAPK3 en EGFR 4QTA, 4QTB en 7JXQ.
Om de betrouwbaarheid van de AutoDock-software op het dockingsysteem in deze studie36 te verifiëren, hebben we eerst de drie eiwitten van MAPK1, Mapk3 en EGFR opnieuw gekoppeld. De ligandconformatie in de oorspronkelijke kristalstructuur van de drie doeleiwitten werd na het aanmeren gesuperponeerd met de liganden (Figuur 2A). De waarden van de wortel-gemiddelde-kwadraatafwijking (RMSD) tussen de ligandconformatie na docking en de oorspronkelijke kristalstructuur werden vervolgens berekend. De RMSD-waarden waren respectievelijk 1,129, 1,201 en 1,877 Å, allemaal ≤ 2Å. Hieruit bleek dat de dockingmethode betrouwbaar was en kon worden gebruikt voor de volgende moleculaire dockingverificatie. Om het remmend potentieel van kerncomponenten te vergelijken en te verklaren, werden vervolgens de oorspronkelijke liganden van MAPK1, MAPK3 en EGFR als controles gebruikt. De dockinganalyse voorspelde met succes de bindingsenergie tussen luteoline, palmitoleïnezuur en quercetine en de drie kerndoelen. Deze waren allemaal negatief en minder dan -637; zie tabel 2. Merk op dat de moleculaire docking tussen luteoline en MAPK1 de hoogste holtegrootte en de laagste bindingsenergie heeft. Over het algemeen toonden moleculaire dockingresultaten aan dat luteoline, palmitoleïnezuur en quercetine een goede bindingsactiviteit hadden met drie kerndoelen (Figuur 2B,C).
De RMSD wordt gebruikt om de gemiddelde verplaatsingsveranderingen van een geselecteerde groep atomen ten opzichte van een referentiekader te kwantificeren. Ondertussen karakteriseert de RMSF effectief gelokaliseerde veranderingen langs de eiwitketen. De RMSD-grafiek (figuur 2D) laat zien dat de RMSD-waarden van het samengestelde luteoline-MAPK1-complex en quercetine-MAPK3-complex binnen 5 ns zijn gestabiliseerd. Het luteoline-EGFR-complex vertoonde een fluctuerende RMSD variërend van 0-35 ns; deze waarde stabiliseerde zich op 35 ns tot het einde van de MD-simulatie van 100 ns. Alle complexen werkten stabiel op elkaar aan het einde van de 100 ns MD-simulatie. De RMSF-waarde werd beoordeeld op basis van het MD-simulatietraject: atomen in de actieve plaats en de hoofdketen die minimaal fluctueerden, impliceerden een minimale conformatieverandering, wat suggereert dat de genoemde loodverbinding stevig verankerd is in de holte van de bindingszak van het doeleiwit. De RMSF-resultaten toonden beperkte fluctuaties in de complexe structuren.
Ten slotte verifiëren we de bovenstaande resultaten in vivo. We zagen eerst dat het gewicht van ratten in de modelgroep significant afnam en dat GSP, LDL-C, UTP en FBG significant toenamen (P < 0,05). Het lichaamsgewicht van ratten nam significant toe in de irbesartan-groep en elke JWSJS-groep ten opzichte van de modelgroep. GSP, LDL-C, UTP en FBG daalden in verschillende mate (P < 0,05; zie tabel 3).
Vervolgens toonde HE-kleuring aan dat de glomeruli in de normale groep een normale grootte hadden. Ze waren regelmatig en helder van structuur en hadden een glad basaalmembraan, netjes gerangschikte niertubuli en geen infiltratie van ontstekingscellen. In de modelgroep waren de glomeruli hypertrofisch, het basale membraan was verdikt en de mesangiale matrix was verhoogd. Het interstitium werd geïnfiltreerd met ontstekingscellen. De pathologische manifestaties van elke toedieningsgroep werden in verschillende mate verlicht in vergelijking met de modelgroep (zie figuur 3A).
PAS-kleuring toonde aan dat de modelgroep verhoogde glomerulaire volumes, verdikt basale membraan en verhoogde mesangiale matrix had ten opzichte van de normale groep. Deze pathologische manifestaties werden significant verlicht door elke toedieningsgroep (zie figuur 3B). Met behulp van transmissie-elektronenmicroscopie ontdekten we dat het glomerulaire basale membraan in de modelgroep verdikt was ten opzichte van de normale groep. De mesangiale matrix groeide en de voetprocessen van de podocyten werden uitgebreid versmolten. Microscopische manifestaties van ratten in elke toedieningsgroep werden in verschillende mate verlicht ten opzichte van de modelgroep (zie figuur 3C).
Ten slotte werden de expressies van totale EGFR, p-EGFR, MAPK3/1 en p-MAPK3/1 gedetecteerd om te zien of ze veranderden bij met JWSJS behandelde DN-ratten. Er was geen significante verandering in de totale EGFR- en MAPK3/1-expressie in de modelgroepen versus de normale groep. De expressie van p-EGFR, p-MAPK3/1 en BAX nam significant toe en de BCL-2-expressie nam significant af. In vergelijking met de modelgroep was de expressie van p-EGFR, p-MAPK3/1 en BAX significant verminderd, en was de BCL-2-expressie significant verhoogd in verschillende mate in nierweefsels van ratten in elke doseringsgroep (Figuur 3D,E). Dit resultaat werd bevestigd door immunohistochemie (Figuur 3F,G). Deze studie toonde aan dat JWSJS de nieren bij DN-ratten kon beschermen door de expressie van p-EGFR-, p-MAPK3/1-, BAX- en BCL-2-eiwitten te reguleren en celapoptose te verminderen. Bovendien werd qPCR gebruikt om de expressieniveaus van MAPK3-, MAPK1- en EGFR-mRNA in verschillende groepen te beoordelen. Uit de resultaten bleek dat de relatieve expressie in de DN-groep significant hoger was in vergelijking met de controlegroep, evenals de Irbesartan-, JWSJS-L-, JWSJS-M- en JWSJS-H-groepen. Deze bevinding bevestigt de eerste resultaten verder (figuur 3H).
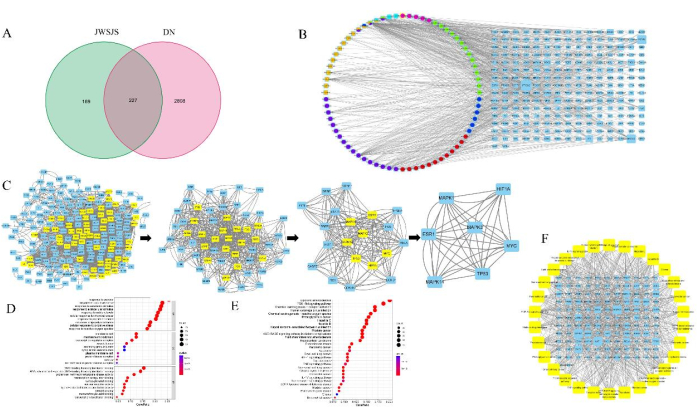
Figuur 1: Netwerkfarmacologie verduidelijkte de potentiële JWSJS-doelen en signaalroutes bij diabetische nefropathie. (A) Venndiagram van de kruisende doelen van JWSJS en diabetische nefropathie. Groen staat voor het aantal therapeutische doelen van JWSJS-componenten en paars staat voor het aantal relevante doelen van DN. Het snijdende deel vertegenwoordigt het aantal kruisende doelen (d.w.z. het aantal doelen van JWSJS voor DN). (B) "Geneesmiddel-ingrediënt-doelwit" netwerkdiagram van JWSJS bij de behandeling van DN. Het lichtblauw vertegenwoordigt de relevante doelen van JWSJS voor DN-behandeling. Fuchsia vertegenwoordigt het actieve ingrediënt van Bombyx Batryticatus. Groen staat voor de actieve ingrediënten van Hedysarum Multijugum Maxim. Donkerblauw staat voor de actieve ingrediënten van Radix Rhei et Rhizome. Rood vertegenwoordigt de actieve ingrediënten van Cicadae Periostracum. Paars staat voor de actieve ingrediënten van Epimrdii Herba. Geel staat voor de actieve ingrediënten van Smilacis Glabrae Rhixoma. Hemelsblauw staat voor de actieve ingrediënten van Curcumaelongae Rhizoma. (C) PPI-netwerk van JWSJS- en DN-kruispuntdoelen. (D) De 10 meest significante genen geïdentificeerd via ontologische analyse van therapiedoelgenen die betrokken zijn bij JWSJS-behandeling van DN. (E) De 30 meest significante genen geïdentificeerd via routeanalyse van therapiedoelgenen die betrokken zijn bij JWSJS-behandeling van DN. (F) Het relatienetwerk van de KEGG-signaleringsroute bij de behandeling van DN door JWSJS. Gele pictogrammen geven signaalroutes aan. Blauwe pictogrammen staan voor actiedoelen. Een grotere grafiek impliceert dat er meer paden op zijn aangesloten. Klik hier om een grotere versie van deze figuur te bekijken.
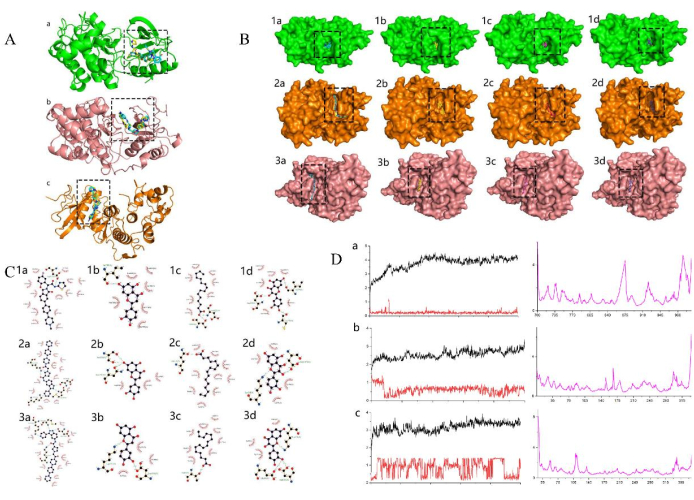
Figuur 2: Visualisatie van moleculaire docking en moleculaire dynamicatrajecten van JWSJS bij de behandeling van diabetische nefropathie. (A) De conformaties van het ligand in de oorspronkelijke kristalstructuur van de drie doeleiwitcomplexen 7JXQ (a), 4QTA (b) en 4QTB (c) worden vergeleken met de conformaties van het ligand na docking. Groen, oranje en roze zijn respectievelijk EGFR-, MAPK1- en MAPK3-doeleiwitten. Goud is het oorspronkelijke ligandmolecuul en blauw is het ligandmolecuul na het aanmeren. (B) 3D moleculaire docking visualisatie van JWSJS bij de behandeling van diabetische nefropathie. Groen, oranje en roze zijn respectievelijk de doeleiwitten 7JXQ, 4QTA en 4QTB. 1a-3a vertegenwoordigt het interactiediagram van 7JXQ, 4QTA en 4QTB met de oorspronkelijke remmer (blauw). 1b-3b vertegenwoordigt het interactiediagram van 7JXQ, 4QTA, 4QTB en luteoline (geel). 1C-3C vertegenwoordigt het interactiediagram van 7JXQ, 4QTA, 4QTB en palmitoleïnezuur (fuchsia). 1D-3D vertegenwoordigt het interactiediagram van 7JXQ, 4QTA, 4QTB en quercetine (paars). (C) 2D moleculaire docking visualisatie van JWSJS bij de behandeling van diabetische nefropathie. 1a-3a vertegenwoordigt het interactiediagram van 7JXQ, 4QTA en 4QTB met de oorspronkelijke remmer. 1b-3b vertegenwoordigt het interactiediagram van 7JXQ, 4QTA, 4QTB en luteoline. 1c-3c vertegenwoordigt het interactiediagram van 7JXQ, 4QTA, 4QTB en palmitoleïnezuur. 1D-3D vertegenwoordigt het interactiediagram van 7JXQ, 4QTA, 4QTB en quercetine. (D) RMSD- en RMSF-analyse van de moleculaire dynamicatrajecten van (a) luteoline en doeleiwit 7JXQ, (b) luteoline en doeleiwit 4QTA, en (c) quercetine en doeleiwit 4QTB-complexen. Klik hier om een grotere versie van deze figuur te bekijken.
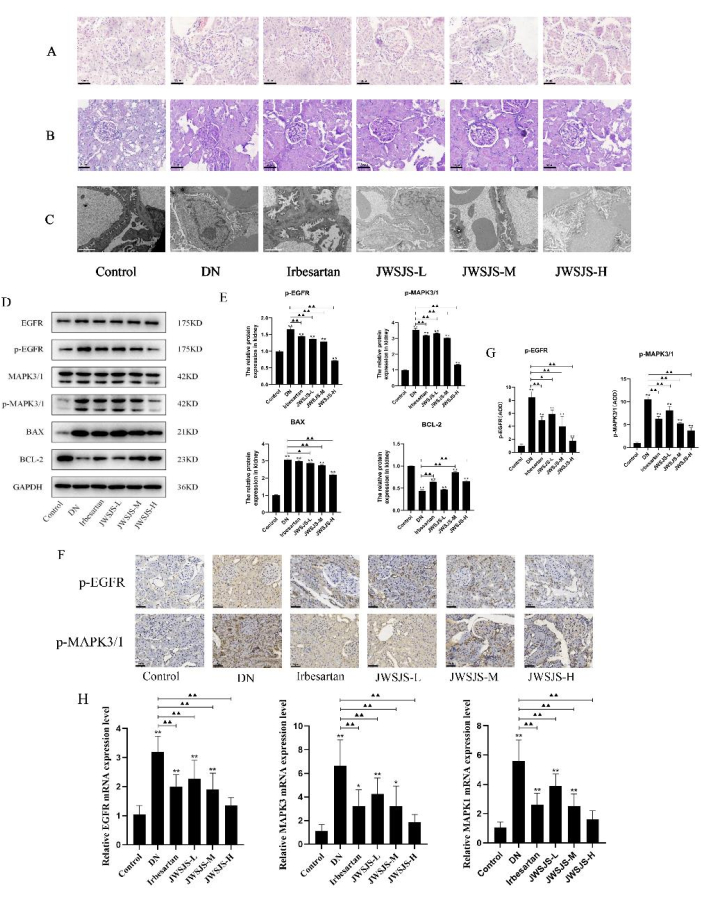
Figuur 3: JWSJS verlicht nierbeschadiging en onderdrukt de activering van de EGFR/MAPK3/1-signaleringsroute in vivo-experimenten . (A) HE-kleuring en (B) periodieke zuur-Schiff (PAS) kleuring van nierweefsel van ratten in verschillende groepen (Vergroting, 200x; n = 10). (C) Transmissie-elektronenmicroscopie van nierweefsel in verschillende groepen ratten (Vergroting, 5000x; n = 3). (D) EGFR, p-EGFR, MAPK3/1, p-MAPK3/1, BAX en BCL-2 in nierweefsel van ratten van diabetici via western blotting (n = 3). (E) Statistische analyse van p-EGFR, p-MAPK3/1, BAX en BCL-2 expressie. (F) Immunohistochemische analyse van p-EGFR EN p-MAPK3/1 expressie in de zes groepen (n = 6). (G) Statistische analyse van p-EGFR EN p-MAPK3/1 expressie. (H) qPCR-analyse van MAPK3-, MAPK1- en EGFR-mRNA-expressie in zes groepen. *P < 0,05 vs. controle. **P < 0,01 vs. controle. ▲P < 0,05 vs. DN. ▲▲P < 0,01 vs. DN. Klik hier om een grotere versie van dit cijfer te bekijken.
Tabel 1: Informatie over enkele actieve ingrediënten van JWSJS. Het geeft details over elk onderdeel en hun kenmerken of eigenschappen. Klik hier om deze tabel te downloaden.
Tabel 2: Tabel met dockingresultaten van kerndoelen en belangrijkste actieve ingrediënten van JWSJS. De tabel geeft de resultaten weer van dockingstudies van kerndoelen en belangrijkste actieve componenten van JWSJS. Deze tabel laat zien hoe deze bestanddelen interageren met hun respectievelijke doelen, wat inzicht kan geven in het werkingsmechanisme van JWSJS. Klik hier om deze tabel te downloaden.
Tabel 3: Effect van JWSJS op lichaamsgewicht en biochemische indexen bij ratten met diabetische nefropathie (uitgedrukt als gemiddelde ± standaarddeviatie, n = 10). Vergeleken met de normale groep: * P < 0,05. Vergeleken met de modelgroep: # P < 0,05. Klik hier om deze tabel te downloaden.
Discussie
Onze studie maakte gebruik van een combinatie van netwerkfarmacologie, moleculaire docking en in vivo diermodellen. Een cruciale stap was de oprichting van het "drug-component-target"-netwerk, dat cruciaal was voor het identificeren van de mogelijke mechanismen van JWSJS bij de behandeling van DN, met name gericht op de interactie met de EGFR/MAPK3/1-signaleringsroute.
Tijdens dit onderzoek hebben we verschillende wijzigingen aangebracht, met name in het moleculaire dockingproces, om de nauwkeurigheid van onze voorspellingen te verbeteren. Het oplossen van problemen was voornamelijk gericht op het optimaliseren van de omstandigheden voor het in vivo diermodel om de relevantie ervan voor menselijke DN te garanderen. Door de belangrijkste actieve componenten en doelen van JWSJS te identificeren, biedt deze studie een theoretische basis voor verder onderzoek en ontwikkeling van JWSJS als een potentieel kandidaat-geneesmiddel voor DN-behandeling.
De studie onderzocht het mogelijke werkingsmechanisme van JWSJS bij het verminderen van renale apoptose bij DN. Moleculaire dockingresultaten toonden aan dat quercetine, palmitoleïnezuur en luteoline regelmatige bindingsactiviteiten hebben aan belangrijke doelen, waaronder MAPK1, MAPK3 en EGFR. We hebben deze doelen geselecteerd voor verder onderzoek vanwege hun gemeenschappelijke werking in meerdere routes. Bij DN-ratten resulteerde de behandeling met JWSJS in een significante afname van de FBG- en GSP-spiegels, verbetering van UTP en LDL-C, gewichtstoename en verbeterde microscopische manifestaties van nierweefsel, wat wijst op de potentiële effectiviteit van JWSJS bij de behandeling van DN.
Apoptose is een kritieke manier van celdood en ontregeling kan het risico op verschillende ziektenverhogen38. Eerdere studies toonden aan dat DN-ratten een verhoogde expressie hadden van apoptose-gerelateerde eiwitten BAX en caspase-3, en een significante toename van het aantal apoptotische cellen in nierweefsel39,40. De resultaten toonden aan dat JWSJS-behandeling deze veranderingen omkeerde, wat suggereert dat het de apoptose van podocyten onder diabetische omstandigheden kan verminderen.
Verder onderzoek naar het mogelijke werkingsmechanisme van JWSJS toonde aan dat het een multi-target en multi-pathway effect heeft op DN. We concentreerden ons op het bestuderen van MAPK1, MAPK3 en EGFR, omdat deze het grootste aantal verrijkingsroutes hadden. De ERK-route, die betrokken is bij verschillende fysiologische en pathologische processen zoals celgroei, proliferatie, differentiatie, apoptose en abnormale steroïdesecretie, is een essentiële route in de MAPK-signaaltransductieroute 13,41,42,43. Het concludeerde dat JWSJS podocytenapoptose redde door de EGFR/MAPK3/1-signaleringsroute te remmen.
We ontdekten ook dat JWSJS de expressie van p-EGFR en p-MAPK3/1 kon reguleren, wat resulteerde in duidelijk verhoogde niveaus van Bcl-2, maar een merkbare neerwaartse regulatie van Bax. Dit leidde op zijn beurt tot verminderde apoptose van niercellen. Vergelijkbare resultaten zijn gevonden in eerdere studies. Chen meldde bijvoorbeeld dat EGFR-deletie in podocyten diabetische nefropathie verzwakte44. Sommige onderzoekers ontdekten dat de EGFR/ERK-route de proliferatie en differentiatie van darmepitheelcellen van varkensbevorderde9. Remming van EGFR kan de expressie van TGF-β en BAX verlagen, waardoor nierfibrose en apoptose worden verbeterd45. Deze bevindingen suggereren dat JWSJS een recept voor traditionele Chinese geneeskunde is met een belangrijke rol in de adjuvante therapie van DN door de EGFR/MAPK3/1-signaalroute te remmen. Er zijn echter verdere studies nodig om het mogelijke werkingsmechanisme van JWSJS bij de behandeling van DN volledig te begrijpen.
Er waren verschillende beperkingen aan deze studie. Ten eerste is het mogelijk dat de afhankelijkheid van diermodellen de menselijke reactie op JWSJS niet volledig repliceert. Bovendien vereisen voorspellingen van netwerkfarmacologie, hoewel inzichtelijk, verdere validatie door middel van experimentele gegevens. Verdere klinische studies op menselijke proefpersonen zijn nodig om de bevindingen te valideren. Ten tweede, hoewel netwerkfarmacologie een nuttig hulpmiddel is voor het analyseren van relaties tussen geneesmiddelen en ziekten, moeten de resultaten met de nodige voorzichtigheid worden geïnterpreteerd, aangezien ze gebaseerd zijn op voorspellingen in plaats van experimentele gegevens. Ten derde blijft het werkingsmechanisme van JWSJS voor de behandeling van DN onduidelijk, en de studie richtte zich alleen op de mogelijke doelen van MAPK1, MAPK3 en EGFR.
De methoden die in deze studie worden gebruikt, kunnen worden toegepast op andere formuleringen van traditionele Chinese geneeskunde, wat mogelijk leidt tot de ontdekking van nieuwe therapeutische opties voor DN en andere complexe ziekten. Verder legt deze benadering de basis voor de integratie van traditionele en moderne geneeskunde in toekomstig farmacologisch onderzoek. Verdere studies zijn nodig om de moleculaire mechanismen die ten grondslag liggen aan de therapeutische effecten van JWSJS volledig op te helderen. Ten slotte onderzocht de studie niet de mogelijke bijwerkingen of toxiciteit van JWSJS, wat belangrijke overwegingen zijn bij de ontwikkeling van een nieuw geneesmiddel. Verder onderzoek is nodig om de veiligheid van JWSJS te evalueren en de klinische toepassing ervan te garanderen.
Samenvattend onderzoekt deze studie voornamelijk het therapeutisch potentieel van Jiawei Shengjiang San voor diabetische nefropathie met behulp van netwerkfarmacologie, moleculaire docking en in vivo diervalidatie. Het benadrukt de procedurele aspecten, met de nadruk op de methodologie die wordt gebruikt om de interacties tussen JWSJS en de EGFR/MAPK3/1-signaleringsroute te begrijpen en hoe deze interacties mogelijk de apoptose van niercellen in DN verminderen.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Deze studie werd ondersteund door het algemene project van de Natural Science Foundation van de provincie Hebei, China (nr. H2019423037).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 2×SYBR Green qPCR Master Mix | Servicebio, Wuhan, China | G3320-05 | |
| 24-h urine protein quantification (UTP) | Nanjing Jiancheng Institute of Biological Engineering | N/A | |
| 3,3'-Diaminobenzidine | Shanghai Huzheng Biotech, China | 91-95-2 | |
| Automatic biochemical analysis instrument | Hitachi, Japan | 7170A | |
| Anhydrous Ethanol | Biosharp, Tianjin, China | N/A | |
| BAX Primary antibodies | Affinity, USA | AF0120 | Rat |
| BCL-2 Primary antibodies | Affinity, USA | AF6139 | Rat |
| BX53 microscope | Olympus, Japan | BX53 | |
| Chloroform Substitute | ECOTOP, Guangzhou, China | ES-8522 | |
| Desmond software | New York, NY, USA | Release 2019-1 | |
| Digital Constant Temperature Water Bath | Changzhou Jintan Liangyou Instrument, China | DK-8D | |
| EGFR Primary antibodies | Affinity, USA | AF6043 | Rat |
| Embed-812 RESIN | Shell Chemical, USA | 14900 | |
| Fasting blood glucose (FBG) | Nanjing Jiancheng Institute of Biological Engineering | N/A | |
| FC-type full-wavelength enzyme label analyser | Multiskan; Thermo, USA | N/A | |
| GAPDH Primary antibodies | Affinity, USA | AF7021 | Rat |
| Glycated serum protein (GSP) | Nanjing Jiancheng Institute of Biological Engineering | N/A | |
| Transmission electron microscope | Hitachi, Japan | H-7650 | |
| Haematoxylin/eosin (HE) staining solution | Servicebio, USA | G1003 | |
| Image-Pro Plus | MEDIA CYBERNETICS, USA | N/A | |
| Real-Time PCR Amplification Instrument | Applied Biosystems, USA | iQ5 | |
| Irbesartan tablets | Hangzhou Sanofi Pharmaceuticals | N/A | |
| Isopropanol | Biosharp, Tianjin, China | N/A | |
| JWSJS granules | Guangdong Yifang Pharmaceutical | N/A | |
| Kodak Image Station 2000 MM imaging system | Kodak, USA | IS2000 | |
| Low-density cholesterol (LDL-C) | Nanjing Jiancheng Institute of Biological Engineering | N/A | |
| MAPK3/1Primary antibodies | Affinity, USA | AF0155 | Rat |
| Medical Centrifuge | Hunan Xiangyi Laboratory Instrument Development, China | TGL-16K | |
| Mini trans-blot transfer system | Bio-Rad, USA | N/A | |
| Mini-PROTEAN electrophoresis system | Bio-Rad, USA | N/A | |
| NanoVue Plus Spectrophotometer | Healthcare Bio-Sciences AB, Sweden | 111765 | |
| p-EGFR Primary antibodies | Affinity, USA | AF3044 | Rat |
| Periodic acid-Schiff (PAS) staining solution | Servicebio, USA | G1008 | |
| p-MAPK3/1 Primary antibodies | Affinity, USA | AF1015 | Rat |
| Secondary antibodies | Santa Cruz, USA | sc-2357 | Rabbit |
| Streptozotocin | Sigma, USA | S0130 | |
| SureScript First-Strand cDNA Synthesis Kit | GeneCopeia, USA | QP056T | |
| TriQuick Reagent | Solarbio, Beijing, China | R1100 | |
| Ultra-Clean Workbench | Suzhou Purification Equipment, China | SW-CJ-1F |
Referenties
- Viigimaa, M., Sachinidis, A., Toumpourleka, M., Koutsampasopoulos, K., Alliksoo, S., Titma, T. Macrovascular complications of Type 2 diabetes mellitus. Curr Vasc Pharmacol. 18 (2), 110-116 (2020).
- Umanath, K., Lewis, J. B. Update on diabetic nephropathy: Core Curriculum 2018. Am J Kidney Dis. 71 (6), 884-895 (2018).
- Han, W., et al. Huangkui capsule alleviates renal tubular epithelial-mesenchymal transition in diabetic nephropathy via inhibiting NLRP3 inflammasome activation and TLR4/NF-kappaB signaling. Phytomedicine. 57, 203-214 (2019).
- Giralt-Lopez, A., et al. Revisiting experimental models of diabetic nephropathy. Int J Mol Sci. 21 (10), 3587(2020).
- Lu, Z., Zhong, Y., Liu, W., Xiang, L., Deng, Y. the efficacy and mechanism of Chinese herbal medicine on diabetic kidney disease. J Diabetes Res. 2019, 2697672(2019).
- Niu, H., et al. The therapeutic mechanism of PuRenDan for the treatment of diabetic nephropathy: Network pharmacology and experimental verification. J Ethnopharmacol. 293, 115283(2022).
- Gao, F., Wang, Z., Yang, B., Tan, J. Mechanism of Jiawei Shengjiang San in the treatment of membranous nephropathy based on network pharmacology. Pharmacology and Clinics of Chinese Materia Medica. 37 (5), 132-138 (2021).
- Li, W., Xie, M. Analysis of composing and application rule in the evolution of Shengjiang San. Journal of Beijing University of Traditional Chinese Medicine. 44 (10), 894-898 (2021).
- Zhang, Y., et al. Mechanism of Jiawei Shengjiang powder in inhibiting renal inflammation and fibrosis in diabetic rats based on TLR4/NF-kappaB and Raf/MEK pathways. Pharmacology and Clinics of Chinese Materia Medica. 38 (5), 20-27 (2022).
- Zhao, L., et al. Pharmacodynamic mechanism of Yishen Tongluo Formula in treatment of diabetic kidney disease based on network pharmacology and verification of key regulation pathway. Journal of Beijing University of Traditional Chinese Medicine. 45 (8), 824-834 (2022).
- Zhang, J., Liang, R., Wang, L., Yang, B. Effects and mechanisms of Danshen-Shanzha herb-pair for atherosclerosis treatment using network pharmacology and experimental pharmacology. J Ethnopharmacol. 229, 104-114 (2019).
- Chen, L., et al. Network pharmacology-based strategy for predicting active ingredients and potential targets of Yangxinshi tablet for treating heart failure. J Ethnopharmacol. 219, 359-368 (2018).
- Zhu, M., Qin, Y. C., Gao, C. Q., Yan, H. C., Wang, X. Q. l-Glutamate drives porcine intestinal epithelial renewal by increasing stem cell activity via upregulation of the EGFR-ERK-mTORC1 pathway. Food Funct. 11 (3), 2714-2724 (2020).
- Ding, Z., et al. Systems pharmacology reveals the mechanism of activity of Ge-Gen-Qin-Lian decoction against LPS-induced acute lung injury: A novel strategy for exploring active components and effective mechanism of TCM formulae. Pharmacol Res. 156, 104759(2020).
- Pinzi, L., Rastelli, G. Molecular docking: Shifting paradigms in drug discovery. Int J Mol Sci. 20 (18), 4331(2019).
- Kilkenny, C., Browne, W. J., Cuthill, I. C., Emerson, M., Altman, D. G. Improving bioscience research reporting: the ARRIVE guidelines for reporting animal research. PLoS Biol. 8 (6), e1000412(2010).
- National Research Council (US) Committee for the Update of the Guide for the Care and Use of Laboratory Animals. Guides for the Care and Use of Laboratory Animals. , National Academies Press (US). Washington (DC. (2011).
- Ru, J., et al. TCMSP: a database of systems pharmacology for drug discovery from herbal medicines. J Cheminform. 6, 13(2014).
- Xu, X., et al. A novel chemometric method for the prediction of human oral bioavailability. Int J Mol Sci. 13 (6), 6964-6982 (2012).
- Tao, W., et al. Network pharmacology-based prediction of the active ingredients and potential targets of Chinese herbal Radix Curcumae formula for application to cardiovascular disease. J Ethnopharmacol. 145 (1), 1-10 (2013).
- Traditional Chinese Medicine and Chemical Composition databases in Chemistry Database[DB/OL]. , Available from: http://www.organchem.csdb.cn (2021).
- Halladay, C. W., Trikalinos, T. A., Schmid, I. T., Schmid, C. H., Dahabreh, I. J. Using data sources beyond PubMed has a modest impact on the results of systematic reviews of therapeutic interventions. J Clin Epidemiol. 68 (9), 1076-1084 (2015).
- Daina, A., Michielin, O., Zoete, V. SwissADME: a free web tool to evaluate pharmacokinetics, drug-likeness and medicinal chemistry friendliness of small molecules. Sci Rep. 7, 42717(2017).
- UniProt, C. Reorganizing the protein space at the Universal Protein Resource (UniProt). Nucleic Acids Res. 40 (D1), D71-D75 (2012).
- Stelzer, G., et al. The GeneCards Suite: From gene data mining to disease genome sequence analyses. Curr Protoc Bioinformatics. 54, 1-33 (2016).
- Amberger, J. S., Hamosh, A. Searching Online Mendelian Inheritance in Man (OMIM): A knowledgebase of human genes and genetic phenotypes. Curr Protoc Bioinformatics. 58, 1-12 (2017).
- Zhou, Y., et al. Therapeutic target database update 2022: facilitating drug discovery with enriched comparative data of targeted agents. Nucleic Acids Res. 50 (D1), D1398-D1407 (2022).
- Whirl-Carrillo, M., et al. Pharmacogenomics knowledge for personalized medicine. Clin Pharmacol Ther. 92 (4), 414-417 (2012).
- Law, V., et al. DrugBank 4.0: shedding new light on drug metabolism. Nucleic Acids Res. 42 (D1), D1091-D1097 (2014).
- Shannon, P., et al. Cytoscape: a software environment for integrated models of biomolecular interaction networks. Genome Res. 13 (11), 2498-2504 (2003).
- Xu, J., et al. Pharmacological mechanisms underlying the neuroprotective effects of Alpinia oxyphylla Miq. on Alzheimer's disease. Int J Mol Sci. 21 (6), 2071(2020).
- Tang, Y., Li, M., Wang, J., Pan, Y., Wu, F. X. CytoNCA: a cytoscape plugin for centrality analysis and evaluation of protein interaction networks. Biosystems. 127, 67-72 (2015).
- Yu, G., Wang, L. G., Han, Y., He, Q. Y. clusterProfiler: an R package for comparing biological themes among gene clusters. OMICS. 16 (5), 284-287 (2012).
- Trott, O., Olson, A. J. AutoDock Vina: improving the speed and accuracy of docking with a new scoring function, efficient optimization, and multithreading. J Comput Chem. 31 (2), 455-461 (2010).
- Yang, X., et al. Rational selection of the 3D structure of biomacromolecules for molecular docking studies on the mechanism of endocrine disruptor action. Chem Res Toxicol. 29 (9), 1565-1570 (2016).
- Diller, D. J., Merz, K. M. throughput docking for library design and library prioritization. Proteins. 43 (2), 113-124 (2001).
- Hsin, K. Y., Ghosh, S., Kitano, H. Combining machine learning systems and multiple docking simulation packages to improve docking prediction reliability for network pharmacology. PLoS One. 8 (12), e83922(2013).
- Godse, N. R., et al. TMEM16A/ANO1 inhibits apoptosis via downregulation of Bim expression. Clin Cancer Res. 23 (23), 7324-7332 (2017).
- Ilhan, I., et al. Irbesartan decreased mitochondrial stress-related apoptosis in cisplatin-induced acute kidney injury via regulating BCL-2/BAX signaling. Mol Biol Rep. 49 (7), 6125-6133 (2022).
- Lee, M., et al. Protective effect of hydroxysafflor yellow a on nephropathy by attenuating oxidative stress and inhibiting apoptosis in induced Type 2 diabetes in rat. Oxid Med Cell Longev. 2020, 7805393(2020).
- Schlessinger, J. Ligand-induced, receptor-mediated dimerization and activation of EGF receptor. Cell. 110 (6), 669-672 (2002).
- Gu, X., Chu, L., Kang, Y. Angiogenic factor-based signature predicts prognosis and immunotherapy response in non-small-cell lung cancer. Front Genet. 13, 894024(2022).
- Chu, L., et al. Age-related changes in endogenous glucocorticoids, gonadal steroids, endocannabinoids and their ratios in plasma and hair from the male C57BL/6 mice. Gen Comp Endocrinol. 301, 113651(2021).
- Chen, J., Chen, J. K., Harris, R. C. EGF receptor deletion in podocytes attenuates diabetic nephropathy. J Am Soc Nephrol. 26 (5), 1115-1125 (2015).
- Skibba, M., et al. New EGFR inhibitor, 453, prevents renal fibrosis in angiotensin II-stimulated mice. Eur J Pharmacol. 789, 421-430 (2016).
Herprints en machtigingen
