We beschrijven een methode om te bestuderen hoe pH reageert op omgevingssignalen in de glycosomen van de bloedbaanvorm van Afrikaanse trypanosomen. Deze aanpak omvat een pH-gevoelige erfelijke eiwitsensor in combinatie met flowcytometrie om de pH-dynamiek te meten, zowel als een tijdverlooptest als in een high-throughput screen-formaat.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Meten van dynamische glycosomale pH-veranderingen bij levende Trypanosoma brucei
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Het glucosemetabolisme is van cruciaal belang voor de Afrikaanse trypanosoom, Trypanosoma brucei, als een essentieel metabolisch proces en regulator van de ontwikkeling van parasieten. Er is weinig bekend over de cellulaire reacties die worden gegenereerd wanneer de glucosespiegels in de omgeving veranderen. Bij zowel bloedbaan- als procyclische parasieten (insectenstadium) herbergen glycosomen het grootste deel van de glycolyse. Deze organellen worden snel verzuurd als reactie op glucosedeprivatie, wat waarschijnlijk resulteert in de allosterische regulatie van glycolytische enzymen zoals hexokinase. In eerder werk was het lokaliseren van de chemische sonde die werd gebruikt om pH-metingen uit te voeren een uitdaging, waardoor het nut ervan in andere toepassingen werd beperkt.
Dit artikel beschrijft de ontwikkeling en het gebruik van parasieten die glycosomaal gelokaliseerd pHluorin2 tot expressie brengen, een erfelijke proteïne pH-biosensor. pHluorin2 is een ratiometrische pHluorin-variant die een pH-(zuur)-afhankelijke afname van de excitatie vertoont bij 395 nm en tegelijkertijd een toename van de excitatie oplevert bij 475 nm. Transgene parasieten werden gegenereerd door het open leesframe pHluorin2 te klonen in de trypanosoomexpressievector pLEW100v5, waardoor induceerbare eiwitexpressie in beide levenscyclusfasen mogelijk werd. Immunofluorescentie werd gebruikt om de glycosomale lokalisatie van de pHluorin2-biosensor te bevestigen, waarbij de lokalisatie van de biosensor werd vergeleken met het glycosomale residente eiwit aldolase. De reactiesnelheid van de sensor werd gekalibreerd bij verschillende pH-waarden door cellen te incuberen in een reeks buffers die in pH varieerden van 4 tot 8, een benadering die we eerder hebben gebruikt om een op fluoresceïne gebaseerde pH-sensor te kalibreren. Vervolgens hebben we pHluorin2-fluorescentie gemeten bij 405 nm en 488 nm met behulp van flowcytometrie om de glycosomale pH te bepalen. We valideerden de prestaties van de levende transgene parasieten die pHluorin2 tot expressie brachten, waarbij we de pH in de loop van de tijd volgden als reactie op glucosedeprivatie, een bekende trigger van glycosomale verzuring bij PF-parasieten. Deze tool heeft een reeks potentiële toepassingen, waaronder mogelijk worden gebruikt bij het screenen van geneesmiddelen met een hoge doorvoer. Naast de glycosomale pH kan de sensor worden aangepast aan andere organellen of worden gebruikt in andere trypanosomatiden om de pH-dynamiek in de levende celomgeving te begrijpen.
Inleiding
Parasitaire kinetoplastiden zijn, net als de meeste levende organismen, afhankelijk van glucose als een fundamenteel onderdeel van het centrale koolstofmetabolisme. Deze groep omvat medisch belangrijke organismen, zoals de Afrikaanse trypanosoom, Trypanosoma brucei; de Amerikaanse trypanosoom, T. cruzi; en parasieten van het geslacht Leishmania. Het glucosemetabolisme is van cruciaal belang voor de groei van parasieten in de pathogene levenscyclusstadia. Bij gebrek aan glucose sterft bijvoorbeeld de bloedbaanvorm (BSF) van het Afrikaanse trypanosoom snel af. Met name glycolyse dient als de enige bron van ATP tijdens dit stadium van infectie1. Leishmania-parasieten zijn eveneens afhankelijk van glucose in de menselijke gastheer, waarbij de levenscyclusfase van amastigote die zich in de macrofagen van de gastheer bevindt, afhankelijk is van deze koolstofbron voor groei2.
Hoewel deze parasieten verschillende levensstijlen hebben waarbij verschillende insectenvectoren betrokken zijn, hebben ze veel overeenkomsten in de manier waarop ze reageren op en glucose consumeren. Deze parasieten lokaliseren bijvoorbeeld de meeste glycolytische enzymen in gemodificeerde peroxisomen die glycosomen worden genoemd. Dit kinetoplastid-specifieke organel is verwant aan peroxisomen van zoogdieren op basis van geconserveerde biosynthetische mechanismen en morfologie 3,4,5,6.
De compartimentering van de meeste enzymen van de glycolytische route in het glycosoom biedt parasietspecifieke manieren om de route te reguleren. Met behulp van een chemische pH-sonde hebben we vastgesteld dat nutriëntendeprivatie een snelle verzuring van procyclische vorm (PF) parasietglycosomen veroorzaakt, wat resulteert in veranderde glycolytische enzymactiviteit door blootstelling van een allosterische regulatorbindingsplaats op het belangrijkste glycolytische enzym hexokinase 7,8. In ons vorige werk had de chemische sonde een constante toevoer nodig voor gebruik, waardoor het nut ervan in andere toepassingen werd beperkt. Bovendien beperkten uitdagingen om de sondeverdeling in het glycosoom in de BSF te handhaven het nut van de benadering voor het onderzoeken van de glycosomale pH in die levensfase.
In deze studie hebben we de fluorescerende eiwitbiosensor pHluorin2 gebruikt om de glycosomale pH-verandering in BSF T. brucei te volgen als reactie op omgevingssignalen, waaronder glucose-uithongering9 (Figuur 1). De resultaten van dit werk suggereren dat BSF T. brucei glycosomen snel verzuurt als reactie op uithongering op een omkeerbare manier, vergelijkbaar met reacties die we hebben waargenomen bij PF-parasieten. We verwachten dat deze biosensor ons begrip van glycolytische regulatie in T. brucei en verwante parasieten zal verbeteren.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Het gebruik van T. brucei brucei 90-13 BSF-trypanosomen, een monomorfe parasietlijn, vereist dat rekening wordt gehouden met de veiligheid, aangezien ze worden beschouwd als organismen van risicogroep 2 die moeten worden behandeld in faciliteiten van bioveiligheidsniveau 2.
1. Trypanosoomcultuur en transfectie
- Kweek T. brucei brucei 90-13 BSF trypanosomen in HMI-9 medium aangevuld met 10% warmte-geïnactiveerde FBS en 10% Nu-Serum bij 37 °C in 5% CO210.
OPMERKING: Om de kweek gezond te houden, moet u de celdichtheid tussen 2 × 10⁴ en 5 × 10⁶ cellen/ml houden. - Klonen van pHluorin2-PTS1 in pLEW100v5
- Synthetiseer het pHluorin2 open leesframe commercieel om het gen te verkrijgen met een 3'-extensie die codeert voor een twee glycinelinker gevolgd door het tripeptide AKL, een PTS1-lokalisatietag.
- Kloon dit construct in de induceerbare trypanosoomexpressievector pLEW100v5 door restrictie-digest. Dubbelverteer zowel de kloonvector die pHluorin2-PTS1 als pLEW100v5 bevat met behulp van HindIII en BamHI11. Voer een opruimstap uit, bij voorkeur door middel van agarosegelzuivering, om restrictie-enzymen, de ongewenste kloonvectorruggengraat en het weggesneden luciferase-genbevattende fragment te verwijderen.
- Maak het pHluorin2-dragende inzetstuk los in verteerd pLEW100v5 met T4 DNA-ligase12. (zie aanvullende figuur S1 voor een schema voor klonen).
- Sequentie van het plasmide door middel van sequentiebepaling van het hele plasmide van de volgende generatie om te controleren of het inzetstuk en de vector correct zijn geligeerd en of er tijdens het kloonproces geen mutaties worden geïntroduceerd in het pHluorin2-PTS1-gen.
OPMERKING: De volledige plasmidesequentie is ingediend bij Addgene.org en heeft #83680 toegewezen gekregen. - Lineariseer 20 μg van het plasmide door vertering met 40 eenheden NotI; transfecteer vervolgens in BSF 90-13-parasieten via nucleofectie met behulp van de menselijke T-celkit waarnaar wordt verwezen (zie Tabel met materialen). Selecteer voor stabiele integratie zoals beschreven door Burkard et al.13.
2. Immunofluorescentie-colokalisatie van pHlourin2-PTS1
- Bereid microscopieglaasjes voor door ze gedurende 10 minuten te behandelen met poly-L-lysine 0,1% (m/v) in H2O. Na verwijdering van de poly-L-lysine-oplossing, was het objectglaasje eenmaal met PBS.
- Om pHluorin2-PTS1-expressie te induceren, behandelt u cellen 24 uur voor de oogst 2 × 10⁵ cellen/ml met tetracycline of doxycycline (1 μg/ml). Pellet 2 × 10⁶ ouderlijke en geïnduceerde pLEWpHluorin2-PTS1 (pHL) parasieten door centrifugeren (kamertemperatuur [RT], 10 min, 1.000 × g) en eenmaal wassen met PBS.
- Resuspendeer de cellen in 200 μl vers bereide 2% paraformaldehyde in PBS gemaakt van in de handel geleverde 16% EM-oplossing. Breng de cellen in het fixeermiddel aan op het objectglaasje en laat de cellen 30 minuten bezinken. Was de aangehechte cellen 2x met wasoplossing (0,1% normaal geitenserum in PBS).
- Breng de permeabilisatieoplossing (0,5% Triton X-100 in PBS) aan op de cellen en incubeer gedurende precies 30 minuten. Verwijder de permeabilisatieoplossing en was eenmaal met ruime hoeveelheden wasoplossing.
- Breng de blokoplossing aan (10% normaal geitenserum en 0,1% Triton X-100 in PBS) en incubeer gedurende 30 minuten.
- Verdun de tegen T. brucei aldolase 1:500 opgewekte antisera in blokoplossing en breng deze aan op de cellen14. Incubeer gedurende 1 uur bij RT. Was de glaasjes 5x gedurende 3-5 min met wasoplossing.
- Verdun geit anti-konijn Alexa fluor 568 1:1.000 in blokoplossing en breng aan op de cellen. Incubeer gedurende 1 uur bij RT. Was de glaasjes 5x gedurende 3-5 min met wasoplossing.
- Breng montagemedium aan en plak een dekglaasje op de slede.
- Beeld de cellen af met een 100x objectief (NA 1.4-0.7) en analyseer de beelden met behulp van ImageJ. Voer de colokalisatieanalyse van Pearson uit met behulp van de 'Coloc 2' plug-in voor ImageJ. Zie aanvullende figuur S2 voor een veld met representatieve cellen. )
- Om dit te voltooien, voegt u het afbeeldingsbestand toe aan Fiji en selecteert u Afbeeldingen.
- Pas de helderheid en het contrast voor elk kanaal aan tot een punt waarop geen achtergrond zichtbaar is.
- Wijzig afbeeldingen van 16-bits naar 8-bits, voeg de afbeeldingen samen en snijd ze vervolgens bij tot een enkele cel met gesplitste kanalen.
- Selecteer onder Analyseren en colokalisatie de Coloc2 plug-in. Selecteer aldolase (het rode kanaal) als kanaal 1 en pHL (het groene kanaal) als kanaal 2 en klik op OK om de berekening van de correlatie van Pearson te starten.
3. Monstervoorbereiding voor flowcytometrie
- Induceer pHL-cellen met tetracycline of doxycycline (1 μg/ml) gedurende een nacht.
- Pelleteer de cellen (~4 × 10⁷ pHL en ~1 × 10⁶ parentaal) door centrifugeren (RT, 10 min, 1.000 × g). Verwijder het supernatans en resuspendeer de cellen in 1 ml PBS, met of zonder 10 mM glucose, afhankelijk van of het monster uitgehongerd of niet-uitgehongerd is. Voor tijdverlooptests, resuspenderen in PBS aangevuld met 10 mM glucose om te voorkomen dat de cellen verhongeren totdat de wasbeurten zijn voltooid. Voor de high-throughput screen (HTS)-test, resuspenderen in PBS zonder glucose om overdracht van glucose te minimaliseren; Herhaal de wasbeurten nog twee keer.
- Centrifugeer de cellen voor een vierde keer, verwijder het supernatant en resuspendeer de celpellet in PBS, PBS plus 5 mM glucose of PBS plus 10 mM glucose, afhankelijk van de behandeling. Vul de monsters aan met 1 μg/ml propidiumjodide (PI) of 100 nM thiazoolrood (TR) voor de bepaling van levend/dood. Breng elk monster over in buisjes van 5 ml die compatibel zijn met de flowcytometer.
4. Flowcytometrie
OPMERKING: Bereid het experiment voor op een flowcytometer met de volgende lasers: 405 nm (violet), 488 nm (blauw) en 561 nm (geel) of 638 nm (rood). Zie aanvullende tabel S1 voor algemene namen voor kanalen die hieronder worden besproken.
- Gebruik voor het meten van pHL-fluorescentie de kanalen KO525 (VL2-H, excitatie 405 nm, emissie 542/27 nm) en FITC (BL1-H, excitatie 488 nm, emissie 530/30 nm). Om levende cellen van dode cellen te onderscheiden, gebruikt u PI of TR; meet PI op het YL2-H-kanaal (excitatie 561 nm, emissie 620/25 nm). Meet TR op het RL1-H-kanaal (638 nm excitatie, 660/10 BP).
- Om het experiment in te stellen op de flowcytometersoftware, maakt u de volgende plots: 1) YL2-H-kanaalhistogram (bij gebruik van PI) of een RL1-H-kanaalhistogram (bij gebruik van TR), 2) FSC-A versus SSC-A-puntplot, 3) FSC-A versus FSC-H-puntdiagram en 4) BL1-H versus VL2-H-kanaaldiagram.
- Plaats eerst de ongekleurde WT-regelaar (ouderlijke cellijn) op de monsterinjectiepoort (SIP) en breng de tafel op zijn plaats. Begin met het verzamelen van gegevens over de cytometer met het laagste debiet om tijd te geven om de nodige aanpassingen te maken. Om te voorkomen dat u vals puin en dode cellen scoort, begint u 5 s nadat de monsterverwerving is begonnen, met het opnemen van gebeurtenissen.
- Pas de YL2- of RL1-spanning aan zodat de hoofdpiek binnen 103-10 4 relatieve fluorescentie-intensiteitseenheden (RFI) ligt. Pas FSC- en SSC-spanningen aan zodat >90% van de gebeurtenissen op de dot plot past. Pas de FSC-drempel aan om de puinpopulatie uit te sluiten, maar niet de waarschijnlijke cellen.
- Pas de VL2- en BL1-kanalen zo aan dat de primaire piek binnen 103-10 4 RFI-eenheden ligt voor de ongekleurde WT-regeling.
- Plaats het eerste monster met geïnduceerde pHL gekleurd met PI of TR op de SIP en breng de tafel op zijn plaats. Begin met het verzamelen van gegevens met het laagste debiet en observeer zorgvuldig de gebeurtenissen in elk perceel. Zorg ervoor >90% van de gebeurtenissen zich in elke plot bevinden en dat er geen gebeurtenissen zijn die de VL2-H- en BL1-H-kanalen verzadigen.
- Ga verder met het uitvoeren van de monsters. Zorg ervoor dat u ten minste 10.000 gebeurtenissen per monster registreert.
- Sla de gegevens van de monsters op in .fcs-bestandsindeling en exporteer ze voor analyse.
5. Gegevensanalyse van flowcytometrieresultaten
OPMERKING: Deze workflow voor gegevensanalyse maakt gebruik van FlowJo-software. Als andere flowcytometrie-analysesoftware wordt gebruikt, blijf dan de onderstaande belangrijke stappen volgen met behulp van software-geschikte tools. Om de plots en gating te visualiseren, zie Aanvullende figuur S3 en aanvullende figuur S4.
- Open een nieuwe lay-out en open de .fcs-bestanden die in stap 4.3 zijn verkregen. Sleep de .fcs-bestanden naar het lay-outvenster.
- Poort voor levende cellen.
- Dubbelklik op het ongekleurde WT-besturingselement om een venster voor dit voorbeeld te openen.
- Bekijk de gegevens als een histogram op het YL2-H-kanaal (bij gebruik van PI) of RL2-H (bij gebruik van TR). Schakel tussen dit en monsters die zijn gekleurd met de levensvatbaarheidskleurstof om de levende en dode populaties te identificeren.
OPMERKING: Alle voorvallen moeten ongekleurd zijn, aangezien er geen levensvatbaarheidskleurstof aan dit monster is toegevoegd. - Creëer een bisectorale poort die de levende en dode populaties scheidt; noem de linker poort Live en de rechter poort Dood. Pas deze poort toe op alle monsters en schakel vervolgens tussen monsters om ervoor te zorgen dat deze poort op de juiste manier wordt getekend voor alle monsters. Pas de poort indien nodig aan.
- Poort voor de cellen.
- Dubbelklik op de onbevlekte WT-besturing op de Live-poort om gebeurtenissen in die poort te bekijken. Verander de x-as van de puntplot in FSC-A en de y-as in SSC-A.
- Gebruik het gereedschap polygoonpoort om een poort rond de celpopulatie te tekenen en deze de naam Cellen te geven. Zorg ervoor dat u puin/stervende cellen (meestal helemaal links en onderaan de stiptekening) en aggregaten (uiterst rechts en bovenaan de stiptekening) uitsluit.
- Breng deze poort aan onder de Live-poort voor alle monsters. Schakel tussen monsters om ervoor te zorgen dat de poort de waarschijnlijke celpopulatie voor alle monsters omvat en breng de nodige aanpassingen aan. Zorg ervoor dat u de poort opnieuw op alle monsters aanbrengt nadat u deze hebt gewijzigd.
OPMERKING: De verdeling van de celpopulatie verandert merkbaar tussen uitgehongerde en niet-uitgehongerde omstandigheden op FSC versus SSC; zorg ervoor dat de celpoort de celpopulatie onder alle omstandigheden omvat.
- Poort voor afzonderlijke cellen om de kwaliteit van pH-metingen te verhogen.
- Dubbelklik op de ongekleurde WT-besturing op de celpoort om de gebeurtenissen in die poort te bekijken. Verander de x-as van de puntplot in FSC-A en de y-as in FSC-H.
- Zoek naar een diagonale verdeling van enkele cellen op deze stippengrafiek met doubletten die een secundaire populatie vormen rechtsonder van de singletpopulatie (zie aanvullende figuur S1 derde plot). Teken met behulp van het gereedschap polygoonpoort een poort rond de singletgebeurtenissen met uitzondering van de doubletpopulatie. Noem deze poort Singlets.
- Pas de Singlets-poort toe onder de Celpoort voor alle monsters. Nogmaals, schakel tussen steekproeven om ervoor te zorgen dat de poort de doubletpopulatie correct uitsluit en tegelijkertijd de singletpopulatie opneemt. Pas indien nodig aan.
- Poort voor fluorescerende pHL-cellen.
- Dubbelklik op het ongekleurde WT-controlemonster op de Singlets-poort om een puntplot voor die populatie te openen. Verander de x-as in BL1-H en de y-as in VL2-H.
- De pH-sensor pHluorin2 is fluorescerend in zowel VL2 als BL1. Gebruik het gereedschap polygoonpoort om een diagonaal gevormde poort te tekenen die zich uitstrekt naar boven en rechts weg van de autofluorescerende populatie linksonder in de punttekening. Noem deze poort pHL+.
- Breng de pHL+ gate aan onder de Singlets gate voor alle samples. Schakel over naar een pHL-monster en pas de poort aan om gebeurtenissen op te nemen met een grotere fluorescentie-intensiteit in zowel VL2-H als BL1-H dan de WT-regeling. Zorg ervoor dat deze poort deze fluorescerende populatie voor alle monsters omvat, aangezien de positie van deze populatie zal verschuiven naarmate de glycosomale pH verandert.
OPMERKING: Deze kleine maar zichtbare verschuiving in de pHL+-populatie is te wijten aan pH-afhankelijke veranderingen in het excitatiespectrum van de fluorofoor.
- Exporteer de statistieken.
- Klik op Tabel Editor | Balk bewerken | Kolom toevoegen om nieuwe statistieken toe te voegen om te exporteren.
OPMERKING: Kies voor elke statistiek die u wilt exporteren de betreffende statistiek en uit welke populatie u deze wilt exporteren. Zorg ervoor dat u de juiste parameter kiest voor toepasselijke statistieken, zoals Mediaan. Laat het monster ongewijzigd. - Voeg kolommen toe met de volgende statistieken: Totaal (niet-gedateerd) aantal, pHL+ aantal, Live frequentie van totaal (percentage op basis van het totale aantal gebeurtenissen), pHL+ frequentie van bovenliggende waarde (percentage op basis van bovenliggende poort), pHL+ mediaan VL2-H en pHL+ mediaan BL1-H.
- Klik op de Tabeleditor en wijzig de volgende exportinstellingen: Weergeven in Naar bestand en Tekst naar CSV en kies vervolgens de bestandsbestemming en -naam. Klik op Tabel maken.
- Klik op Tabel Editor | Balk bewerken | Kolom toevoegen om nieuwe statistieken toe te voegen om te exporteren.
- Bereken de fluorescentieverhouding.
- Sla het geëxporteerde .csv-bestand op als spreadsheetbestand.
- Voer een kwaliteitscontroleanalyse uit door het volgende te vergelijken voor alle steekproeven in het experiment: aantal gebeurtenissen per steekproef, percentage livegebeurtenissen en percentage pHL+-gebeurtenissen. Vergelijk deze visueel in staaf- of spreidingsdiagrammen, afhankelijk van het experiment.
- Label een nieuwe kolom als pHL+ Mediaan VL2/BL1. Deel voor elk monster de mediaan VL2-H-waarde door de mediaan BL1-H-waarde zoals weergegeven in vergelijking (1).
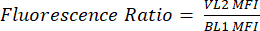 (1)
- Gebruik statistische analysesoftware om statistische analyses uit te voeren met behulp van de fluorescentieverhouding.
6. Kalibratie van de pH-biosensor
OPMERKING: Om gemeten fluorescentieverhoudingen om te zetten in pH-eenheden, kalibreert u pHL-expressiecellen met nigericine en valinomycine. Nigericine is een K+/H+ antiporter, een ionofoor die de pH over membranen in evenwicht kan brengen wanneer er voldoende K+ in de buffer15 zit. Nigericine wordt vaak gebruikt om pHluorin en andere pH-sensoren te kalibreren16,17. Omdat peroxisomaal gelokaliseerd pHluorin eerder werd gekalibreerd met 10 μM nigericine18, kozen we ervoor om met die concentratie te behandelen. Valinomycine is een kaliumionofoor en is gebruikt (bij 4 μM) om de pH over mitochondriale membranen in evenwicht te brengen19. We gebruikten 10 μM valinomycine om de pH-evenwichtsactiviteit van nigericine te ondersteunen door ervoor te zorgen dat K+-ionen over de membranen in evenwicht waren. Hoewel we een nigericine-valinomycine-combinatie gebruikten, kan nigericine voldoende zijn om de pH van organellair in evenwicht te brengen.
- Bereid acht oplossingen van universele kalibratiebuffer (UCB; 15 mM MES, 15 mM HEPES en 130 mM KCl) elk met een verschillende pH variërend van 5 tot 8,5.
- Centrifugeer (RT, 10 min, 800-1.000 × g) acht afzonderlijke buisjes van 2 ml pHL-expressieve BSF-cultuur (~4 × elk 106 cellen).
- Verwijder het supernatans en resuspendeer vervolgens elke celpellet in UCB bij verschillende pH-waarden.
- Introduceer nigericine en valinomycine, elk tot 10 μM. Piek in PI tot 1 μg/ml.
- Incubeer de cellen in elke oplossing gedurende 15 minuten.
- Laat elk monster op een flowcytometer lopen om de fluorescentieverhouding te meten zoals beschreven in stap 4-5.
- Herhaal dit experiment nog twee keer om drie biologische replicaten voor elke pH-waarde te verkrijgen. Exporteer gegevens in .fcs-indeling.
- Analyseer de FCS-bestanden zoals beschreven in stap 5.1 tot en met 5.8. Gebruik de gemeten fluorescentieverhouding voor elke pH om de glycosomale pH te interpoleren in toekomstige experimenten met behulp van vergelijking (2).
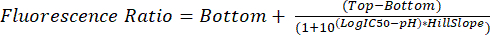 (2)
OPMERKING: Aanvullende afbeelding S3 toont de puntplots en het poortschema. De resultaten zijn te vinden in aanvullende tabel S2. Hieronder wordt beschreven hoe u de pH kunt interpoleren op basis van de fluorescentieverhouding met behulp van GraphPad Prism. Als u andere statistische software gebruikt, volgt u dezelfde belangrijke stappen.- Open GraphPad Prism en maak een XY-tabel met drie y-replicaten. Plak de pH-waarden in de x-kolom en de bijbehorende fluorescentieverhoudingswaarden in de y-replicate-kolommen.
- Klik op de grafiek die bij de tabel hoort. Wanneer u de grafiek bekijkt, klikt u op Analyseren onder het lint Analyse | Interpoleer een standaardcurve onder XY-analyses.
- Kies Sigmoïdaal, 4PL, X is log(concentratie) omdat pH-eenheden zich op een logaritmische schaal bevinden. De bovenste en onderste parameters zijn de geschatte bovenste en onderste plateaus. Kies Geen speciale afhandeling van uitschieters.
OPMERKING: De software zal proberen de gegevens aan te passen aan het model dat wordt beschreven in vergelijking (2) en stap 6.9.3. Zoek naar bewijs van gebrek aan fit in de tabel met resultaten en de curve op de grafiek. - Om de pH te interpoleren uit fluorescentieverhoudingen in andere experimenten, gaat u naar de tabel met de pHL-kalibratiegegevens. Plak de waarden van de fluorescentieverhouding onder de kalibratiegegevens in de y-kolom(men). Geef elke y-waarde een titel, maar laat de x-waarde (de pH) leeg omdat deze onbekend is.
- Klik in de galerij Resultaten op de interpolatieanalyse en ga vervolgens naar het tabblad Geïnterpoleerde X-replicaten . Zoek naar de geïnterpoleerde pH-waarden die naast de ingevoerde fluorescentieverhoudingswaarden worden vermeld.
OPMERKING: De software gebruikt het model en de best passende parameterwaarden die zijn gevonden in de kalibratiegegevens om de pH te interpoleren op basis van fluorescentieverhoudingen voor experimenten waarbij de pH onbekend is.
7. Glucose-uithongering en add-back time-cursussen
- Induceer 's nachts 15 ml BSF pHL-parasieten met 1 μg/ml doxycycline geïncubeerd bij 37 °C, zoals beschreven in stap 1.1.
- Was 15 ml geïnduceerde pHL-cultuur in PBS aangevuld met 10 mM glucose. Herhaal deze stap 3x.
- Was tegelijkertijd 3 ml WT-kweek in PBS 3x zoals beschreven in stap 3.2.
- Na de eerste wasbeurt, wanneer het pHL-monster opnieuw wordt gesuspendeerd in 1 ml PBS, verwijdert u een aliquot van 0,1 ml pHL-celsuspensie om 10 mM glucose binnen te houden als een niet-uitgehongerde controle.
- Na de laatste wasbeurt resuspendeert u het pHL-monster in PBS, aangevuld met 1 μg/ml PI.
- Verkrijgen van flowcytometriegegevens
- Begin met het bewaken van de glycosomale pH voor zowel de uitgehongerde als niet-uitgehongerde monsters door elk monster elke 5, 10, 30 of 90 minuten op een flowcytometer te meten, afhankelijk van het experiment en het monster. Verkrijg flowcytometriegegevens zoals beschreven in stap 4.1 tot en met 4.3 en zorg ervoor dat de spanningen en plots vooraf zijn voorbereid.
- Voer de onbevlekte WT-regelaar eerst uit op 0 min.
- Voer het niet-uitgehongerde controlemonster elke 90 minuten uit op de cytometer vanaf 0 minuten. Voor de Starvation-tijdverlooptest voert u het uitgehongerde monster elke 10 minuten uit, beginnend bij 0 min. Voer voor de Glucose Addback-test het uitgehongerde monster uit op 0, 5, 10, 20, 30, 60 en 90 minuten; Herhaal dit na het introduceren van glucose.
- Incubeer de monsters bij kamertemperatuur tijdens de uithongeringstijd van 90 minuten en de cursus van 180 minuten voor glucose-addbacktijd.
- Analyseer de FCS-bestanden zoals beschreven in stap 5.1 tot en met 5.8.
OPMERKING: Aanvullende afbeelding S4 laat zien hoe de gating moet worden uitgevoerd en hoe de puntplots eruit moeten zien. Aanvullende tabel S3 en aanvullende tabel S4 tonen respectievelijk de resultaten van de glucose-uithongeringstijdbelooptest en de glucose-add-back-tijdbelooptest.
8. Optimalisatie van de test voor drugsscreening
- Was ongeveer 32 ml BSF-parasieten die pHL tot expressie brengen en 3 ml WT-cellen, beide bij ongeveer 2 × 10⁶ cellen/ml, 2x in PBS zoals eerder beschreven.
OPMERKING: Er moeten meer dan 10.000 gebeurtenissen per put worden geregistreerd om de variabiliteit van de gemeten fluorescentieverhoudingen te minimaliseren en de Z-factorstatistiek nauwkeurig te meten. De minimale kweek die nodig is om dit te bereiken is ongeveer 26 ml, maar we raden 32 ml aan voor gebruiksgemak.- Scheid het pHL-monster na de eerste wasbeurt gelijkmatig in twee microcentrifugebuisjes.
- Resuspendeer na de wasbeurten één pHL-monster in 18 ml PBS met 5 mM glucose, 0,1% DMSO en TR. Resuspendeer het andere pHL-monster in 18 ml PBS plus 0,1% DMSO en TR.
OPMERKING: De DMSO wordt gebruikt om de buffersamenstelling in een geneesmiddelscreening na te bootsen, aangezien verbindingen doorgaans worden opgelost in DMSO. - Breng deze twee celoplossingen over in een reservoir met 12 putjes, 9 ml per putje.
- Gebruik een pipetteerrobot om de celoplossingen in afzonderlijke helften van een plaat met 384 putjes te pipetteren, 80 μl per putje.
- Incubeer de plaat gedurende 1,5 uur bij kamertemperatuur, schud zachtjes en wikkel in aluminiumfolie om de fluoroforen tegen licht te beschermen.
- Laat de plaat lopen op een flowcytometer die platen met 384 putjes kan uitvoeren.
OPMERKING: De volgende workflow is aangepast aan een Attune NxT met Cytkick Max Auto Sampler. Als er een andere flowcytometer wordt gebruikt, blijf dan de belangrijkste stappen volgen.- Draai voor de plaat met het hoogste debiet (1.000 uL/min) en schakel de boost-modus in. Verkrijg 20 μL/putje. Neem een mengcyclus en een spoelcyclus tussen elk putje.
- Maak plots zoals beschreven in stap 4.1.3.
- Voer een ongekleurde WT-buisregeling uit en optimaliseer voltages zoals beschreven in stappen 4.1.3 en 4.1.4. Voer een uitgehongerd pHL-buismonster uit en optimaliseer de VL2- en BL1-spanningen zoals beschreven in stap 4.1.
- Begin met het verkrijgen van de plaat op de flowcytometer. Laat de plaat horizontaal lopen, zodat er geen significant verschil in acquisitietijd is tussen de uitgehongerde en niet-uitgehongerde monsterputten. Zorg ervoor dat de plaatacquisitie binnen ~1.5 uur is voltooid.
- Exporteer de FCS-bestanden en analyseer de gegevens zoals beschreven in stap 5.1 tot en met 5.8. Zoek het gemiddelde (AVG) en de standaarddeviatie (SD) van de fluorescentieverhoudingen voor de monsters die zijn behandeld met glucose (Glc) of geen glucose (uitgehongerd).
OPMERKING: De gegevens van onze Z-factorexperimenten zijn te vinden in aanvullende tabel S5. - Bereken de Z-factor20-statistiek met behulp van vergelijking (3).
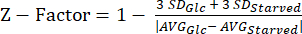 (3)
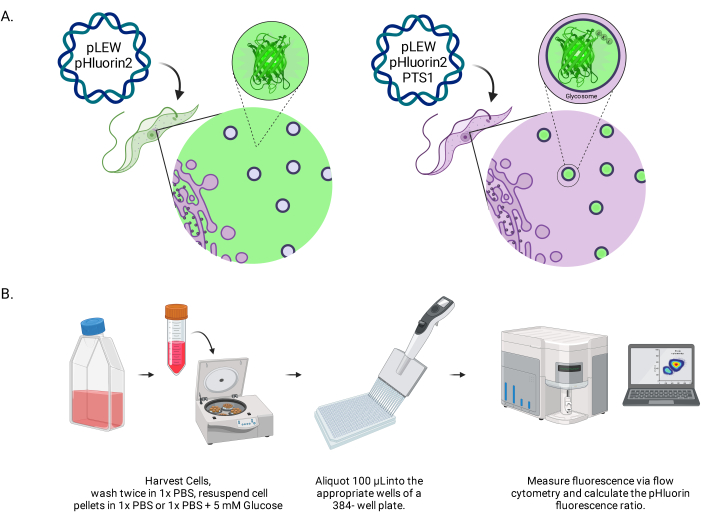
Figuur 1: Diagram van de methode voor het scoren van glycosomale pH in levende BSF-trypanosomen. (A) Afbeelding van cellijnen die glycosomaal gelokaliseerde pHluorin2-sensor tot expressie brengen. De opname van een peroxisomale targetingsequentie biedt controle over de lokalisatie. OPMERKING: We verwachten dat eliminatie van de PTS-1 zou leiden tot cytosolische lokalisatie, waardoor toekomstige analyse van pH in dat subcellulaire compartiment mogelijk wordt. (B) Weergave van de sensorvalidatietest. Afkorting: BSF = bloedbaanvorm. Klik hier om een grotere versie van deze figuur te bekijken.
OPMERKING: De Z-factorstatistiek wordt gebruikt om te bepalen hoe geschikt een test is voor HTS. Waarden tussen 0,5 en 1,0 betekenen over het algemeen dat de testkwaliteit acceptabel is voor HTS.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
pHLuorin2-PTS1 lokalisatie naar glycosomen in BSF T. brucei
Om de subcellulaire lokalisatie van de pHluorin2-PTS1 te beoordelen, werden parasieten onderworpen aan immunofluorescentietests. Signaal van het transgen gelokaliseerd met anti-sera verhoogd tegen een glycosoom-resident eiwit, aldolase (TbAldolase) (Figuur 2A). De gemiddelde Pearson's correlatiecoëfficiënt van colokalisatie tussen anti-TbAldolase en pHluorin2-PTS1 was 0,895, wat aangeeft dat pHluorin2-PT...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Omgevingsperceptie en responsmechanismen in het Afrikaanse trypanosoom zijn slecht begrepen. Het is bekend dat veranderingen in de beschikbaarheid van voedingsstoffen verschillende reacties in de parasiet veroorzaken, waaronder verzuring van glycosomen. Hier hebben we een methode beschreven om de glycosomale pH-respons op omgevingsverstoringen in levende cellen te bestuderen met behulp van een erfelijke eiwitsensor, pHluorin2, en flowcytometrie.
Er zijn verschillende kritieke stappen in het ge...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs verklaren dat er geen sprake is van belangenverstrengeling.
Dankbetuigingen
pHluorin2-PTS1 werd gekloond in pLEW100v5 door Twist Bioscience, die het construct leverde in een kloonvector met hoge kopieën; pLEW100v5 was een geschenk van Dr. George Cross. Antiserum tegen T. brucei aldolase is op aanvraag verkrijgbaar bij Dr. Meredith T. Morris, Clemson University. Het werk van de JCM- en KAC-laboratoria werd gedeeltelijk ondersteund door een prijs van de National Institutes of Health (R01AI156382). SSP werd ondersteund door NIH 3R01AI156382.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 50 mL Tissue Culture Flasks (Non-treated, sterile) | VWR | 10861-572 | |
| 75 cm2 Tissue Culture Flask (Non-Treated, sterile) | Corning | 431464U | |
| 80 µL flat-bottom 384-well plate | BrandTech | 781620 | |
| Amaxa Human T Cell Nucleofector Kit | Lonza | VPA-1002 | |
| Attune NxT Flow Cytometer | invitrogen by Thermo Fisher Scientific | A24858 | FlowJo software |
| BRANDplates 96-Well, flat bottom plate | Millipore Sigma | BR781662 | |
| Coloc 2 plugin of ImageJ | https://imagej.net/plugins/coloc-2 | ||
| CytKick Max Auto Sampler | invitrogen by Thermo Fisher Scientific | A42973 | |
| CytoFLEX Flow Cytometer | Beckman-Coulter | ||
| Electron Microscopy Sciences 16% Paraformaldehyde Aqueous Solution, EM Grade, 10 mL Ampoule | Fisher Scientific | 50-980-487 | |
| GraphPad Prism | statistisch software | ||
| Nigericin (sodium salt) | Cayman Chemical | 11437 | |
| Nucleofector 2b | Lonza | Discontinued Product | |
| OP2 Liquid Handler | opentrons | OP2 | |
| poly-L-lysine, 0.1% (w/v) in H2O | Sigma Life Science | CAS:25988-63-0 | Pipettering robot voor HTS-test |
| Thiazole Red (TO-PRO-3) | biotium | #40087 | We hebben een aangepaste acryl plaatstandaard gemaakt, zodat dit merk plaat kon worden gedetecteerd en gebruikt op onze CytKick Max Auto Sampler |
| valinomycin | Cayman Chemical | 10009152 | Pipettering robot voor HTS-test |
| Voor pH-kalibratie | |||
| Voor pH-kalibratie |
Referenties
- Coley, A. F., Dodson, H. C., Morris, M. T., Morris, J. C. Glycolysis in the African trypanosome: Targeting enzymes and their subcellular compartments for therapeutic development. Molecular Biology International. 2011, 123702(2011).
- Mcconville, M. J., Saunders, E. C., Kloehn, J., Dagley, M. J. Leishmania carbon metabolism in the macrophage phagolysosome- feast or famine. F1000Res. 4, 938(2015).
- Parsons, M. Glycosomes: Parasites and the divergence of peroxisomal purpose. Molecular Microbiology. 53 (3), 717-724 (2004).
- Parsons, M., Furuya, T., Pal, S., Kessler, P. Biogenesis and function of peroxisomes and glycosomes. Molecular and Biochemical Parasitology. 115 (1), 19-28 (2001).
- Haanstra, J. R., Gonzalez-Marcano, E. B., Gualdron-Lopez, M., Michels, P. A. Biogenesis, maintenance and dynamics of glycosomes in trypanosomatid parasites. Biochimica et Biophysica Acta. 1863 (5), 1038-1048 (2016).
- Allmann, S., Bringaud, F. Glycosomes: A comprehensive view of their metabolic roles in t. Brucei. International Journal of Biochemistry and Cell Biology. 85, 85-90 (2017).
- Dodson, H. C., Morris, M. T., Morris, J. C. Glycerol 3-phosphate alters Trypanosoma brucei hexokinase activity in response to environmental change. The Journal of Biological Chemistry. 286 (38), 33150-33157 (2011).
- Lin, S., Morris, M. T., Ackroyd, P. C., Morris, J. C., Christensen, K. A. Peptide targeted delivery of pH sensor for quantitative measurements of intraglycosomal pH in live Trypanosoma brucei. Biochemistry. 52 (21), 3629-3637 (2013).
- Mahon, M. J. Phluorin2: An enhanced, ratiometric, pH-sensitive green florescent protein. Advances in Bioscience and Biotechnology. 2 (3), 132-137 (2011).
- Wirtz, E., Leal, S., Ochatt, C., Cross, G. A. A tightly regulated inducible expression system for conditional gene knock-outs and dominant-negative genetics in Trypanosoma brucei. Molecular and Biochemical Parasitology. 99 (1), 89-101 (1999).
- Restriction digest v.2. , Available from: https://www.protocols.io/view/restriction-digest-nkqdg33pg25z/v2 (2018).
- Ligation protocol with t4 DNA ligaase (m0202) v.3. , Available from: https://www.protocols.io/view/ligation-protocol-with-t4-dna-ligase-m0202-95qpvorzv4o1/v3 (2021).
- Burkard, G., Fragoso, C. M., Roditi, I. Highly efficient stable transformation of bloodstream forms of Trypanosoma brucei. Molecular and Biochemical Parasitology. 153 (2), 220-223 (2007).
- Crowe, L. P., Wilkinson, C. L., Nicholson, K. R., Morris, M. T. Trypanosoma brucei pex13.2 is an accessory peroxin that functions in the import of peroxisome targeting sequence type 2 proteins and localizes to subdomains of the glycosome. mSphere. 5 (1), e00744(2020).
- Kucejova, B., Kucej, M., Petrezselyova, S., Abelovska, L., Tomaska, L. A screen for nigericin-resistant yeast mutants revealed genes controlling mitochondrial volume and mitochondrial cation homeostasis. Genetics. 171 (2), 517-526 (2005).
- Huynh, M. H., Carruthers, V. B. Toxoplasma gondii excretion of glycolytic products is associated with acidification of the parasitophorous vacuole during parasite egress. PLoS Pathogens. 18 (5), e1010139(2022).
- Lehoux, S., Abe, J., Florian, J. A., Berk, B. C. 14-3-3 binding to Na+/H+ exchanger isoform-1 is associated with serum-dependent activation of Na+/H+ exchange. TheJournal of Biological Chemistry. 276 (19), 15794-15800 (2001).
- Jankowski, A., et al. In situ measurements of the ph of mammalian peroxisomes using the fluorescent protein phluorin. The Journal of Biological Chemistry. 276 (52), 48748-48753 (2001).
- Jankowski, A., Grinstein, S. A. A noninvasive fluorimetric procedure for measurement of membrane potential. Quantification of the NADPH oxidase-induced depolarization in activated neutrophils. The Journal of Biological Chemistry. 274 (37), 26098-26104 (1999).
- Zhang, J. H., Chung, T. D., Oldenburg, K. R. A simple statistical parameter for use in evaluation and validation of high throughput screening assays. Journal of Biomolecular Screening. 4 (2), 67-73 (1999).
- Miesenbock, G., De Angelis, D. A., Rothman, J. E. Visualizing secretion and synaptic transmission with pH-sensitive green fluorescent proteins. Nature. 394 (6689), 192-195 (1998).
- Lin, S., et al. Ph regulation in glycosomes of procyclic form Trypanosoma brucei. The Journal of Biological Chemistry. 292 (19), 7795-7805 (2017).
- Ha, D. S., Schwarz, J. K., Turco, S. J., Beverley, S. M. Use of the green fluorescent protein as a marker in transfected Leishmania. Molecular and Biochemical Parasitology. 77 (1), 57-64 (1996).
- Kelly, J. M., Ward, H. M., Miles, M. A., Kendall, G. A shuttle vector which facilitates the expression of transfected genes in Trypanosoma cruzi and Leishmania. Nucleic Acids Research. 20 (15), 3963-3969 (1992).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
