In deze studie presenteren we een in vivo methode voor het schatten van het aantal en de grootte van de motoreenheid om de connectiviteit van de middenrifmotoreenheid van de rat te kwantificeren. Een stapsgewijze aanpak van deze technieken wordt beschreven.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Beoordeling van de connectiviteitsuitkomstmaten van de motoreenheid van het rattendiafragma als kwantitatieve biomarkers van degeneratie en compensatie van phrenische motorneuronen
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Verlies van de beademingsspierfunctie is een gevolg van letsel aan motorneuronen en neurodegeneratie (bijv. respectievelijk cervicale ruggenmergbeschadiging en amyotrofische laterale sclerose). Phrenische motorneuronen zijn de laatste schakel tussen het centrale zenuwstelsel en de spier, en hun respectievelijke motoreenheden (groepen spiervezels die worden geïnnerveerd door een enkel motorneuron) vertegenwoordigen de kleinste functionele eenheid van het neuromusculaire ventilatorsysteem. Samengesteld spieractiepotentiaal (CMAP), enkelvoudig motorisch eenheidspotentiaal (SMUP) en schatting van het aantal motoreenheden (MUNE) zijn gevestigde elektrofysiologische benaderingen die de longitudinale beoordeling van de integriteit van de motorische eenheid in diermodellen in de loop van de tijd mogelijk maken, maar die meestal zijn toegepast op de spieren van ledematen. Daarom zijn de doelstellingen van deze studie het beschrijven van een benadering in preklinische knaagdierstudies die longitudinaal kan worden gebruikt om de phrenische MUNE, de grootte van de motoreenheid (weergegeven als SMUP) en CMAP te kwantificeren, en vervolgens om het nut van deze benaderingen in een model voor motorneuronverlies aan te tonen. Gevoelige, objectieve en translationeel relevante biomarkers voor neuronaal letsel, degeneratie en regeneratie bij motorneuronletsel en ziekten kunnen experimentele onderzoeksontdekkingen aanzienlijk helpen en versnellen tot klinische tests.
Inleiding
Phrenische motorneuronen (MN's), die zich uitstrekken van C3- tot C6-myotoomniveaus, vormen de laatste schakel van het centrale zenuwstelsel (CZS) naar de middenrifspier1. Phrenische motorische eenheden (MU's) bestaan uit een enkele spinale MN en zijn geïnnerveerde middenrifspiervezels die de kleinste functionele eenheid van het respiratoire neuromusculaire systeem vormen. De beademingsfunctie vereist een adequate samentrekking van de middenrifspier, bereikt door gecoördineerde activering van de phrenic MU-pool 2,3. Veel neurologische aandoeningen, waaronder amyotrofische laterale sclerose (ALS), leiden tot ernstige ademhalingsstoornissen en dragen uiteindelijk bij aande doodsoorzaak.
Er kunnen verschillende elektrofysiologische benaderingen worden gebruikt om de integriteit van de pool van de motoreenheid (MU) in vivo te evalueren en te bewaken. Samengesteld spieractiepotentiaal (CMAP) weerspiegelt de samengevatte depolarisatie van alle spiervezels in een specifieke spier of spiergroep na perifere zenuwstimulatie en is gevoelig voor een reeks neuromusculaire aandoeningen, waaronder ALS 5,6 en spinale musculaire atrofie (SMA) 7,8,9. Een beperking van CMAP-beoordeling is dat collaterale ontkieming kan leiden tot een gehandhaafde CMAP-amplitude en -oppervlakte, zelfs in aanwezigheid van MU-verlies10. Om deze beperking te overwinnen, zijn er wijzigingen aangebracht in de CMAP-techniek om zowel het aantal motoreenheden als maat11 te evalueren. Bovendien suggereerde een in vivo studie naar de functionele beoordeling van membraan CMAP door een elektrofysiologisch systeem dat het ook haalbaar zou kunnen zijn om de beschreven membraan CMAP-registratietechniek te gebruiken voor het schatten van het aantal motoreenheden12.
De techniek van de incrementele schatting van het aantal motorische eenheden (MUNE) werd voor het eerst geïntroduceerd in de vroege jaren 1970 door McComas et al. voor de extensor digitorum brevis-spier bij mensen13. De incrementele MUNE-benadering was een modificatie van de traditionele CMAP-opnametechniek waarbij een geleidelijk toenemende stimulatie werd toegediend om kwantische, alles-of-geen submaximale stappen vast te leggen als indices van responsen van enkelvoudige motoreenheden. De opgetelde en gemiddelde stappen werden gebruikt om een schatting te maken van de grootte van een enkele motoreenheidspotentiaal (SMUP). Deze berekende grootte werd vervolgens verdeeld in de CMAP-amplitude om het aantal MU's te schatten dat de spier in onderzoek11 innerverteert. MUNE vertoont een hoge gevoeligheid bij het detecteren en bewaken van verlies van de motoreenheid, waardoor disfunctie van de motoreenheid kan worden geïdentificeerd voordat waarneembare veranderingen in maatregelen zoals CMAP-amplitude of gebied14,15 worden waargenomen. Bij ALS-patiënten is bewezen dat MUNE uitzonderlijk gevoelig is en dient als een prominente biomarker voor het begin, de progressie en de prognose van de ziekte16,17.
Er zijn talloze aanpassingen van MUNE ontwikkeld en op grote schaal gebruikt om de MU-functie te beoordelen bij aandoeningen zoals neurodegeneratie, neuraal letsel en het natuurlijke verouderingsproces 18,19,20,21. Sinds de eerste beschrijving zijn verschillende aanpassingen waarbij gebruik wordt gemaakt van zowel elektrofysiologische reacties als incrementele kracht (mechanische) metingen toegepast in zowel menselijke studies als diermodellen22. MUNE biedt een niet-invasieve functionele beoordeling van de connectiviteit van motorneuronen met de spier. Longitudinale toepassing van MUNE maakt het mogelijk om de progressie van ziekte of geïnduceerde fenotypes te begrijpen en de beschermende of regeneratieve effecten van therapeutische interventies te evalueren, zowel in klinische als preklinische omgevingen. Ongeacht de effectiviteit van MUNE meet reproduceerbaarheid en de klinische relevantie van de techniek voor MU-pools in het grootste deel van het menselijk lichaam, zijn de inspanningen grotendeels gericht op ledemaatspieren in knaagdierspieren 10,23,24,25.
Daarom waren de doelstellingen van deze studie het beschrijven van een benadering voor het verkrijgen van samengesteld spieractiepotentieel (CMAP), SMUP en phrenic motor unit number (MUNE) als in vivo beoordelingen die longitudinaal kunnen worden gebruikt in preklinische knaagdierstudies om de MUNE, de grootte van de motoreenheid (weergegeven als SMUP) en CMAP te kwantificeren. Verder presenteren we representatieve gegevens die het verlies van het middenrif MU-nummer benadrukken na intrapleurale toediening van een freen MN-degeneratief middel, choleratoxine B-fragment geconjugeerd aan saporine (CTB-SAP).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Alle procedures zijn goedgekeurd en uitgevoerd in overeenstemming met de richtlijnen die zijn opgesteld door de Institutional Animal Care and Use Committee van de Universiteit van Missouri. Experimenten werden uitgevoerd op volwassen mannelijke Sprague-Dawley-ratten in de leeftijd van 11 tot 15 weken. Deze ratten werden in paren gehuisvest en gehouden onder een 12:12 licht-donkercyclus, met te allen tijde toegang tot standaard commercieel gepelleteerd voer en HCl-behandeld water.
1. Voorbereiding van dieren en toediening van anesthesie
- Draag geschikte persoonlijke beschermingsmiddelen bij het omgaan met ratten.
- Dien inhalatie-anestheticum toe met 3-5% isofluraan en zorg voor een goede inductie. Zodra de rat voldoende is verdoofd, plaatst u hem in rugligging en handhaaft u de anesthesie met 1-3% geïnhaleerde isofluraan. Controleer de toereikendheid van de anesthesiediepte door voorzichtig druk uit te oefenen op het voetkussen van de achterpoten met een tang om er zeker van te zijn dat er geen terugtrekkingsreactie is.
OPMERKING: Op basis van de grootte en het gewicht van de rat, controleert u de diepte van de anesthesie en past u de isofluraanconcentratie dienovereenkomstig aan. - Handhaaf de temperatuur van 37 °C met behulp van een thermostatische verwarmingsplaat om temperatuurschommelingen te voorkomen die de amplitude en latentie van CMAP kunnen beïnvloeden.
- Breng een veterinaire zalf op petroleumbasis aan op de ogen om uitdroging te voorkomen. Bewaak de diepte van de anesthesie door de ademhalingsfrequentie te observeren en te controleren op terugtrekkingsreacties bij het uitoefenen van druk op het voetkussen met een pincet.
- Verwijder het haar van het onderste derde deel van de borst en nek om te bestuderen met een tondeuse. Bewaak de ademhaling van de rat gedurende het hele experiment.
OPMERKING: Laat de rat na de CMAP- en MUNE-opnames en het staken van de anesthesie niet onbeheerd achter totdat hij weer voldoende bij bewustzijn is. Breng het dier pas terug naar de thuiskooi als het volledig hersteld is.
2. Plaatsing en instelling van de elektroden
- Plaats een paar monopolaire naaldelektroden van 28 G om de CMAP, SMUP en MUNE op te nemen zoals afgebeeld in afbeelding 1.
- Plaats de actieve (E1) naaldelektrode subcutaan over de middelste claviculaire lijn inferieur aan de laatste ribrand, en de referentie (E2) naaldelektrode subcutaan in de hoek tussen de processus xyphoid en het laatste sternocostale kraakbeen.
OPMERKING: De naaldelektroden mogen niet in de middenrifspier worden ingebracht; In plaats daarvan moeten ze in het onderhuidse gebied worden geplaatst.
- Plaats de actieve (E1) naaldelektrode subcutaan over de middelste claviculaire lijn inferieur aan de laatste ribrand, en de referentie (E2) naaldelektrode subcutaan in de hoek tussen de processus xyphoid en het laatste sternocostale kraakbeen.
- Voor stimulatie van de middenrifzenuw bij de halsslagader gebruikt u een paar monopolaire naaldelektroden van 28 G als kathode en anode voor zenuwstimulatie en subcutaan over de laterale hals tussen de voorste en middelste scalene spieren, ongeveer 1 cm van elkaar verwijderd. Zorg ervoor dat de stimulatienaalden ter hoogte van de vierde halswervel (C4) worden geplaatst.
OPMERKING: Breng de stimulerende elektroden niet te diep in om letsel aan de middenrifzenuw of een andere structuur te voorkomen. Figuur 1 illustreert de plaatsing van de elektroden. - Plaats voor de aardelektrode een wegwerpoppervlakte-elektrode op de staart.
3. Data-acquisitie
- Phrenische CMAP
- Registreer phrenische CMAP-responsen door monofasische kathodische blokgolfpulsen toe te passen met een duur van 0,1 ms en een intensiteit variërend van 60 tot 100 mA om de phrenicuszenuw te stimuleren.
- Verkrijg CMAP-responsen terwijl u de stimulusintensiteit geleidelijk verhoogt totdat de amplitude van de respons geen verdere toename meer vertoont. Om supramaximale stimulatie te garanderen, verhoogt u de stimulusintensiteit tot ongeveer 120% van het niveau dat wordt gebruikt om een maximale respons op te wekken en registreert u een extra respons. Als de CMAP-grootte niet langer toeneemt, beschouw deze respons dan als de maximale CMAP.
OPMERKING: Het leveren van stimulatie tijdens het uitademen heeft de voorkeur om gelijktijdig spieractiviteitsgeluid tijdens CMAP-opname te minimaliseren. - Meet en documenteer de piek-tot-piek amplitudes van de CMAP in millivolt (mV) (Figuur 2).
OPMERKING: De amplitude van CMAP kan van basis tot piek en van piek tot piek worden beoordeeld. Klinische elektrodiagnostische systemen zijn vaak standaard ingesteld om de basis-tot-piek te beoordelen, die wordt berekend vanaf de iso-elektrische basislijn tot de initiële negatieve piek.
- Gemiddelde grootte van het potentieel van de enkelvoudige motoreenheid (SMUP) en MUNE-berekening
- Bereken de gemiddelde SMUP-grootte met behulp van een incrementele stimulatietechniek.
- Om incrementele responsen op te wekken, dient u submaximale stimulatie toe met een duur van 0,1 ms bij een frequentie van 1 Hz, waarbij de intensiteit geleidelijk wordt verhoogd in stappen van 0,03 mA totdat een minimale alles-of-niets-respons is bereikt. Verkrijg de eerste respons met een stimulusintensiteit tussen 2 mA en 10 mA.
- Als de initiële respons niet optreedt bij een stimulusintensiteit tussen 2 mA en 10 mA, wijzig dan de positie van de stimulerende kathode, door deze dichterbij te brengen of verder van de middenrifzenuw in de nek te verplaatsen, om respectievelijk de noodzakelijke stimulusintensiteit te verminderen of te verhogen.
- Als de eerste incrementele respons wordt bereikt met een stimulusintensiteit variërend van 2 mA tot 10 mA, sla dan de eerste respons op en verkrijg extra stappen met steeds hogere stimulusintensiteiten, aangepast in stappen van 0,03 mA, om in totaal 9 extra stappen te bereiken die voldoen aan de volgende criteria in stap 3.2.2.
OPMERKING: Elke SMUP wordt gekwantificeerd door elke stap af te trekken van de voorgaande stap.
- Zorg er bij het meten van de incrementele responsen voor dat elke increment aan de volgende criteria voldoet:
- Zorg ervoor dat de initiële negatieve piek van de incrementele responsen tijdelijk overeenkomt met de negatieve piek van de maximale CMAP-respons.
OPMERKING: De lichte bewegingen die worden waargenomen als gevolg van achtergrondgeluid van ademhalingscycli zijn inherent aan de aard van het experiment. De consistente aanwezigheid van SMUP's tijdens live-observatie bevestigt echter hun identiteit voor die specifieke CMAP. - Omdat het middenrif een dynamische spier is die betrokken is bij de ademhaling, kan elke ademhalingscyclus een basislijnbeweging induceren. Controleer dus de stabiliteit en afwezigheid van fractionering in elke incrementele respons door de consistentie van drie dubbele responsen te bevestigen.
OPMERKING: Om een onderscheid te maken tussen evoked potentials met een lage amplitude, vooral de eerste SMUP, en achtergrondgeluid als gevolg van ademhalingsactiviteit, is het belangrijk om waakzaam te blijven en gedurende 3-4 ademhalingscycli te observeren. Zorg er ook voor dat pieken uitlijnd zijn met die van de CMAP voor nauwkeurigheid. - Zorg ervoor dat elke stap duidelijk en groter is dan de vorige. Onderscheid daarom incrementele reacties visueel in realtime en observeer ze terwijl ze over de eerder geregistreerde stappen heen liggen.
OPMERKING: Er kunnen meerdere replicaten van de stimulus bij elke amplitude worden uitgevoerd om consistentie in de stappen en naleving van de vooraf gedefinieerde criteria te garanderen. - Nadat u elke toename visueel hebt gecontroleerd aan de hand van de bovengenoemde criteria, bevestigt u dat de increment-amplitude ten minste 25 μV is. Als de toename lager is dan 25 μV, gooi dan de meting weg en beoordeel de respons opnieuw.
- Controleer na de registratie van 10 incrementele responsen of de amplitude van elke incrementele respons niet groter is dan een derde van de gecombineerde amplitude van alle 10 stappen, wat de totale amplitude van de uiteindelijke respons vertegenwoordigt. Als niet aan dit criterium wordt voldaan, herhaal dan de meting van de 10 incrementele antwoorden.
OPMERKING: De drempel van een derde is gebaseerd op de veronderstelling dat elke incrementele respons de activering van een enkele motoreenheid vertegenwoordigt. Als de amplitude van een incrementele respons groter is dan een derde van de gecombineerde amplitude van alle tien stappen, suggereert dit dat de respons mogelijk niet uitsluitend kan worden toegeschreven aan de activering van een enkele motoreenheid. In plaats daarvan kan het worden beïnvloed door de rekrutering van extra motoreenheden of de aanwezigheid van niet-specifieke activiteit, zoals elektrische ruis of artefacten22,26. - Om de gemiddelde amplitude van de SMUP's te schatten, neemt u het gemiddelde van de waarden van de 10 stappen. Een andere methode om de gemiddelde SMUP-amplitude te meten, is door de volledige amplitude van de uiteindelijke incrementele respons te delen door het totale aantal stappen11.
- Zorg ervoor dat de initiële negatieve piek van de incrementele responsen tijdelijk overeenkomt met de negatieve piek van de maximale CMAP-respons.
- Bepaal MUNE door de maximale CMAP-amplitude (piek-tot-piek) te delen door de gemiddelde SMUP-amplitude (piek-tot-piek). In bepaalde elektrofysiologische systemen worden SMUP's geregistreerd in microvolt (μV), terwijl CMAP meestal wordt uitgedrukt in millivolt (mV). Converteer indien nodig CMAP- en SMUP-metingen naar dezelfde eenheden voordat u MUNE berekent.
OPMERKING: Piek-tot-piek CMAP, gemiddelde SMUP en MUNE worden doorgaans automatisch berekend door elektromyografiesystemen in de kliniek):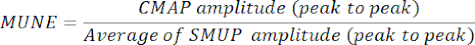
CMAP = Samengesteld Spier Actiepotentiaal
SMUP = Potentieel voor één motoreenheid
MUNE = Schatting van het aantal motoreenheden
- Bereken de gemiddelde SMUP-grootte met behulp van een incrementele stimulatietechniek.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
De CMAP-, SMUP- en MUNE-technieken die in dit rapport worden beschreven, maken het mogelijk om de neuromusculaire functie in de middenrifspier vast te leggen met behulp van minimaal invasieve elektrodeplaatsing (Figuur 1). De parameters amplitude en oppervlakte kunnen worden gebruikt om de supramaximale CMAP-grootte te karakteriseren, wat een algemene maat biedt voor de output van spiergroepen (Figuur 2). In onze huidige methode...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Bij MN-degeneratieve ziekten, zoals ALS, is het van cruciaal belang om de MU die betrokken zijn bij ventilatie te beoordelen28. Ondanks het optreden van respiratoire MN-degeneratie bij ALS-patiënten, blijven het specifieke begin en de progressie van MN-dood onvolledig begrepen 29,30,31. Omdat het belang van dit aspect wordt erkend, zijn verschillende modellen, zowel genet...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
WDA heeft onderzoeksfinanciering ontvangen van NMD Pharma, Avidity Biosciences en advieskosten van NMD Pharma, Avidity Biosciences, Dyne Therapeutics, Novartis, Design Therapeutics, Catalyst Pharmaceuticals en Novartis.
Dankbetuigingen
Dit werk werd gefinancierd door een Spinal Cord Injury/Disease Research Program Grant van het Missouri Spinal Cord Injury/Disease Research Program (NLN en WDA).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 2 mL Glass Syringe | Kent Scientific Corporation | SOMNO-2ML | |
| 50 mL, Model 705 RN-slangpomp | Hamilton Company | 7637-01 | Gebruikt voor intrapleurale injectie |
| 5008 - Formulab Dieet | LabDiet | 0001325 | |
| Autoclaveerbare 26 G naalden (26S RN 9,52 mm 40°) | Hamilton Company | 7804-04 | Gebruikt voor intrapleurale injectie |
| Cholera toxine B-subunit (CTB) | MilliporeSigma | C9903 | Gebruikt voor intrapleurale injectie om overlevende motorneuronen te labelen |
| Cholera toxine B-subunit geconjugeerd aan saporine (CTB-SAP) | Advanced Targeting Systems | IT-14 | Gebruikt voor intrapleurale injectie om motorneurondood te veroorzaken |
| Afneembare kabel | Technomed | 202845-0000 | om de recorderelektrode op de elektrodiagnostische machine aan te sluiten |
| Wegneembare 2" x 2" schijfelektrode met aansluitdraden | Cadwell | 302290-000 | aardelektrode |
| Wegneembare monopolare naalden 28 G | Technomed | 202270-000 | kathodische en anodisch stimulerende elektroden - registratie-elektroden |
| EMG-naaldenkabel (Amp/stim-schakelbox) | Cadwell | 190266-200 | om monopolaire elektroden op elektrodiagnostische stimulator aan te sluiten |
| Helping Hands alligatorklem met ijzeren voet | Radio Shack | 64-079 | Onderhoud van de plaatsing van de registratie-elektrode |
| Isofluraan (250 mL fles) | Piramal Healthcare | ||
| Monoject gebogen tip irrigatie-slangpomp | Covidien | 81412012 | Gebruikt voor het aanbrengen van elektrodengel |
| PhysioSuite fysiologisch bewakingssysteem met RightTemp homeothermische opwarming | Kent Scientific Corporation | PS-RT | Inclusief infrarood opwarmingspad, rectale sonde en padtemperatuursonde |
| Pro trimmer Pet Grooming Kit | Oster | 078577-010-003 | Schaar voor haarverwijdering |
| Saporin (SAP) | Advanced Targeting Systems | PR-01 | Gebruikt voor intrapleurale injectie (controlemiddel wanneer het alleen wordt geïnjecteerd) |
| Sierra Summit EMG-systeem | Cadwell Industries, Inc., Kennewick, WA | draagbaar elektrodiagnostisch systeem | |
| SomnoSuite Low-Flow digitaal anesthesiesysteem | Kent Scientific Corporation | SOMNO | Inclusief anti-lek, anti-damplanteradapter; Y-adapterslang; koolstoffilter |
| Sprague-Dawley rat | Envigo kolonie 208a, Indianapolis, IN | ||
| Dierenarts ooftsalm op petroleumbasis | Puralube | 26870 | Toegepast tijdens anesthesie om hoornvliesletsel te voorkomen |
Referenties
- Mantilla, C. B., Zhan, W. -Z., Sieck, G. C. Retrograde labeling of phrenic motoneurons by intrapleural injection. J Neurosci Methods. 182 (2), 244-249 (2009).
- Nichols, N. L., Satriotomo, I., Harrigan, D. J., Mitchell, G. S. Acute intermittent hypoxia induced phrenic long-term facilitation despite increased sod1 expression in a rat model of als. Exp Neurol. 273, 138-150 (2015).
- Nichols, N. L., Craig, T. A., Tanner, M. A. Phrenic long-term facilitation following intrapleural ctb-sap-induced respiratory motor neuron death. Respir Physiol Neurobiol. 256, 43-49 (2018).
- Kiernan, M. C., et al. Amyotrophic lateral sclerosis. Lancet. 377 (9769), 942-955 (2011).
- Boërio, D., Kalmar, B., Greensmith, L., Bostock, H. Excitability properties of mouse motor axons in the mutant sod1g93a model of amyotrophic lateral sclerosis. Muscle Nerve. 41 (6), 774-784 (2010).
- Shibuya, K., et al. Motor cortical function determines prognosis in sporadic als. Neurology. 87 (5), 513-520 (2016).
- Lewelt, A., et al. Compound muscle action potential and motor function in children with spinal muscular atrophy. Muscle Nerve. 42 (5), 703-708 (2010).
- Mcgovern, V. L., et al. Smn expression is required in motor neurons to rescue electrophysiological deficits in the smnδ7 mouse model of sma. Hum Mol Genet. 24 (19), 5524-5541 (2015).
- Arnold, W. D., et al. Electrophysiological biomarkers in spinal muscular atrophy: Preclinical proof of concept. Ann Clin Transl Neurol. 1 (1), 34-44 (2014).
- Harrigan, M. E., et al. Assessing rat forelimb and hindlimb motor unit connectivity as objective and robust biomarkers of spinal motor neuron function. Sci Rep. 9 (1), 16699(2019).
- Arnold, W. D., et al. Electrophysiological motor unit number estimation (mune) measuring compound muscle action potential (cmap) in mouse hindlimb muscles. J. Vis. Exp: JoVE. (103), e52899(2015).
- Martin, M., Li, K., Wright, M. C., Lepore, A. C. Functional and morphological assessment of diaphragm innervation by phrenic motor neurons. J. Vis. Exp: JoVE. (99), e52605(2015).
- Mccomas, A., Fawcett, P. R. W., Campbell, M., Sica, R. Electrophysiological estimation of the number of motor units within a human muscle. J Neurol Neurosurg Psychiatry. 34 (2), 121-131 (1971).
- Felice, K. J. A longitudinal study comparing thenar motor unit number estimates to other quantitative tests in patients with amyotrophic lateral sclerosis. Muscle Nerve. 20 (2), 179-185 (1997).
- Vucic, S., Rutkove, S. B. Neurophysiological biomarkers in amyotrophic lateral sclerosis. Curr Opin Neurol. 31 (5), 640-647 (2018).
- Carleton, S., Brown, W. Changes in motor unit populations in motor neurone disease. J Neurol Neurosurg Psychiatry. 42 (1), 42-51 (1979).
- Yuen, E. C., Olney, R. K. Longitudinal study of fiber density and motor unit number estimate in patients with amyotrophic lateral sclerosis. Neurology. 49 (2), 573-578 (1997).
- Gooch, C. L., et al. Motor unit number estimation: A technology and literature review. Muscle Nerve. 50 (6), 884-893 (2014).
- Henderson, R. D., Ridall, P. G., Hutchinson, N. M., Pettitt, A. N., Mccombe, P. A. Bayesian statistical mune method. Muscle Nerve. 36 (2), 206-213 (2007).
- Shefner, J., et al. Multipoint incremental motor unit number estimation as an outcome measure in als. Neurology. 77 (3), 235-241 (2011).
- Stein, R. B., Yang, J. F. Methods for estimating the number of motor units in human muscles. Ann Neurol. 28 (4), 487-495 (1990).
- Shefner, J. M. Motor unit number estimation in human neurological diseases and animal models. Clin Neurophysiol. 112 (6), 955-964 (2001).
- Ahad, M., Rutkove, S. Correlation between muscle electrical impedance data and standard neurophysiologic parameters after experimental neurogenic injury. Physiol Meas. 31 (11), 1437(2010).
- Kasselman, L. J., Shefner, J. M., Rutkove, S. B. Motor unit number estimation in the rat tail using a modified multipoint stimulation technique. Muscle Nerve. 40 (1), 115-121 (2009).
- Ngo, S., et al. The relationship between bayesian motor unit number estimation and histological measurements of motor neurons in wild-type and sod1g93a mice. Clin Neurophysiol. 123 (10), 2080-2091 (2012).
- Feasby, T., Brown, W. Variation of motor unit size in the human extensor digitorum brevis and thenar muscles. J Neurol Neurosurg Psychiatry. 37 (8), 916-926 (1974).
- Nichols, N. L., Vinit, S., Bauernschmidt, L., Mitchell, G. S. Respiratory function after selective respiratory motor neuron death from intrapleural ctb-saporin injections. Exp Neurol. 267, 18-29 (2015).
- Nichols, N. L., et al. Ventilatory control in als. Respir Physiol Neurobiol. 189 (2), 429-437 (2013).
- Cifra, A., Nani, F., Nistri, A. Respiratory motoneurons and pathological conditions: Lessons from hypoglossal motoneurons challenged by excitotoxic or oxidative stress. Respir Physiol Neurobiol. 179 (1), 89-96 (2011).
- Kobayashi, Z., et al. Fals with gly72ser mutation in sod1 gene: Report of a family including the first autopsy case. J Neurol Sci. 300 (1), 9-13 (2011).
- Su, M., Wakabayashi, K., Tanno, Y., Inuzuka, T., Takahashi, H. An autopsy case of amyotrophic lateral sclerosis with concomitant alzheimer's and incidental lewy body diseases. No to shinkei= Brain and nerve. 48 (10), 931-936 (1996).
- Lladó, J., et al. Degeneration of respiratory motor neurons in the sod1 g93a transgenic rat model of als. Neurobiol Dis. 21 (1), 110-118 (2006).
- Borkowski, L. F., Smith, C. L., Keilholz, A. N., Nichols, N. L. Divergent receptor utilization is necessary for phrenic long-term facilitation over the course of motor neuron loss following ctb-sap intrapleural injections. J Neurophysiol. 126 (3), 709-722 (2021).
- Nicolopoulos-Stournaras, S., Iles, J. F. Motor neuron columns in the lumbar spinal cord of the rat. J Comp Neurol. 217 (1), 75-85 (1983).
- Tosolini, A. P., Morris, R. Targeting motor end plates for delivery of adenoviruses: An approach to maximize uptake and transduction of spinal cord motor neurons. Sci Rep. 6 (1), 33058(2016).
- Mchanwell, S., Biscoe, T. The localization of motoneurons supplying the hindlimb muscles of the mouse. Phil. Trans. R. , 477-508 (1981).
- Nair, J., et al. Histological identification of phrenic afferent projections to the spinal cord. Respir Physiol Neurobiol. 236, 57-68 (2017).
- Courtine, G., et al. Can experiments in nonhuman primates expedite the translation of treatments for spinal cord injury in humans. Nat Med. 13 (5), 561-566 (2007).
- Friedli, L., et al. Pronounced species divergence in corticospinal tract reorganization and functional recovery after lateralized spinal cord injury favors primates. Sci Transl Med. 7 (302), 134(2015).
- Arnold, R., et al. Nerve excitability in the rat forelimb: A technique to improve translational utility. J Neurosci Methods. 275, 19-24 (2017).
- Boriek, A., Rodarte, J., Reid, M. Shape and tension distribution of the passive rat diaphragm. Am J Physiol Regul Integr Comp Physiol. 280, R33-R41 (2001).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
Meer artikelen verkennen
Phrenicusmotorneuronenmotorische eenheden van het diafragmaschatting van het aantal motorische eenhedensamengesteld spieractiepotentiaalenkelvoudig motorisch eenheidspotentieelelektrofysiologische beoordelingneuromusculaire functiecollaterale uitlopersratmodel voor neurodegeneratielongitudinale biomarkers
