De ontwikkelde methode van 13C 6-Glucose-etikettering in combinatie met vloeistofchromatografie met hoge resolutie massaspectrometrie is veelzijdig en legt de basis voor toekomstige studies naar de primaire organen en routes die betrokken zijn bij de synthese van secundaire metabolieten in medicinale planten, evenals het uitgebreide gebruik van deze secundaire metabolieten.
Methodenartikel
13 okt.C 6-glucose-etikettering geassocieerd met LC-MS: identificatie van primaire organen van planten in secundaire metabolietsynthese
In dit artikel
Samenvatting
Samenvatting
Dit artikel presenteert een nieuwe en efficiënte methode voor het certificeren van primaire organen die betrokken zijn bij de synthese van secundaire metabolieten. Als belangrijkste secundaire metaboliet in Parispolyphylla var. yunnanensis (Franch.) Hand. -Mzt. (PPY), Paris saponine (PS) heeft een verscheidenheid aan farmacologische activiteiten en er is steeds meer vraag naar PPY . Deze studie stelde blad-, wortelstok- en stengel-vasculaire-bundel 13C6-Glucose voedende en niet-voedende vier behandelingen vast om de primaire organen die betrokken zijn bij de synthese van Paris saponinen VII (PS VII) nauwkeurig te certificeren. Door vloeistofchromatografie-massaspectrometrie (LC-MS) te combineren, werden de 13C/12C-verhoudingen van blad, wortelstok, stengel en wortel in verschillende behandelingen snel en nauwkeurig berekend, en werden vier soorten PS-isotopische ionenpiek (M−) verhoudingen gevonden: (M+1) −/M−, (M+2) −/M−, (M+3) −/M− en (M+4) −/M−. De resultaten toonden aan dat de verhouding van 13C/12C in de wortelstokken van de stengel-vaatbundel- en wortelstokvoedingsbehandelingen significant hoger was dan die in de niet-voedende behandeling. Vergeleken met de niet-voedende behandeling nam de verhouding van PS VII-moleculen (M+2) −/M− in de bladeren significant toe onder blad- en stengel-vasculaire-bundelvoedingsbehandelingen. Tegelijkertijd, vergeleken met de niet-voedende behandeling, vertoonde de verhouding van PS VII-moleculen (M+2) −/M− in de bladeren onder wortelstokbehandeling geen significant verschil. Bovendien vertoonde de verhouding van PS VII-moleculen (M+2) −/M− in de stengel, wortel en wortelstok geen verschillen tussen de vier behandelingen. Vergeleken met de niet-voedende behandeling vertoonde de verhouding van het Parijse saponine II (PS II) molecuul (M+2) -/M− in bladeren onder bladvoedende behandeling geen significant verschil, en de (M+3) -/M−-verhouding van PS II-moleculen in bladeren onder bladvoedende behandeling was lager. De gegevens bevestigden dat het primaire orgaan voor de synthese van PS VII de bladeren zijn. Het legt de basis voor toekomstige identificatie van de primaire organen en routes die betrokken zijn bij de synthese van secundaire metabolieten in geneeskrachtige planten.
Inleiding
De biosynthetische routes van secundaire metabolieten in planten zijn ingewikkeld en divers, waarbij zeer specifieke en diverse accumulatieorganen betrokkenzijn1. Op dit moment zijn de specifieke syntheseplaatsen en verantwoordelijke organen voor secundaire metabolieten in veel geneeskrachtige planten niet goed gedefinieerd. Deze ambiguïteit vormt een aanzienlijk obstakel voor de strategische vooruitgang en implementatie van teeltmethoden die zijn ontworpen om zowel de opbrengst als de kwaliteit van medicinale materialen te optimaliseren.
Moleculaire biologie, biochemische en isotopenlabeltechnieken worden op grote schaal gebruikt om de syntheseroutes en -plaatsen van secundaire metabolieten in medicinale planten te ontrafelen 2,3,4,5, en elk van deze methodologieën vertoont unieke sterke punten en beperkingen, zoals verschillen in efficiëntie en nauwkeurigheid. Moleculair-biologische benaderingen bieden bijvoorbeeld een hoge precisie bij het lokaliseren van de locaties binnen biosynthetische routes, maar zijn opmerkelijk tijdrovend. Hun bruikbaarheid is verder beperkt voor soorten die geen openbaar beschikbare genomische sequenties hebben, waardoor deze technieken minder levensvatbaar zijn voor dergelijke gevallen6. Daarentegen bieden isotopenlabeltechnieken, waarbij gebruik wordt gemaakt van isotopenverhoudingen zoals 3C/12C, 2H/1H en 18O/16O, een snelle en toegankelijke manier om de synthese-, transport- en opslagmechanismen van secundaire metabolieten te onderzoeken 7,8. Ze kunnen de ruimtelijke verdeling van organische verbindingen en stabiele isotopen in bladeren onthullen, waardoor de milieuomstandigheden die de bladeren gedurende hun hele levenscyclus ervaren, kunnen worden gereconstrueerd9. Bovendien maakt de toepassing van externe isotopenlabels, zoals 13C6-Glucose 10 en 13C 6-Fenylalanine11, het genereren van met koolstof gelabelde secundaire metabolieten mogelijk, waardoor ons begrip van hun productie en functie wordt verbeterd.
Traditionele technieken voor het labelen van koolstofisotopen ondervinden uitdagingen bij het lokaliseren van de specifieke organen die verantwoordelijk zijn voor de synthese van secundaire metabolieten vanwege de zeer soortspecifieke aard van hun biosynthetische routes en transportmechanismen. Vloeistofchromatografie-massaspectrometrie (LC-MS) is bekend geworden als een cruciaal analytisch instrument in deze arena en biedt een robuuste methode voor het volgen van exogene isotopen in de chemische synthese van geneesmiddelen en het onderzoeken van in vivo processen zoals absorptie, distributie, metabolisme en uitscheiding12. De superieure gevoeligheid, rechtlijnigheid en betrouwbaarheid van LC-MS maken het een ideale keuze voor het bewaken van de productie van secundaire metabolieten in planten13. In de afgelopen tijd is LC-MS steeds meer geliefd geworden vanwege zijn toepassing in externe isotopenetiketteringstechnieken, waardoor de efficiëntie van de etikettering in verschillende monsters kan worden geëvalueerd. Deze methodologie biedt kritische inzichten in de primaire organen die betrokken zijn bij de synthese van secundaire metabolieten in medicinale planten, en dient als een onschatbare aanvulling op biologische methoden voor het identificeren van de syntheseorganen van deze verbindingen14,15. Bijgevolg vergemakkelijkt deze benadering niet alleen de vergelijking van de etiketteringsefficiëntie tussen verschillende monsters, maar werpt het ook licht op de belangrijkste organen die betrokken zijn bij de aanmaak van secundaire metabolieten van planten, waardoor ons begrip van hun biosynthese wordt verbeterd.
We hebben een nieuwe methode geïntroduceerd die koolstofisotopenlabeling combineert met LC-MS-detectie om de primaire organen te identificeren die verantwoordelijk zijn voor het synthetiseren van secundaire metabolieten in medicinale planten. Parijse saponine (PS) heeft een verscheidenheid aan farmacologische activiteiten, zoals antikanker, immunomodulatie en ontstekingsremming16, en er is steeds meer vraag naar PPY17. Daarom gebruikten we PPY-zaailingen als proefpersonen en ontcijferden we dat bladeren het primaire orgaan zijn om de Parijse saponine VII (PS VII) (figuur 1B) te synthetiseren door gebruik te maken van de 13C 6-glucose-etikettering die verband houdt met de LC-MS-methode. Onze aanpak omvatte vier verschillende behandelingen waarbij 13C6-glucose zich voedde met blad-, wortelstok- en stengel-vasculaire bundels, evenals een niet-voedende controle. De keuze voor 13C6-glucose is strategisch, omdat het via ademhaling snel wordt gemetaboliseerd tot acetyl-co-enzym A, wat vervolgens de PS-synthese vergemakkelijkt. Gebruikmakend van de natuurlijke overvloed van 13C, gebruikten we een Gas Chromatography-Stable Isotope Ratio Mass Spectrometer (GC-IRMS) -systeem om de 13C/12C-verhoudingen in verschillende plantorganen te beoordelen en om de isotopische ionenpiekverhoudingen in PS VII- en Paris-saponinen II (PS II) (figuur 1B) moleculen te analyseren. Onze methodologie, die gebruikmaakt van 13C-gelabelde precursoren van secundaire metabolieten van planten en geavanceerde massaspectrometrietechnieken, biedt een eenvoudiger en nauwkeuriger alternatief voor conventionele etiketteringsmethoden voor koolstofisotopen. Deze nieuwe benadering verdiept niet alleen ons begrip van de organen die betrokken zijn bij de synthese van secundaire metabolieten in medicinale planten, maar legt ook een solide basis voor toekomstige verkenningen naar de biosynthetische routes van deze verbindingen.
Protocol
1. Experimentele voorbereiding
- Zorg ervoor dat tijdens de plantengroei de relatieve luchtvochtigheid van de kas 75% is, de dag-/nachttemperaturen 20 °C/10 °C zijn, de fotoperiode bestaat uit 12 uur dag en 12 uur nacht en de lichtintensiteit 100 μmol-m-2·s-1 is. Zorg voor straling via light-emitting diode (LED) lampen, waarbij een afstand van 30 cm tussen de LED-lamp en het bladerdak van de plant wordt aangehouden.
LET OP: De fotoperiode en lichtintensiteit zijn afhankelijk van het aantal zonuren tijdens de groeiperiode in Yunnan. De bestralingssterkte wordt routinematig gemeten door een kwantumsensor (zie Materiaaltabel). Breng de nodige veranderingen aan in de omgevingsparameters volgens de kenmerken van de medicinale plant. Zodra deze omgevingsomstandigheden zorgvuldig zijn gekalibreerd op basis van de kenmerken van de plant en het regionale zonlichtprofiel, is het van cruciaal belang om gedurende de duur van het experiment consistentie in deze instellingen te behouden. Willekeurige veranderingen in de milieuparameters na hun eerste vaststelling kunnen de integriteit van het experiment en de betrouwbaarheid van de resultaten in gevaar brengen. - Gebruik een hydrocultuurbenadering18 om de nauwkeurigheid en specificiteit van ons experiment te garanderen. Zorg ervoor dat de gewassen 2-jarige PPY-zaailingen (geoogst uit Wenshan, provincie Yunnan (104 ° 11 'E, 23 ° 04' N) gedurende 3 dagen worden ondergedompeld in een 1/4 standaardconcentratie van Hoagland's voedingsoplossing om zich aan te passen.
- Bereid de voedingsoplossing van Hoagland (zie Materiaaltabel) volgens de instructies; voeg 1,26 g Hoaglandpoeder en 0,945 g calciumnitraatpoeder toe aan 4 l gezuiverd water. Bereid de 13C6-Glucose (zie Materiaaltabel) oplossing zoals beschreven in de standaardhandleiding; voeg 0,2 g 13C6-glucosepoeder toe aan 100 ml gezuiverd water of de voedingsoplossing van Hoagland.
- Bereid de hydrocultuurtank en zuurstofpomp voor (Figuur 2; zie Materiaaltabel).
OPMERKING: In de hydrocultuuropstelling omzeilt het gebruik van een 13C 6-glucose-oplossing voor etikettering de invloed van bodemmicro-organismen, waardoor de oplossing direct bijdraagt aan de snelle synthese van secundaire metabolieten in geneeskrachtige planten. Om de omstandigheden voor de opname van 13C6-glucose door de planten te optimaliseren, is het absoluut noodzakelijk om het debiet van de zuurstofpomp te regelen tussen 4 en 8 l/min. Deze gecontroleerde stroomsnelheid is cruciaal om te voorkomen dat de zaailingen op het wateroppervlak drijven, wat hun vermogen om de 13C6-Glucose effectief op te nemen aanzienlijk zou kunnen belemmeren. Door de zaailingen op de juiste diepte ondergedompeld te houden, kan de etiketteringsverbinding efficiënt worden opgenomen, waardoor het succes van het metabolietsyntheseproces in het hydrocultuursysteem wordt gegarandeerd.
2. Exploitatie van het koolstofetiketteringsexperiment
- Zet vier behandelingen op en traceer de syntheseorganen en -routes van PS VII en PS II in PPY om aan te tonen dat bladeren het primaire orgaan zijn voor het synthetiseren van PS.
- In behandeling 1 voedt de PPY-zaailing zich niet; besproei in behandeling 2 de bladeren van de PPY zaailing met 0,2% 13C6-glucose; in kuur 3, voed de PPY zaailingwortelstokken met 0,2% 13C6-glucose; in behandeling 3, voed de PPY-zaailing bij de stengelincisie met de 0,2% 13C6-glucose (figuur 2A).
OPMERKING: Behandeling 1 is ingesteld als controlegroep. Behandeling 2 is opgezet om aan te tonen dat bladeren de PS kunnen synthetiseren. Behandelingen 3 en 4 zijn opgezet om aan te tonen dat wortelstokken 13C6-glucose kunnen opnemen. - Kweek bij behandelingen 1 en 2 de PPY-zaailingen in een normale voedingsoplossing van Hoagland. Spuit eenmaal 's ochtends, 's middags en 's avonds 5 ml 0,2% 13C 6-glucose-oplossing op de bladeren van behandeling 2.
- Kweek in behandelingen 3 en 4 de PPY-zaailingen in de voedingsoplossing van Hoagland met 0,2% 13C6-glucose. Gebruik bij behandeling 4 een scalpel (zie Materiaaltabel) om de stelen van PPY-zaailingen vanuit het midden af te snijden, maar houd de vaatbundels vast.
- Laat elke behandeling 3 dagen labelen en vervang de voedingsoplossing elke 1,5 dag. Voer het experiment uit met behulp van een gerandomiseerd blokontwerp en herhaal elke behandeling 3x.
LET OP: Bij het besproeien van de bladeren is het belangrijk om een absorberend papiertje achter de bespoten bladeren te leggen. Dit voorkomt dat waterdruppels in de voedingsoplossing eronder vallen, wat anders de resultaten van het experiment zou kunnen beïnvloeden. De sneden in de stelen zijn niet allemaal verwijderd, maar er zijn leidingen aan bevestigd die met het blote oog zichtbaar zijn.
- In behandeling 1 voedt de PPY-zaailing zich niet; besproei in behandeling 2 de bladeren van de PPY zaailing met 0,2% 13C6-glucose; in kuur 3, voed de PPY zaailingwortelstokken met 0,2% 13C6-glucose; in behandeling 3, voed de PPY-zaailing bij de stengelincisie met de 0,2% 13C6-glucose (figuur 2A).
3. Bemonsterings- en bereidingsmethoden
- Verzamel bladeren, stengels, wortelstokken en wortels van elke behandeling afzonderlijk aan het einde van het 3-daagse 13C 6-Glucose-experiment. Was de verzamelde plantenorganen grondig om onzuiverheden aan het oppervlak te verwijderen.
OPMERKING: De afwezigheid van een overvloed van 13C kan worden vastgesteld door LC-MS-analyse van de wasoplossing, wat bewijst dat het wasgoed schoon is19. - Gebruik een elektrische sneldroogoven met constante temperatuur (zie Materiaaltabel) om de gewassen plantorganen te drogen. Begin bij 105 °C gedurende 30 minuten en stel vervolgens in op 60 °C tot een constant gewicht. Vermaal de gedroogde plantenorganen tot poeder met behulp van een volautomatische monstersnelslijper (zie Materiaaltabel).
OPMERKING: Het poeder wordt gebruikt voor kwantitatieve analyse van PS VII-, II- en 13C/12C-verhoudingen in verschillende plantenorganen. - Gebruik een elektronische analytische balans (zie Materiaaltabel) om 30 mg poeder voor elk monster nauwkeurig af te wegen en plaats het in 2 ml 75% v/v ethanol-water. Gebruik een CNC-ultrasone reiniger (zie Materiaaltabel) en voer ultrasone extractie uit bij 25 °C gedurende 20 minuten (60 kHz), herhaal 2x; Voeg de extractieoplossingen samen en bereid drie parallelle monstersvoor 20.
OPMERKING: Fouten in het monstergewicht moeten tot een minimum worden beperkt. - Gebruik stikstof om de extractieoplossing droog te föhnen en los vervolgens op in chromatografische methanol tot een volume van 1 ml. Gebruik vóór de injectie een organische fasefilter van 0,22 μm (zie materiaaltabel) voor filtratie (figuur 2B).
NOTITIE: Blaas het extract niet uit tijdens het föhnen met stikstofgas; Het extract moet door een microporeus membraan worden geleid om ervoor te zorgen dat onzuiverheden minimaal interfereren.
4. LC-MS installatie en bediening
- MS-instelling
- Activeer de vacuümpomp door de schakelaar in de aan-stand te zetten. Open de hoofdklep op de argongasfles en stel vervolgens de partiële drukklep af om een doeldruk van ongeveer 0.3 MPa te bereiken. Zorg er vervolgens voor dat de stikstofgasklep ook geopend is.
- Start de MS-besturingssoftware (zie Materiaaltabel). Klik op de verwarmde elektrospray-ionisatiebron (HESI-bron) in het softwarepaneel en voer de parameters in, waaronder de capillaire spanning (3,0 kV voor negatieve modus), de capillaire temperatuur (350 °C), mantelgas (N2) debiet (35 willekeurige eenheden), hulpgas (N2) debiet (15 willekeurige eenheden), door middel van volledige scanning op basis van de molecuulmassa van PS (bediend van m/z 100-1.500). Klik op de knop Toepassen om de ionenbron te activeren.
OPMERKING: Wacht ten minste 8 uur om ervoor te zorgen dat er voldoende vacuümgraad is voor de experimentele omstandigheden. Controleer vóór de analyse of de gasdruk van argon en stikstof hoog genoeg is.
- LC voorloop
- Bereid mobiele fase A voor door 0,1% mierenzuur te mengen met water en gebruik acetonitril voor mobiele fase B (zie materiaaltabel). Ontgas beide fasen in een ultrasone badsonicator gedurende 15 minuten om opgeloste gassen te verwijderen. Sluit vervolgens mobiele fase A aan op de respectievelijke vloeistofdoorgang en doe hetzelfde met mobiele fase B. Meng ten slotte een 1:9 v/v methanol-wateroplossing voor de reinigingsvloeistof en vul de pomp en injectorflessen handmatig.
OPMERKING: De frequentie van de ultrasone badsonicator is 40 kHz.
- Bereid mobiele fase A voor door 0,1% mierenzuur te mengen met water en gebruik acetonitril voor mobiele fase B (zie materiaaltabel). Ontgas beide fasen in een ultrasone badsonicator gedurende 15 minuten om opgeloste gassen te verwijderen. Sluit vervolgens mobiele fase A aan op de respectievelijke vloeistofdoorgang en doe hetzelfde met mobiele fase B. Meng ten slotte een 1:9 v/v methanol-wateroplossing voor de reinigingsvloeistof en vul de pomp en injectorflessen handmatig.
- Vaststelling van de LC-methode
- Selecteer de knop "Instrument instellen" om het venster voor het bewerken van methoden te openen.
- Druk op de knop "Nieuw" om het maken van een nieuwe LC-MS-instrumentmethode te starten.
- Stel de totale looptijd in voor de LC-methode. Voer vervolgens de benodigde waarden in voor de druklimiet, het totale debiet, de stroomgradiënt, de monstertemperatuur, de kolomtemperatuur en de gereed-temperatuurdelta in het venster voor het bewerken van de methode.
OPMERKING: DE INSTELLINGEN VAN DE LC-MS-instrumentmethode zijn afgestemd op de betreffende analyt en het type vloeistofchromatografiekolom dat wordt gebruikt. Gebruik voor optimale resultaten een debiet van 0,3 ml/min met een BEH C18-kolom die op 40 °C wordt gehouden (zie materiaaltabel). De gradiëntelutie is als volgt geconfigureerd: begin bij 10% B, neem lineair toe tot 30% B in 8 minuten, vervolgens naar 45% B van 8 tot 16 minuten, naar 50% B van 16 tot 24 minuten en naar 70% B van 24 tot 30 minuten. Onmiddellijk hierna keert u de gradiënt binnen 0,1 minuut terug naar de oorspronkelijke 10% B-toestand en houdt u deze daar nog eens 2,9 minuten vast. Injecteer voor elke analyse een monstervolume van 5 μl. De instellingen van de LC-MS-instrumentmethode zijn afhankelijk van de specifieke stof die moet worden geanalyseerd en het type vloeistofchromatografiekolom dat wordt gebruikt21.
- Acquisitie van MS
- Kies op het tabblad Instellingen het experimenttype Algemene MS of MSn voor de configuratie van de MS-methode. Voer de benodigde waarden in om de acquisitietijd, polariteit (positief of negatief), het aantal massabereikomleidingskleppen en de duur van de omleidingsklep in te stellen. Nadat u deze gegevens hebt ingevoerd, klikt u op de knop "Opslaan" om deze instellingen af te ronden en op te slaan als instrumentmethode.
OPMERKING: De standaardinstellingen zonder chromatografiekolom zijn als volgt: acquisitietijd, 2 min; polariteit, positief of negatief; massabereik, 100 tot 1.500.
- Kies op het tabblad Instellingen het experimenttype Algemene MS of MSn voor de configuratie van de MS-methode. Voer de benodigde waarden in om de acquisitietijd, polariteit (positief of negatief), het aantal massabereikomleidingskleppen en de duur van de omleidingsklep in te stellen. Nadat u deze gegevens hebt ingevoerd, klikt u op de knop "Opslaan" om deze instellingen af te ronden en op te slaan als instrumentmethode.
- Voer meertraps massaspectrometrie uit volgens conventionele methoden.
- Gebruik altijd de data-afhankelijke acquisitiemodus (DDA) voor het verzamelen van gegevens in meertraps massaspectrometrie. In de DDA-modus identificeert de massaspectrometer tijdens elke scan in de eerste fase van tandem MS de vijf meest intense ionen, die vervolgens worden gefragmenteerd en onderzocht in de tweede fase van tandem massaspectrometrie.
OPMERKING: De verzamelde MS- en MS/MS-gegevens kunnen worden gebruikt voor latere analyse en het doorzoeken van databases.
- Gebruik altijd de data-afhankelijke acquisitiemodus (DDA) voor het verzamelen van gegevens in meertraps massaspectrometrie. In de DDA-modus identificeert de massaspectrometer tijdens elke scan in de eerste fase van tandem MS de vijf meest intense ionen, die vervolgens worden gefragmenteerd en onderzocht in de tweede fase van tandem massaspectrometrie.
5. Handmatige gegevensverzameling, -analyse en -berekening
- Data-acquisitie en -analyse
- Dubbelklik op de onbewerkte bestanden om alle massaspectra van MS te openen. Bereken handmatig de m/z-verschilwaarden tussen het ion en de bijbehorende fragmentionen.
- Importeer de onbewerkte gegevensbestanden van de controle- en monsterbehandelingen en blanco's in de software voor massaspectrometrie-analyse om PS's te identificeren door de massa en de fragmenten van PS nauwkeurig te berekenen.
OPMERKING: PS VII en PS II worden geïdentificeerd door vergelijking met retentietijden en coelution van authentieke standaardoplossingen. LC-MS detecteert een reeks kleine pieken op de posities van de moleculaire ionenpieken. De verhouding van elke reeks isotopische ionenpieken is constant. Wanneer exogene 13C-isotopen worden gegeven, neemt de totale 13C-overvloed in de plant toe en veranderen de verhoudingen van de reeks isotoopionenpieken van secundaire metabolieten van planten. De maximale tolerantie van massafouten is ingesteld op 5 ppm. - Scan het massabereik m/z 500-1.500 om de basispiek te identificeren. Bepaal het nauwkeurige molecuulgewicht tot op 4 decimalen, afhankelijk van het precieze molecuulgewicht en de retentietijd van het doelmolecuul. Zoek naar het piekgebied van de seriële isotoopionenstroom en leid waarden af voor M−, (M+1) −, (M+2) −, (M+3) − en (M+4) −. Wanneer de mobiele fase mierenzuur bevat, omvatten de negatieve ionen ook (M+COOH) −, (M+COOH+1) −, (M+COOH+2) −, (M+COOH+3) − en (M+COOH+4) −.
OPMERKING: Het selecteren van pieken binnen het massabereik m/z 500-1.500 verbetert de nauwkeurigheid van het identificeren van moleculaire ionenpieken voor PS VII en PS II. Het negatieve ionenmassaspectrum van PS VII (C51H82O21, 1030.5349) ioniseert bijvoorbeeld voornamelijk met COOH-ionen in een mierenzuur-watermengsel. De waargenomen seriële isotoopionen omvatten 1029,53−, 1030,54−, 1031,54−, 1032,55−, 1033,55− en zich uitstrekkend tot 1079,56−.
- Berekening van de gegevens
- Om het effect van 13C natuurlijke overvloed te verminderen, berekent u de verhoudingen van gelabelde en niet-gelabelde ionenstromen voor elk orgaan onder verschillende behandelingen, waarbij u zich specifiek richt op de verhoudingen (M+1)−/ M−, (M+2)−/M−, (M+3)−/ M− en (M+4)−/ M−. Om onderscheid te maken tussen gelabelde en natuurlijk voorkomende isotopen voor een nauwkeurige beoordeling van 13C-incorporatie, berekent u deze verhoudingen voor n = 1, 2, 3, 4 met behulp van vergelijking (1).
Verhouding = A (M+2) −/ AM− (1)
PS: (M+2) − omvatten (M+2+COOH) − en (M+2) −; M− omvatten (M+COOH) - en M−.
OPMERKING: Hier verwijst M− naar de gecombineerde piekgebieden van ionenstromen voor (M+COOH) − en M −, voornamelijk geïoniseerd met COOH− in mierenzuur-water. A staat voor het piekgebied. De formules voor het berekenen van PS VII-verhoudingen worden bijvoorbeeld als volgt geïllustreerd:
Verhouding+1= (A1030,54+A1076,55)/(A1029,53+A1075,55)
Verhouding+2= (A1031,54+A1077,55)/(A1029,53+A1075,55)
Verhouding+3= (A1032,55+A1078,56)/(A1029,53+A1075,55)
Verhouding+4= (A1033,55+A1079,56)/(A1029,53+A1075,55)
- Om het effect van 13C natuurlijke overvloed te verminderen, berekent u de verhoudingen van gelabelde en niet-gelabelde ionenstromen voor elk orgaan onder verschillende behandelingen, waarbij u zich specifiek richt op de verhoudingen (M+1)−/ M−, (M+2)−/M−, (M+3)−/ M− en (M+4)−/ M−. Om onderscheid te maken tussen gelabelde en natuurlijk voorkomende isotopen voor een nauwkeurige beoordeling van 13C-incorporatie, berekent u deze verhoudingen voor n = 1, 2, 3, 4 met behulp van vergelijking (1).
Resultaten
Om te bevestigen dat de toevoer van 13C6-glucose in wortelstokken succesvol was, hebben we de isotopenverhoudingen van 13C / 12C in wortelstokken verder geanalyseerd. De isotoopverhoudingen van 13C / 12C van behandeling 3 en 4 waren veel hoger dan die van behandeling 2 (figuur 1A). De resultaten gaven aan dat 13C6-glucose uit behandeling 3 en 4 door inname in de wortelstokken terechtkwam.
De verhoudingen van 13C isotooppieken, zoals (M+1) −/M−, (M+2) −/M−, (M+3) −/M− en (M+4) −/M−, blijven doorgaans constant. Verbindingen gelabeld met exogeen toegevoegd 13C hebben dezelfde moleculaire structuur, vergelijkbare molecuulgewichten, fysisch-chemische eigenschappen en retentietijden als hun niet-gelabelde tegenhangers. Toen deze gelabelde verbindingen echter werden geanalyseerd met behulp van massaspectrometrie, veranderden de verhoudingen van hun isotoopionenpiek. In onze studie gebruikten we LC-MS om PS VII en PS II te detecteren in vier verschillende organen van PPY bij verschillende behandelingen (Figuur 3). Vergeleken met behandeling 1 wezen de resultaten op een significante toename van de verhouding PS VII (M+2) −/M− in de bladeren van de met exogeen 13C behandelde PPY (figuur 3B). Met name in behandeling 2, waar PPY-bladeren werden besproeid met 13C6-glucose, werd PS VII gemarkeerd met twee 13C-atomen gesynthetiseerd. Bij behandeling 4 vertoonde de verhouding van PS VII-moleculen (M+2) −/M− in bladeren echter geen significant verschil tussen de wortelstok en de niet-voedende behandeling, en de verhoudingen van PS VII-moleculen (M+1) −/M−, (M+3) −/M−, (M+4) −/M− in stengel, wortelstok en wortel in alle vier de behandelingen vertoonden geen significante verschillen (Figuur 3A, C,D). Bovendien nam de verhouding van PS II-moleculen (M+2) − / M− langzaam toe in behandeling 2 (Figuur 3F). Er waren geen noemenswaardige verschillen in de verhoudingen van PS II-moleculen (M+1) −/M− en (M+4) -/M− in bladeren tussen behandeling 1 en 2 (figuur 3E, H), terwijl de verhouding van PS II-moleculen (M+3) −/M− een merkbare afname vertoonde in bladeren in behandeling 2 in vergelijking met behandeling 1 (figuur 3G). Deze bevindingen suggereren dat de synthese van PS VII inderdaad plaatsvindt in de bladeren die zijn behandeld met 13C6-glucose, in lijn met de bekende biosynthetische route van PSs.
Onze benadering suggereert dat het blad het primaire orgaan is voor de synthese van PS VII in PPY, in tegenstelling tot de synthese van PS II. Met name 13C-gelabeld PS VII was afwezig in de wortelstok na bladbehandeling met 13C6-glucose, wat een langzaam transport van PS VII van bladeren naar wortelstokken impliceert. Daarentegen werd 13C-gelabeld PS II gedetecteerd in de wortelstok na behandelingen met het labelen van stam-vasculaire-bundels en wortelstokken, wat wijst op mogelijke wortelstoksynthese in dit stadium en verder onderzoek van PS II-syntheselocaties noodzakelijk maakt. De exclusieve detectie van de (M+2) −/M− verhouding voor PS VII-moleculen in bladeren komt overeen met het metabolische lot van 13C6-glucose; na absorptie wordt het via glycolyse gemetaboliseerd om acetyl-CoA te produceren met twee isotopen van 13C. Als we PS beschouwen als een isoprenoïde verbinding, verloopt de biosynthese uit acetyl-CoA via de mevalonzuur (MVA) of de 2-C-methyl-D-erythritol-4-fosfaat (MEP) route (Figuur 4), wat leidt tot (M+2) −/M− PS VII-vorming. Onze studie schetst dus het blad als het definitieve orgaan voor PS VII-synthese in PPY.

Figuur 1: De verhouding van 13C / 12C isotoop in wortelstokken van vier behandelingen. (A) De verhoudingen van 13C / 12C isotopen in wortelstokken van behandelingen 4 en 3 waren veel hoger dan die van behandelingen 1 en 2, wat aangeeft dat 13C6-glucose significant de wortelstokken was binnengedrongen via wortelvoeding. Elke kolom vertegenwoordigt het gemiddelde (± SE) van drie replicaten. De letters op de kolommen betekenen significant verschillend in de verhouding van 13C/12C isotoop in vier behandelingen (p < 0,05). Afkorting: PS = Paris saponins. (B) De hoge-resolutie massaspectrometrie van PS VII (C51H82O21, 1030.5349) detecteerde zijn negatieve ion met een retentietijd van 16,83 minuten. Vanwege de natuurlijke abundantie van 13C (met een exact molecuulgewicht van 13.003, vergeleken met 12C bij 12.000), verschijnt een reeks isotopenpieken, waaronder (M−), voornamelijk (M+1)−, (M+2)−, (M+3)− en (M+4)−, op dezelfde retentietijd als de PS VII moleculaire ionenpiek M−. Deze pieken waren vooral te wijten aan COOH− -ionisatie in mierenzuur water. Een vergroot staafdiagram markeert deze isotopenpieken. De ionenstroomverhoudingen van (M+1)−/M−, (M+2)−/M−, (M+3)−/M− en (M+4)−/M− werden berekend. Door veranderingen in deze verhoudingen te analyseren, konden we de biosynthese van saponinen volgen en afleiden. Hier vertegenwoordigde M− de gecombineerde piekgebieden van ionenstroom voor (M+COOH)- en M−. Figuur 1B is aangepast van Wen et al.24. Klik hier om een grotere versie van deze figuur te bekijken.

Afbeelding 2: 13C6-Glucose etikettering en workflow voor gegevensintegratie. Zaailingen werden geëtiketteerd door gedurende 3 dagen 0,2% 13C6-glucose te spuiten en te voeren; vervolgens werden extracten van elk orgaan isotopisch geanalyseerd door LC/MS en GC/IRMS en gecombineerd met piekintegratie en gegevens voor orgaanspecifieke analyse van PS-synthese. (A) Een schematisch diagram dat de toevoer van glucose in verschillende organen illustreert. Behandelingen 1-4 waren niet-voedend, gevoed in respectievelijk blad, stengel-vasculaire bundel en wortelstok. (B) De stappen voor LC-MS-analyse van de geëxtraheerde vloeistof gemaakt van het gedroogde PPY-weefsel door middel van een maal- en stikstofblaasinstrument. Afkortingen: LC/MS = vloeistofchromatografie-massaspectrometrie; PPY = Parispolyphylla var. yunnanensis (Frans) Hand. -Mzt.; PS = Parijs saponine. Klik hier om een grotere versie van deze figuur te bekijken.
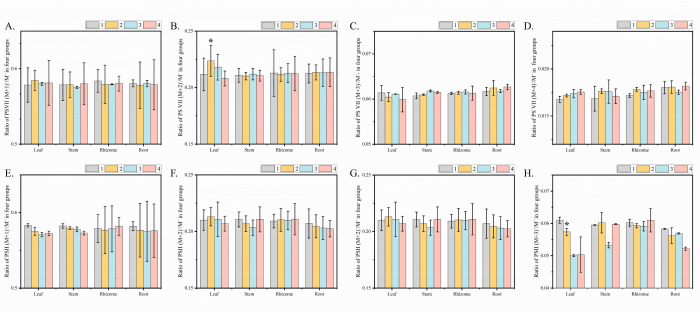
Figuur 3: Tracering van de biosynthese van Paris saponine VII en Paris saponine II via 13C6-Glucose voeding van plantenorganen. (A-D) De verhouding van PS VII-moleculen (M+1) −/M−, (M+2) −/M−, (M+3) −/M−, (M+4) −/M− in elk orgaan van de vier behandelingen. De verhouding van PS VII-moleculen (M+2) −/M− nam significant toe in de bladeren van behandeling 2 en behandeling 3. In de stengel, wortel en wortelstok vertoonde de verhouding van PS VII-moleculen (M+2) −/M− geen duidelijke verschillen tussen de vier behandelingen. (E-H) De verhouding van PS VII-moleculen (M+1) −/M−, (M+2) −/M−, (M+3) −/M−, (M+4) −/M− in elk orgaan van de vier behandelingen. Vergeleken met behandeling 1 vertoonden de verhoudingen van PS II-moleculen (M+2) − / M− in bladeren geen verschil onder behandeling 2. In behandeling 2 vertonen de verhoudingen van PS II-moleculen (M+1) −/M− en (M+4) −/M− geen duidelijke verschillen in bladeren in vergelijking met behandeling 1. De verhoudingen van PS II-moleculen (M+3) −/M− zijn afgenomen in bladeren in vergelijking met behandeling 1. Parijs saponin VII, PS VII. Elke kolom vertegenwoordigt het gemiddelde (± SE) van drie replicaten. "*" duidde op een significant verschil met niet-voedende behandeling (T-toets bij p < 0,01). Afkorting: PS = Paris saponins. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 4: Beschrijving van PS VII gegenereerd door exogeen 13C6-glucose dat de MVA-route binnenkomt. Schematisch diagram van het metabolisme van 13C 6-glucose-gelabeld acetylco-enzym A om PS VII-moleculen (M+2) −/M− te genereren via de MVA-route. Gelabeld koolstof wordt weergegeven in rood; Niet-gelabelde koolstof is grijs. Onder invloed van glycolyse wordt 13C6-glucose gesplitst tot twee moleculen acetylco-enzym A(M+2)-, die vervolgens isopentenylpyrofosfaat en dimethylpropenylpyrofosfaat genereert via de MVA-route en vervolgens cyclisch atenol genereert via de katalytische generatie van geranylgeranyl pyrofosfaat synthase, farnesyl pyrofosfaat synthase, squaleen synthase, squaleen epoxygenase, cycloatenol synthase Cycloartenol, vervolgens oxidatie, decarboxylering, reductie en andere reacties om cholesterol, cholesterol te verkrijgen via een reeks cytochroom P450-enzymen, glycosyltransferasen en furostanoïde saponine 26-O-β-glucosidase van de late modificatie van de vorming van PS VII-moleculen die twee gelabelde koolstof bevatten. (M+2) - geeft aan dat de COOH- van twee koolstofatomen op dit punt is geïoniseerd, en het aantal labels voor twee koolstofatomen kan worden afgeleid met behulp van (M+2) −/M−. Met behulp van standaardprotocollen wordt het isotopenlichaam individueel geïdentificeerd en werden de ionische stromen verdeeld om etiketteringsgegevens voor de isotopen te verkrijgen. De waarde van M− is stabiel. Afkorting: PS = Parijse saponinen; PS VII = Parijse saponine VII; MVA = Mevalonaat route; GPPS = Geranylgeranyl pyrofosfaatsynthase; FPPS = Farnesylpyrofosfaatsynthase; SQS = Squaleensynthase; SQE = Squaleen epoxygenase; CYPs = Cytochroom P450 enzymen; UGTs = Glucuronische transferase; F26G = Furostanoïde saponine 26-O-β-glucosidase. Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
De succesvolle implementatie van dit protocol staat of valt met uitgebreid onderzoek naar plantfysiologische eigenschappen, weefsels, organen en secundaire metabolieten. De experimentele ontwerpbenadering die in het protocol wordt beschreven, legt een robuuste basis voor het onderzoeken van de biosynthetische routes van secundaire metabolieten van planten. De kritische factoren in dit experiment zijn (1) het bepalen van de leeftijd van de meerjarige zaailingen en (2) het kiezen van de juiste timing voor het labelen en detecteren van isotopen. De geneeskrachtige planten zijn onderverdeeld in meerjarige en eenjarige, elk met verschillende patronen van secundaire metabolietsynthese en accumulatie. Dit experiment heeft tot doel de primaire synthetische organen van secundaire metabolieten in geneeskrachtige planten te verduidelijken door de synthesesnelheid van deze metabolieten te analyseren. Daarom is het essentieel om zorgvuldig de groeijaren en -stadia te selecteren die overeenkomen met deze synthesepatronen en -snelheden.
PPY is een meerjarige medicinale plant en het gehalte aan PS stapelt zich jaar na jaar op. Er werd echter aangetoond dat de snelheid van PS-synthese niet verschilde van die van PPY22 van vaste planten. Tegelijkertijd vergemakkelijkt het kleinere formaat van de 2-jarige zaailingen in vergelijking met de oudere zaailingen. Dus deze studie gebruikte 2-jarige PPY zaailingen. Dit zorgt ervoor dat de geselecteerde planten de hoogste snelheid van secundaire metabolietsynthese vertonen. Het is van cruciaal belang om de variatie in synthese en transportsnelheden van secundaire metabolieten tussen verschillende soorten te erkennen23. De optimale lengte voor de etiketteringsdetectieperiode wordt bepaald door deze snelheden. Onderzoek wijst uit dat het gehalte aan suiker en PS in PPY bladeren binnen 3 dagen afneemt24, wat wijst op een traag transportproces voor PS vanwege hun aanzienlijke molecuulgewicht, dat waarschijnlijk niet binnen dit tijdsbestek zal worden voltooid. Een behandelingsduur korter dan een paar uur kan leiden tot ontoereikende synthese- en detectieproblemen voor gelabeld PS 5,25. Omgekeerd bestaat het risico dat de behandeling langer duurt dan 3 dagen PS van de bladeren naar de wortelstok wordt verplaatst, wat de experimentele resultaten zou kunnen verstoren. Daarom wordt gekozen voor een tussenliggende etiketteringsperiode van 3 dagen om orgaaninterferentie te minimaliseren - met name voor bladspray en wortelstoketiketteringsmethoden - en zo te zorgen voor nauwkeurigere experimentele resultaten.
Eerdere isotopenetiketteringsstudies op Nicotiana tabacum26,27 en Brassica napus28 hadden een succesvolle opname en integratie van 13C6-glucose in plantenweefsels aangetoond. In ons onderzoek hebben we ons gericht op hydrocultuur gekweekte, 2-jarige PPY-zaailingen, waarbij we 13C 6-glucose-voedingsbehandelingen voor bladeren, wortelstokken en stengel-vasculaire-bundels hebben geïmplementeerd, naast niet-voedende controlebehandelingen. Met behulp van LC-MS-detectie ontdekten we dat op de derde dag na etikettering de 13C/12C-verhouding in de wortelstokken van stengel-vasculaire-bundel- en wortelstokvoedingsbehandelingen significant hoger was dan in de niet-voedende controles, wat de effectieve 13C-6-glucose-assimilatie en het succes van onze etiketteringsaanpak bevestigt (Figuur 2). In onze studie analyseerden we tegelijkertijd vier soorten isotopische ionenpiekverhoudingen voor PS VII- en PS II-moleculen in vier verschillende organen van PPY: (M+1) −/M−, (M+2) −/M−, (M+3) −/M− en (M+4) −/M−. Belangrijk is dat we merkten op dat bij de bladetiketteringsbehandeling de verhoudingen van het PS VII-molecuul (M+2) −/M− in bladeren opmerkelijk hoger waren dan in de niet-voedende behandeling. De verhouding van PS VII-moleculen (M+2) −/M− in bladeren onder de wortelstok en niet-voedende behandeling zonder verschil (Figuur 3B). Bovendien waren de verhouding van het Parijse saponinen II (PS II)-molecuul (M+2) -/M− in bladeren die een bladvoedingsbehandeling ondergingen zonder significant verschil, en de verhoudingen van PS II-moleculen (M+3) −/M− in bladeren onder bladvoedingsbehandeling lager (Figuur 3G). De behandelingen met het labelen van stam-vasculaire-bundels en wortelstokken vertoonden significante verschillen in de verhoudingen van PS II-moleculen (M+1) −/M− en (M+4) -/M− in wortelstokken in vergelijking met de niet-voedende behandeling (Figuur 3E, H).
Bij het aanpassen van deze aanpak aan andere geneeskrachtige planten is het van cruciaal belang om merkerverbindingen te selecteren die zijn afgestemd op de voorlopers van de primaire secundaire metabolieten van de plant, om de specificiteit van de marker te waarborgen. Als de doelverbinding voornamelijk in de stengel wordt gesynthetiseerd, moet de etiketteringsverbinding efficiënt naar de stengel kunnen worden getransporteerd en in de stengel kunnen worden gemetaboliseerd. Evalueer de syntheseroute opnieuw als de verwachte isotopenverhoudingen, zoals (M+2) −/M− voor PS VII, ontbreken, wat de geschiktheid van het labelen van verbindingen bevestigt. De concentratie van de etiketteringsverbinding in de voedingsoplossing moet mogelijk worden aangepast om te zorgen voor een adequate opname en integratie in de doelverbindingen in het gewenste orgaan. De LC-MS-detectieparameters moeten mogelijk worden geoptimaliseerd om de specifieke gelabelde metabolieten van belang effectief te detecteren. Dit kan inhouden dat de massaspectrometrie-instellingen worden aangepast, zoals de ionisatiemodus, om de gevoeligheid en specificiteit te verbeteren voor de verbindingen die uniek zijn voor de plantensoort en het orgaan dat wordt onderzocht. Als de 13C/12C-verhoudingen niet worden gedetecteerd in de wortelstokken van stengel-vasculaire-bundel- en wortelstok-etiketteringsbehandelingen, moet de concentratie van 13C6-glucose in de Hoagland-voedingsoplossing en de duur van de etikettering worden verlengd totdat detectie haalbaar is. De 13C6-Glucose voedingsmethoden en analytische technieken die in deze studie zijn vastgesteld, moeten als leidraad dienen voor de analyse en interpretatie van de resultaten voor het identificeren van de syntheseorganen van secundaire metabolieten in verschillende geneeskrachtige planten.
De 13C6-Glucose voedende en niet-voedende behandelingen voor bladeren, wortelstokken en stengel-vasculaire bundels in dit experiment bieden een grotere specificiteit bij het identificeren van de syntheseorganen van secundaire metabolieten in vergelijking met traditionele methoden voor het labelen van koolstofisotopen. Toch blijven er uitdagingen. Een belangrijke beperking is het ontbreken van een one-size-fits-all etiketteringsdetectieperiode die geschikt is voor alle medicinale planten. Het selecteren van een optimaal tijdsbestek verbetert de doeltreffendheid van de etikettering. Bovendien bemoeilijkt het gebruik van ratio's om resultaten te analyseren de differentiatie van functionele groepslocaties in grote, complexe isomeren. Daarom wordt een grondig literatuuronderzoek en voorbereidende experimenten geadviseerd voordat deze methodologie wordt toegepast. Deze strategie zorgt niet alleen voor nauwkeurigheid en efficiëntie, maar heeft ook belangrijke implicaties voor de plantenbiologie en farmacologie. Door deze methode te integreren met nucleaire magnetische resonantiespectroscopie, een toonaangevende techniek voor het analyseren van organische samenstellingsstructuren, kunnen 13C-labellocaties nauwkeurig worden geïdentificeerd. Deze methode maakt de weg vrij voor het verkennen van biosynthetische routes van secundaire metabolieten van planten en presenteert een gedetailleerde en effectieve benadering voor het bepalen van orgaanspecificiteit bij de synthese van secundaire metabolieten in medicinale planten.
Openbaarmakingen
De auteurs verklaren geen concurrerende financiële belangen.
Dankbetuigingen
Dit werk werd gefinancierd door de National Natural Science Foundation of China's Youth Program (nr. 82304670).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0.1 % Formic acid water | Chengdu Kelong Chemical Reagent Factory | 44890 | |
| 13C6-Glucose powder | MERCK | 110187-42-3 | |
| Acetonitrile | Chengdu Kelong Chemical Reagent Factory | 44890 | |
| AUTOSAMPLER VIALS | Biosharp Biotechnology Company | 44866 | |
| BEH C18 column | Waters,Milfor,MA | 1.7μm,2.1*100 mm | |
| CNC ultrasonic cleaner | Kunshan Ultrasound Instrument Co., Ltd | KQ-600DE | |
| Compound DiscovererTM software | Thermo Scientific, Fremont,CA | 3 | |
| Compound DiscovererTM software | Thermo Scientific,Fremont,CA | 3 | |
| Electric constant temperature blast drying oven | DHG-9146A | ||
| Electronic analytical balance | Sedolis Scientific Instruments Beijing Co., Ltd | SOP | |
| Ethanol | Chengdu Kelong Chemical Reagent Factory | 44955 | |
| Fully automatic sample rapid grinder | Shanghai Jingxin Technology | Tissuelyser-48 | |
| Gas Chromatography-Stable Isotope Ratio Mass Spectrometer | Thermo Fisher | Delta V Advantage | |
| Hoagland solution | Sigma-Aldrich | H2295-1L | |
| Hydroponic tank | JRD | 1020421 | |
| Isodat software | Thermo Fisher Scientific | 3 | |
| Liquid chromatography high-resolution mass spectrometry | Agilent Technology | Agilent 1260 -6120 | |
| Nitrogen manufacturing instrument | PEAK SCIENTIFIC | Genius SQ 24 | |
| Organic phase filter | Tianjin Jinteng Experimental Equipment Co., Ltd | 44890 | |
| Oxygen pump | Magic Dragon | MFL | |
| Quantum sensor | Highpoint | UPRtek | |
| Scalpel | Handskit | 11-23 | |
| Sprinkling can | CHUSHI | WJ-001 | |
| Xcalibur software | Thermo Fisher Scientific | 4.2 |
Referenties
- Erb, M., Kliebenstein, D. J. Plant secondary metabolites as defenses, regulators, and primary metabolites: The blurred functional trichotomy. Plant Physiol. 184 (1), 39-52 (2020).
- Li, Y., Kong, D., Fu, Y., Sussman, M. R., Wu, H. The effect of developmental and environmental factors on secondary metabolites in medicinal plants. Plant Physiol Biochem. 148, 80-89 (2020).
- Liu, S., et al. Genetic and molecular dissection of ginseng (panax ginseng mey.) germplasm using high-density genic snp markers, secondary metabolites, and gene expressions. Front Plant Sci. 14, 1165349(2023).
- Chen, X., Wang, Y., Zhao, H., Fu, X., Fang, S. Localization and dynamic change of saponins in cyclocarya paliurus (batal.) iljinskaja. PloS One. 14 (10), e0223421(2019).
- Yuan, M., et al. Ex vivo and in vivo stable isotope labelling of central carbon metabolism and related pathways with analysis by lc-ms/ms. Nat Protoc. 14 (2), 313-330 (2019).
- Cavalli, F. M. G., Bourgon, R., Vaquerizas, J. M., Luscombe, N. M. Specond: A method to detect condition-specific gene expression. Genome Biol. 12 (10), 101(2011).
- Epron, D., et al. Pulse-labelling trees to study carbon allocation dynamics: A review of methods, current knowledge and future prospects. Tree Physiology. 32 (6), 776-798 (2012).
- Varman, A. M., He, L., You, L., Hollinshead, W., Tang, Y. J. Elucidation of intrinsic biosynthesis yields using 13c-based metabolism analysis. Microb Cell Fact. 13 (1), 42(2014).
- Meng-Meng, G., Zhen-Yu, Z., Yu, Z., Qiu-Lin, Y., Ying, W. Systematic extraction and stable isotope determination of different biomarkers from single leaf of reticulate vein plants. Journal of Shaanxi University of Science & Technology. 41 (01), 72-79 (2023).
- Zhang, H., et al. A convenient lc-ms method for assessment of glucose kinetics in vivo with d-[13c6]glucose as a tracer. Clin Chem. 55 (3), 527-532 (2009).
- Chassy, A. W., Adams, D. O., Waterhouse, A. L. Tracing phenolic metabolism in vitis vinifera berries with 13c6-phenylalanine: Implication of an unidentified intermediate reservoir. J Agric Food Chem. 62 (11), 2321-2326 (2014).
- Lozac'h, F., et al. Evaluation of cams for 14c microtracer adme studies: Opportunities to change the current drug development paradigm. Bioanalysis. 10 (5), 321-339 (2018).
- Sulyok, M., Stadler, D., Steiner, D., Krska, R. Validation of an lc-ms/ms-based dilute-and-shoot approach for the quantification of > 500 mycotoxins and other secondary metabolites in food crops: Challenges and solutions. Anal Bioanal Chem. 412 (11), 2607-2620 (2020).
- Serra, F., et al. Inter-laboratory comparison of elemental analysis and gas chromatography combustion isotope ratio mass spectrometry (gc-c-irms). Part i: Delta13c measurements of selected compounds for the development of an isotopic grob-test. J Mass Spectrom. 42 (3), 361-369 (2007).
- Jung, J. -Y., Oh, M. -K. Isotope labeling pattern study of central carbon metabolites using gc/ms. J Chromatogr B Analyt Technol Biomed Life Sci. 974, 101-108 (2015).
- Ding, Y. G., et al. The traditional uses, phytochemistry, and pharmacological properties of paris l. (liliaceae): A review. J Ethnopharmacol. 278, 114293(2021).
- Cunningham, A. B., et al. Paris in the spring: A review of the trade, conservation and opportunities in the shift from wild harvest to cultivation of paris polyphylla (trilliaceae). J Ethnopharmacol. 222, 208-216 (2018).
- Madikizela, L. M., Ncube, S., Chimuka, L. Uptake of pharmaceuticals by plants grown under hydroponic conditions and natural occurring plant species: A review. Sci Total Environ. 636, 477-486 (2018).
- Tagami, K., Uchida, S. Online stable carbon isotope ratio measurement in formic acid, acetic acid, methanol and ethanol in water by high performance liquid chromatography-isotope ratio mass spectrometry. Anal Chim Acta. 614 (2), 165-172 (2008).
- Li, Y., et al. The combination of red and blue light increases the biomass and steroidal saponin contents of paris polyphylla var. Yunnanensis. Ind Crops Prod. 194, 116311(2023).
- Wang, G., et al. Tissue distribution, metabolism and absorption of rhizoma paridis saponins in the rats. J Ethnopharmacoly. 273, 114038(2021).
- Peng, S., et al. Progress in the study of differences in the types and contents of steroidal saponins in paris. Polyphylla smith var. Chinensis (franch.) hara. Modernization of Traditional Chinese Medicine and Materia Medica-World Science and Technology. 24 (05), 2014-2025 (2022).
- Alami, M. M., et al. The current developments in medicinal plant genomics enabled the diversification of secondary metabolites' biosynthesis. Int J Mol Sci. 23 (24), 15932(2022).
- Wen, F., et al. The synthesis of paris saponin vii mainly occurs in leaves and is promoted by light intensity. Front Plant Sci. 14, 1199215(2023).
- Siadjeu, C., Pucker, B. Medicinal plant genomics. BMC Genomics. 24 (1), 429(2023).
- Tian, C., et al. Top-down phenomics of arabidopsis thaliana: Metabolic profiling by one- and two-dimensional nuclear magnetic resonance spectroscopy and transcriptome analysis of albino mutants. J Biol Chem. 282 (25), 18532-18541 (2007).
- Masakapalli, S. K., et al. Metabolic flux phenotype of tobacco hairy roots engineered for increased geraniol production. Phytochemistry. 99, 73-85 (2014).
- Schwender, J., Ohlrogge, J. B., Shachar-Hill, Y. A flux model of glycolysis and the oxidative pentosephosphate pathway in developing brassica napus embryos. J Biol Chem. 278 (32), 29442-29453 (2003).
Herprints en machtigingen
