Op volbloed gebaseerde immunoassays bieden een gemakkelijk en hulpbronnenefficiënt hulpmiddel om antigeenspecifieke immuniteit te analyseren voor diagnostische en onderzoeksdoeleinden. Dit artikel biedt een geoptimaliseerd volbloedprotocol met dubbele co-stimulatie voor uitgebreide analyse van de immuniteit van de gastheer tegen schimmel- en virale pathogenen, inclusief een versie met een laag volume voor pediatrische patiënten en kleine dieren.
Methodenartikel
Volbloedtest met dubbele co-stimulatie voor antigeenspecifieke analyse van de immuniteit van de gastheer tegen schimmel- en virale pathogenen
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Snelle en hulpbronnenefficiënte monsterverwerking, hoge doorvoer en hoge robuustheid zijn van cruciaal belang voor effectieve wetenschappelijke en klinische toepassing van geavanceerde antigeenspecifieke immunoassays. Traditioneel zijn dergelijke immunoassays, met name antigeenspecifieke T-celanalyse door middel van flowcytometrie of enzymgekoppelde immunosorbentspotassays, vaak gebaseerd op de isolatie van perifere mononucleaire bloedcellen. Dit proces is tijdrovend, onderhevig aan veel pre-analytische confounders en vereist grote bloedvolumes. Op volbloed gebaseerde assays bieden een gemakkelijk alternatief met een verhoogde pre-analytische robuustheid en een lagere behoefte aan bloedvolumes. Bovendien maken op volbloed gebaseerde assays het behoud van intercellulaire interacties mogelijk die niet worden vastgelegd door assays met behulp van geïsoleerde celsubsets. Onlangs is een verfijnde volbloed immunoassay met dubbele anti-CD28 en anti-CD49d co-stimulatie voorgesteld voor uitgebreide analyse van zowel antigeenspecifieke T-celfuncties als complexe intercellulaire interacties als reactie op verschillende schimmel- en virale antigenen. Dit protocol biedt richtlijnen voor de voorbereiding van stimulatiebuizen, bloedstimulatie en stroomafwaartse monsterverwerking voor flowcytometrie, cytokinesecretietesten en transcriptieanalyses. Dit omvat een gevalideerd en functioneel equivalent, niet eerder gepubliceerd protocol met een laag volume (250 μL) om flowcytometrische en op cytokines gebaseerde T-celmonitoring toegankelijker te maken voor onderzoeken bij pediatrische patiënten of preklinische onderzoeken bij kleine dieren (bijv. muizen). Al met al bieden deze protocollen een veelzijdige gereedschapskist voor complexe antigeenspecifieke immuunanalyse in zowel klinische als translationele onderzoeksomgevingen.
Inleiding
Kwantificering en karakterisering van antigeenspecifieke immuniteit, met name specifieke T-celresponsen, is van cruciaal belang voor immunobiologie en vaccinatieonderzoek, evenals voor sommige diagnostische tests. Traditioneel waren antigeenspecifieke immunoassays vaak gebaseerd op geïsoleerde perifere mononucleaire bloedcellen (PBMC's). Het isoleren van deze cellen is echter tijdrovend en arbeidsintensief en vereist vaak relatief grote bloedvolumes. Om activering van granulocyten en daaropvolgende verstoring van de T-cellen tijdens pre-analytische opslag1 te voorkomen, is een snelle verwerking van de monsters bovendien van het grootste belang, wat in de klinische praktijk vaak niet haalbaar is. Deze beperkingen belemmeren de uitvoerbaarheid van antigeenspecifieke immunoassays in high-throughput onderzoeksscenario's en klinische routines. Daarom heeft de ontwikkeling van gebruiksvriendelijke en mogelijk automatiseerbare volbloedgebaseerde benaderingen in de afgelopen jaren nieuwe gebieden van immunoassay-toepassingen geopend. De huidige in de handel verkrijgbare systemen missen echter meestal een optimale co-stimulerende omgeving voor T-cellen en zijn gevoelig voor pre-analytische vertragingen. Een veelgebruikte op volbloed gebaseerde IFN-γ-afgiftetest heeft bijvoorbeeld een positief tot negatief reversiepercentage van 19% na 6 uur pre-analytische bloedopslag2. Geoptimaliseerde protocollen met dubbele anti-CD28 en anti-CD49d co-stimulatie zijn ontwikkeld om deze beperkingen te overwinnen 3,4,5,6.
Het hier gepresenteerde protocol maakt nauwkeurige en reproduceerbare kwantificering en karakterisering van antigeenspecifieke T-cellen mogelijk, beoordeling van door antigeen geïnduceerde cytokineresponsen en andere (flowcytometrische of transcriptionele) functionele immuunmarkers van minimaal bloedvolume, d.w.z. 500 μL bloed per stimulatiebuis. Verdere voordelen van dit protocol zijn onder meer een lage hands-on tijd, hoge veerkracht tegen pre-analytische confounders en behoud van functionele intercellulaire interacties in een relatief fysiologische ex vivo omgeving. De vergelijkbaarheid van op volbloed gebaseerde flowcytometrische antigeenspecifieke T-celkarakterisering met gegevens die zijn gegenereerd uit traditionele PBMC-gebaseerde assays is eerder aangetoond in de context van schimmelspecifieke T-celkwantificering6. Bovendien maakt directe stimulatie van het bloed van de proefpersonen de noodzaak van suppletie met autoloog, allogeen of zelfs xenogeen serum overbodig dat vaak nodig is voor optimale PBMC-stimulatie. Het weglaten van celisolatie vermindert ook de schuif- en temperatuurspanning, waardoor de levensvatbaarheid van de cel wordt verbeterd. Het belangrijkste is dat op volbloed gebaseerde assays granulocytenpopulaties behouden die verloren gaan tijdens gradiëntcentrifugatie voor isolatie van PBMC's7. Daarbij behoudt en registreert deze testopstelling functionele interactielussen tussen granulocyten en mononucleaire cellen4.
Merk op dat dit protocol slechts minimale aanpassingen vereist om verschillende uitleesmodaliteiten mogelijk te maken en zelfs een dubbele analyse van cytokineafgifte en transcriptionele reacties van dezelfde stimulatiebuis mogelijk maakt. In het bijzonder, terwijl cytokinen na stimulatie uit het kweeksupernatans worden geanalyseerd, kan de celpellet worden gebruikt voor RNA-isolatie met daaropvolgende transcriptomische analyse. De algemene workflow voor de verschillende uitleesmodaliteiten is samengevat in figuur 1.
In de afgelopen jaren is een toenemend aantal op volbloed gebaseerde tests ontwikkeld voor pathogeen-reactieve immuunmonitoring in onderzoek en klinische omgevingen, bijvoorbeeld voor Mycobacterium tuberculosis 8,9, Bordetella pertussis3, Orientia tsutsugamushi10 en SARS-CoV-2 5,11,12. Een eerder vastgesteld systeem is bijvoorbeeld gebruikt voor meerdere antigenen, waaronder M. tuberculosis, Influenza A-virus en SARS-CoV-2, maar maakt geen gebruik van co-stimulerende factoren die zijn geoptimaliseerd voor T-helper (Th) celstimulatie 13,14,15. Hoewel het bloedvolume dat nodig is voor deze tests al aanzienlijk lager is dan het volume dat wordt gebruikt voor traditionele PBMC-gebaseerde assays of in de handel verkrijgbare volbloedstimulatiekits, kan een nog kleiner monstervolume gerechtvaardigd zijn voor toepassingen in de kindergeneeskunde, neonatologie, patiënten op de intensive care (ICU) en preklinisch onderzoek in kleine diermodellen. Bijvoorbeeld, zelfs terminale bloedafname van muizen (bijvoorbeeld door middel van een hartpunctie) levert gewoonlijk een maximum van 0,7-1 ml bloed op. Als onderdeel van dit protocol is dus de mogelijkheid geëvalueerd om eerder vastgestelde volbloedgebaseerde immunoassayprotocollen 4,6 verder op te schalen voor nauwkeurige kwantificering en karakterisering van antigeen-reactieve T-celresponsen vanaf 250 μL bloedvolume per stimulatiebuis.
Protocol
De ethische commissie van de Ludwig Maximilians Universiteit München (projectnummer 21-0689) keurde het verzamelen van menselijke bloedmonsters goed. Daarnaast werden delen van de representatieve datasets gegenereerd onder Corona-Register-Studie nummer 20-426, ook goedgekeurd door de ethische commissie van de Ludwig Maximilians Universiteit München. Er werd geïnformeerde toestemming verkregen.
1. Voorbereiding van volbloedstimulatiebuisjes
OPMERKING: Deze stap is een bewerking van Lauruschkat et al.4 en Weis et al.6. Tabel 1 geeft een overzicht van gedetailleerde reagensconcentraties en -volumes.
- Bereid onder steriele omstandigheden (steriele werkbank) 2,7 ml bloedafnamebuisjes voor zonder antistollingsmiddel, met antigenen en co-stimulerende antilichamen. Voeg 1 μg/ml α-CD28 en 1 μg/ml α-CD49d toe aan elk buisje, inclusief de negatieve controle. Houd bij het bepalen van de eindconcentraties (250 μL of 500 μL) rekening met het bloedvolume dat moet worden toegevoegd voor volbloedstimulatie. Om de geometrie van de kamer en de toegankelijkheid van het monster te behouden, mag u de zuiger niet uit de bloedafnamebuis trekken.
- Bepaal op basis van de onderzoeksopzet of de negatieve controlebuisjes ofwel geen extra stimulus moeten bevatten (niet-gestimuleerde achtergrondcontrole, zoals weergegeven in Tabel 1) ofwel antigenen moeten gebruiken waarvoor het onderzoekscohort geen of minimale antigeenspecifieke T-cellen mag bevatten (bijv. een HIV-peptidepool bij hiv-seronegatieve personen 16).
- Optimaliseer voor antigeenspecifieke stimulatie de ideale concentraties van antigenen door titratie in voorbereidende experimenten. Gebruik de volgende geoptimaliseerde antigeenconcentraties om de onderstaande representatieve gegevens te genereren: 1,2 μg/ml HSV-1-lysaat, 0,6 nM/peptide/ml CMV pp65, 0,6 nM/peptide/ml SARS-CoV-2-Prot_S, 50 μg/ml Aspergillus fumigatus lysaat en 1 ng/ml CRX-527.
- Neem een positieve controle op, vooral voor onderzoeken bij lymfopenische patiënten of patiënten die immunosuppressieve farmacotherapie krijgen. Gebruik CPI-positieve controleoplossing (0,6 nM/peptide/ml), bestaande uit cytomegalovirus, para-influenzavirus en influenzaviruspeptiden.
OPMERKING: Als alternatief kunnen synthetische stimuli, zoals PMA (10 μg/ml) ± ionomycine (1 μg/ml), worden gebruikt, maar deze induceren minder fysiologische reacties en kunnen de expressie van oppervlakteantigenen beïnvloeden die vaak worden gebruikt als populatiemarkers voor flowcytometrie (met name CD417). Merk op dat co-stimulerende antilichamen niet nodig zijn in combinatie met de meeste synthetische positieve controlestimuli en zelfs een negatieve invloed kunnen hebben op de levensvatbaarheid en responsiviteit van de cel. - Om de reagensvolumes van alle stimulatiebuizen te harmoniseren, voegt u RPMI 1640-medium toe tot de volgende totale volumes: Volledige test voor flowcytometrie: 50 μL; Volledige test voor cytokineanalyse en transcriptomics: 500 μL; Kleinschalige test voor flowcytometrie: 25 μL; Kleinschalige test voor cytokineanalyse en transcriptomics: 250 μL.
OPMERKING: Voor de bereiding van meerdere sets stimulatieslangen wordt aanbevolen om mastermixen te bereiden inclusief alle ingrediënten vanwege het lagere risico op besmetting en het lage volume van co-stimulerende factoren en stimuli. - Gebruik de voorbereide buisjes onmiddellijk of cryopreservatie ze bij -20 °C. De meeste reagentia kunnen maximaal 4 weken worden bewaard; Valideer echter vooraf de maximale opslagperioden voor nieuwe reagentia/stimuli.
2. Stimulatie en incubatie van volbloedmonsters
- Ontdooi ongeveer 30-60 minuten voor de volbloedstimulatie de gebruiksklare stimulatieslangen en bewaar ze op kamertemperatuur.
- Verzamel veneus bloed van de donor/patiënt met behulp van bloedafnamebuisjes met lithiumheparine-antistollingsmiddel. Zorg ervoor dat het verzamelde bloedvolume voldoet aan de individuele experimentvereisten, d.w.z. dat er minimaal 750 μL nodig is voor 3 omstandigheden van de kleinschalige test, inclusief negatieve en positieve controle. Voor de in de handel verkrijgbare bloedafnamebuisjes, vul ze volledig om heparine-werkconcentraties van 16 - 25 IE/ml bloed te bereiken.
OPMERKING: Demografische gegevens van de gezonde volwassen proefpersonen die zijn gerekruteerd om de representatieve datasets te genereren, worden weergegeven in Tabel 2. - Breng de benodigde hoeveelheid gehepariniseerd volbloed (respectievelijk 250 μl of 500 μl voor kleinschalige of volledige test) over in de stimulatiebuizen door te pipetteren onder een steriele werkbank.
OPMERKING: Als er geen steriele werkbank beschikbaar is of als er wordt gewerkt met monsters met een minimaal risico op infectie (d.w.z. bloed van vooraf gescreende menselijke proefpersonen of dieren), kunnen monsters met steriele spuiten in de stimulatiebuizen worden geplaatst. Deze methode maakt ook monsterverwerking aan het bed direct na bloedafname mogelijk, waardoor pre-analytische opslag en T-celbeschadiging tot een minimum worden beperkt. Voordat u het bloed injecteert, desinfecteert u de rubberen afdichtingen van zowel het bloedafnamebuisje als alle stimulatiebuisjes uitgebreid met een alcoholisch desinfectiemiddel. Laat het ontsmettingsmiddel minimaal 1 minuut drogen. - Keer de stimulatieslangen voorzichtig 5x-10x om. Plaats de stimulatieslangen in een incubator van 37 °C. Merk op dat een CO2 -incubator niet nodig is. Om niet-specifieke activering van neutrofielen te voorkomen, mag u de bloedafnamebuis niet in de koelkast bewaren.
OPMERKING: Dit protocol is gevalideerd voor pre-analytische bloedopslag tot 8 uur bij kamertemperatuur om monstertransport mogelijk te maken. Indien mogelijk verdient het de voorkeur om volbloed in de stimulatiebuizen op de plaats van afname te injecteren en bloed in de stimulatiebuizen naar een centraal laboratorium te vervoeren, omdat co-stimulerende factoren de levensvatbaarheid van lymfocyten zullen verbeteren 18,19. - Alleen voor monsters die worden gebruikt voor flowcytometrische tests met intracellulaire kleuring, voeg brefeldin A (eindconcentratie van 10 μg/ml) toe aan elke stimulatiebuis na 4 uur incubatie.
- Bereid een 1 mg/ml brefeldin A-oplossing in RPMI en voeg 1 μl van de oplossing toe per monstervolume van 100 μl (d.w.z. voorgemengde stimulatiecocktail + volbloedvolume). Voeg brefeldin A toe door de buisjes los te maken en onder een steriele werkbank te pipetteren. Schuif de buizen terug naar de incubator van 37 °C en voer ze nog 16-18 uur terug bij 37 °C (20-22 uur in totaal).
- Voor cytokinesecretietests of transcriptieanalyses mag geen brefeldin A worden toegevoegd en moeten de monsters gedurende 24-26 uur continu bij 37 °C worden geïncubeerd.
OPMERKING: Brefeldin A remt het Golgi-apparaat en heft daardoor de cytokinesecretie en het transport van eiwitten naar het celoppervlak op. Aangezien secretie of oppervlakte-expressie uiteindelijk zal resulteren in eiwitverlies en -afbraak na respectievelijk herinternalisatie, zijn exocytoseremmers essentieel voor intracellulaire accumulatie en kleuring van cytokines en sommige activeringsmarkers (bijv. CD154) voor flowcytometriestudies. Brefeldin A verstoort echter ook fysiologische cellulaire processen die zichtbaar zijn in het transcriptoom en maakt cytokinesecretietesten van kweeksupernatanten20,21 ongeldig, waardoor het gebruik van twee afzonderlijke reageerbuizen (één met en één zonder brefeldin A) nodig is om deze uitlezingen parallel uit te voeren.
3. Voorbereiding van monsters voor flowcytometrie
- Voeg 500 μL 0,5 M EDTA-oplossing toe aan elke stimulatiebuis en incubeer het monster gedurende 15 minuten bij kamertemperatuur om aanhangende cellen los te maken van het oppervlak van de buisjes.
- Breng de monsters over in nieuwe centrifugebuisjes van 15 ml. Spoel de stimulatiebuisjes met 1 ml erytrocytenlysisbuffer om de resterende bloedcellen te verzamelen en voeg vervolgens de buffer en cellen toe aan dezelfde centrifugebuisjes van 15 ml.
- Centrifugeer de buisjes van 15 ml gedurende 7 minuten op 600 x g. Gooi de supernatant voorzichtig weg.
- Resuspendeer de bloedcelkorrel in de lysisbuffer van erytrocyten (Figuur 2A). Gebruik 5 ml erytrocytlysisbuffer voor 500 μl volbloed en 3 ml voor 250 μl volbloed.
OPMERKING: Optimale lysisomstandigheden voor erytrocyten moeten vooraf worden geëvalueerd voor de specifieke buffer die wordt gebruikt (intern bereid of commercieel product). De hier gegeven instructies zijn geoptimaliseerd voor de erytrocytlysisbuffer die in de materiaaltabel wordt vermeld. - Incubeer de monsters bij kamertemperatuur totdat de monsters helder lijken (Figuur 2B). Om granulocytlysis en aggregatie te voorkomen, mag de incubatietijd niet langer duren dan 6 minuten. Een indicator van succesvolle erytrocytlysis is het vermogen om de cijfers en schaal op de buis van 15 ml door de vloeistof te zien (Figuur 2C).
- Centrifugeer de buisjes van 15 ml gedurende 7 minuten op 600 x g. Gooi het supernatant voorzichtig weg, herhaal stap 3.4-3.5 als de celpellet nog steeds opvallend rood is.
- Resuspendeer de celpellet in 1 ml HBSS en breng de cellen over in reactiebuisjes van 2 ml.
- Centrifugeer de buisjes van 2 ml gedurende 5 minuten op 400 x g. Gooi de supernatant voorzichtig weg.
- Voer flowcytometrische kleuring uit volgens de instructies van de fabrikant voor de intracellulaire kleuringsset en de gebruikte antilichamen.
OPMERKING: Het antilichaampanel dat is gebruikt om de representatieve dataset te genereren, is samengevat in Tabel 3.
4. Voorbereiding van monsters voor cytokinetests
- Breng na stap 2.6 het verdunde bloed uit de stimulatiebuisjes over in buisjes van 1,5 ml.
- Centrifugeer de buisjes van 1,5 ml gedurende 20 minuten op 2000 x g. Pipetteer het supernatans voorzichtig in een vers buisje van 1,5 ml en gebruik het onmiddellijk voor cytokineanalyse of cryopreservatie van de supernatanten bij -80 °C.
- Centrifugeer het supernatans opnieuw gedurende 5 minuten op ≥ 7000 x g (in buisjes van 1,5 ml) om achtergebleven celresten te verwijderen vóór de analyse, vooral na het ontdooien. Afhankelijk van het cytokinetestprotocol voert u voorverdunning van de monsters uit.
- Resuspendeer de celpellet in 1 ml RNA-beschermingsbuffer en cryopreserve deze bij -80 °C voor daaropvolgende RNA-isolatie. U kunt de celpellet ook resuspenderen in lysisbuffer voor onmiddellijke RNA-isolatie volgens de instructies voor de RNA-isolatiekit (of het interne protocol).
OPMERKING: Indien nodig, afhankelijk van het daaropvolgende RNA-verwerkingsprotocol, kan een erytrocytlysestap vergelijkbaar met 3.4-3.5 worden toegevoegd voordat de RNA-beschermingsbuffer wordt toegevoegd.
Resultaten
Multimodale analyse van antigeenspecifieke immuunresponsen na volbloedstimulatie met pathogeen-geassocieerde antigenen
Om een representatieve dataset te genereren, werd een gezonde volwassen donor geselecteerd die seropositief was voor HSV-1 en CMV en die SARS-CoV-2-vaccinaties had gekregen. Naast een niet-gestimuleerde controle zijn de volgende stimuli gebruikt zoals hierboven beschreven: Herpes simplexvirus 1 (HSV) lysaat (aanbeveling van de fabrikant, niet-gepubliceerde gegevens), cytomegalovirus (CMV) pp6522, ernstig acuut respiratoir syndroom coronavirus 2 (SARS-CoV-2) Prot_S 5,23, Aspergillus fumigatus lysaat (een alomtegenwoordige milieupathogeen )4,24, CRX-527 (een Toll-like Receptor 4-stimulus op basis van lipopolysaccharide, die op zichzelf geen T-cellen zou moeten activeren)25, en CPI (positieve controle voor CD4+ T-celactivering bestaande uit CMV, para-influenzavirus en influenzaviruspeptiden)26. De flowcytometrische gegevens en de gatingstrategie worden weergegeven in figuur 3. Over het algemeen wordt geadviseerd om zoveel mogelijk lymfocyten te meten bij het richten op zeldzame celpopulaties (50.000 - 100.000 lymfocyten), aangezien de precisie en betrouwbaarheid van de metingen afhankelijk zijn van het totale aantal voorvallen27. Het niet-gestimuleerde monster wordt gebruikt voor het afschermen van individuele celsubsets (bijv. CD3+CD4+-cellen). De poorten voor CD45RO en CCR7 voor geheugen T-celfenotypering moeten worden ingesteld op de totale CD3+CD4+-populatie en vervolgens worden overgebracht naar de activeringsmarker-positieve populaties, aangezien de lage gebeurtenisaantallen op de laatste vaak een duidelijke identificatie van afzonderlijke populaties verhinderen. Kleine aanpassingen kunnen nodig zijn voor individuele poorten, bijvoorbeeld om rekening te houden met verschillen in de levensvatbaarheid van lymfocyten. Opregulatie van CD154 (of CD40-ligand) is beschreven als een wereldwijde, consistente en snel geïnduceerde T-helpercelactiveringsmarker28,29. IFN-γ wordt beschouwd als een van de meest prominente en type-1-specifieke T-celactiveringsmarkers30,31. Belangrijk is dat deze test is getest en gepubliceerd met verschillende aanvullende activerings-, uitputtings- en cytokinemarkers (zie tabel 4 en24).
Frequenties van activeringsmarker-positieve populaties in de niet-gestimuleerde steekproef vertegenwoordigen niet-specifieke achtergronden en werden afgetrokken van antigeen-gestimuleerde frequenties. Na aftrek van niet-specifieke achtergrond had de representatieve donor respectievelijk 0,75% (HSV), 0,09% (CMV), 0,06% (SARS-CoV-2), 0,34% (A. fumigatus), 0,00% (CRX-527) en 1,21% (CPI) specifieke CD154+/CD3+CD4+ T-helpercellen. IFN-γ-expressie kan op dezelfde manier worden geanalyseerd, wat resulteert in 0,12% (HSV), 0,07% (CMV), 0,03% (SARS-CoV-2), 0,04% (A. fumigatus), 0% (CRX-527) en 0,74% (CPI) IFN-γ+/CD3+CD4+- cellen.
T-celpopulaties kunnen verder worden onderverdeeld in naïeve T-cellen (TN, CD45RO-CCR7+), centrale geheugen-T-cellen (TCM, CD45RO+CCR7+), effectorgeheugen T-cellen (TEM, CD45RO+CCR7-) en effector-T-cellen (en effectorgeheugen T-cellen die CD45RA, TE/TEMRA, CD45RO-CCR7-). Van de wereldwijde CD3+CD4+ T-cellen had de representatieve donor respectievelijk 38,34% TN, 38,33% TCM, 20,77% TEM en 2,56% TE/TEMRA, zoals bepaald met behulp van de niet-gestimuleerde steekproef (Figuur 3A). Onder antigeenspecifieke reactieve T-helpercellen (CD154+IFN-γ+) waren TCM en TEM echter verreweg de meest prominente subsets, met gemiddelden van respectievelijk 22,14% en 73,97%.
Gegevens over extra leukocytenpopulaties zijn eerder gepubliceerd met behulp van deze methodologie24. De gebruikte antilichaamcombinaties worden ter verdere referentie weergegeven in tabel 4 .
Om het volledige potentieel van deze methodologie aan te tonen, is bovendien een IFN-γ ELISA uitgevoerd op een tweede set gestimuleerde monsters (zonder toevoeging van brefeldin A). Om overschrijding van het detectiebereik van de IFN-γ ELISA-kit te voorkomen, werd plasma uit CPI-gestimuleerde monsters 1:4 voorverdund. De volgende IFN-γ concentraties werden gemeten en genormaliseerd per ml van het bloedvolume van de proefpersoon, d.w.z. gecorrigeerd voor verdunning in zowel de stimulatiebuisjes als pre-ELISA-verdunningen: 0 pg/ml (niet-gestimuleerd), 69,4 pg/ml (HSV), 471 pg/ml (CMV), 17,8 pg/ml (SARS-CoV-2), 61,9 pg/ml (A. fumigatus), 34,0 pg/ml (CRX-527) en 1958 pg/ml (CPI).
Ten slotte werd RNA geïsoleerd uit dezelfde monsters met consistente resultaten. De gemiddelde opbrengst was 719 ng, met een gemiddelde absorptieverhouding van 260 nm/280 nm van 1,98.
Al met al illustreert deze dataset dat het gepresenteerde protocol een veelzijdig uitleesspectrum en gelijktijdige analyse van verschillende infectie-geassocieerde antigenen mogelijk maakt met een minimaal bloedvolume, d.w.z. 8 ml in totaal voor meerdere stimuli en uitleesmodaliteiten.
Representatieve dataset voor transcriptionele analyses om de vaccinatierespons te volgen met behulp van antigeen-gestimuleerd volbloed
Als proof-of-principle voor transcriptionele studies uitgevoerd op antigeen-gestimuleerd volbloed, werd bloed afgenomen van 9 gezonde volwassen proefpersonen onmiddellijk voor en 1 maand na de eerste boostervaccinatie met BNT162b2 (SARS-CoV-2 mRNA-vaccin)32,33 7-9 maanden na de eerste vaccinreeks met twee doses. De gemiddelde RNA-opbrengst van 500 μL niet-gestimuleerd en Prot_S-gestimuleerd volbloed was 1,1 μg zeer zuiver RNA, met een gemiddelde 260/280 absorptieverhouding van 1,99. Na nCounter-analyse werden de RNA-tellingen genormaliseerd naar de 12 huishoudgenen van het panel (geometrisch gemiddelde). Vervolgens werd voor elke proefpersoon en elk gen de verhouding tussen genormaliseerde mRNA-tellingen in Prot_S-gestimuleerde monsters versus niet-gestimuleerde achtergrondcontroles bepaald. Mediaan-tot-mediane verhoudingen van post- versus pre-vaccinatiemetingen werden bepaald en pathway-verrijkingsanalyse werd uitgevoerd met behulp van het softwarepakket dat in de materiaaltabel wordt vermeld. Verrijking van canonieke routes werd als significant beschouwd bij een absolute z-scorewaarde ≥ 1,25 en een voor Benjamini-Hochberg gecorrigeerde p-waarde < 0,05. Significant verschillend verrijkte routes worden samengevat in Figuur 4A, en een vereenvoudigd netwerk van achtergrondgecorrigeerde veranderingen in post- versus pre-vaccinatierespons op Prot_S wordt weergegeven in Figuur 4B. Bovendien wordt een sterkere achtergrondgecorrigeerde inductie van representatieve genen die verband houden met antigeenpresenterende celrijping en Prot_S-geïnduceerde T-celactivering na boostervaccinatie getoond in (p < 0,01-0,03) Figuur 4C. Ten slotte werd een toename van achtergrondgecorrigeerde Prot_S-specifieke type 1 T-helpercellen (CD69+IFN-γ+) na vaccinatie bij de meeste donoren bevestigd door flowcytometrie met behulp van een tweede set stimulatiebuizen (p = 0,03, figuur 4D).
Vergelijking van virusreactieve T-celresponsen in volledige en op kleine volumes volbloed gebaseerde immunoassayprotocollen
Vervolgens werden frequenties van virusreactieve CD154+IFN-γ+ T-helpercellen (CD3+CD4+ -cellen) bij gezonde vrijwilligers vergeleken met behulp van de volledige (500 μL, WB) en klein-volume (250 μL, WBS) volbloed antigeenstimulatieprotocollen (Figuur 5). Zoals eerder gerapporteerd34, werden minimale niet-specifieke achtergrondfrequenties van CD154+IFN-γ+ -cellen gezien met beide protocollen, ondanks dubbele co-stimulatie (betekent 0,010% en 0,011% voor respectievelijk WB en WBS). Merk op dat, hoewel niet-specifieke achtergrondresponsen worden afgetrokken van antigeenspecifieke responsen, ze nog steeds bijdragen aan een verhoogde onnauwkeurigheid van de test, zoals eerder besproken27. Verhoogde achtergrondsignalen (d.w.z. >0,07-0,1% CD154+ Th-cellen of >0,05% CD154+IFN-γ+ cellen) kunnen duiden op monsterbesmetting, een acute infectie van de proefpersoon of kunnen het gevolg zijn van ongepaste pre-analytische monsterbehandeling.
De gemiddelde HSV-lysaat-reactieve T-celfrequenties bij seropositieve donoren (n = 5) waren respectievelijk 0,151% en 0,107% in WB- en WBS-systemen, vergeleken met 0,012% en 0,004% bij seronegatieve donoren (n = 4). Met de CMV pp65-peptidepool hadden seropositieve donoren (n = 4) 0,041% en 0,049% reactieve T-cellen vergeleken met 0,001% en 0,004% bij seronegatieve donoren (n = 5). De concordantiecorrelatiecoëfficiënten van Lin waren 0,868 voor HSV en 0,985 voor CMV, wat een sterke correlatie suggereert (figuur 5A). Met name CMV-specifieke T-celtesten kunnen negatief zijn bij gezonde seropositieve proefpersonen die geen recente reactiveringsgebeurtenissen hebben gehad. Zowel het totale als de antigeen-reactieve CD3+CD4+ T-helpercelrepertoires werden verder gedifferentieerd op basis van CCR7- en CD45RO-expressie (Figuur 5B). Geruststellend is dat de resultaten die werden verkregen met behulp van de WB- en WBS-protocollen vergelijkbaar waren voor zowel totale als antigeenreactieve populaties. Verwacht werd dat bij beide testen het aandeel van meer gedifferentieerde geheugen-Th-cellen (d.w.z. effectorgeheugencellen) hoger was onder de antigeen-reactieve T-cellen dan onder de totale Th-celpopulatie. Zoals verwacht werden slechts enkele naïeve T-cellen geactiveerd door virale stimulerende middelen (Figuur 5B).
Bovendien werden in een andere reeks experimenten gestimuleerde kweeksupernatanten geanalyseerd door IFN-γ ELISA (Figuur 5C). Er werd een minimale niet-specifieke achtergrond gezien (gemiddelden van 1,29 pg/ml en 2,18 pg/ml in respectievelijk WB- en WBS-protocollen). Bloedmonsters van HSV-seropositieve donoren vertoonden gemiddelde, voor de achtergrond gecorrigeerde HSV-geïnduceerde IFN-γ concentraties van respectievelijk 111 pg/ml en 125 pg/ml in het WB- en WBS-systeem. Daarentegen waren de IFN-γ-concentraties in seronegatieve monsters in beide systemen consequent lager dan 10 pg/ml (Lin's concordantiecorrelatiecoëfficiënt = 0,972, figuur 5C). Evenzo leverde pp65-stimulatie van bloed van CMV-seropositieve donoren gemiddelde IFN-γ-concentraties op van 258 pg/ml en 272 pg/ml in respectievelijk WB- en WBS-systemen, terwijl minimale pp65-geïnduceerde IFN-γ-secretie werd gezien in beide systemen met behulp van seronegatieve monsters (Lin's concordantiecorrelatiecoëfficiënt = 0,953, figuur 5C).
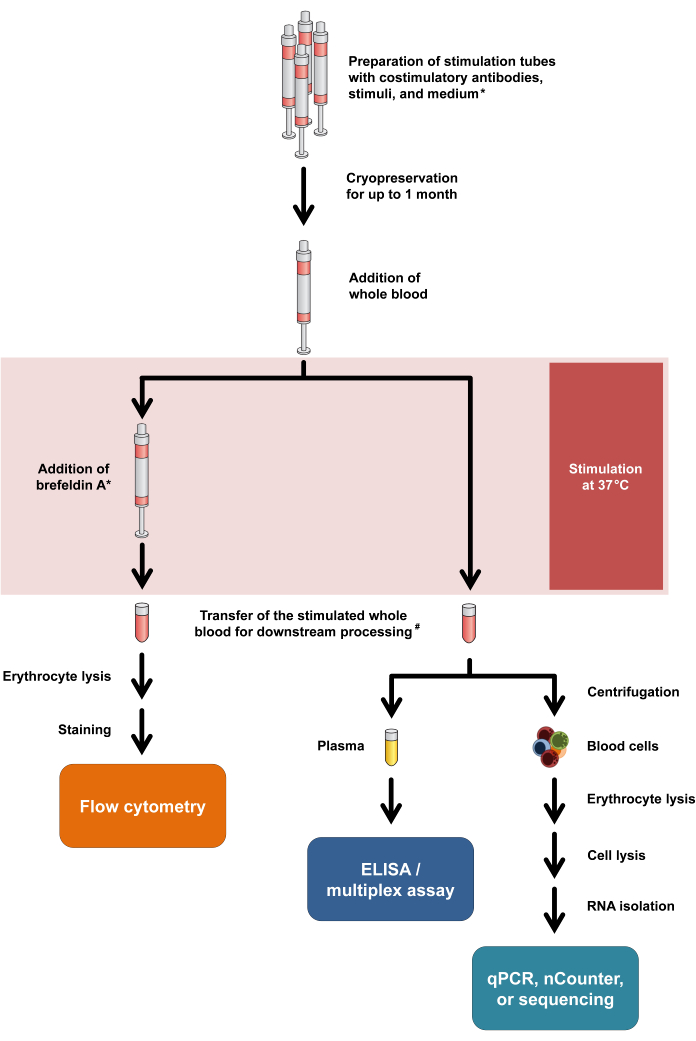
Figuur 1: Stroomdiagram met een samenvatting van experimentele procedures en uitlezingen. Asterisk betekent dat Brefeldin A vereist is voor sommige T-celactiveringsmarkers (bijv. CD154) en intracellulaire cytokinekleuring. Zie protocolstappen 2.5 en 2.6. #: Bloed voor flowcytometrie wordt in eerste instantie overgebracht naar centrifugebuisjes van 15 ml voor lysis van erytrocyten, terwijl bloed voor cytokinetesten en transcriptomics wordt overgebracht naar microcentrifugebuisjes van 1,5 ml. Klik hier om een grotere versie van deze figuur te bekijken.
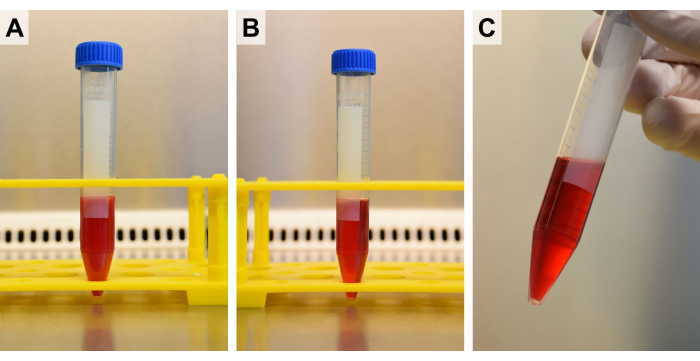
Figuur 2: Erytrocyt lysis. Nadat gestimuleerd bloed is geresuspendeerd in (A) erytrocytlysisbuffer, wordt het geïncubeerd totdat (B) de vloeistof helder lijkt, maar niet langer dan 6 minuten. (C) Bij gebruik van een buisje van 15 ml moet de schaal zichtbaar worden door het steeds doorschijnender wordende monster. Klik hier om een grotere versie van deze figuur te bekijken.
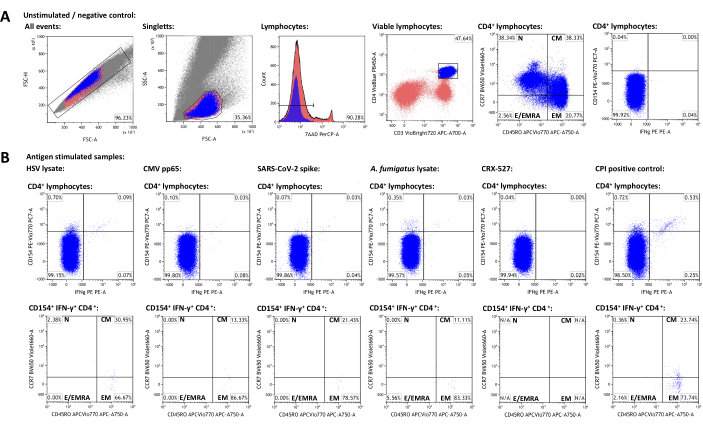
Figuur 3: Representatieve dataset en flowcytometrische poortschema's. (A) Singlet-gebeurtenissen worden geïdentificeerd aan de hand van FSC-A- en FSC-H-eigenschappen. Daarvan zijn lymfocyten omheind met FSC-A en SSC-A. Lymfocyten worden gedifferentieerd in CD3+CD4+ T-helpercellen. CD45RO- en CCR7-expressieniveaus worden gebruikt voor fenotypering van geheugen- en effectorcelpopulaties. IFN-γ en CD154 werden gebruikt als activeringsmarkers. Gates werden ingesteld op basis van de IFN-γ-CD154-populatie in de niet-gestimuleerde steekproef. Gates werden vervolgens overgebracht naar de gestimuleerde monsters (B). Karakterisering van geheugenpopulaties van de geactiveerde T-cellen werd bereikt door de CCR7/CD45RO-kwadrantpoort over te brengen van de CD3+CD4+-populatie naar de IFN-γ+CD154+CD3+CD4+-populaties. Klik hier om een grotere versie van deze figuur te bekijken.
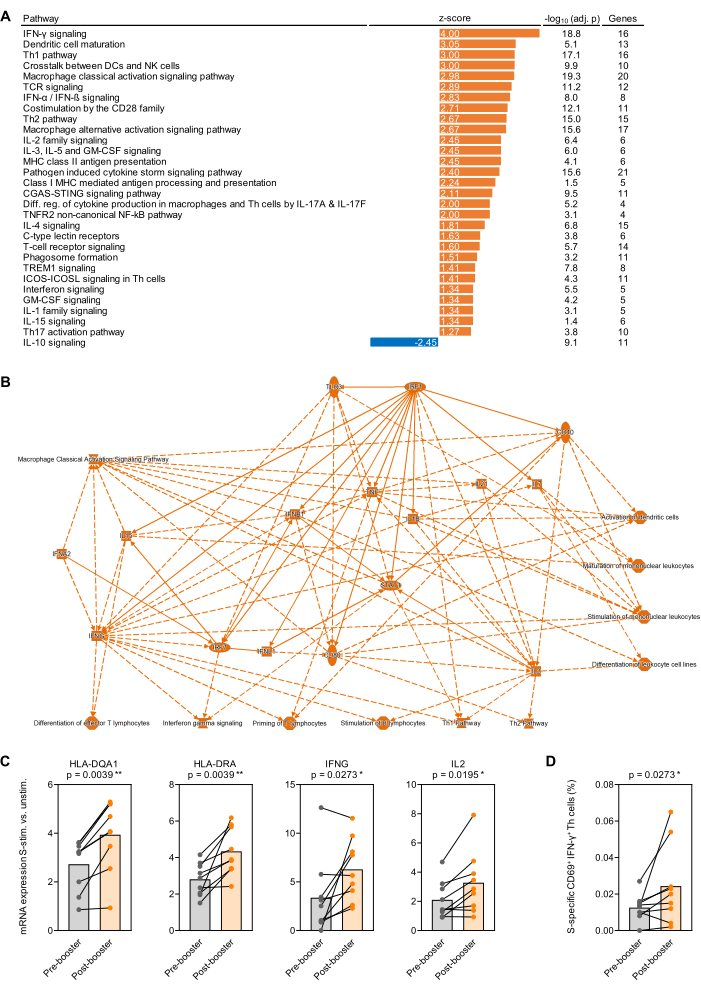
Figuur 4: Antigeen-geïnduceerde transcriptionele veranderingen na SARS-CoV-2-boostervaccinatie. (A) Achtergrondgecorrigeerde verrijking van transcriptieroutes in SARS-CoV-2 spike-eiwit (Prot_S)-gestimuleerd volbloed na versus vóór (eerste) BNT162b2 mRNA-boostervaccinatie werd geanalyseerd bij 9 gezonde volwassen proefpersonen. Immuungerelateerde canonieke routes met een Benjamini-Hochberg-gecorrigeerde (BH-adj.) p-waarde <0,05 (-log10[BH-adj. p] >1,3) en een absolute z-score >1,25 worden getoond. (B) Vereenvoudigd netwerk met een samenvatting van genen en routes die sterker verrijkt zijn in S-gestimuleerd volbloed na versus vóór boostervaccinatie. (C) Achtergrondgecorrigeerde expressieniveaus van representatieve genen geassocieerd met antigeenpresentatie en T-celactivering in Prot_S-gestimuleerd volbloed voor en na boostervaccinatie. Gepaarde Wilcoxon-test. (D) Achtergrondgecorrigeerde frequenties van Prot_S-specifieke IFN-γ+CD69+ T-cellen voor en na boostervaccinatie. Gepaarde Wilcoxon-test. Klik hier om een grotere versie van deze figuur te bekijken.
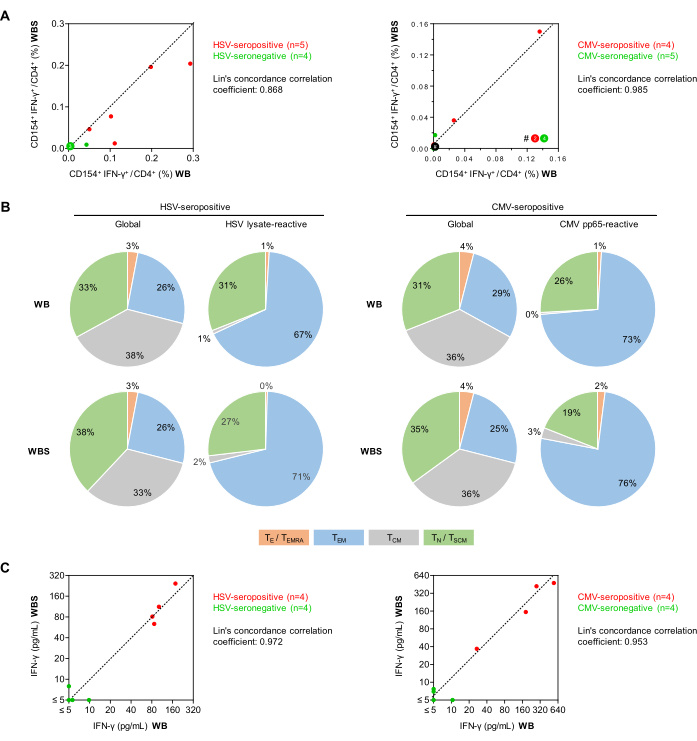
Figuur 5: Antivirale T-cel reactiviteit in flowcytometrie en ELISA. (A) Correlatiegrafieken van achtergrondgecorrigeerde CD154+IFN-γ+/CD3+CD4+ T-celfrequenties (flowcytometrie) van de gevestigde (WB) en klein-volume (WBS) volbloedassays worden getoond. Groene en rode stippen vertegenwoordigen proefpersonen die respectievelijk seronegatief en seropositief zijn voor het geteste virus. (B) Met behulp van flowcytometrische beoordeling van CD45RO- en CCR7-expressie werden geheugen/effector T-celfenotypes bepaald onder wereldwijde CD3+CD4+ T-cellen en antigeen-reactieve IFN-γ+CD154+CD3+CD4+ T-cellen na stimulatie met HSV-lysaat of CMV pp65 met behulp van bloed van seropositieve donoren (n = respectievelijk 5 en 4). Gemiddelde verdelingen worden weergegeven. Groen: naïeve T-cellen(TN), CD45RO-CCR7+. Grijs: centrale geheugen T-cellen (TCM), CD45RO+CCR7+. Blauw: effector geheugen T-cellen (TEM), CD45RO+CCR7-. Oranje: effector T-cellen en effector geheugen T-cellen die CD45RA (TE/TEMRA) opnieuw tot expressie brengen, CD45RO-CCR7-. (C) Correlatiegrafieken van achtergrondgecorrigeerde IFN-γ-afgifte (ELISA) gemeten met behulp van de WB- en WBS-assays. Klik hier om een grotere versie van deze figuur te bekijken.
Tabel 1: Inhoud van de prikkelbuis. Voorraadconcentraties van stimuli en oplosmiddelen worden samengevat. De volbloedtest op volledige schaal (WB) wordt uitgevoerd met behulp van 500 μl lithium gehepariniseerd volbloed, terwijl de kleinschalige versie (WBS) slechts 250 μl bloed vereist. Voor WBS zijn alle reagensvolumes de helft van de WB-volumes. Klik hier om deze tabel te downloaden.
Tabel 2: Demografische gegevens van gezonde volwassen proefpersonen die zijn bemonsterd om de representatieve datasets te genereren. Klik hier om deze tabel te downloaden.
Tabel 3: Representatief flowcytometrisch panel voor T-celanalyse. Dit flowcytometrische panel is gebruikt om de representatieve dataset te genereren. De resultaten worden in detail weergegeven in figuur 3. Klik hier om deze tabel te downloaden.
Tabel 4: Eerder gepubliceerde flowcytometrische panelen. Gegevens met behulp van deze antilichaamcombinaties zijn eerder gepubliceerd door Tappe et al.24. Klik hier om deze tabel te downloaden.
Discussie
Antigeenspecifieke immunoassays geven inzicht in de interacties tussen gastheer en microbe, zijn cruciaal voor onderzoek naar vaccinatie en immunotherapie en worden steeds meer erkend als diagnostische en prognostische modaliteiten bij patiënten met opportunistischeinfecties35. Dit protocol beschrijft een eenvoudig antigeenstimulatiesysteem dat een robuuste en multimodale analyse van antigeenspecifieke immuniteit mogelijk maakt met minimale bloedvolumes (250-500 μL per antigeen). Het verkleinde protocol van 250 μL leverde een uitstekende correlatie op van antigeenspecifieke T-celfrequenties, fenotypes en cytokineproductie in vergelijking met het eerder vastgestelde protocol van 500 μL. Ondanks de beschikbaarheid van oplossingen met een klein volume voor sommige stappen van de monsterverwerking36, kan voor zover de auteurs weten, geen enkel momenteel beschikbaar commercieel systeem op betrouwbare wijze antigeenstimulatie en veelzijdige functionele analyse van T-cel-gestuurde functionele immuunresponsen ondersteunen door flowcytometrie, cytokine-afgiftetesten en transcriptomics van bloedvolumes van 250-500 μL. Het meest gebruikte commerciële systeem dat een vergelijkbaar spectrum van onderzoekstoepassingen mogelijk maakt, maakt gebruik van een bloedvolume van 1 ml in een stimulatieomgeving van 3 ml, wat resulteert in aanzienlijk hogere kosten en benodigde hoeveelheden antigenen in vergelijking met het hier gepresenteerde protocol 13,14,15.
Ondanks de continue optimalisatie van volbloedprotocollen voor flowcytometrische kwantificering van antigeenspecifieke T-cellen 6,37,38, hebben flowcytometrische metingen verschillende nadelen. Ze blijven met name arbeidsintensief van aard en zijn moeilijk te standaardiseren vanwege de aanzienlijke variabiliteit tussen de operators (bijv. het subjectieve poortproces) en verschillende opstellingen van apparatuur, compensatieprotocollen en acquisitieparameters tussen laboratoria. Hoewel gestandaardiseerde rapportage39 en het gebruik van geautomatiseerde analyse- en gatingsoftware de standaardisatie en vergelijkbaarheid van steeds complexere veelkleurige datasetskunnen verbeteren 40,41, is het hier beschreven stimulatieprotocol ontworpen om plaats te bieden aan verschillende niet-flowcytometrische uitleesmodaliteiten.
In het bijzonder kunnen cytokine-afgiftetests worden uitgevoerd met een lage hands-on tijd en relatief goedkope apparatuur, en ze zijn vaak gemakkelijk te standaardiseren voor routinematige klinische toepassingen. Bovendien, zoals aangetoond in eerdere studies met behulp van dit protocol, kan een groot aantal cytokineresponsen worden gemeten uit minimale monstervolumes met moderne gemultiplexte assays, waardoor profilering van complexe cytokinesignaturen in onderzoeksomgevingen mogelijk is24,42. Merk op dat dit robuuste protocol met dubbele co-stimulatie een betrouwbare kwantificering van antigeenspecifieke cytokineresponsen mogelijk maakt bij niet-lymfopenische patiënten (>800 lymfocyten/μL bloed), zelfs bij degenen die iatrogene immunosuppressie krijgen 26,34. Als nadeel van cytokine-afgiftetests, vooral bij patiënten met leukopenie, kunnen uitgescheiden cytokinen niet worden herleid tot individuele celpopulaties. In sommige gevallen kan dit worden verzacht door het gebruik van celspecifieke stimuli, indien beschikbaar. Een combinatie van cytokineconcentraties met andere uitleesmodaliteiten en/of aanpassing van cytokineresponsen op basis van klinische hematologie (d.w.z. volledig bloedbeeld met leukocytendifferentiatie) kan echter nodig zijn. Het hier gepresenteerde protocol maakt met name een combinatie van cytokine-uitlezingen en transcriptionele handtekeningen van hetzelfde monster mogelijk, waardoor een concordante analyse mogelijk wordt van goed gedefinieerde transcriptionele activeringsmarkers die cellulaire context en specificiteit kunnen toevoegen aan globale cytokine-handtekeningen.
Een toekomstige stap in de richting van volledige standaardisatie en een nog betere klinische uitvoerbaarheid zou volledige automatisering van deze tests zijn, van monsterverwerking tot analytuitlezing. Hoewel nauwkeurige geautomatiseerde isolatie van individuele celpopulaties met succes is vastgesteld43,44, vereist de antigeenspecifieke T-celanalyse nog steeds dat laboratoriumpersoneel intermitterende hanteringsstappen neemt. Het weglaten van celisolatie en het hanteren van kwetsbare PBMC en het gebruik van commerciële, automatiseringscompatibele stimulatiebuizen zou echter de implementatie van eenvoudige, volledig geautomatiseerde volbloedgebaseerde workflows voor functionele immunoassays kunnen vergemakkelijken.
Al met al zijn veelzijdige, op volbloed gebaseerde protocollen, zoals degene die hierin wordt gepresenteerd, veelbelovend om toepassingen van antigeenspecifieke functionele immunoassays uit te breiden naar nieuwe patiëntencohorten en onderzoeksgebieden, inclusief preklinische studies bij kleine dieren. Antigeenspecifieke functionele immunoassays zijn momenteel grotendeels onhaalbaar in muizenmodellen of vereisen pooling van bloed van verschillende dieren en/of het gebruik van niet-gestandaardiseerde celextracten zoals splenocyten. Gezien de opkomende belangstelling voor immunotherapeutische interventies om de afweer van de gastheer tegen opportunistische infecties te versterken (bijv. immuuncheckpointremmers, hematopoëtische groeifactoren, cytokines, enz.) en de toename van innovatieve vaccinatietechnologieën, wordt verwacht dat antigeenspecifieke functionele immunoassays een steeds grotere rol zullen spelen in zowel preklinisch onderzoek naar infectieziekten als klinische toepassingen in diverse patiëntenpopulaties. Het robuuste, goedkope, gebruiksvriendelijke antigeenstimulatiesysteem met een laag volume dat hier wordt gepresenteerd, kan uitgebreide antigeenspecifieke immuunanalyses in onaangeboorde gebieden mogelijk maken. Bovendien zou de pre-analytische robuustheid van dit gemakkelijke protocol kansen kunnen creëren voor een betere integratie van immunoassay-toepassingen in de klinische routine, waardoor we een stap dichter bij gepersonaliseerd, biomarker-gedreven beheer van infectieziekten kunnen komen.
Openbaarmakingen
Er zijn geen belangenconflicten die door de auteurs openbaar moeten worden gemaakt.
Dankbetuigingen
We danken de afdelingen klinische chemie en infectieserologie van het Instituut voor laboratoriumgeneeskunde en microbiologie van het Universitair Ziekenhuis van Augsburg voor het uitvoeren van serumantilichaammetingen. Wij danken Dr. Friederike Liesche-Starnecker en het Instituut voor Pathologie en Moleculaire Diagnostiek van het Universitair Ziekenhuis Augsburg voor het ter beschikking stellen van transcriptomics-faciliteiten. Wij danken Marie Freitag van het Universitair Ziekenhuis Augsburg voor haar ondersteuning bij de logistiek van vaccinees en de aanschaf van monsters. Wij danken Dr. Olaf Kniemeyer en het Hans-Knoell-Instituut in Jena, Duitsland, voor het ter beschikking stellen van Aspergillus fumigatus lysaat. Het onderzoeksinitiatief Bay-VOC (financieringsnummer GE2-2452-200-D37666/2022), het Beierse ministerie van Wetenschap en Kunst, evenals de Universiteit van Augsburg, Duitsland, ondersteunden dit werk.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 7-AAD Solution | Miltenyi Biotec | 130-111-568 | |
| Anti-IFN-g-PE, human, REA600, 100 tests | Miltenyi Biotec | 130-113-498 | |
| Aspergillus fumigatus lysate | N/A | N/A | Vriendelijk verstrekt door het Hans-Knoell Institute Jena, Duitsland |
| Brilliant Violet 650 anti-human CD197 (CCR7) Antibody | BioLegend | 353234 | |
| Buffer EL | Qiagen | 79217 | Erythrocyte lysis buffer |
| CD154-PE-Vio770, human, REA238, 100 tests | Miltenyi Biotec | 130-113-614 | |
| CD279 (PD1)-VioBright 515, human, 100 tests | Miltenyi Biotec | 130-120-386 | |
| CD28 pure, human - functional grade | Miltenyi Biotec | 130-093-375 | |
| CD3-VioBright R720, human, REA613, 100 tests | Miltenyi Biotec | 130-127-377 | |
| CD45RO-APC-Vio770, human, REA611, 100 tests | Miltenyi Biotec | 130-113-557 | |
| CD49d pure, human | Miltenyi Biotec | 130-093-279 | |
| CD4-VioBlue, human, REA623, 100 tests | Miltenyi Biotec | 130-114-534 | |
| CD69-PE-Vio615, human, REA824, 100 tests | Miltenyi Biotec | 130-112-617 | |
| CO2 Incubator | PHCbi | MCO-170AICD-PE | |
| CPI Positive Control Solution | ImmunoSpot | CTL-CPI-001 | |
| CRX-527 | Invivogen | tlrl-crx527 | |
| CytExpert Acquisition and Analysis Software | Beckman Coulter | Version 2.4 | Flow cytometer operating softwware |
| CytoFlex S B2-R3-V4-Y4 | Beckman Coulter | B75408 | Flow cytometer |
| GraphPad Prism | GraphPad | Version 10.1.0 | |
| Herpes simplex virus 1 lysate | AID Autoimmun Diagnostika | ELSP 5916K | |
| HU IFN G Uncoated ELISA 2X96T PLT | Thermo Fisher Scientific | 88-7316-22 | |
| HydroFLex Microplate Washer | Tecan | 30220085 | |
| Infinite M Plex | Tecan | 30213614 | Multimode Microplate Reader |
| Kaluza Analysis Software | Beckman Coulter | Version 2.1.00003.20057 | Flow cytometric data analysis software |
| MACS Inside Stain Kit | Miltenyi Biotec | 130-090-477 | |
| Mastercycler X50l | Eppendorf | 6303000010 | |
| Nanodrop One | Thermo Fisher Scientific | ND-ONE-W | |
| nCounter Sprint Cartridge | Nanostring | 100078 | |
| nCounter Sprint Profiler | Nanostring | 100170 | |
| nCounter Sprint Reagent Pack | Nanostring | 100077 | |
| nSolver | Nanostring | Version 4.0 | Nanostring nCounter data analysis software |
| Octeniderm farblos 250 ml FL | Schuelke | 118211 | |
| Omnifix F Solo, 1 ml, ohne Kanüle, 3-teilig | Braun | 9161406V | Syringes |
| PepTivator CMV pp65, human, 60nmol | Miltenyi Biotec | 130-093-435 | |
| PepTivator SARS-CoV-2 Prot_S, research grade, for stimulation of 1×10⁸ cells | Miltenyi Biotec | 130-126-700 | |
| QIAshredder | Qiagen | 79654 | |
| RNA Protect | Qiagen | 76526 | |
| RNeasy Plus Mini Kit | Qiagen | 74134 | |
| RPMI 1640 Medium, GlutaMAX Supplement, HEPES | Thermo Fisher Scientific | 72400047 | |
| Safe 2020 1.5 Microbiological Safety Cabinet | Thermo Fisher Scientific | 51026959 | |
| S-Monovette lithium-heparin, 4.9 ml | Sarstedt | 04.1939.001 | Blood collection tubes |
| S-Monovette neutral, 2.7 ml | Sarstedt | 05.1729 | Stimulation environment tubes |
| Sterican Safety G 19 x 1 1/2'' 1,1 x 40 mm | Braun | 4670052S-01 | Needles |
| Stop Solution, 100 ML | Thermo Fisher Scientific | BMS409.0100 | |
| Wash Buffer 20X, 500 ML | Thermo Fisher Scientific | BMS408.0500 | |
| Water, 1 l | Carl Roth | 3478.1 | |
| XT Hs Exhaustion CSO | Nanostring | 115000466 | Nanostring Immune Exhaustion Panel |
Referenties
- Mckenna, K. C., Beatty, K. M., Vicetti Miguel, R., Bilonick, R. A. Delayed processing of blood increases the frequency of activated CD11b+ CD15+ granulocytes which inhibit t cell function. J Immunol Methods. 341 (1-2), 68-75 (2009).
- Doberne, D., Gaur, R. L., Banaei, N. Preanalytical delay reduces sensitivity of quantiferon-tb gold in-tube assay for detection of latent tuberculosis infection. J Clin Microbiol. 49 (8), 3061-3064 (2011).
- Corbiere, V., et al. A semi high-throughput whole blood-based flow cytometry assay to detect and monitor bordetella pertussis-specific th1, th2 and th17 responses. Front Immunol. 14, 1101366(2023).
- Lauruschkat, C. D., et al. Development of a simple and robust whole blood assay with dual co-stimulation to quantify the release of t-cellular signature cytokines in response to aspergillus fumigatus antigens. J Fungi (Basel). 7 (6), 462(2021).
- Riou, C., et al. simplified whole blood-based multiparameter assay to quantify and phenotype SARS-COV-2-specific T-cells. Eur Respir J. 59 (1), 2100285(2022).
- Weis, P., et al. Development and evaluation of a whole blood-based approach for flow cytometric quantification of CD154+ mould-reactive T cells. Med Mycol. 58 (2), 187-196 (2020).
- Boyum, A. Isolation of lymphocytes, granulocytes and macrophages. Scand J Immunol. 5, Suppl 5 9-15 (1976).
- Chen, G., Wang, H., Wang, Y. Clinical application of quantiferon-tb gold in-tube in the diagnosis and treatment of tuberculosis. Eur J Clin Microbiol Infect Dis. 39 (4), 607-612 (2020).
- Manuel, O., Kumar, D. Quantiferon-tb gold assay for the diagnosis of latent tuberculosis infection. Expert Rev Mol Diagn. 8 (3), 247-256 (2008).
- Inthawong, M., et al. A whole blood intracellular cytokine assay optimised for field site studies demonstrates polyfunctionality of CD4+ t cells in acute scrub typhus. PLoS Negl Trop Dis. 17 (3), e0010905(2023).
- Johnson, S. A., et al. Evaluation of quantiferon SARS-COV-2 interferon-gamma release assay following SARS-COV-2 infection and vaccination. Clin Exp Immunol. 212 (3), 249-261 (2023).
- Kruttgen, A., et al. Evaluation of the quantiferon SARS-COV-2 interferon-ɣ release assay in mrna-1273 vaccinated health care workers. J Virol Methods. 298, 114295(2021).
- Duffy, D., et al. Standardized whole blood stimulation improves immunomonitoring of induced immune responses in multi-center study. Clin Immunol. 183, 325-335 (2017).
- Duffy, D., et al. Functional analysis via standardized whole-blood stimulation systems defines the boundaries of a healthy immune response to complex stimuli. Immunity. 40 (3), 436-450 (2014).
- Smith, N., et al. Defective activation and regulation of type i interferon immunity is associated with increasing COVID-19 severity. Nat Commun. 13 (1), 7254(2022).
- Lauruschkat, C. D., et al. CD4+ T cells are the major predictor of hcmv control in allogeneic stem cell transplant recipients on letermovir prophylaxis. Front Immunol. 14, 1148841(2023).
- Pelchen-Matthews, A., Parsons, I. J., Marsh, M. Phorbol ester-induced downregulation of cd4 is a multistep process involving dissociation from p56lck, increased association with clathrin-coated pits, and altered endosomal sorting. J Exp Med. 178 (4), 1209-1222 (1993).
- Boise, L. H., et al. CD28 costimulation can promote t cell survival by enhancing the expression of bcl-xl. Immunity. 3 (1), 87-98 (1995).
- Udagawa, T., Woodside, D. G., Mcintyre, B. W. Alpha 4 beta 1 (CD49d/CD29) integrin costimulation of human t cells enhances transcription factor and cytokine induction in the absence of altered sensitivity to anti-cd3 stimulation. J Immunol. 157 (5), 1965-1972 (1996).
- Baumann, J., et al. Golgi stress-induced transcriptional changes mediated by mapk signaling and three ets transcription factors regulate mcl1 splicing. Mol Biol Cell. 29 (1), 42-52 (2018).
- Miller, S. G., Carnell, L., Moore, H. H. Post-golgi membrane traffic: Brefeldin a inhibits export from distal golgi compartments to the cell surface but not recycling. J Cell Biol. 118 (2), 267-283 (1992).
- Zandvliet, M. L., et al. Co-ordinated isolation of CD8(+) and CD4(+) t cells recognizing a broad repertoire of cytomegalovirus pp65 and ie1 epitopes for highly specific adoptive immunotherapy. Cytotherapy. 12 (7), 933-944 (2010).
- Kramer, K. J., et al. Single-cell profiling of the antigen-specific response to bnt162b2 sars-cov-2 rna vaccine. Nat Commun. 13 (1), 3466(2022).
- Tappe, B., et al. COVID-19 patients share common, corticosteroid-independent features of impaired host immunity to pathogenic molds. Front Immunol. 13, 954985(2022).
- Stover, A. G., et al. Structure-activity relationship of synthetic toll-like receptor 4 agonists. J Biol Chem. 279 (6), 4440-4449 (2004).
- Page, L., et al. Impact of immunosuppressive and antifungal drugs on pbmc- and whole blood-based flow cytometric CD154(+) Aspergillus fumigatus specific t-cell quantification. Med Microbiol Immunol. 209 (5), 579-592 (2020).
- Hedley, B. D., Keeney, M. Technical issues: Flow cytometry and rare event analysis. Int J Lab Hematol. 35 (3), 344-350 (2013).
- Bacher, P., Scheffold, A. Flow-cytometric analysis of rare antigen-specific T cells. Cytometry A. 83 (8), 692-701 (2013).
- Frentsch, M., et al. Direct access to CD4+ t cells specific for defined antigens according to cd154 expression. Nat Med. 11 (10), 1118-1124 (2005).
- Osum, K. C., Jenkins, M. K. Toward a general model of CD4(+) t cell subset specification and memory cell formation. Immunity. 56 (3), 475-484 (2023).
- Lighvani, A. A., et al. T-bet is rapidly induced by interferon-gamma in lymphoid and myeloid cells. Proc Natl Acad Sci U S A. 98 (26), 15137-15142 (2001).
- Lamb, Y. N. Bnt162b2 mrna COVID-19 vaccine: First approval. Drugs. 81 (4), 495-501 (2021).
- Arbel, R., et al. Bnt162b2 vaccine booster and mortality due to COVID-19. N Engl J Med. 385 (26), 2413-2420 (2021).
- Lauruschkat, C. D., et al. T-cell immune surveillance in allogenic stem cell transplant recipients: Are whole blood-based assays ready to challenge elispot. Open Forum Infect Dis. 8 (1), 547(2021).
- Albert-Vega, C., et al. Immune functional assays, from custom to standardized tests for precision medicine. Front Immunol. 9, 2367(2018).
- Biolegend. , Available from: https://www.biolegend.com/de-de/products/dry-human-aim-assay-cocktail-kit-23591?GroupID=GROUP28 (2024).
- Lauruschkat, C. D., et al. Susceptibility of a. Fumigatus-specific t-cell assays to pre-analytic blood storage and pbmc cryopreservation greatly depends on readout platform and analytes. Mycoses. 61 (8), 549-560 (2018).
- Wurster, S., et al. Quantification of a. Fumigatus-specific cd154+ t-cells-preanalytic considerations. Med Mycol. 55 (2), 223-227 (2017).
- Britten, C. M., et al. T cell assays and miata: The essential minimum for maximum impact. Immunity. 37 (1), 1-2 (2012).
- Cossarizza, A., et al. Guidelines for the use of flow cytometry and cell sorting in immunological studies (third edition). Eur J Immunol. 51 (12), 2708-3145 (2021).
- Le Lann, L., et al. Standardization procedure for flow cytometry data harmonization in prospective multicenter studies. Sci Rep. 10 (1), 11567(2020).
- Lauruschkat, C. D., et al. Chronic occupational mold exposure drives expansion of aspergillus-reactive type 1 and type 2 t-helper cell responses. J Fungi (Basel). 7 (9), 698(2021).
- Pascual-Garcia, M., et al. Lif regulates cxcl9 in tumor-associated macrophages and prevents cd8(+) t cell tumor-infiltration impairing anti-pd1 therapy. Nat Commun. 10 (1), 2416(2019).
- Paull, D., et al. Automated, high-throughput derivation, characterization and differentiation of induced pluripotent stem cells. Nat Meth. 12 (9), 885-892 (2015).
Herprints en machtigingen
