Alvleesklierkanker blijft een van de moeilijkste vormen van kanker om te behandelen. Daarom is het van cruciaal belang dat preklinische modellen die de werkzaamheid van de behandeling evalueren, reproduceerbaar en klinisch relevant zijn. Dit protocol beschrijft een eenvoudige co-cultuurprocedure om reproduceerbare, klinisch relevante desmoplastische sferoïden te genereren.
Methodenartikel
Groeiende desmoplastische driedimensionale alvleesklierkankersferoïden uit co-cultuur
In dit artikel
Samenvatting
Samenvatting
Ductaal adenocarcinoom van de pancreas (PDAC) is een van de dodelijkste vormen van kanker met een 5-jaarsoverleving van <12%. De grootste barrière voor therapie is de dichte desmoplastische extracellulaire matrix (ECM) die de tumor omringt en vascularisatie vermindert, over het algemeen desmoplasie genoemd. Er zijn verschillende combinaties en formuleringen van geneesmiddelen getest om de kanker te behandelen, en hoewel veel van hen preklinisch succes laten zien, falen ze klinisch. Het wordt daarom belangrijk om een klinisch relevant model beschikbaar te hebben dat de respons van de tumor op de therapie kan voorspellen. Dit model is eerder gevalideerd tegen gereseceerde klinische tumoren. Hier wordt een eenvoudig protocol beschreven om desmoplastische driedimensionale (3D)-cocultuursferoïden te kweken die op natuurlijke wijze een robuuste ECM kunnen genereren en geen externe matrixbronnen of steiger nodig hebben om hun groei te ondersteunen.
Kort gezegd worden menselijke pancreasstellaatcellen (HPaSteC) en PANC-1-cellen gebruikt om een suspensie te bereiden die de cellen in een verhouding van respectievelijk 1:2 bevat. De cellen zijn geplateerd in een poly-HEMA gecoate, 96-well lage bevestiging U-well plaat. De plaat wordt gecentrifugeerd om de cellen een eerste pellet te laten vormen. De plaat wordt in de incubator bewaard bij 37 °C met 5% CO2 en het medium wordt elke 3 dagen vervangen. Platen kunnen met bepaalde tussenpozen worden afgebeeld om het sferoïde volume te meten. Na 14 dagen cultuur worden rijpe desmoplastische sferoïden gevormd (d.w.z. een gemiddeld volume van 0,048 + 0,012mm3 (451 μm x 462,84 μm)) en kunnen worden gebruikt voor experimentele therapiebeoordeling. Volwassen ECM-componenten zijn onder meer collageen-I, hyaluronzuur, fibronectine en laminine.
Inleiding
De slechte prognose van alvleesklierkanker wordt in verband gebracht met verschillende redenen, waaronder het ontbreken van gemakkelijk detecteerbare biomarkers die leiden tot een late detectie. Een andere belangrijke reden is het dikke stroma dat het weefsel omringt, wat leidt tot een verminderde bloedtoevoer. De afzetting van grote hoeveelheden extracellulaire matrix (ECM), cel-celinteractie, endotheelcellen, verschillende immuuncellen, pericyten, prolifererende myofibroblasten en fibroblastpopulatie, en de aanwezigheid van niet-neoplastische cellen (samen de desmoplastische reactie vormen)1, vormen het dikke stroma dat verantwoordelijk is voor de chemo- en radiotherapeutische resistentie van PDAC2. Kanker en stromale cellen hebben een complexe, dynamische en bidirectionele interactie. Hoewel sommige elementen de progressie van de ziekte verzwakken of versnellen, zijn de meeste processen adaptief tijdens de ontwikkeling van de tumor1. Dit zorgt voor een omgeving die rijk is aan groeifactoren, proangiogene factoren, proteasen en adhesiemoleculen. Deze factoren bevorderen angiogenese, celproliferatie, metastase en invasie 3,4. Samen zijn ze immuun- en medicijnbevoorrecht toevluchtsoord voor de tumor, wat resulteert in resistentie tegen geneesmiddelen.
De desmoplasie is een complex mengsel dat bestaat uit verschillende ECM-eiwitten, samen met immuuncellen en pancreasstellaatcellen (PSC). Samen hebben deze de neiging om een steiger te vormen voor de cellen om te groeien. PSC's zijn een van de grootste componenten van het stromale compartiment5. Hun vermogen om enzymen zoals matrixmetalloroteases (MMP), weefselremmers van matrixmetalloroteases (TIMP) en kankergeassocieerde fibroblasten (CAF)6 te produceren, impliceert dat ze waarschijnlijk een cruciale rol spelen bij de ontwikkeling van de desmoplastische reactie. De ECM, kanker-geassocieerde fibroblasten (CAF) en vasculatuur zijn de belangrijkste aspecten van PDAC. Onder CAF's wordt gespeculeerd dat myofibroblasten en inflammatoire CAF's betrokken zijn bij actieve overspraak die verantwoordelijk is voor pro-tumoreigenschappen7. Hoe uitgebreider de fibroblastische formaties op de tumor, hoe slechter de prognose 8,9,10.
Monolaagse celcultuur via gevestigde cellijnen blijft een nuttig hulpmiddel voor het analyseren van geneesmiddeltoxiciteit en is een goed startpunt voor proof of concept- en ontdekkingsstudies. Gevestigde celcultuurlijnen missen echter kiembaan-DNA en klinische herkenbaarheid11. Omdat ze op vlakke oppervlakken worden gekweekt, ondergaan ze andere in vitro selectiecriteria dan wanneer ze deel uitmaken van de tumor, delen ze zich abnormaal en verliezen ze hun gedifferentieerde fenotype12. Over het algemeen beperken eencellige culturen de heterogeniteit van tumoren en verliezen daarom hun klinische relevantie. Ze zijn niet in staat om de complexiteit van de micro-omgeving van de tumor (bijvoorbeeld de ECM) nauwkeurig weer te geven. 3D-cultuur kan de complexe micro-omgeving van de tumor nauwkeuriger nabootsen.
3D-cultuur werd in de jaren 1970 geïntroduceerd voor gezonde cellen en hun neoplastische tegenhangers13. Er zijn verschillende technieken gebruikt om de morfologie en architectuur van kwaadaardige weefsels te bestuderen door middel van sferoïden14. Co-culturen met stromale cellen kunnen TME-signalen modelleren. Een opregulatie van EMT-markers werd gezien wanneer cellen werden gekweekt samen met stellaatcellen15. PDAC-sferoïden en hun interactie met het stroma kunnen worden gemodelleerd door co-culturing met ECM-componenten. Er is gemeld dat co-teelt specifiek met PSC's klinisch relevante gegevens over de cytotoxiciteit van geneesmiddelen oplevert 16,17,18. PSC's helpen ook bij resistentie tegen geneesmiddelen door apoptose te ontwijken en de proliferatie van kankercellen te stimuleren via verschillende paracriene factoren19 en door EMT-overgang te induceren. Het wordt daarom van cruciaal belang om de PSC's vanaf een vroeg stadium op te nemen in de criteria die worden gebruikt om het succes van een geneesmiddel of medicijnafgiftesysteem te evalueren. Het vermogen van de PSC om de proliferatie te bevorderen en een snellere groei in combinatie te ondersteunen, vergeleken met alleen alvleesklierkankercellen, is ook in vivo waargenomen toen subcutane flankinjecties van de twee cellijnen werden geëvalueerd bij immuungecompromitteerde muizen20.
Het vermogen van een celtype om te interageren met ECM-componenten is ook van cruciaal belang om te overwegen bij het kweken van co-gekweekte sferoïden. Van BxPC-3 en PANC-1 is gemeld dat ze gelijke affiniteiten hebben bij de binding aan collageen. De twee cellijnen binden ook gelijkwaardig aan laminine, hoewel er meldingen zijn geweest dat BxPC-3 beter bindt 21,22,23,24,25. In termen van migratie toonden Stahle et al.26 een 5x snellere beweeglijkheid aan voor PANC-1-cellen in vergelijking met BxPC-3. Er werd ook gemeld dat PANC-1-cellen voornamelijk migreren als enkele cellen, terwijl BxPC-3-cellen migreren als een dicht opeengepakt vel. De keuze van de cellen heeft ook invloed op de grootte van de tumor25. BxPC-3-tumoren bleken27,28 groter te zijn dan die verkregen met PANC-1, terwijl één studie het tegenovergestelde29 geval aantoonde. Ondanks hun verschillen in grootte en beweeglijkheid, is gemeld dat beide cellen lange perioden van latentie nodig hebben om tumoren bij muizen te vormen. Deze duur kan vooral lang zijn voor BxPC-3, variërend van 4 weken tot 4 maanden25. Er is echter ook literatuur waarin BxPC-328 of BxPC-3 kankerstamcellen30 sneller zichtbare tumoren hebben gevormd, wat impliceert dat er variatie kan zijn in de duur van de tumorgroei. De hier vermelde duur mag daarom alleen dienen als een eerste richtlijn voor de groeisnelheid van tumoren.
BxPC-3-cellen vormen sferoïden met losse cellen op het oppervlak en dichte kernen, terwijl van PANC-1-cellen is gemeld dat ze zowel poreuze maar robuuste sferoïden31 als compacte sferoïden vormen. Van PANC-1-cellen is ook gemeld dat ze minder gedifferentieerd en agressiever zijn32. Met de agressieve aard32 op de voorgrond, gecombineerd met de hogere beweeglijkheid van de PANC-1-cellen, het vermogen om compacte sferoïden te vormen en het vermogen om te interageren met ECM-componenten, werden PANC-1-cellen gekozen voor sferoïde studies.
In de afgelopen jaren heeft sferoïde cultuur veel succes geboekt bij het aantonen van een voordeel in zijn klinische relevantie in vergelijking met tweedimensionale (2D) culturen. De relevantie ervan is benut door deze techniek te gebruiken als vervanging voor dierstudies en om de biologie van de tumoren beter te begrijpen. De klinische relevantie van sferoïden, vooral wanneer ze samen met PSC's worden gekweekt, heeft het mogelijk gemaakt om hun gebruik te bestuderen verschillende functies van de sferoïde zoals stijfheid33, expressie van TGF-β 34,35,36,37,38, E-cadherine, F-actine 18,34,36,37, α-SMA 34,35,37,38, lactaatdehydrogenase (LDHA)32, HIF-1α35,39, geneesmiddelresistentie 16,37,40, celmigratie41, celinvasie37, fibrose35, stralingsresistentie42, fenotypische veranderingen18, heterogeniteit36, cellulaire niveaus van interacties39 en ECM-componenten aantonen 37,38,39. Veel van de protocollen die werden gebruikt om de beschreven gegevens te verkrijgen, zijn gebaseerd op Matrigel, de hangende druppelmethode, geprinte mallen of andere steigers om de groei van sferoïde en ECM te ondersteunen. De onderzoeken omvatten meestal ook het gebruik van niet-menselijke fibroblastische cellen of vers geïsoleerde stellaatcellen van patiënten. Hoewel het gebruik van stellaatcellen van cruciaal belang is voor de tumoren om op in-vivo-omstandigheden te lijken, maakt de variabiliteit tussen patiënten die gepaard gaat met verse extracties deze onderzoeken moeilijk te repliceren.
Dit protocol heeft tot doel een model te demonstreren dat gemakkelijk te ontwikkelen, reproduceerbaar, klinisch relevant en vrij van steigers is, waarbij uitsluitend wordt vertrouwd op het vermogen van de co-culturen om de ECM op natuurlijke wijze te genereren. Om dit te doen, werd gekozen voor een eenvoudige co-cultuurmethode met een mix van PANC-1-cellen (vanwege hun natuurlijke neiging om als afzonderlijke cellen te migreren) samen met menselijke pancreasstellaatcellen (HPaSteC), vanwege hun vermogen om zich als stamcellen te gedragen en zeer resistent te zijn tegen geneesmiddelen. Met behulp van de studies van Durymanov et al.38als basislijn, werd het hieronder beschreven protocol opgesteld na verdere optimalisatie van parameters zoals celverhoudingen en duur tussen mediaveranderingen. De sferoïden die uit dit protocol voortkomen, kunnen worden gebruikt als modelsysteem voor de evaluatie van nieuwe kandidaat-geneesmiddelen40.
Bovendien, voor gebruikers die niet bekend zijn met de sferoïde cultuur, kan het werk Peirsman et al.43waarin de ontwikkeling van de MISpheroID-kennisbank wordt besproken, nuttig zijn. Het stelt enkele minimale informatierichtlijnen vast die kunnen helpen om te gaan met heterogeniteit tussen laboratoriumprotocollen. Hoewel met enkele beperkingen, toonde het werk aan dat de keuze van kweekmedia, cellijnen, sferoïde vormingsmethode en de uiteindelijke sferoïde grootte van cruciaal belang zijn bij het bepalen van de fenotypische eigenschappen van sferoïden.
Protocol
1. 2D celcultuur
- Kweek PANC-1 cellen in Dulbecco's Modified Eagle Medium (DMEM), aangevuld met 10% foetaal runderserum (FBS) onder steriele omstandigheden. Groei tot 70%-80% samenvloeiing vóór passages en gebruik niet na de 20epassage. Raadpleeg het proces dat wordt beschreven in stap 4.2.1.
OPMERKING: Als referentiepunt hebben 1 x 10⁶ cellen in 20 ml media ongeveer 2-3 dagen nodig om 70-80% confluentie te bereiken. - Kweek HPaSteC-cellen in stellate celmedia aangevuld met 2% FBS, 1% PenStrep en 1% Stellate Cell Growth Supplement (SteCGS) met behulp van de door de fabrikant meegeleverde kit onder steriele omstandigheden. Kweek volgens de instructies van de fabrikant (met enkele aanpassingen) zoals weergegeven in stap 4.2.2 in een kolf met Poly-L-Lysine-coating.
- Sla de FBS-neutralisatiestap tijdens trypsinisatie over uit het protocol van de fabrikant, aangezien trypsineneutralisatieoplossing (TNS) wordt gebruikt. Neutraliseer de celsuspensie met een totaal volume van 10 ml TNS zoals beschreven in stap 4.2.2.2.
OPMERKING: Als referentiepunt hebben 0,5 x 10⁶ cellen en 1 x 10⁶ cellen in 20 ml media respectievelijk 3 dagen en 2 dagen nodig om 90% confluentie te bereiken. - Oogst cellen bij 90% confluentie. Gebruik geen cellen voorbij doorgang 7.
- Sla de FBS-neutralisatiestap tijdens trypsinisatie over uit het protocol van de fabrikant, aangezien trypsineneutralisatieoplossing (TNS) wordt gebruikt. Neutraliseer de celsuspensie met een totaal volume van 10 ml TNS zoals beschreven in stap 4.2.2.2.
- Houd de cellen op 37 °C, met 5% CO2 , in steriele incubatoren met een relatieve vochtigheid van 90%-95%. Voer alle celkweekonderzoeken uit in een T-75-kolf.
2. Poly (2 -hydroxyethylmethacrylaat (poly-HEMA) oplossingscoating voor plaat met 96 putjes
- Bereid poly-HEMA-oplossing in een dosis van 5 mg/ml met 95% ethanol door deze een nacht te mengen met een verwarmde roerder bij 37 °C. (voor 500 ml oplossing is bijvoorbeeld 2,5 g poly-HEMA nodig)
- Markeer de locatie van het startvolume voordat u de roerder toevoegt. Gebruik 95% ethanol om het verlies in de oplossing de volgende dag te compenseren.
- Filtreer de uiteindelijke oplossing in een steriele hoes met een filter van 0,22 μm en bewaar deze in de koelkast bij 4 °C.
OPMERKING: Poly-HEMA wordt gebruikt om de hydrofobiciteit van een oppervlak te verhogen, wat dient als een afschrikmiddel voor cellen om zich te hechten. Omdat deze studie vereist dat de cellen zich niet aan de putten hechten en als een monolaag groeien, wordt poly-HEMA gebruikt als een extra afschrikmiddel voor de natuurlijke lage bevestigingsfunctie van de platen, waardoor ze ultralage bevestigingsplaten worden. - Voeg 50 μL van de koude oplossing toe aan elk putje van een ronde microtiterplaat van 96 putjes van polystyreen in een celcultuurkap om de plaat te coaten.
- Laat de kuiltjes met het deksel erop 3 dagen in een heteluchtoven op 37 °C staan om ervoor te zorgen dat de borden volledig droog zijn.
- UV-sterilisatie van de platen gedurende 30 minuten in de celkweekkap voordat de cellen worden gezaaid. Bewaar in een goed gesloten ritssluiting voor langdurige opslag en steriliseer voor gebruik.
3. Planning van 2D-celcultuur
- Time het experiment zo dat PANC-1-cellen beschikbaar zijn met 70%-80% confluentie op dezelfde dag dat de HPaSteC-cellen 90% bereiken.
OPMERKING: Injectieflacons die ongeveer 1 miljoen cellen van PANC-1 of HPaSteC bevatten, hebben 8 dagen PANC-1-cultuur en 6-7 dagen HPaSteC-cultuur nodig om beide cellijnen op dezelfde dag klaar te hebben, wanneer ze op dezelfde dag uit vloeibare stikstof worden gehaald.
4. 3D cultuur groei
- Raadpleeg het overzicht van het gehele proces in Figuur 1 voordat u het proces start.
LET OP: Zowel PANC-1 als HPaSteC zijn van biologische oorsprong. Ga voorzichtig om met PANC-1 (kankercellijn). - Trypsiniseren en tellen van cellen
- Trypsinze en tel PANC-1 cellen:
- Gooi het supernatans weg en was de PANC-1-cellen met 9 ml HBSS (3 ml per keer). Gooi gebruikte reagentia in de kap weg in een 20-25% V/V-bleekoplossing om volledige dood van levend/levensvatbaar materiaal te garanderen.
- Probeer de cellen te trypsiniseren met 2 ml trypsine. Na bijna 10 minuten (mogelijk heeft u meer tijd nodig), wanneer alle cellen zijn losgekomen, neutraliseert u de suspensie met 10 ml DMEM + 10% FBS. Begin met 3 ml en volg dit met de volgende wasstappen met 1 ml per wasbeurt (7 resterende wasbeurten) om een maximale verzameling van getrypsiniseerde cellen te garanderen.
- Pool elk geneutraliseerd aliquot in dezelfde buis van 15 ml. Het uiteindelijke volume in de buis zal dicht bij 12 ml liggen (~2 ml trypsine dat is geneutraliseerd met media van 10 ml).
- Centrifugeer de geneutraliseerde celsuspensie bij 700 x g gedurende 2 minuten en 30 s. Gooi het supernatans weg en resuspendeer de pellet verkregen in 1 ml DMEM +10% FBS. Neem hieruit een aliquot voor het tellen van cellen en label de waarde die uit deze sectie is verkregen als "Telling A".
- Trypsinze en tel HPaSteC-cellen.
- Gooi het supernatans weg en was de HPaSteC-cellen met 9 ml HBSS (3 ml per keer).
- Probeer de cellen te trypsiniseren met 2 ml trypsine. Na bijna 10 minuten, wanneer alle cellen zijn losgemaakt, neutraliseert u de suspensie met 10 ml trypsineneutralisatieoplossing. Begin met 3 ml en volg dit met de volgende wasstappen met 1 ml per wasbeurt (7 resterende wasbeurten) om een maximale verzameling van getrypsiniseerde cellen te garanderen.
- Pool elk geneutraliseerd aliquot in dezelfde buis van 15 ml. Het uiteindelijke volume in de buis zal dicht bij 12 ml liggen (~2 ml trypsine dat is geneutraliseerd met 10 ml neutralisatieoplossing).
- Centrifugeer de geneutraliseerde celsuspensie bij 700 x g gedurende 2 minuten en 30 s. Gooi het supernatans weg en resuspendeer de pellet die is verkregen in 1 ml van de gesupplementeerde stellaatcelmedia. Neem hieruit een aliquot voor het tellen van cellen en label de waarde die uit deze sectie is verkregen als "Telling B".
- Trypsinze en tel PANC-1 cellen:
- Verdunning van initiële celsuspensies
- Pauzeer indien nodig bij deze stap (niet langer dan 0,5 uur) gedurende een korte tijd na het behalen van zowel telling A als B of na het trypsiniseren en neutraliseren van zowel PANC-1 als HPaSteC. Bewaar ongebruikte voedingsbodems bij 37 °C en celsuspensies bij kamertemperatuur (RT; 25 ± 2 °C).
- Gebruik de eerder verkregen tellingen A en telling B om aliquots te nemen en de respectievelijke verdunningen (in afzonderlijke buisjes) te maken, zodat het uiteindelijke volume 1 ml is (verdunningsmiddel: DMEM + 10% FBS voor beide injectieflacons) en de uiteindelijke telling tussen 110.000-140.000 cellen voor elk celtype. Zodra deze verdunning is gemaakt, controleert u het aantal cellen voor elke verdunning om telling C (PANC-1) en telling D (HPaSteC) te verkrijgen.
- Pauzeer indien nodig bij deze stap (niet langer dan 15-30 minuten) na het behalen van telling C en telling D. Stop niet nadat de laatste verdunningen in stap 4.3.3.2 zijn uitgevoerd; Experimenteer om celbezinking te voorkomen. Bewaar ongebruikte voedingsbodems bij 37 °C en celsuspensies bij RT (25 ± 2 °C).
- Handhaaf het uiteindelijke aantal benodigde cellen per put op HPaSteC: PANC-1: 60:120. Gebruik 110 putjes voor de berekening om rekening te houden met het overschot. Reken met een basiswaarde van 100 μL celsuspensie per putje (het totale suspensievolume is 11 ml voor 110 putjes met HPaSteC: PANC-1: 60:120). Maak deze suspensie in een steriele centrifugebuis van 50 ml om het mengen te vergemakkelijken.
- Gebruik Count C en Count D en voeg voldoende celsuspensie toe aan een DMEM + 10% FBS-oplossing om HPaSteC: PANC-1: 60:120 te hebben in een eindvolume van 11 ml (6.600 HPaSteC-cellen en 13.200 PANC-1-cellen in 11 ml). Meng de oplossing grondig met een pipet van 1 ml door op en neer te roeren en te pipetteren. Voorkom schuimvorming.
- Zaaien
- Gebruik een pipet van 200 μl of 100 μl om de uiteindelijke suspensie te mengen (roer door de pipetpunt rond te bewegen in combinatie met pipetteren op en neer) bij elke stap voordat u 100 μl van de suspensie per putje toevoegt. Voeg de 100 μL voorzichtig toe langs de hoek van het kuiltje.
- Gebruik dezelfde punt opnieuw voor meerdere putjes, tenzij deze eraf valt. Meng heen en weer en tel tot 10 of 15 (geen seconden) tussen toevoegingen aan elk kuiltje voor de eerste helft (ongeveer de eerste 43 putjes) van het bord. Verlaag het menggetal tot 5-10 tussen elk putje voor de tweede helft (resterende 43 putjes), aangezien het suspensievolume kleiner is en minder mengduur vereist.
- Gebruik geen repeterende pipet, omdat de hydrofobe poly-HEMA-coating ervoor zorgt dat de suspensie van de plaat stuitert, wat leidt tot een ongelijkmatige verdeling.
- Gooi overtollige suspensie weg nadat alle putjes zijn gevuld.
- Gebruik een pipet van 200 μl of 100 μl om de uiteindelijke suspensie te mengen (roer door de pipetpunt rond te bewegen in combinatie met pipetteren op en neer) bij elke stap voordat u 100 μl van de suspensie per putje toevoegt. Voeg de 100 μL voorzichtig toe langs de hoek van het kuiltje.
- Centrifugeren
- Centrifugeer de laatste plaat met de celsuspensie om alle cellen samen te brengen als een pellet. Wikkel de plaat voorzichtig met parafilm om de rand van de plaat om besmetting tijdens deze stap te voorkomen. Centrifugeer de plaat na het wikkelen met een contragewicht op 1000 x g gedurende 2 min.
- Plaats de plaat terug in de kap van de celcultuur (gebruik handschoenen met ethanol om te hanteren), verwijder de parafilm en bewaar de platen in de incubator bij 37 °C, met 5% CO2 . Spuit de plaat op geen enkel punt in met een mengsel van ethanol en water.
- Behoud van de cultuur
- Bekijk cellen die samenkomen om sferoïden te vormen onder een lichtmicroscoop met een vergroting van 4x-5x op dag 3. Volg het protocol voor het onderhoud van de cultuur zoals hieronder beschreven.
- Meet op dag 3 5-6 ml DMEM + 10% FBS af en voeg 50 μl toe aan elk putje langs de zijkant van het putje.
- Meng of schud de media op geen enkele manier tijdens het toevoegen, aangezien dit de sferoïde zal beschadigen of zal leiden tot onbedoelde verwijdering van de sferoïde. Het uiteindelijke volume per put zal ~150 μL zijn.
- Raadpleeg na dag 3 figuur 2 om vertrouwd te raken met de structuur van de put en de locatie van de lichtreflectie (tussen het cilindrische en gebogen deel van de put) die te zien is op de media die de halo worden genoemd. Voer voorzichtig bewerkingen uit in de buurt van de halo om ervoor te zorgen dat de sferoïden onbeschadigd blijven.
- Meet op dag 6 10-11 ml DMEM + 10% FBS af. Gebruik een pipet van 1 ml om media in bulk uit meerdere putjes te trekken door media uit te trekken tot aan de halo. Doe dit voor de hele plaat, gevolgd door het vervangen van media. Verzamel supernatans in bulk en gooi het weg, of gooi het weg als het eruit wordt getrokken.
- Vervang de afgedankte media door nieuwe media door 100 μL media toe te voegen langs de zijkant van elke put. Het uiteindelijke volume in de put zal bijna 200 μL zijn.
- Trek geen media buiten de halo, omdat dit het risico vergroot dat de sferoïde per ongeluk naar buiten wordt getrokken.
- Meet op dag 10/11 10-11 ml DMEM + 10% FBS af. Gebruik een pipet van 1 ml om media in bulk uit meerdere putjes te trekken door media uit te trekken tot aan de halo. Doe dit voor de hele plaat, gevolgd door het vervangen van media. Verzamel supernatans in bulk en gooi het weg, of gooi het weg als het eruit wordt getrokken.
- Vervang de afgedankte media door nieuwe media door 100 μL media toe te voegen langs de zijkant van elke put. Het uiteindelijke volume in de put zal bijna 200 μL zijn.
- Meet op dag 3 5-6 ml DMEM + 10% FBS af en voeg 50 μl toe aan elk putje langs de zijkant van het putje.
- Bekijk cellen die samenkomen om sferoïden te vormen onder een lichtmicroscoop met een vergroting van 4x-5x op dag 3. Volg het protocol voor het onderhoud van de cultuur zoals hieronder beschreven.
- Beoordeling op de laatste dag
- Voer op dag 14 een medicamenteuze behandeling uit op de sferoïden. Beeld de sferoïden voor gebruik af met een omgekeerde helderveldmicroscoop onder een 4x-objectief om het startvolume van de sferoïde te bepalen. Bereken het volume (V) met behulp van de volgende formule:
V = 0,5 × L× W 2 - Volg de vergelijking om sferoïde volumes te berekenen die hierboven is beschreven. Hier is L de lengte van de hoofdas en W is de breedte (langste lijn loodrecht op de hoofdas). Converteer alle originele eenheden van micrometer naar millimeter om een volume in kubieke millimeter te verkrijgen.
- Het startvolume in elke put op dag 14 ligt tussen de 150-200 μL als gevolg van verdamping. Verwijder voor medicamenteuze behandelingen het medium totdat de halo van elk putje is bereikt en vervang het door 100 μL van de geneesmiddeloplossing op 2x sterkte, in combinatie met wat voorzichtig mengen (meng het medium voorzichtig heen en weer terwijl u tot 2 telt tussen elk putje).
- Gebruik oplossingen met een sterkte van 2x om de uiteindelijke geneesmiddeloplossing op 1x te laten zijn en om te voorkomen dat oude media volledig uit de putjes worden verwijderd, anders kunnen de sferoïden worden verstoord. Gebruik de sferoïden binnen 3 dagen na dit tijdsbestek.
- Voer op dag 14 een medicamenteuze behandeling uit op de sferoïden. Beeld de sferoïden voor gebruik af met een omgekeerde helderveldmicroscoop onder een 4x-objectief om het startvolume van de sferoïde te bepalen. Bereken het volume (V) met behulp van de volgende formule:
- Spheroid collectie
- Meet de sferoïde volumes voorafgaand aan het verzamelen, zoals beschreven in stap 4.7.2.
- Verzamel de sferoïden op dag 14 of 17, afhankelijk van de behoeften van het experiment, door media uit elk putje te verwijderen totdat de halo is bereikt.
- Gebruik een pipet van 1 ml om media te verwijderen en vang het supernatans op in een conische centrifugebuis van 15 ml uit meerdere putjes.
- Zodra alle putjes media op haloniveau hebben, verlaagt u de instelling op de pipet van 1 ml tot tussen 200-300 μl.
- Lijn de plaat uit tegen de achtergrond van de kap of een donkere achtergrond (bijv. een buizenrek) om te zien dat de sferoïden zich aan de onderkant bevinden.
- Steek de punt voorzichtig in de buurt van de sferoïde (ga onder de halo) en pipetteer een kleine hoeveelheid media (bijv. een visuele schatting van bijna 50 μl) heen en weer om de sferoïde te verstoren. Plaats de punt niet direct over de sferoïde, omdat dit de structuur kan beschadigen.
- Trek bij deze stap niet alle media uit de put. Beheers de duimbeweging stevig op de zuiger van de pipet.
- Verplaats media totdat de sferoïde niet langer in het midden blijft en tegen de achtergrond kan worden zien bewegen. Trek voldoende media omhoog om de sferoïde eruit te zuigen en verplaats deze naar de gewenste locatie (bijvoorbeeld door deze samen te voegen met andere sferoïden in een putje dat deel uitmaakt van dezelfde behandelingsset).
- Afval weggooien
- Gooi alle vloeistofmonsters weg zodra ze zijn geneutraliseerd met bleekmiddel volgens de protocollen van de afdeling Milieu en Gezondheid Veiligheid van de respectieve laboratoria. Autoclaaf alle gebruikte pipetten en kolven met biologisch gevaarlijk afval en gooi ze weg.

Figuur 1: Overzicht van het proces om 3D desmoplastische alvleesklierkanker sferoïden te kweken (gegenereerd met behulp van BioRender). De figuur geeft een overzicht van de basisprocessen die hierbij betrokken zijn; Namelijk, trypsiniserende cellen, het initiële celgetal gebruiken om verdunde celsuspensies te maken, een co-cultuur bereiden met behulp van de verdunde celsuspensies, celsuspensies aan elk putje toevoegen, de culturen incuberen, mediaonderhoud uitvoeren en uiteindelijke sferoïde vorming zoals verwacht op dag 14. Klik hier om een grotere versie van deze figuur te bekijken.
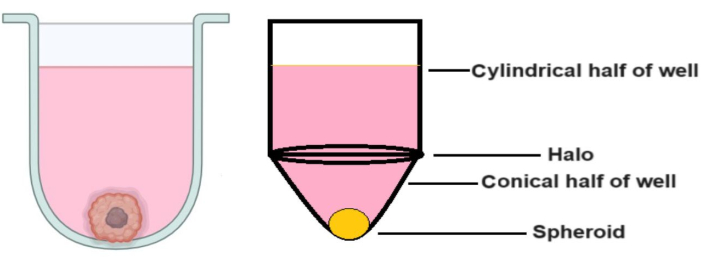
Figuur 2: Opbouw van de U-bodemput. De rechterafbeelding is een overdreven vorm om het "halo"-gedeelte van de put te demonstreren. De figuur is bedoeld om te bepalen waar het "halo"-gedeelte van de put zich bevindt, aangezien werken boven de halo van cruciaal belang is om de sferoïden te laten groeien en onbedoeld verlies te voorkomen. Klik hier om een grotere versie van deze figuur te bekijken.
5. Evaluatie van ECM-componenten en confocale microscopie
- Gebruik immunokleuring om de respons van de ECM op medicamenteuze behandeling te evalueren volgens het protocol beschreven door Durymanov et al.38.
- Bundel de sferoïden samen en was ze twee keer met 100 μL PBS. Inbedden in weefselinbeddingsmedium met optimale snijtemperatuur (OCT), invriezen en onderhouden bij -80 °C.
- Snijd de bevroren tumorblokken in secties van 10 μm, fixeer de secties gedurende 15 minuten in een aceton-methanolmengsel (1:1) en laat ze aan de lucht drogen bij RT.
- Om ECM-componenten te bepalen, immunokleurt u de cryosecties met monoklonale anti-fibronectine primaire antilichamen van konijnen, polyklonale antilichamen van antilichamen tegen type I van konijnen, polyklonale antilichamen tegen antilaminines van konijnen en polyklonale antilichamen tegen hyaluronzuur bij schapen.
- Gebruik geiten anti-konijn IgG gelabeld met Alexa Fluor 488 of ezel anti-schapen geconjugeerd met Alexa Fluor 568 als secundaire antilichamen.
OPMERKING: Primaire en secundaire antilichamen werden verdund tot respectievelijk 1:200 en 1:300. - Verkrijg beelden van alle sferoïde secties met behulp van een confocale laserscanmicroscoop die is uitgerust met een 20x/0,45 objectieflens.
Resultaten
Drie van de meest kritische stappen bij het kweken van de sferoïden zijn het initiële celgetal, de mengstappen tijdens het zaaien van de sferoïden en het uitvoeren van tijdige mediaveranderingen om de sferoïden te laten groeien (Figuur 1). Bovendien is het van cruciaal belang om bekend te zijn met figuur 2 over mediaveranderingen na dag 3 om effectieve mediaveranderingen mogelijk te maken vanwege het verhoogde mediavolume per put. Wanneer al deze stappen worden uitgevoerd volgens de gegeven aanwijzingen, blijken de sferoïden (Figuur 3) te groeien tot een gemiddeld volume van 0,048 ± 0,012 mm3 (451 μm x 462,84 μm) (Figuur 4). Er zijn gevallen aangetroffen waarin cellen beter kunnen groeien, wat leidt tot grotere initiële gemiddelde volumes van 0,096 ± 0,014 mm3 (611 μm x 560 μm) op dag 14. Verschillende redenen kunnen ertoe leiden dat de sferoïden grotere initiële volumes hebben, zoals het behoud van de temperatuur en vochtigheid van de incubator of het gebruik van eerdere celpassages, die een iets verbeterde vitaliteit hebben in vergelijking met latere passages.
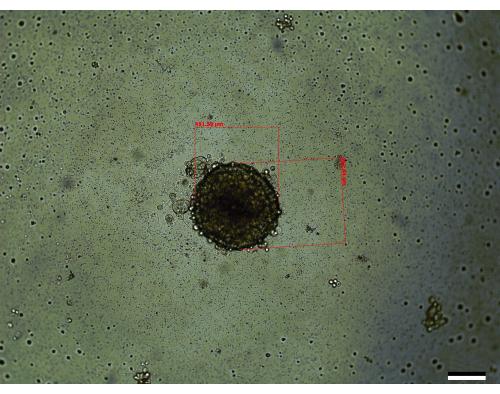
Figuur 3: Een representatieve sferoïde zoals te zien op dag 14 (grootte: 451,59 μm x 462,84 μm). Schaal balk = 200 μm. Elke sferoïde wordt gemeten langs respectievelijk de langste en kortste as en gebruikt de vergelijking die wordt beschreven in de sectie methoden om het volume te berekenen. Klik hier om een grotere versie van deze figuur te bekijken.
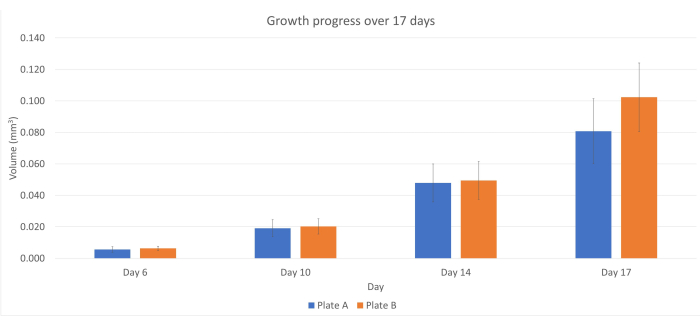
Figuur 4: Voortgang van de sferoïde groei gedurende 17 dagen. Platen 1 en 2 zijn replica's. De foutbalken geven de standaarddeviatie weer. De figuur kan worden gebruikt als een geschatte schatting van de sferoïde volumes die op dag 6, 10, 14 en 17 kunnen worden gezien. Klik hier om een grotere versie van deze figuur te bekijken.
In gevallen waarin de cellen echter niet correct worden geteld of als de celsuspensie niet grondig wordt gemengd, of de uiteindelijke cultuur niet regelmatig wordt onderhouden, of een combinatie van deze fouten optreedt, kan dit leiden tot de ontwikkeling van kleinere sferoïden of onvolledig gegroeide sferoïden. Sferoïden met een vergelijkbaar uiterlijk werden ook gezien wanneer initiële optimalisatiestudies alleen op dag 3 media aanvulden in putten rond de omtrek van de plaat in plaats van de hele plaat (Figuur 5). Als alternatief, in gevallen waarin de cellen niet goed worden gemengd, of initiële tel-/verdunningsfouten leiden tot het zaaien van meer cellen per put dan de aanbeveling, kunnen meerdere sferoïden per put worden gezien. Een soortgelijke bevinding werd gezien wanneer PANC-1:HPaSteC-cellen werden gebruikt in een verhouding van 240:120 (Figuur 6). Dit kan ook af en toe worden gezien wanneer sferoïden per richting worden gekweekt, maar dergelijke sferoïden zijn minder in aantal (bijv. 4/96 putjes kunnen twee sferoïden per putje bevatten in plaats van één). In gevallen waarin meerdere sferoïden worden aangetroffen, vermijd dan het gebruik van de putjes met meerdere sferoïden of noteer veranderingen in volumes wanneer deze sferoïden worden behandeld. Onjuiste veranderingen van media waarbij de pipetpunt onder de halo duikt (Figuur 1) kunnen ook leiden tot onbedoeld verlies van de sferoïden.
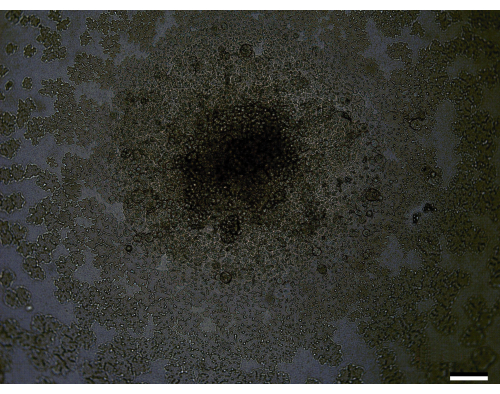
Figuur 5: Een representatief beeld van een slecht gegroeide sferoïde op dag 14. Schaal balk = 200 μm. Hier zijn de cellen niet goed geaggregeerd, dus het wordt moeilijk om de lengte en breedte van de sferoïde te meten. Klik hier om een grotere versie van deze figuur te bekijken.
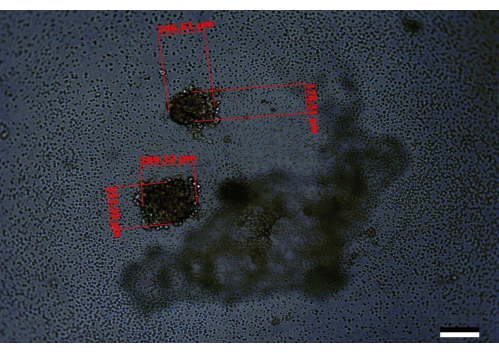
Figuur 6: Een representatief beeld van een put met daarin twee slecht gekweekte sferoïden zoals te zien op dag 14. Schaal balk = 200 μm. Hier heeft een van de sferoïden een grootte van 246,61 μm x 178,31 μm en de andere 289,13 μm x 252,35 μm. Dit is een voorbeeld waarbij er waarschijnlijk een probleem is met de initiële verdunningen of de kwaliteit van de cellen die zijn gebruikt om het experiment te starten. Klik hier om een grotere versie van deze figuur te bekijken.
De sferoïden ontwikkelen ook een ECM met vier van de primaire ECM-componenten: collageen-I, laminine, hyaluronzuur en fibronectine. In studies die het laboratorium eerder heeft gepubliceerd, is het voordeel van de co-cultuur ten opzichte van PANC-1 alleen aangetoond in termen van homo PANC-1-sferoïden die diffuus collageen, geen fibronectine en minder hyaluronzuurafzetting vertonen.

Figuur 7: Representatief beeld van de vier primaire ECM-componenten zoals gezien op dag 17 in onbehandelde sferoïden: collageen I, laminine, hyaluronzuur en fibronectine. Deze beelden worden verkregen na immunokleuring van cryosecties van de sferoïde. De helderheid van deze afbeeldingen is gelijkmatig verhoogd om verschillen in uiterlijk te benadrukken. Gebieden waar weefsel beschadigd is of ontbreekt, moeten worden aangepast terwijl intensiteitsmetingen worden uitgevoerd. Schaalbalken = 100 μm. Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
De duur en celverhoudingen die werden gekozen om de sferoïden te laten groeien, waren gebaseerd op studies zoals eerder gerapporteerd38. Bij een poging om deze onderzoeken te optimaliseren door NIH3T3-cellen te vervangen door HPaSteC-cellen, bleken sferoïde volumes en apoptosepatronen sterk te lijken op de gerapporteerde geoptimaliseerde parameters (gerapporteerd voor PANC-1: NIH3T3:: 120:12) wanneer PANC-1: HPaSteC-ratio's 120: 60 waren. Hoewel deze studies apoptose slechts tot dag 14 meten, blijft het protocol dat in dit proces wordt beschreven sferoïden gebruiken tot dag 17, aangezien er tussen dag 14 en dag 17 geen zichtbare toename van puinvorming wordt waargenomen. Als controle bevatten alle sferoïden die op dag 17 worden geëvalueerd altijd een onbehandelde arm om als basis te dienen voor natuurlijke toename van het volume van de sferoïden en apoptose.
Het proces van het zaaien en kweken van sferoïden bestaat uit 3 cruciale stappen: goed tellen, mengen voorafgaand aan de toevoeging van de cellen en onderhoud voor de culturen. Aangezien het proces afhankelijk is van het gebruik van een klein aantal PANC-1- en HPaSteC-cellen, wordt het hebben van het juiste aantal en de juiste verdunningen van cruciaal belang. Dit is vooral belangrijk voor HPaSteC-cellen, omdat deze cellen kleiner zijn dan PANC-1-cellen en het gemakkelijk is om het aantal cellen te onderschatten. Daarom is het van cruciaal belang om de cellen zorgvuldig te tellen. Het onderschatten van het aantal leidt ertoe dat er meerdere sferoïden worden gevormd, terwijl overschatting kan leiden tot slecht gevormde sferoïden.
Het wordt ook van cruciaal belang om de suspensie bij alle stappen goed te mengen. Werken met de verwachting dat cellen zich kunnen nestelen, helpt ondermenging te voorkomen en zorgt voor een gelijkmatige celverdeling. Bij het voorbereiden van de sferoïden voor meer dan één plaat (bv. twee platen) wordt aanbevolen dat het aantal heen-en-weer mengsels (stap 4.4.1) tussen elk putje ten minste 20 bedraagt. Dit kan worden teruggebracht tot 15 als de eerste plaat halverwege is, gevolgd door 10 bij het begin van de volgende plaat en 5 als er vooruitgang wordt geboekt naar de tweede helft van de tweede plaat. Door een roerbeweging met de pipet uit te voeren terwijl u heen en weer mengt, wordt de mate van mengen verbeterd. Een idee om te overwegen is om een tweede persoon te betrekken bij het bereiden van twee borden, omdat dit de snelheid en mengefficiëntie verhoogt. In dit scenario kunnen twee personen de kap tegelijkertijd gebruiken met hun individuele ophangingen en platen door aan de tegenoverliggende hoeken van de kap te werken.
Het onderhouden van de celculturen is noodzakelijk om ervoor te zorgen dat de sferoïden altijd over voldoende voedingsstoffen beschikken. Mediasupplementen op dag 3 en 6 zijn het meest kritisch, omdat hier de cellen groeien en goed gevoed moeten worden. Mediawisselingen op dag 6 en 10/11 kunnen ook lastig zijn, omdat ze gepaard gaan met het verzamelen van wat supernatant om oudere media weg te gooien. Deze stap moet voorzichtig worden uitgevoerd door de media voorzichtig naar buiten te trekken tot aan de "halo" en nooit verder. Dit helpt het aanzuigen van media van te dicht bij de sferoïde te voorkomen en het onbedoelde verlies van sferoïden tijdens het verwisselen van media.
De methode heeft een groot voordeel dat het gemakkelijk reproduceerbaar is en geen mal of steigermateriaal vereist, in tegenstelling tot de methoden die we eerder hebben genoemd 32,34,35,36,37,39. Bovendien zijn de gebruikte media standaard celkweekmedia, die relatief goedkoop zijn in tegenstelling tot EGM-2-media39, mengsels van stellaatcelmedia en DMEM-FBS35of een van beide media alleen, afhankelijk van celtypen34. Dit voordeel wordt van cruciaal belang voor de vertaalbaarheid tussen laboratoria en het gemak van het opzetten. Het proces kan ook worden opgeschaald voor meerdere platen, maar er is waarschijnlijk één persoon nodig voor elke twee platen. De robuuste aard van de sferoïden maakt het ook mogelijk om ze te beoordelen onder roeromstandigheden. Deze stap is met name nuttig bij het uitvoeren van cellulaire farmacokinetische of gegraven afgifte- en absorptiestudies waarbij sferoïden betrokken zijn.
Ondanks de voordelen is een beperking van de methode dat deze tijdens de zaaistap zeer grondig moet worden gemengd. Dit kan tijdrovend en fysiek inspannend worden. Een mogelijke manier om dit te omzeilen is het gebruik van een goed gesteriliseerde magnetische kraal om tijdens het zaaiproces constant te roeren. Het verzamelen van de sferoïden is ook lastig en vereist enige oefening. De sferoïden hebben ook tijd nodig om te groeien en vereisen daarom een zorgvuldige planning om de beschikbaarheid van personeel en voorraden voor mediaveranderingen te garanderen.
Tot slot werd een eenvoudige en reproduceerbare methode ontwikkeld om klinisch relevante desmoplastische 3D-sferoïden te produceren. De sferoïden zijn robuust en in staat om ECM-componenten te genereren: collageen I, laminine, hyaluronzuur en fibronectine. De eenvoud die betrokken is bij het genereren van deze sferoïden heeft een uniek voordeel dat ze gemakkelijk reproduceerbaar zijn en gemakkelijk kunnen worden aangepast aan veranderingen, zoals het opnemen van een derde cellijn. Een ander uniek voordeel van het model is dat het resistent is tegen therapie40. Dit draagt bij aan de klinische relevantie en zorgt ervoor dat alleen de meest effectieve geneesmiddelen worden gekozen om vooruit te komen en te worden gebruikt voor de behandeling van alvleesklierkanker. Verder kunnen deze sferoïden worden verzameld en geïmplanteerd bij muizen om reproduceerbare desmoplastische tumoren te geven voor in vivo analyse38en ook worden gebruikt om de penetratie van nanodeeltjes van verschillende grootte te onderzoeken44zoals eerder beschreven.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Het beschreven werk werd ondersteund door het South Dakota Governors' Office of Economic Development, het South Dakota Board of Regents Competitive Research Grant Program (SD-BOR-CRGP) en het Department of Pharmaceutical Sciences van de South Dakota State University voor hun steun.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Axio Observer inverted microscope | Carl Zeiss | 0450-354 | |
| Cellometer Auto T4 | Nexcelom Bioscience LLC | Auto-T4 | |
| DMEM, powder, high glucose | Gibco | 12100046 | |
| Donkey anti-sheep conjugated with Alexa Fluor 568 | Abcam | ab175712 | |
| Fetal Bovine Serum | Cytiva | SH3091003HI | |
| Goat antirabbit IgG labeled with Alexa Fluor 488 | Abcam | ab150077 | |
| Hanks Balanced Salt Solution (HBSS) | Gibco | 14175145 | |
| Human Pancreatic Stellate Cells (HPaSteC) | ScienCell | 3830 | |
| Microscope Nikon | Nikon | Eclipse Ts 100 | |
| Nunc 96-Well Polystyrene Round Bottom Microwell Plates | Thermo Scientific | 12-565-331 | |
| Olympus Fluoview FV1200 confocal laser | Olympus | N/A | Discontinued product |
| PANC-1 | ATCC | CRL-1469 | |
| Poly-HEMA | Sigma | P3932 | |
| Rabbit polyclonal anti-laminin antibodies | Abcam | ab11575 | |
| Rabbit polyclonal anti-type I collagen antibodies | Abcam | ab34710 | |
| Sheep polyclonal anti-hyaluronic acid antibodies | Abcam | ab53842 | |
| Stellate cell media complete kit | ScienCell | 5301 | |
| Trypsin | MP Biomedicals, LLC | 153571 | Trypsin solution prepared according to manufacturers protocol and used at 0.25%w/v |
| Trypsin Neutralization Solution (TNS) | ScienCell | 103 |
Referenties
- Hingorani, S. R. Epithelial and stromal co-evolution and complicity in pancreatic cancer. Nat Rev Cancer. 23 (2), 57-77 (2023).
- Laklai, H., et al. Genotype tunes pancreatic ductal adenocarcinoma tissue tension to induce matricellular fibrosis and tumor progression. Nat Med. 22 (5), 497-505 (2016).
- Binker, M. G., Binker-Cosen, M. J., Binker-Cosen, A. A., Cosen-Binker, L. I. Microenvironmental factors and extracellular matrix degradation in pancreatic cancer. J Pancreas. 15 (4), 280-285 (2014).
- Spano, D., Zollo, M. Tumor microenvironment: a main actor in the metastasis process. Clin Exp Metastasis. 29 (4), 381-395 (2012).
- Ware, M. J., et al. Generation of an in vitro 3D PDAC stroma rich spheroid model. Biomaterials. 108, 129-142 (2016).
- Sunami, Y., Häußler, J., Kleeff, J. Cellular heterogeneity of pancreatic stellate cells, mesenchymal stem cells, and cancer-associated fibroblasts in pancreatic cancer. Cancers. 12 (12), 3770(2020).
- Öhlund, D., et al. Distinct populations of inflammatory fibroblasts and myofibroblasts in pancreatic cancer. J Exp Med. 214 (3), 579-596 (2017).
- Pandol, S., Edderkaoui, M., Gukovsky, I., Lugea, A., Gukovskaya, A. Desmoplasia of pancreatic ductal adenocarcinoma. Clin Gastroenterol Hepatol. 7 (11), S44-S47 (2009).
- Watanabe, I., et al. Advanced pancreatic ductal cancer: fibrotic focus and β-catenin expression correlate with outcome. Pancreas. 26 (4), 326-333 (2003).
- Hu, G., et al. Tumor-infiltrating podoplanin+ fibroblasts predict worse outcome in solid tumors. Cell Physiol Biochem. 51 (3), 1041-1050 (2018).
- Kapałczyńska, M., et al. 2D and 3D cell cultures-a comparison of different types of cancer cell cultures. Arch Med Sci. 14 (4), 910-919 (2018).
- Monberg, M. E., et al. Occult polyclonality of preclinical pancreatic cancer models drives in vitro evolution. Nat Commun. 13 (1), 3652(2022).
- Emerman, J. T., Pitelka, D. R. Maintenance and induction of morphological differentiation in dissociated mammary epithelium on floating collagen membranes. In Vitro. 13 (5), 316-328 (1977).
- Kelm, J. M., Timmins, N. E., Brown, C. J., Fussenegger, M., Nielsen, L. K. Method for generation of homogeneous multicellular tumor spheroids applicable to a wide variety of cell types. Biotechnol Bioeng. 83 (2), 173-180 (2003).
- Kikuta, K., et al. Pancreatic stellate cells promote epithelial-mesenchymal transition in pancreatic cancer cells. Biochem Biophys Res Commun. 403 (3-4), 380-384 (2010).
- Lee, J. -H., et al. Microfluidic co-culture of pancreatic tumor spheroids with stellate cells as a novel 3D model for investigation of stroma-mediated cell motility and drug resistance. J Exp Clin Cancer Res. 37 (1), 4(2018).
- Wong, C. -W., Han, H. -W., Tien, Y. -W., Hsu, S. -H. Biomaterial substrate-derived compact cellular spheroids mimicking the behavior of pancreatic cancer and microenvironment. Biomaterials. 213, 119202(2019).
- Liu, X., et al. 3D heterospecies spheroids of pancreatic stroma and cancer cells demonstrate key phenotypes of pancreatic ductal adenocarcinoma. Transl Oncol. 14 (7), 101107(2021).
- Vonlaufen, A., et al. Pancreatic stellate cells: partners in crime with pancreatic cancer cells. Cancer Res. 68 (7), 2085-2093 (2008).
- Bachem, M. G., et al. Pancreatic carcinoma cells induce fibrosis by stimulating proliferation and matrix synthesis of stellate cells. Gastroenterology. 128 (4), 907-921 (2005).
- Greco, E., et al. Pancreatic cancer cells invasiveness is mainly affected by interleukin-1β not by transforming growth factor-β1. Int J Biol Markers. 20 (4), 235-241 (2005).
- Arao, S., Masumoto, A., Otsuki, M. β1 integrins play an essential role in adhesion and invasion of pancreatic carcinoma cells. Pancreas. 20 (2), 129-137 (2000).
- Sawai, H., Yamamoto, M., Okada, Y., Sato, M., Akamo, Y., Takeyama, H., Manabe, T. Alteration of integrins by Interleukin-1alpha in human pancreatic cancer cells. Pancreas. 23 (4), 399-405 (2001).
- Chen, J., et al. Expression and function of the epidermal growth factor receptor in physiology and disease. Physiol Rev. 96 (3), 1025-1069 (2016).
- Deer, E. L., et al. Phenotype and genotype of pancreatic cancer cell lines. Pancreas. 39 (4), 425(2010).
- Stahle, M., et al. Mechanisms in LPA-induced tumor cell migration: critical role of phosphorylated ERK. J Cell Sci. 116, Pt 18 3835-3846 (2003).
- Aubert, M., et al. Decrease of human pancreatic cancer cell tumorigenicity by α1, 3galactosyltransferase gene transfer. Int J Cancer. 107 (6), 910-918 (2003).
- Miknyoczki, S. J., Chang, H., Klein-Szanto, A., Dionne, C. A., Ruggeri, B. A. The Trk tyrosine kinase inhibitor CEP-701 (KT-5555) exhibits significant antitumor efficacy in preclinical xenograft modelsof human pancreatic ductal adenocarcinoma. Clin Cancer Res. 5 (8), 2205-2212 (1999).
- Fukasawa, M., Korc, M. Vascular endothelial growth factor-trap suppresses tumorigenicity of multiple pancreatic cancer cell lines. Clin Cancer Res. 10 (10), 3327-3332 (2004).
- Hernández-Camarero, P., et al. Pancreatic (pro) enzymes treatment suppresses BXPC-3 pancreatic Cancer Stem Cell subpopulation and impairs tumour engrafting. Sci Rep. 9 (1), 11359(2019).
- Ware, M. J., et al. Generation of homogenous three-dimensional pancreatic cancer cell spheroids using an improved hanging drop technique. Tissue Eng Part C Methods. 22 (4), 312-321 (2016).
- Longati, P., et al. 3D pancreatic carcinoma spheroids induce a matrix-rich, chemoresistant phenotype offering a better model for drug testing. BMC Cancer. 13, 95(2013).
- Kpeglo, D., et al. Modeling the mechanical stiffness of pancreatic ductal adenocarcinoma. Matrix Biol Plus. 14, 100109(2022).
- Jang, S. -D., et al. Anti-cancer activity profiling of chemotherapeutic agents in 3D co-cultures of pancreatic tumor spheroids with cancer-associated fibroblasts and macrophages. Cancers. 13 (23), 5955(2021).
- Pednekar, K. P., Heinrich, M. A., van Baarlen, J., Prakash, J. Novel 3D µtissues mimicking the fibrotic stroma in pancreatic cancer to study cellular interactions and stroma-modulating therapeutics. Cancers. 13 (19), 5006(2021).
- Kim, S. -K., et al. Phenotypic heterogeneity and plasticity of cancer cell migration in a pancreatic tumor three-dimensional culture model. Cancers. 12 (5), 1305(2020).
- Hwang, H. J., Oh, M. -S., Lee, D. W., Kuh, H. -J. Multiplex quantitative analysis of stroma-mediated cancer cell invasion, matrix remodeling, and drug response in a 3D co-culture model of pancreatic tumor spheroids and stellate cells. J Exp Clin Cancer Res. 38 (1), 258(2019).
- Durymanov, M., et al. Subcutaneous inoculation of 3D pancreatic cancer spheroids results in development of reproducible stroma-rich tumors. Transl Oncol. 12 (1), 180-189 (2019).
- Giustarini, G., Teng, G., Pavesi, A., Adriani, G. Characterization of 3D heterocellular spheroids of pancreatic ductal adenocarcinoma for the study of cell interactions in the tumor immune microenvironment. Front Oncol. 13, 1156769(2023).
- Alseud, K., et al. Synthesis and biological activity of 11-oxygenated and heterocyclic estrone analogs in pancreatic cancer monolayers and 3D spheroids. Bioorg Med Chem. , (2024).
- Fitzgerald, A. A., et al. Fibroblast activation protein regulates natural killer cell migration, extravasation and tumor infiltration. bioRxiv. , 429622(2021).
- Wishart, G., Gupta, P., Schettino, G., Nisbet, A., Velliou, E. 3D tissue models as tools for radiotherapy screening for pancreatic cancer. Br J Radiol. 94 (1120), 20201397(2021).
- Peirsman, A., et al. MISpheroID: a knowledgebase and transparency tool for minimum information in spheroid identity. Nat Methods. 18 (11), 1294-1303 (2021).
- Durymanov, M., Kroll, C., Permyakova, A., Reineke, J. Role of endocytosis in nanoparticle penetration of 3D pancreatic cancer spheroids. Mol Pharm. 16 (3), 1074-1082 (2019).
Herprints en machtigingen
