We presenteren een protocol voor het bereiden van synthetische biomoleculaire condensaten bestaande uit amfifiele DNA-nanosterren uitgaande van hun samenstellende DNA-oligonucleotiden. Condensaten worden geproduceerd uit een enkele nanostercomponent of twee componenten en worden gemodificeerd om in vitro transcriptie van RNA van een ingebedde DNA-sjabloon te ondersteunen.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Synthetische condensaten en celachtige architecturen van amfifiele DNA-nanostructuren
In dit artikel
Samenvatting
Samenvatting
Synthetische druppeltjes en condensaten worden steeds vaker voorkomende bestanddelen van geavanceerde biomimetische systemen en synthetische cellen, waar ze kunnen worden gebruikt om compartimentering tot stand te brengen en levensechte reacties te ondersteunen. Synthetische DNA-nanostructuren hebben een aanzienlijk potentieel aangetoond als condensaatvormende bouwstenen vanwege hun programmeerbare vorm, chemische functionalisatie en zelfassemblagegedrag. We hebben onlangs aangetoond dat amfifiele DNA-"nanosterren", verkregen door DNA-juncties te labelen met hydrofobe groepen, een bijzonder robuuste en veelzijdige oplossing vormen. De resulterende amfifiele DNA-condensaten kunnen worden geprogrammeerd om complexe, interne architecturen met meerdere compartimenten weer te geven, structureel te reageren op verschillende externe stimuli, macromoleculen te synthetiseren, nuttige ladingen op te vangen en vrij te geven, morfologische transformaties te ondergaan en te interageren met levende cellen. Hier demonstreren we protocollen voor het bereiden van amfifiele DNA-condensaten uitgaande van samenstellende DNA-oligonucleotiden. We zullen ons richten op (i) enkelcomponentsystemen die uniforme condensaten vormen, (ii) tweecomponentensystemen die kern-schaalcondensaten vormen, en (iii) systemen waarin de condensaten worden gemodificeerd om in vitro transcriptie van RNA-nanostructuren te ondersteunen.
Inleiding
Synthetische cellen zijn apparaten op micrometerschaal (10-50 μm) die van onderaf zijn geconstrueerd om functies en structuren van bestaande biologische cellen na te bootsen 1,2. Synthetische cellen worden vaak gebonden door membranen die zijn opgebouwd uit lipide dubbellaagse blaasjes 3,4,5,6,7, polymersomen 8,9 of proteïnosomen10,11, die ook kunnen worden gebruikt om interne compartimentering tot stand te brengen12,13. Geïnspireerd door de membraanloze organellen waarvan bekend is dat ze verschillende functionaliteiten in levende cellen ondersteunen14, winnen structuren zoals polymeercoacervaten, biomoleculaire condensaten en hydrogels aan populariteit als veelzijdige en robuuste alternatieven om zowel externe als interne compartimentering in synthetische cellen tot stand te brengen 15,16,17,18.
Door gebruik te maken van de veelzijdige toolkit van DNA-nanotechnologie19 zijn er meerdere oplossingen ontwikkeld om synthetische druppels en condensaten te ontwikkelen uit de zelfassemblage van kunstmatige DNA-nanostructuren, waarvan de grootte, vorm, functionaliteit, valentie en onderlinge interacties nauwkeurig kunnen worden geprogrammeerd20. DNA-druppeltjes of condensaten zijn biocompatibel en kunnen fungeren als steigers voor zowel synthetische cellen als organellen, waarbij chemische en biomoleculaire reacties plaatsvinden21, informatie wordt berekend22,23, ladingen worden opgevangen en vrijgegeven24,25 en structurele reacties in stand worden gehouden26.
Onder de diverse ontwerpen van condensaatvormende DNA-nanostructuren zijn amfifiele DNA-nanosterren - ook wel C-sterren genoemd - robuust en veelzijdig gebleken27. C-sterren zijn eenvoudige vertakte motieven die bestaan uit een vaste DNA-junctie (meestal vierweg), waaruit dubbelstrengs (ds)DNA-armen tevoorschijn komen28. De armen worden vervolgens getipt met hydrofobe delen, meestal cholesterol, waardoor de nanostructuren amfifiel worden en hun condensatie wordt aangedreven na een eenvoudige eenpotgloeiing. C-star-condensaten bieden nauwkeurige structurele en functionele programmeerbaarheid, inclusief de mogelijkheid om architecturen met meerdere compartimenten tot stand te brengen29,30, structureel te reageren op DNA- en kation-triggers31, macromoleculen te synthetiseren29, nuttige ladingen op te vangen en vrij te geven32, en interactie met levende cellen33. Hieronder zullen we protocollen beschrijven en bespreken om C-stercondensaten te produceren, uitgaande van hun samenstellende oligonucleotiden.
Het protocol vat de bereiding van unaire (één-component) en binaire (twee-componenten) condensaten samen, met behulp van drie verschillende C-star-ontwerpen (Figuur 1) - "Niet-responsief", "TMSD-responsief" en "RNA-sjabloon". De "Non-responsive" C-ster (paneel A) bestaat uit vier "kernstrengen" met verschillende sequenties die de vierwegovergang vormen. Vier identieke cholesterol-gemodificeerde oligonucleotiden zijn verbonden met de junctie, zodat er aan het einde van elke arm een cholesterolmolecuul aanwezig is. De niet-reagerende C-sterren vormen eenvoudige, inerte steigers voor unaire en binaire condensaten. In de "TMSD-responsieve" C-ster (paneel B) wordt de verbinding tussen de gecholesteroliseerde strengen en de junctie verzekerd door een "Toeholding bridge"-streng, die een bungelend enkelstrengs (ss)DNA "toehold"-domein heeft. In aanwezigheid van een indringer DNA-streng met een complementair teenvastdomein, kan een door de teenklem gemedieerde strengverplaatsingsreactie worden geactiveerd34, waarbij de indringer de Toeholding-brug verplaatst, de verbinding tussen de verbinding met de hydrofobe delen verbreekt en de ontmanteling van het DNA-netwerk in gang zet32. Ten slotte bevat de "RNA-sjabloon" C-ster (paneel C) een "Base"-modificatie die complementair is aan een "Bridge"-streng, waarvan de laatste de transcripteerbare ssDNA-sjabloon voor de Broccoli-aptamer29 met elkaar verbindt. Sequentiedetails van de samenstellende oligonucleotiden voor de drie typen C-sterontwerpen die hier worden genoemd, zijn te vinden in aanvullende tabel 1 en in eerdere werken 29,30,32.

Figuur 1. Schema's van drie verschillende ontwerpen van amfifiele DNA-nanosterren (C-sterren). Oligonucleotidesequenties voor verschillende voorbeelden van de hier beschreven C-sterren zijn te vinden in aanvullende tabel 1. (A) Schema van een C-ster die is ontworpen om niet-reagerende condensaten te vormen, met de samenstellende oligonucleotidestrengen "Kern 1", "Kern 2", "Kern 3", "Kern 4" (gekleurd in roze tinten) en "Terminaal cholesterol" (gekleurd in blauw). Elke unieke kleur vertegenwoordigt een oligonucleotidestreng met een unieke sequentie. "Kern 1" en "Kern 3" zijn elk gedeeltelijk complementair aan "Kern 2" en "Kern 4", maar niet complementair aan elkaar. (B) Schema van een C-ster die is ontworpen om te demonteren bij de toevoeging van een binnendringende streng via door de tenhold gemedieerde strengverplaatsing, zoals beschreven in eerder werk32. Deze C-ster is samengesteld uit "Core" en "Terminal cholesterol" strengen (gekleurd in grijs), evenals een "Terminal complement" (weergegeven in oranje) en een "Toeholding bridge" streng (weergegeven in donker groenblauw). De laatste bevat een overhang van zes nucleotides waaraan een op de juiste manier ontworpen indringerstreng kan binden en vervolgens de "Toeholding bridge" -streng volledig kan verplaatsen, wat de dissociatie van de centrale nanoster-junctie (samengesteld uit "Kern 1, 2, 3 en 4") van de duplexen veroorzaakt die zijn samengesteld uit de "Terminale complement" en "Terminale cholesterol" -strengen. (C) Schema van een C-ster gefunctionaliseerd met een DNA-sjabloon voor een RNA-aptameer. Ook deze is samengesteld uit de "Terminal cholesterol"-streng en "Core 2, 3 en 4" (allemaal weergegeven in grijs), evenals een uitgebreide versie van de "Core 1"-streng (weergegeven in roze), een "Base"-streng (bruin), een "Bridge"-streng (geel) en de "Aptameer-sjabloon" (groen). De DNA-duplex, bestaande uit de laatste twee strengen, vormt het T7-polymerasepromotorgebied, dat de startplaats van de transcriptie markeert. Klik hier om een grotere versie van deze figuur te bekijken.
C-stercondensaten worden gevormd door thermisch gloeien van de samenstellende oligonucleotiden, wat in het hier gepresenteerde protocol wordt uitgevoerd in afgesloten glazen capillairen met een rechthoekige doorsnede met een hoge beeldverhouding. Deze containers bieden meerdere belangrijke voordelen: i) Afdichting zorgt ervoor dat verdamping volledig wordt voorkomen tijdens de (soms langzame) gloeistappen; ii) De vlakke bodem van de haarvaten van optische kwaliteit maakt beeldvorming van de zelfassemblage (of demontage) voorbijganger mogelijk; iii) de hoge aspectverhouding van de haarvaten zorgt ervoor dat zware condensaten zich over een breed, vlak gebied nestelen, waardoor de kans op samensmelting en aggregatie in latere stadia van de zelfassemblagetransiënt die zou optreden in wigvormige containers (bijv. microcentrifugebuizen) wordt verkleind en relatief monodisperse condensaatpopulaties worden geproduceerd; iv) Door het gloeien in een langwerpig glazen capillair uit te voeren, wordt de blootstelling van het monster aan hydrofobe grensvlakken (lucht, plastic of olie) geminimaliseerd, waarvan is waargenomen dat ze de zelfassemblage verstoren door de amfifiele gecholesteroliseerde oligonucleotiden te rekruteren. Zodra het assemblageprotocol is voltooid, kunnen condensaten uit glazen capillairen worden geëxtraheerd voor verdere experimenten waarbij extra reagentia nodig zijn.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
OPMERKING: Het protocol is verdeeld in drie secties. Sectie 1 beschrijft de vereiste stappen, waaronder de bereiding van DNA-oligonucleotiden en glazen capillairen. Hoofdstuk 2 beschrijft de bereiding van C-stercondensaten in verschillende uitvoeringen, waaronder één- en tweecomponentenontwerpen, en hun extractie uit de glazen haarvaten. Sectie 3 beschrijft het gebruik van C-stercondensaten met één component RNA-sjabloon voor de synthese van een RNA-aptameer. De gebruiker moet de hele tijd goede laboratoriumpraktijken volgen, ervoor zorgen dat alle noodzakelijke risicobeoordelingen en -beperking aanwezig zijn en de juiste persoonlijke beschermingsmiddelen (PBM) dragen, waaronder handschoenen, een veiligheidsbril en een laboratoriumjas. Voor het reinigen van glazen capillaire buisjes moet ze worden gesoniseerd, eerst in een oplossing van oppervlakteactieve stoffen en vervolgens in isopropanol of ethanol. De extractie van C-star-condensaten uit capillaire buisjes vereist het gebruik van een diamanten schrijfpen om het glas in te kerven en te breken, met een bijbehorend risico op letsel door glasfragmenten. De belangrijkste materialen, apparatuur en reagentia die worden gebruikt, staan vermeld in de materiaaltabel. De meeste niet-gefunctionaliseerde oligonucleotiden worden door de leverancier gezuiverd met behulp van standaard ontzouting, met uitzondering van de "extended Core 1" en "Aptamer template" strengen, die worden besteld met polyacrylamide gel elektroforese (PAGE) zuivering. Cholesterol-gemodificeerde oligonucleotiden worden door de leverancier gezuiverd met behulp van reverse-phase high-performance vloeistofchromatografie (HPLC).
1. Vereisten
OPMERKING: De volgende oplossingen moeten worden bereid in ultrapuur (Type I) water en worden gefilterd met behulp van spuitfilters van 0,22 μm: Tris-EDTA (TE)-buffer, bestaande uit 10 mM Tris, 1 mM EDTA, bij pH ~8,0; TE-buffer aangevuld met 2 M NaCl; en TE-buffer aangevuld met 0,3 M NaCl. Bufferoplossingen moeten binnen 2 weken na bereiding worden gebruikt en bij 4 °C worden bewaard wanneer ze niet in gebruik zijn. Bovendien wordt een 1 vol%-oplossing van alkalisch optisch reinigingsmiddel in ultrapuur water gebruikt voor het reinigen van de glazen haarvaten.
- Bereiding van DNA-oligonucleotiden uit gevriesdroogde toestand
- Centrifugeer kort (2000 x g gedurende 10-30 s) de buisjes met gevriesdroogde DNA-oligonucleotiden om ervoor te zorgen dat pellets met gevriesdroogd DNA zich op de bodem verzamelen.
NOTITIE: Het centrifugeren gebeurt bij kamertemperatuur (RT) gedurende 10-30 s. De minicentrifuge die hier wordt gebruikt, is standaard ingesteld op 2000 x g (6000 tpm). - Voeg de juiste hoeveelheid TE-buffer toe om elke oligonucleotide te reconstitueren bij 100 μM. Draai grondig om volledige oplossing te garanderen en draai vervolgens de buizen naar beneden om alle vloeistof op te vangen volgens stap 1.1.1.
- Meet voor elke stockoplossing de extinctie bij 260 nm en bereken de uiteindelijke concentratie aan de hand van de extinctiecoëfficiënt van de te testen oligonucleotidesequentie.
OPMERKING: De extinctiecoëfficiënt voor een bepaalde oligonucleotidesequentie is meestal te vinden op het gegevensblad van de leverancier, maar kan ook worden berekend met online tools met behulp van het dichtstbijzijnde buurmodel35 of getabelleerde waarden van de extinctiecoëfficiënt van individuele nucleotiden36. - Bewaar de gerehydrateerde oligonucleotiden bij 4 °C voor korte tijd (tot 1 week) of bij -20 °C voor langdurige opslag (maximaal 6 maanden).
- Centrifugeer kort (2000 x g gedurende 10-30 s) de buisjes met gevriesdroogde DNA-oligonucleotiden om ervoor te zorgen dat pellets met gevriesdroogd DNA zich op de bodem verzamelen.
- Reinigen van glazen capillaire buisjes
- Sonicaat in 1% alkalisch optisch reinigingsmiddel voor optische componenten in gedeïoniseerd water.
- Neem het vereiste aantal glazen capillaire buisjes dat gereinigd moet worden en plaats ze in een hoge, smalle container (bijv. een bekerglas of een centrifugebuisje van 15/50 ml), zodat de capillairen niet plat op de bodem van de container liggen.
- Voeg het wasmiddel toe aan de container en vul deze net boven het niveau van de capillaire buisjes. Zorg ervoor dat er geen ingesloten luchtbellen in de capillaire buizen zitten - tik indien nodig om ze te verwijderen. Dek de container losjes af (bijv. in aluminiumfolie of gebruik het deksel van de centrifugebuis, zorg ervoor dat deze niet goed afgesloten is).
- Stel een sonisch waterbad in op 40 °C, plaats de afgedekte container rechtop in het bad en sonificeer gedurende 30 minuten. Zorg ervoor dat de folie, indien gebruikt, niet in contact komt met het water in het sonicatiebad.
OPMERKING: Het sonicatiebad dat in dit onderzoek wordt gebruikt, is standaard ingesteld op een sonicatiefrequentie van 60 Hz en een sonicatievermogen van 150 W.
LET OP: Voeg nooit voorwerpen toe aan of verwijder ze uit een sonisch bad tijdens het draaien; Pauzeer altijd eerst het protocol. - Zodra de sonicatie is voltooid, schakelt u het verwarmingselement van het sonicatiewaterbad uit en spoelt u de haarvaten in de container grondig af met gedeïoniseerd of ultrapuur water - minimaal vijf keer, waarbij u het spoelwater elke keer weggooit.
- Sonicaat in 1% alkalisch optisch reinigingsmiddel voor optische componenten in gedeïoniseerd water.
- Sonicaat in isopropanol of ethanol.
- Voeg isopropanol of ethanol (minimaal 70%) toe aan de glazen capillaire buisjes in de reinigingscontainer, vul tot net boven het niveau van de capillaire buisjes. Zorg er net als in stap 1.2.1.2 voor dat er geen ingesloten luchtbellen in de capillaire buizen zitten en dek de container losjes af.
- Plaats de container rechtop in het sonicatiebad en sonificeer gedurende 15-30 minuten.
LET OP: Isopropanol en ethanol zijn ontvlambaar, met vlampunten onder RT. Minimaliseer de hoeveelheden oplosmiddelen die tijdens het reinigen worden gebruikt door een container van de juiste grootte te kiezen, zorg ervoor dat de containers losjes zijn afgedekt en laat het sonicatiebad tijdens deze fase niet onbeheerd achter. - Zodra de sonicatie is voltooid, gooit u de isopropanol of ethanol op de juiste manier weg en droogt u de haarvaten onder stikstof en behandelt u ze met een pluisvrije tissue.
2. Bereiding en extractie van C-stercondensaten (figuur 2)
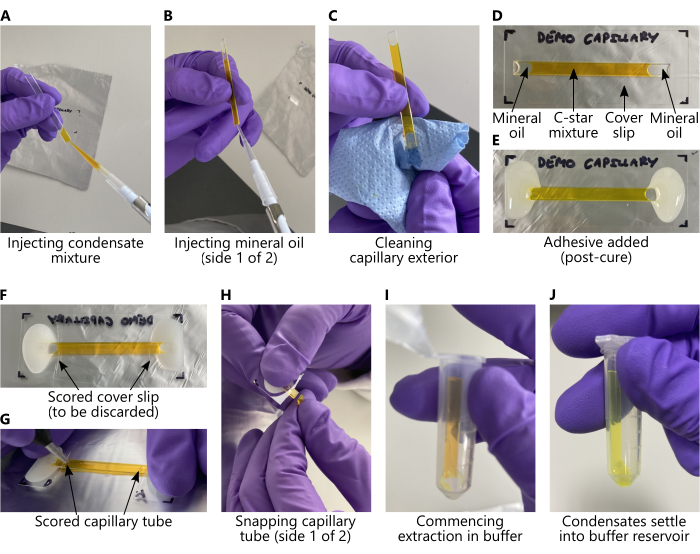
Figuur 2: Laden van C-star-mengsels en afzuigen van condensaten uit glazen capillaire buizen. In alle panelen is het C-star-mengsel vervangen door een waterige oplossing van 25 mM calceïne om de zichtbaarheid te bevorderen. (A-E) Belangrijke stappen die vóór het gloeien moeten worden genomen, overeenkomstig de protocolparagrafen 2.1 en 2.2. (F-J) Belangrijke stappen die na het gloeien moeten worden genomen, overeenkomstig protocollair deel 2.3. Tijdens de extractie (panelen (I-J)) zal DNA-condensaat uit het capillair in het bufferreservoir bezinken zolang de microcentrifugebuis verticaal wordt opgeslagen. Condensaten zijn niet zichtbaar voor het blote oog. Klik hier om een grotere versie van deze figuur te bekijken.
- Bereiding van C-star-mengsels voor enkelcomponentcondensaten
OPMERKING: Sequentiedetails voor verschillende ontwerpen van afzonderlijke componenten zijn te vinden in aanvullende tabel 1 en in eerdere werken 29,30,32. De langzame gloeiprotocollen die in de stappen 2.1.9 en 2.2.2 zijn gedefinieerd, zijn ontwikkeld om de ontspanning van de nanosternetwerken tot compacte morfologieën te verzekeren, gezien de sterk temperatuurafhankelijke reologische eigenschappen van nanosternetwerken37.- Oligonucleotide- en buffercomponenten zullen variëren afhankelijk van het gewenste C-star-ontwerp. Bereid een mengsel van 60 μL van C-stercondensaten met één component met een concentratie van 5 μM voor de niet-responsieve vierarmige C-ster, de TMSD-responsieve C-ster of de RNA-sjablonende C-ster.
- Pipetteer voor elk ontwerp de juiste componenten die worden vermeld in aanvullende tabel 2 in een afzonderlijke microcentrifugebuis en meng grondig via pipetteren.
OPMERKING: Aangenomen wordt dat alle oligonucleotide-stockoplossingen een concentratie van 100 μM in TE hebben. - Zuig de volledige 60 μl C-star-oplossing op en pipette voorzichtig om het mengsel in de gereinigde, droge glazen capillaire buis te injecteren, zoals weergegeven in afbeelding 2A, en zorg ervoor dat er geen luchtbellen ontstaan.
- Injecteer met een pipet ongeveer 9-12 μl minerale olie in elk uiteinde van de capillaire buis, waarbij het monster zodanig wordt afgedekt dat er geen vrije interface is tussen de C-star-oplossing en de lucht (zie figuur 2B). Droog vervolgens de capillaire buis zorgvuldig af met tissuepapier om er zeker van te zijn dat er geen olie aan de buitenkant aanwezig is (Figuur 2C), en zorg ervoor dat u geen minerale olie of C-ster-oplossing uit de capillaire buis afvoert. Het eindresultaat is weergegeven in figuur 2D.
- Bereid een kleine partij tweecomponenten epoxylijm voor om elk uiteinde van de capillaire buis, met de platte kant naar beneden, op een glazen afdekglaasje te bevestigen. Zorg ervoor dat de openingen van de buis volledig bedekt zijn met lijm en een doorlopende afdichting vormen, zoals weergegeven in afbeelding 2E.
- Zet opzij om minimaal 3 uur uit te harden, maar bij voorkeur een nacht.
- Inspecteer na ~30 minuten uitharden de lijmlaag op de aanwezigheid van openingen in de afdichting veroorzaakt door luchtbellen. Als deze aanwezig zijn, sluit ze dan af met een kleine hoeveelheid lijm.
- Wikkel de capillaire buis die op het dekglaasje is gelijmd in aluminiumfolie en zorg ervoor dat de folie plat blijft aan de onderkant van het glazen afdekglaasje. De folie zorgt voor een goed thermisch contact tussen deze en het verwarmingselement van de thermische cycler (zie volgende stap).
- Plaats het verpakte monster in een thermische cycler en gloei volgens het volgende protocol: Houd 30 minuten op 95 °C, koel vervolgens af van 85 °C tot 50 °C bij -0.04 °C·min-1 en koel vervolgens af van 50 °C tot RT bij -0.5 °C·min-1.
- Bewaar de gegloeide C-star-condensaten bij 4 °C of RT voor langere perioden (maanden) zolang het capillair gesloten blijft, aangezien het thermisch gloeien het monster effectief steriliseert en nucleasen denatureert. Houd het capillair plat tijdens opslag en hantering om te voorkomen dat condensaat naar één uiteinde bezinkt en zich ophoopt.
- Bereiding van C-star mengsels voor binaire condensaten
OPMERKING: Om de selectie van C-sterpopulaties voor binaire systemen te onderbouwen, verwijzen we naar het werk van Malouf et al., waarin de ontwerpregels en het verwachte fasegedrag van binaire C-stercondensaten30 worden beschreven.- Om binaire condensaten te bereiden, combineert u volumes van 30 μl van de C-star-mengsels beschreven in stap 2.1 hierboven tot een totaal volume van 60 μl, mengt u grondig, laadt u het in de haarvaten en volgt u de stappen 2.1.4-2.1.8.
- Plaats het verpakte monster in een thermische cycler en gloei volgens het volgende protocol: Houd 30 minuten op 95 °C, koel vervolgens af van 85 °C tot 40 °C bij -0.01 °C·min-1 en koel vervolgens af van 40 °C tot RT bij -0.1 °C·min-1.
- Extractie van C-ster condensaten uit capillaire buisjes.
- Bereid een grote (1,5 ml of 2,0 ml) microcentrifugebuis voor met 60 μl 0,3 M NaCl in TE-buffer.
- Pak het capillaire monster uit en gebruik een diamanten schrijfpen om de onderkant van het dekglaasje aan elk binnenste uiteinde van het gelijmde gebied in te snijden (Figuur 2F). Breek het dekglaasje in deze regio af en gooi het op de juiste manier weg.
- Reinig de capillaire buisjes grondig met ethanol en droog ze af.
- Snijd elk uiteinde van de capillaire buisjes in met de diamanten schrijfpen, eerst met de onderkant (Figuur 2G), draai dan de buisjes om en snijd ze "met de goede kant naar boven" in.
- Zorg ervoor dat de breuklijnen de olie-waterinterface niet overlappen. Ze moeten zich in het waterige gebied bevinden om te voorkomen dat er olie in het geëxtraheerde monster achterblijft.
- Breek de uiteinden van de capillaire buisjes af (Figuur 2H), houd het centrale deel van de buis vast en gooi de rest weg. Plaats het doorgesneden capillaire buisje in het in stap 2.3.1 voorbereide microcentrifugebuisje en zorg ervoor dat de onderkant van het capillaire buisje in contact komt met de bufferoplossing (figuur 2I).
- De condensaten zullen door de zwaartekracht uit de buis in het bufferreservoir bezinken; laat dit minimaal 10 minuten gebeuren (Figuur 2J). Verwijder de doorgesneden capillaire buis en gooi deze op de juiste manier weg. Deze behoedzame afzuigaanpak beperkt het risico op condensaatophoping.
3. Transcriptie van een RNA-aptameer uit RNA-sjablonende C-stercondensaten
OPMERKING: Voor de productie van de Broccoli RNA-aptameer is een oplossing van difluor-4-hydroxybenzylideenimidazolidinon (DFHBI) vereist - DFHBI-poeder wordt eerst bereid als een standaardoplossing bij 10 mM in dimethylsulfoxide (DMSO), dat vervolgens wordt verdund tot 600 μM in RNase- en DNase-vrij water.
- Wassen van RNA-sjablonende C-star-condensaten
OPMERKING: RNA-sjablonende C-star-condensaten worden drie keer gewassen om ervoor te zorgen dat ongebonden sjabloon-oligonucleotiden worden verwijderd.- Laat de oplossing van afgezogen condensaten ten minste 5 minuten bezinken en verwijder vervolgens ongeveer de helft van het volume van het supernatant.
- Voor een volume van 60 μL afgezogen condensaten verwijdert u tussen 25-30 μL van het supernatant.
- Pipeteer vanaf de bovenkant van het vloeistofniveau om het aantal condensaten dat tijdens deze stap wordt verwijderd tot een minimum te beperken.
- Voeg hetzelfde volume van 0,3 M NaCl toe in TE om het verwijderde supernatans te vervangen en meng door te pipetteren.
- Herhaal de vorige twee stappen voor in totaal drie cycli.
- Laat de oplossing van afgezogen condensaten ten minste 5 minuten bezinken en verwijder vervolgens ongeveer de helft van het volume van het supernatant.
- Bereiding van het T7-transcriptiemengsel
OPMERKING: Het T7-transcriptiemengsel wordt bereid met behulp van de CellScript T7-FlashScribe Transcription Kit. Stap 3.2.2 is een wijziging van het protocol van de fabrikant, dat hier te vindenis 38. Hier beschrijven we de transcriptie van de Broccoli RNA-aptameer, die fluorescentie induceert in DFHBI bij binding. Vervang voor andere oplichtende aptameren het in stap 3.2.2 beschreven volume DFHBI door het juiste fluorogeen. Voor andere transcripties verwijdert u dit onderdeel volledig.- Bereid een stockoplossing van 10 mM DFHBI in DMSO en verdun vervolgens een aliquot tot een eindconcentratie van 600 μM met RNase- en DNase-vrij water.
- Ontdooi de onderdelen van de transcriptiekit op ijs en pipetteer vervolgens het volgende in een geautoclaveerde microcentrifugebuis bij kamertemperatuur met behulp van steriele pipetpunten: 2 μl 10x T7-transcriptiebuffer (meegeleverd in de transcriptiekit), 1,8 μl 100 mM ATP, 1,8 μl 100 mM CTP, 1,8 μl 100 mM UTP, 1,8 μl 100 mM GTP, 2 μl 100 mM DTT, 2 μl 600 μM DFHBI, 0,5 μl RNaseremmer, 2 μl T7-enzymoplossing (meegeleverd in de transcriptiekit).
- Meng de oplossing voorzichtig door te pipetteren.
- Gebruik het transcriptiemengsel voor stap 3.3 (synthese van RNA-transcript) onmiddellijk na de voorbereiding.
- Synthese van RNA-transcript
- In een kamer die geschikt is voor microscopiebeeldvorming, pipetteer 3,3 μl van de gewassen condensaten bereid uit RNA-sjablonende C-sterren en voeg het totale volume van het eerder bereide transcriptiemengsel toe.
- Verkrijg microscopiebeelden voor een duur van 18 uur, te beginnen onmiddellijk na het toevoegen van het transcriptiemengsel aan de condensaten.
OPMERKING: De instellingen van de microscopie zijn afhankelijk van het voorbereide systeem. Zorg ervoor dat de juiste excitatie- en emissie-instellingen worden gebruikt voor eventuele fluoroforen in het monster, samen met blootstellingstijden die niet tot verzadiging leiden naarmate de transcriptie vordert. Zoals voor elke time-lapse, moet een compromis worden gevonden tussen een laser- of LED-vermogen dat hoog genoeg is voor een goed signaal, terwijl ook het risico op fotobleken tot een minimum wordt beperkt. Fotobleken gedurende lange perioden wordt geminimaliseerd op LED-gebaseerde systemen in vergelijking met op laser gebaseerde systemen. Voorgestelde beeldvormingsintervallen: 20 minuten gedurende de eerste 2 uur en vervolgens 30 minuten.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Na het gloeien kunnen C-stercondensaten direct in de capillaire buis, of na extractie, worden afgebeeld om hun vorming te bevestigen. Voor alle variaties in het C-sterontwerp moet men verschillende bolvormige of veelvlakkige condensaten met een diameter van ongeveer 10-50 μm waarnemen, waarbij de laatste worden gevormd wanneer kristallisatie plaatsvindt28,32. Voor condensaten met één component moeten de condensaten er discreet en uniform uitzien en kunnen ze er v...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Het hier beschreven protocol biedt een benadering voor de bereiding van één- of tweecomponentencondensaten uit amfifiele DNA-nanosterren, met ontwerpvariaties om verschillende reacties in de condensaten te introduceren. Het gegeven protocol produceert condensaten in een bufferoplossing van 0,3 M NaCl in TE, maar de buffervoorwaarden kunnen worden gewijzigd door de hierboven vermelde volumes op passende wijze te wijzigen. Eerder werk heeft de vorming van C-stercondensaten bestudeerd in 0,2 M NaCl in TE en 0,1 M NaCl in TE...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
Er zijn geen belangenconflicten gemeld.
Dankbetuigingen
LM, LDM en DT erkennen de steun van de Europese Onderzoeksraad (ERC) in het kader van het Horizon 2020 onderzoeks- en innovatieprogramma (ERC-STG No 851667 - NANOCELL). LDM erkent steun van een Royal Society Research Grant for Research Fellows (RGF/R1/180043) en steun van een Royal Society University Research Fellowship (UF160152, URF/R/221009).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0.22 μm spuitfilters | Sigma-Aldrich | SLGVR33RB | |
| 24 x 60 mm #1.5 Rechthoekige dekglazen, Menzel Gläser | VWR | 631-0853 | |
| 2-Propanol | Sigma-Aldrich | 34683 | |
| 6 L Ultrasone reiniger met digitale timer en verwarming, 230 VAC | Cole-Parmer | WZ-08895-11 | |
| Araldite Rapid Adhesive 2-delige epoxylijm | RS | ARA-400005 | |
| Bio-Rad C1000 thermische cycler | Bio-Rad | 1851197 | |
| Brand Microcentrifugebuisjes 2 mL met vergrendeld deksel | Fisher Scientific | 15338665 | 2 mL microcentrifugebuisjes voor de extractie van C-star condensaat |
| Diamant graveerpen | RS | 394-217 | |
| Difluoro-4-hydroxybenzylideen imidazolidinon (DFHBI) | Sigma-Aldrich | SML1627 | |
| Dimethylsulfoxide (DMSO) | Sigma-Aldrich | 472301 | |
| Eppendorf PCR Clean kleurloze Safe-Lock Centrifugebuisjes | Fisher Scientific | 0030123301 | 0.5 mL microcentrifugebuisjes voor de bereiding van C-star mengsels |
| Ethanol Absoluut 99.8+% | Fisher Scientific | 10437341 | 70% ethanol is voldoende voor reinigingsdoeleinden |
| Fisherbrand ZX4 IR Vortex Mixer | Fisherbrand | 13284769 | |
| Hellmanex III | Hellma | 9-307-011-4-507 | |
| Holle rechthoekige capillairen ID 0.40 x 4.00 mm, 50 mm lengte | CM Scientific | 2540-50 | |
| Mineraalolie | Sigma-Aldrich | 69794 | |
| Mini Centrifuge, 230 V | PRISM(TM) | Z763128 | |
| NaCl | Sigma-Aldrich | S3014 | |
| NanoDrop One Spectrofotometer | Thermo Fisher Scientific | ND-ONE-W | Wordt gebruikt om de absorptie van oligonucleotiden te meten voor concentratieberekeningen |
| Oligonucleotiden | Integrated DNA Technologies | Aangepast | Oligonucleotidesequenties zijn uniek voor het vereiste C-star ontwerp. |
| ScriptGuard RNase remmer | CELLSCRIPT | C-SRI6310K | RNase remmer |
| T7-FlashScribe Transcriptie Kit | Cambio | C-ASF3507 | |
| Tris-EDTA buffer, 100x stockoplossing | Sigma-Aldrich | 574793 | |
| UltraPure DNase/RNase-vrij gedistilleerd water | Invitrogen | 10977035 | |
| VWR Spec-Wipe 3 Doekjes | VWR | 21914-758 |
Referenties
- Buddingh', B. C., Hest, J. C. M. v Artificial cells: Synthetic compartments with life-like functionality and adaptivity. Acc Chem Res. 50 (4), 769-777 (2017).
- Fanalista, F., et al. Shape and size control of artificial cells for bottom-up biology. ACS Nano. 13 (5), 5439-5450 (2019).
- Dora Tang, T. -Y., et al. Fatty acid membrane assembly on coacervate microdroplets as a step towards a hybrid protocell model. Nat Chem. 6 (6), 527-533 (2014).
- Deshpande, S., et al. Spatiotemporal control of coacervate formation within liposomes. Nat Commun. 10 (1), 1800(2019).
- Rubio-Sánchez, R., et al. Thermally driven membrane phase transitions enable content reshuffling in primitive cells. J Am Chem Soc. 143 (40), 16589-16598 (2021).
- Jahnke, K., Huth, V., Mersdorf, U., Liu, N., Göpfrich, K. Bottom-up assembly of synthetic cells with a DNA cytoskeleton. ACS Nano. 16 (5), 7233-7241 (2022).
- Tran, M. P., et al. A DNA segregation module for synthetic cells. Small. 19 (13), 2202711(2023).
- Mason, A. F., Buddingh', B. C., Williams, D. S., Hest, J. C. M. v Hierarchical self-assembly of a copolymer-stabilized coacervate protocell. J Am Chem Soc. 139 (48), 17309-17312 (2017).
- Gumz, H., et al. Toward functional synthetic cells: In-depth study of nanoparticle and enzyme diffusion through a cross-linked polymersome membrane. Adv Sci. 6 (7), 1801299(2019).
- Huang, X., Patil, A. J., Li, M., Mann, S. Design and construction of higher-order structure and function in proteinosome-based protocells. J Am Chem Soc. 136 (25), 9225-9234 (2014).
- Booth, R., Qiao, Y., Li, M., Mann, S. Spatial positioning and chemical coupling in coacervate-in-proteinosome protocells. Angew Chem Int Ed Engl. 58 (27), 9120-9124 (2019).
- Hindley, J. W., et al. Light-triggered enzymatic reactions in nested vesicle reactors. Nat Commun. 9 (1), 1093(2018).
- Zubaite, G., Hindley, J. W., Ces, O., Elani, Y. Dynamic reconfiguration of subcompartment architectures in artificial cells. ACS Nano. 16 (6), 9389-9400 (2022).
- Hirose, T., et al. A guide to membraneless organelles and their various roles in gene regulation. Nat Rev Mol Cell Biol. 24 (4), 288-304 (2023).
- Guindani, C., Silva, L. C. d, Cao, S., Ivanov, T., Landfester, K. Synthetic cells: From Simple Bio-Inspired Modules to Sophisticated Integrated Systems. Angew Chem Int Ed Engl. 61 (16), e202110855(2022).
- Adamala, K. P., et al. Present and future of synthetic cell development. Nat Rev Mol Cell Biol. 25 (3), 162-167 (2023).
- Allen, M. E., et al. Biomimetic behaviors in hydrogel artificial cells through embedded organelles. Proc Natl Acad Sci U S A. 120 (35), e2307772120(2023).
- Cook, A. B., Novosedlik, S., Hest, J. C. M. v Complex coacervate materials as artificial cells. Acc Mater Res. 4 (3), 287-298 (2023).
- Seeman, N. C., Sleiman, H. F. DNA nanotechnology. Nat Rev Mater. 3, 17068(2018).
- Takinoue, M. DNA droplets for intelligent and dynamical artificial cells: from the viewpoint of computation and non-equilibrium systems. Interface Focus. 13 (5), 20230021(2023).
- Liu, W., Lupfer, C., Samanta, A., Sarkar, A., Walther, A. Switchable hydrophobic pockets in DNA protocells enhance chemical conversion. J Am Chem Soc. 145 (13), 7090-7094 (2023).
- Wilner, O. I., Willner, I. Functionalized DNA nanostructures. Chem Rev. 112 (4), 2528-2556 (2012).
- Gong, J., Tsumura, N., Sato, Y., Takinoue, M. Computational DNA droplets recognizing miRNA sequence inputs based on liquid-liquid phase separation. Adv Funct Mater. 32, 2202322(2022).
- Jeon, B. -J., Nguyen, D. T., Saleh, O. A. Sequence-controlled adhesion and microemulsification in a two-phase system of DNA liquid droplets. J Phys Chem. 124 (40), 8888-8895 (2020).
- Sato, Y., Sakamoto, T., Takinoue, M. Sequence-based engineering of dynamic functions of micrometer-sized DNA droplets. Sci Adv. 6 (23), 3471(2020).
- Saleh, O. A., et al. Vacuole dynamics and popping-based motility in liquid droplets of DNA. Nat Commun. 14 (1), 3574(2023).
- Rubio-Sánchez, R., Fabrini, G., Cicuta, P., Michele, L. D. Amphiphilic DNA nanostructures for bottom-up synthetic biology. Chem Commun. 57 (95), 12725-12740 (2021).
- Brady, R. A., Brooks, N. J., Cicuta, P., Di Michele, L. Crystallization of amphiphilic DNA C-Stars. Nano Lett. 17 (5), 3276-3281 (2017).
- Leathers, A., et al. Reaction-diffusion patterning of DNA-based artificial cells. J Am Chem Soc. 144 (38), 17468-17476 (2022).
- Malouf, L., et al. Sculpting DNA-based synthetic cells through phase separation and phase-targeted activity. Chem. 9 (11), 3347-3364 (2023).
- Fabrini, G., Minard, A., Brady, R. A., Antonio, M. D., Michele, L. D. Cation-responsive and photocleavable hydrogels from noncanonical amphiphilic DNA nanostructures. Nano Lett. 22 (2), 602-611 (2022).
- Brady, R. A., Brooks, N. J., Foderà, V., Cicuta, P., Di Michele, L. Amphiphilic-DNA platform for the design of crystalline frameworks with programmable structure and functionality. J Am Chem Soc. 140 (45), 15384-15392 (2018).
- Walczak, M., et al. Responsive core-shell DNA particles trigger lipid-membrane disruption and bacteria entrapment. Nat Commun. 12 (1), 4743(2021).
- Zhang, D. Y., Winfree, E. Control of DNA strand displacement kinetics using Toehold exchange. J Am Chem Soc. 131 (47), 17303-17314 (2009).
- Integrated DNA Technologies OligoAnalyzer Tool. , Available from: https://www.idtdna.com/pages/products/custom-dna-rna/dna-oligos/custom-dna-oligos (2024).
- Cavaluzzi, M. J., Borer, P. N. Revised UV extinction coefficients for nucleoside-5'-monophosphates and unpaired DNA and RNA. Nucleic Acids Res. 32 (1), e13(2004).
- Lattuada, E., Caprara, D., Piazza, R., Sciortino, F. Spatially uniform dynamics in equilibrium colloidal gels. Sci Adv. 7 (49), (2021).
- T7-FlashScribeTM Transcription Kit. , Available from: https://www.cellscript.com/products/018pl0617CS.pdf (2017).
- Zadeh, J. N., et al. NUPACK: Analysis and design of nucleic acid systems. J Comput Chem. 32 (1), 170-173 (2011).
- Walczak, M., Brady, R. A., Leathers, A., Kotar, J., Di Michele, L. Influence of hydrophobic moieties on the crystallization of amphiphilic DNA nanostructures. The Journal of Chemical Physics. 158 (8), 084501(2023).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
