Dit protocol beschrijft een eenvoudige en kosteneffectieve methode om celdood in menselijke colonorganoïden te onderzoeken en te kwantificeren als reactie op cytotoxische perturbagens zoals cytokines. De aanpak maakt gebruik van een fluorescerende celdoodkleurstof (SYTOX Green Nucleic Acid Stain), live fluorescentiemicroscopie en open-source beeldanalysesoftware om enkelvoudige organoïde reacties op cytotoxische stimuli te kwantificeren.
Methodenartikel
Kwantificering van cytokine-geïnduceerde celdood in menselijke colonorganoïden met behulp van live fluorescentiemicroscopie
In dit artikel
Samenvatting
Samenvatting
De dood van intestinale epitheelcellen (IEC) is verhoogd bij patiënten met inflammatoire darmziekten (IBD) zoals colitis ulcerosa (UC) en de ziekte van Crohn (CD). Dit kan bijdragen aan defecten in de darmbarrièrefunctie, verergering van ontstekingen en immunopathogenese van de ziekte. Cytokinen en doodreceptorliganden zijn gedeeltelijk verantwoordelijk voor deze toename van IEC-sterfte. IBD-relevante cytokines, zoals TNF-α en IFN-γ, zijn cytotoxisch voor IEC's, zowel onafhankelijk als in combinatie. Dit protocol beschrijft een eenvoudige en praktische test om cytokine-geïnduceerde cytotoxiciteit te kwantificeren in van CD-patiënten afgeleide colonorganoïden met behulp van een fluorescerende celdoodkleurstof (SYTOX Green Nucleic Acid Stain), live fluorescentiemicroscopie en open-source beeldanalysesoftware. We laten ook zien hoe we het wiskundige model van Bliss-onafhankelijkheid kunnen gebruiken om een coëfficiënt van perturbagen-interactie (CPI) te berekenen op basis van organoïde cytotoxiciteit. De CPI kan worden gebruikt om te bepalen of interacties tussen cytokinecombinaties of andere soorten perturbagens antagonistisch, additief of synergetisch zijn. Dit protocol kan worden geïmplementeerd om de cytotoxische activiteit van cytokinen en andere verstoringen te onderzoeken met behulp van van patiënten afgeleide colonorganoïden.
Inleiding
Het darmepitheel vormt een fysieke semipermeabele barrière tussen de inhoud van het darmlumen en de onderliggende weefsels. Om deze barrière effectief te behouden, ondergaan darmepitheelcellen (IEC's) een extreem hoge celvernieuwing, met een continue cyclus van celdood en regeneratie. Tijdens inflammatoire aandoeningen, zoals inflammatoire darmaandoeningen (IBD), treden echter hogere niveaus van afwijkende celdoodop1. Dit kan een afbraak van de barrièrefunctie en activering van het immuunsysteem bevorderen, waardoor verdere ontstekingen worden veroorzaakt. Bij de ziekte van Crohn (CD), een vorm van IBD, is aangetoond dat cytokinesignalering bijdraagt aan de verhoogde niveaus van IEC-sterfte2. Door te bestuderen hoe cytokinesignalering celdood van IEC's induceert, wordt gehoopt dat verbeterde behandelingen kunnen worden ontwikkeld voor patiënten met IBD en andere intestinaleontstekingsaandoeningen.
In onderzoek naar biologie en de ontdekking van medicijndoelen wordt over het algemeen aangenomen dat synergie optreedt wanneer een biologisch systeem dat wordt behandeld met combinaties van individuele stimuli een respons op de combinatie vertoont die groter is dan de gecombineerde additieve effecten van de enkele stimuli alleen. Synergetische interacties tussen cytokinen zijn goed gedocumenteerd bij het aansturen van aangeboren antivirale responsen3. Van cytokinen is ook bekend dat ze synergetisch celdood induceren, ook in IEC's4. De rol die synergetische cytotoxische cytokinesignalering speelt bij intestinale ontstekingsaandoeningen zoals IBD is echter onderbelicht.
Menselijke darmorganoïden zijn 3D-microweefsels die in vitro worden geproduceerd en die worden gegenereerd uit intestinale epitheelstamcellen. Intestinale organoïden kunnen worden gekweekt uit darmslijmvliesbiopten die zijn verkregen van patiënten met IBD en behouden veel kenmerken van de ziekte 5,6. Organoïden hebben bewezen een ideaal modelsysteem te zijn voor het bestuderen van cytokinecytotoxiciteit in de context van darmontsteking 7,8. Eerder heeft onze groep de synergetische dodende effecten van de IBD-relevante cytokines IFN-γ en TNF-α in van CD-patiënten afgeleide colonorganoïden (colonoïden) gekarakteriseerd9,10. De exacte mechanismen die betrokken zijn bij het mediëren van deze vorm van synergetische celdood blijven echter ongrijpbaar. Er zijn mogelijk ook veel meer niet-gekarakteriseerde cytotoxische cytokine-interacties die relevant zijn voor intestinale ontstekingsaandoeningen.
Er zijn verschillende protocollen beschikbaar om celdood in darmorganoïden te bestuderen 10,11,12,13; Ze hebben echter elk nadelen. Sommige van deze technieken meten alleen de levensvatbaarheid van cellen en meten de celdood niet rechtstreeks, zijn niet in staat om reacties van één organoïde te evalueren, of vereisen dure apparatuur en complexe protocollen. Er zijn robuuste en eenvoudige methodologieën nodig om organoïde celdood en verstoorde interacties in darmorganoïden te kwantificeren. Het protocol dat we presenteren is een eenvoudige en goedkope benadering om enkelvoudige organoïde reacties op cytotoxische cytokines te meten, maar kan worden gebruikt voor elk type stimulus of perturbagen. We laten ook zien hoe we het Bliss-onafhankelijkheidssynergiemodel kunnen gebruiken om een coëfficiënt van perturbagen-interactie (CPI) te berekenen die cytotoxische cytokine-interacties beschrijft.
Protocol
Colonslijmvliesbiopten werden verzameld van patiënten met de ziekte van Crohn die routinematige colonoscopie ondergingen als onderdeel van de standaardbehandeling. Ethische goedkeuring voor het gebruik van weefselmonsters van patiënten en het genereren van colonorganoïdelijnen uit deze monsters werd verkregen van de Clinical Research Ethics Committee van de Cork Teaching Hospitals (CREC). Van alle patiënten werd schriftelijke geïnformeerde toestemming verkregen in overeenstemming met de Verklaring van Helsinki. Alle weefselkweekwerkzaamheden met biopsieën en colonoïden van de patiënt moeten worden uitgevoerd in een bioveiligheidskast volgens de BSL2-veiligheidsprotocollen. Zorg ervoor dat alle plastic slijtage steriel is voor gebruik. Zie de Materiaaltabel voor details met betrekking tot alle materialen, reagentia, instrumenten en software die in dit protocol worden gebruikt.
De protocollen die onze groep gebruikt voor crypte-isolatie en organoïdecultuur zijn aangepast van de gevestigde methoden 14,15,16 en zijn eerder gepubliceerd 9,10,17. Voor het volgende protocol werden colonoïden gekweekt met behulp van organoïde proliferatiemedia (tabel 1). Colonoïden gekweekt met behulp van organoïde proliferatiemedia zijn ongedifferentieerd en verrijkt voor colonstamcellen. Het primaire bestanddeel van organoïde proliferatiemedia is 50% L-WRN geconditioneerde media, die de intestinale stamcel-nichegroeifactoren Wnt-3A (W), R-spondine 3 (R) en Noggin (N)15 bevatten. Organoïde proliferatiemedia wordt bereid door L-WRN-geconditioneerde media en serumvrije media 1:1 te combineren, gevolgd door suppletie met nicotinamide en chemische remmers (tabel 1).
1. Isolatie van de crypte van de dikke darm en cultuur van de dikke darm
- Pre-incubeer een microtiterplaat met 48 putjes bij 37 °C, 5% CO2 gedurende minimaal 72 uur voordat u het met crypten bezaait.
OPMERKING: Het voorincuberen van de plaat versnelt de polymerisatie van het basaalmembraanextract (BME) tijdens het zaaien. - Ontdooi de BME op ijs bij 4 °C de avond voor de isolatie van de crypten.
- Verzamel de dikke darmbiopten in een monsterafnamebuisje met 15 ml biopsieafnamemedium (tabel 1) en bewaar bij 4 °C tot ze klaar zijn voor verwerking.
- Verwijder voorzichtig zoveel mogelijk Biopsy Collection Medium met behulp van een pipet. Was de biopsieën door 15 ml ijskoude DPBS aangevuld met 2,5 μg/ml amfotericine B en 100 μg/ml gentamicine toe te voegen aan het monsterbuisje. Schud het monsterbuisje krachtig om slijm of vuil van de biopsieën te scheiden. Laat de biopsieën door de zwaartekracht bezinken en verwijder voorzichtig zoveel mogelijk DPBS met behulp van een pipet.
- Herhaal de wasprocedure uit stap 1.4 twee keer (2x).
- Voeg 10 ml enzymvrije celdissociatiereagens aangevuld met 2,5 μg/ml amfotericine B en 200 μg/ml gentamicine toe aan het monsterbuisje en incubeer gedurende 15 minuten bij kamertemperatuur met schommelen op 30 rpm.
- Schud na de incubatie de monsterbuis krachtig heen en weer met de hand om de darmcrypten los te maken. Inspecteer de buis met een microscoop met laag vermogen en zoek naar de vrijgekomen crypten en cryptefragmenten in suspensie. Als het niet zichtbaar is, schud dan de tube en controleer opnieuw; Herhaal dit totdat de crypten in suspensie worden gezien.
- Sluit een celzeef van 70 μm aan op een buisje van 50 ml en filtreer de cryptsuspensie door de zeef. Voeg 10 ml ijskoud organoïde wasmiddel (tabel 1) toe aan het lege monsterbuisje, verwijder het medium en haal het door de celzeef.
- Breng de gefilterde crypten over in twee buisjes van 15 ml (10 ml per buisje) en centrifugeer bij 4 °C gedurende 5 minuten bij 150 × g.
- Verwijder het supernatans voorzichtig uit elke tube van 15 ml, resuspendeer de cryptepellets in 500 μl ijskoude organoïde wasmedia, breng de crypteoplossing over van beide buisjes van 15 ml naar een enkele microcentrifugebuis van 1,5 ml en centrifugeer bij 4 °C gedurende 3 minuten bij 400 × g.
- Verwijder het supernatans voorzichtig uit de microcentrifugebuis en resuspendeer de cryptekorrel in 70 μL BME (20 μL per putje en 10 μL extra dood volume).
- Gebruik de voorgeïncubeerde plaat met 48 putjes (stap 1.1) om 20 μL BME/cryptussuspensie in het midden van elk putje te zaaien (1 BME-koepel per putje). Keer de plaat soepel en gestaag om en incubeer bij 37 °C, 5% CO2 gedurende 20 min.
OPMERKING: Het omkeren van de plaat voorkomt dat cellen zich hechten aan het plastic oppervlak van de put en zorgt voor hun verdeling binnen de BME. - Haal de plaat uit de couveuse. Zorg ervoor dat de BME volledig is gepolymeriseerd en bedek de koepels vervolgens met 350 μL voorverwarmde organoïde proliferatiemedia aangevuld met 100 μg/ml van een breed antimicrobieel reagens. Incubeer de plaat bij 37 °C, 5% CO2.
OPMERKING: Het antimicrobiële reagens met een breed scala is bedoeld om besmetting door mucosale microben die verband houden met de colonbiopsieën te voorkomen. Het is alleen nodig voor de eerste week van de cultuur na isolatie van de crypte. - Vervang de media 2-3x per week met behulp van voorverwarmde organoïde proliferatiemedia, aangevuld met het brede antimicrobiële reagens voor de eerste week van de kweek; Verwijder na deze periode het reagens.
- Zodra de colonoïdcultuur volledig is gevestigd (1-2 weken na isolatie), dissocieert u de colonoïden met behulp van het enzymatische dissociatiereagens aangevuld met 10 μM van de ROCK-I/II-remmer Y-27632 (zie rubriek 2 voor volledige details over colonoïde dissociatie).
OPMERKING: Voor de eerste twee passages (P0-1, P1-2) moeten colonoïden worden uitgebreid met een verhouding van 1:1/2; na P2 kunnen colonoïden worden gepasseerd met een verhouding van 1:3/4. - Zaai en onderhoud de colonoïden volgens de stappen 1.11-1.13 (vul Organoid Proliferation Media niet aan met het brede antimicrobiële reagens).
2. Bereiding van colonoïden voor celdoodtest
OPMERKING: Het protocol voor de celdoodtest duurt 4 dagen om te voltooien (Figuur 1A).
- Breid de colonoïden uit met behulp van een plaatformaat met 48 putjes, zaai 20 μL BME/cryptsuspensie per putje, incubeer bij 37 °C, 5% CO2 en vervang het medium 2-3x per week (350 μL per putje).
- Passage de colonoïden ongeveer 1 week voor het oogsten voor de celdoodtest. Voordat u de colonoïden oogst, moet u ervoor zorgen dat ze worden vermeerderd tot een hoge dichtheid (Figuur 1Bi), dat ze een diameter van ongeveer 25-50 μm hebben en actief prolifereren.
OPMERKING: We hebben colonoïden gebruikt voor deze test van doorgang 3 tot doorgang 14 met consistente resultaten. Het is echter aangetoond dat de transcriptionele respons van colonoïden op cytokines kan veranderen afhankelijk van de duur van de kweek18. Op basis hiervan raden we aan om na passage 15 geen colonoïden meer te gebruiken voor deze test. - Pre-incubeer microtiterplaten met 96 putjes bij 37 °C, 5% CO2 gedurende minimaal 72 uur voordat ze met colonoïde cellen worden gezaaid.
- Ontdooi de BME de avond voor aanvang van het experiment op ijs bij 4 °C.
- Bereid een voldoende volume van het enzymatische dissociatiereagens (500 μL per putje colonoïden) door suppletie met 10 μM van de ROCK-I/II-remmer Y-27632. Verwijder voorzichtig het medium uit de putjes die colonoïden bevatten; pipet vanaf de rand van de put om beschadiging van de colonoïde koepel te voorkomen. Voeg 300 μL enzymatisch dissociatiereagens toe aan elk putje.
- Breek voor elk putje de colonoïde koepel uit elkaar door met de punt van een P1000-pipet over het oppervlak van het putje te schrapen en de celsuspensie op en neer te pipetteren; Probeer te voorkomen dat er luchtbellen ontstaan. Vang de celsuspensie op in een buisje van 15 ml.
OPMERKING: Deze buis van 15 ml zal worden gebruikt om colonoïden te verzamelen uit 10 putjes van de plaat met 48 putjes. - Was hetzelfde putje met nog eens 200 μL van het enzymatische dissociatiereagens om ervoor te zorgen dat al het colonoïde materiaal wordt verzameld en overgebracht naar hetzelfde buisje van 15 ml. Herhaal dit proces voor elk putje met geëxpandeerde colonoïden dat wordt geoogst en verzamel ze in dezelfde enkele buis van 15 ml.
OPMERKING: Voor een efficiënte dissociatie mogen maximaal 10 putjes colonoïden per buisje worden verzameld. Als u >10 putjes verzamelt, verdeel de verzamelde colonoïden dan gelijkmatig over meerdere buisjes van 15 ml.
- Breek voor elk putje de colonoïde koepel uit elkaar door met de punt van een P1000-pipet over het oppervlak van het putje te schrapen en de celsuspensie op en neer te pipetteren; Probeer te voorkomen dat er luchtbellen ontstaan. Vang de celsuspensie op in een buisje van 15 ml.
- Incubeer de 15 ml tube met verzamelde colonoïden uit stap 2.5.2 in een waterbad bij 37 °C gedurende 5 min. Centrifugeer de buis na de incubatie gedurende 3 minuten bij 400 × g. Verwijder het supernatant voorzichtig en laat ongeveer 1,2 ml achter in de buis.
OPMERKING: De volgende stap vereist de fysieke dissociatie van colonoïden met behulp van snel pipetteren. Om dit effectief te laten zijn, moet u een kleine hoeveelheid celsuspensie in de buis hebben - de 1,2 ml die nog in de buis van 15 ml zit, is voldoende voor dit doel. - Resuspendeer de colonoïde pellet in de resterende 1,2 ml van het enzymatische dissociatiereagens. Gebruik een P1000-pipet die is ingesteld op 1.000 μl, plaats de punt van de pipet in de suspensie, houd deze net boven de bodem van de buis van 15 ml, en pipetteer de suspensie vervolgens snel in en uit de tip. Om snel te pipetten, drukt u de zuigerknop snel in tot de eerste stop, laat u de knop los tot deze ongeveer halverwege de bovenste positie is en herhaalt u. Pipeteer snel gedurende ongeveer 10 s (30-40 depressies), repsureer de suspensie vervolgens volledig en herhaal het pipetteren. Voer 2-3 rondes snel pipetteren uit.
- Controleer het monster onder de microscoop om er zeker van te zijn dat er geen hele colonoïden meer over zijn en dat de meeste colonoïde fragmenten ongeveer 30-40 μm groot zijn (Figuur 1Bii).
- Als het monster verder moet worden ontleed, incubeer het dan nog 3 minuten in het waterbad bij 37 °C, herhaal de pipetteertechniek in stap 2.7 en controleer het monster onder de microscoop. Herhaal dit proces totdat de meerderheid van de colonoïde fragmenten de optimale grootte heeft.
OPMERKING: Pas op dat u de colonoïden niet te veel dissocieert, omdat dit zal resulteren in overmatige celdood, lage plating-efficiëntie en ondermaatse colonoïden. - Voeg 10 ml ijskoud organoïde wasmiddel (tabel 1) toe aan de tube van 15 ml. Centrifugeer de buis gedurende 3 minuten op 400 × g, verwijder het supernatant, resuspendeer in 1 ml ijskoude Organoid Wash Media en breng over naar een microcentrifugebuis van 1,5 ml (de zogenaamde colonoïde fragmentbuis).
- Meng de inhoud van de buis met colonoïde fragmenten door te pipetteren en neem een monster van 50 μl; breng dit monster van 50 μl over in een nieuwe microcentrifugebuis van 1,5 ml (ook wel de celgetalbuis genoemd). Bewaar de buis van het colonoïde fragment vanaf dit punt op ijs tot de voltooiing van stap 2.15.
- Centrifugeer de celgetalbuis gedurende 3 minuten bij 400 × g, verwijder het supernatant en resuspendeer in 500 μL enzymatisch dissociatiereagens aangevuld met 10 μM van de ROCK-I/II-remmer Y-27632.
- Incubeer de buis met een celgetal gedurende 5 minuten in het waterbad bij 37 °C. Gebruik een P1000-pipet die is ingesteld op 400 μl om het monster te pipetteren zoals beschreven in stap 2.7 en controleer het monster onder de microscoop om er zeker van te zijn dat er een eencellige suspensie is. Als dit niet het geval is, herhaalt u dit proces totdat de colonoïden volledig zijn gedissocieerd tot een eencellige suspensie.
- Voeg 1 ml organoïde wasmedia toe aan de buis met een celgetal, centrifugeer gedurende 3 minuten op 400 × g en verwijder voorzichtig het supernatant. Resuspendeer de cellen in 50 μL Organoid Wash Media en voeg vervolgens 50 μL trypanblauw toe.
- Tel de cellen met behulp van een hemocytometer. Bereken het aantal cellen in het monster van 50 μl en gebruik dit om de concentratie van cellen in de buis van het colonoïde fragment te berekenen.
- Bereken het volume celsuspensie dat nodig is voor het experiment waarbij 0,5 ×10 4 colonoïde cellen worden gezaaid per putje van een microtiterplaat met 96 putjes. Voeg ongeveer 15% extra toe aan dit berekende volume om rekening te houden met het dode volume. Breng dit totale volume over van de buis met colonoïde fragmenten (stap 2.11) naar een nieuwe microcentrifugebuis van 1,5 ml.
- Centrifugeer de nieuwe microcentrifugebuis van 1,5 ml met colonoïde fragmenten gedurende 3 minuten bij 400 × g, verwijder de supernatant en resuspendeer in BME (gebruik 10 μL BME per 0,5 ×10 4 cellen).
OPMERKING: Vanwege de fysische eigenschappen van de BME (hoge viscositeit, temperatuurafhankelijke polymerisatie) kan een aanzienlijke hoeveelheid materiaal verloren gaan door pipetteren (dood volume).
- Centrifugeer de nieuwe microcentrifugebuis van 1,5 ml met colonoïde fragmenten gedurende 3 minuten bij 400 × g, verwijder de supernatant en resuspendeer in BME (gebruik 10 μL BME per 0,5 ×10 4 cellen).
- Plaats de buis of het reservoir met de colonoïde/BME-suspensie op ijs in een steriele container in de bioveiligheidskast.
OPMERKING: Door de cellen tijdens het zaaien op ijs te houden, wordt voorkomen dat het celsubstraat voortijdig polymeriseert. - Gebruik een voorgeïncubeerde microtiterplaat met 96 putjes (uit stap 2.3) om 10 μl van de colonoïde/BME-oplossing per putje omgekeerd. Zorg ervoor dat u de punt net boven het oppervlak van de put plaatst en pipette in het midden om te voorkomen dat u de wand van de put raakt. Meng de colonoïde/BME-suspensie regelmatig om ongelijkmatig zaaien te voorkomen.
OPMERKING: Zaai geen colonoïden in de buitenste randputjes van de microtiterplaat.- Om de pipet om te keren:
- Stel de pipet in en druk vervolgens de plunjerknop voorbij de eerste stop naar de tweede stop.
- Houd deze positie vast, dompel de punt onder in de colonoïde/BME-suspensie en laat de zuiger langzaam naar boven los.
- Geef de suspensie af door de plunjerknop voorzichtig en gestaag tot aan de eerste aanslag in te drukken. Als u meer putjes zaait, houd deze positie dan vast en herhaal de stappen 2.18.1.2-2.18.1.3.
- Als u klaar bent, verwijdert u de kleine hoeveelheid resterende suspensie door de plunjerknop tot aan de tweede stop te drukken.
OPMERKING: We raden aan om de omgekeerde pipetteertechniek te gebruiken vanwege de hoge viscositeit van de BME.
- Om de pipet om te keren:
- Keer de plaat soepel en gestaag om en incubeer bij 37 °C, 5% CO2 gedurende 20 min.
- Haal de plaat uit de couveuse. Zorg ervoor dat de BME volledig is gepolymeriseerd en bedek vervolgens de koepels met 200 μL voorverwarmde organoïde proliferatiemedia. Als u een microtiterplaat met 96 putjes gebruikt met een omringende slotgracht (die verdamping vermindert), vul dan elk reservoir met 2 ml Organoid Wash Media.
- Incubeer de colonoïden gedurende 3 dagen bij 37 °C, 5% CO2 en inspecteer eenmaal per dag microscopisch om er zeker van te zijn dat de colonoïden zijn hersteld en zich vermenigvuldigen.
3. Coloïde behandelingen voor celdoodtest
- Bereid een 2,5 μM-oplossing van fluorescerende celdoodkleurstof (SYTOX Green Nucleic Acid Stain) en DMSO-oplossing door fluorescerende celdoodkleurstof of DMSO toe te voegen aan voorverwarmde organoïde proliferatiemedia (tabel 2).
OPMERKING: Bescherm de fluorescerende celdood, de kleurstof en de verdunde oplossing tegen licht. SYTOX Groene Nucleïnezuurkleuring is opgelost in DMSO; de DMSO-oplossing wordt gebruikt om de No Dye-conditie voor te bereiden om te controleren op oplosmiddeleffecten. - Gebruik de 2,5 μM-oplossing van fluorescerende celdoodkleurstof en DMSO-oplossing uit stap 3.1 om behandelingen voor te bereiden zoals weergegeven in tabel 2.
- Verwijder het medium voorzichtig van de met colonoïden bezaaide microtiterplaat met 96 putjes door de plaat te kantelen en vanaf de rand van de putjes te pipetteren; voeg vervolgens 200 μL behandelingsmedium per putje toe. Zorg ervoor dat u extra PBS/BSA-controleputten heeft voor de Max Toxiciteitstoestand(en) (zie Tabel 2 voor de plaatkaart).
- Incubeer de colonoïden bij 37 °C, 5% CO2 voor de vereiste behandelingstijdstippen tot ze klaar zijn voor beeldvorming.
- Bereid ten minste 2 uur voor de beeldvorming een 10% v/v-oplossing van Triton-X 100 in steriel water van celcultuurkwaliteit en voeg 22 μl van de 10% Triton-X 100 rechtstreeks toe aan het medium van de controleputjes voor de maximale toxiciteitstoestand(en) tot een eindconcentratie van 1% v/v 1 uur vóór de beeldvorming.
OPMERKING: Het gebruik van een 10%-oplossing vermindert pipetteerfouten die kunnen optreden als gevolg van de hoge viscositeit van de oppervlakteactieve stof.
4. Acquisitie van afbeeldingen
- Verwijder de microtiterplaat met 96 putjes bezaaid met colonoïden uit de incubator en breng deze over naar de tafel van een digitale omgekeerde epifluorescentiemicroscoop. Laat de plaat op kamertemperatuur komen.
- Bevestig dat de colonoïden van de Max Toxiciteit-conditie volledig zijn gelyseerd door ze onder de microscoop te onderzoeken (Figuur 1Biii).
- Kies een geschikt objectief, zoals een 40x fluorescentieobjectief met een lange werkafstand. Optimaliseer de beeldvormingsinstellingen van de microscoop voordat u begint.
- Gebruik het transmissiekanaal om je te concentreren op een colonoïde met SYTOX-positieve cellen, schakel over op het Groene Fluorescerende Eiwit (GFP)
kanaal (488 nm) en pas de lichtintensiteit en belichtingstijd aan om het fluorescerende signaal te maximaliseren en de achtergrond te minimaliseren. Probeer eerst een lage lichtintensiteit en verhoog vervolgens geleidelijk de belichtingstijd; Als de belichtingsduur onpraktisch is, verhoog dan de lichtintensiteit iets.
OPMERKING: Door de belichtingstijd te verhogen in plaats van de lichtintensiteit, wordt de fototoxiciteit en het fotobleken van de monsters verminderd19. Stel de monsters alleen bloot aan fluorescerend licht als dat nodig is.
- Gebruik het transmissiekanaal om je te concentreren op een colonoïde met SYTOX-positieve cellen, schakel over op het Groene Fluorescerende Eiwit (GFP)
- Gebruik de geoptimaliseerde beeldvormingsinstellingen voor het GFP-kanaal om de omstandigheden Geen kleurstof en maximale toxiciteit in acht te nemen om ervoor te zorgen dat de monsters niet over- of onderbelicht zijn. Eenmaal voltooid, houdt u de beeldvormingsinstellingen consistent onder alle omstandigheden.
- Verkrijg afbeeldingen met behulp van een willekeurige steekproefbenadering: doe dit door gezichtsvelden (FOV's) te selecteren die een vast rasterpatroon volgen dat de colonoïde koepel bedekt. Verkrijg afbeeldingen van colonoïden van minimaal 10 FOV's. Zorg ervoor dat het centrale vlak van de colonoïde scherp is en verkrijg beelden in zowel transmissie- als GFP-kanalen.
- Pas de volgende uitsluitingscriteria toe.
- Maak geen afbeeldingen als er geen colonoïden in het gezichtsveld aanwezig zijn.
- Maak geen foto's als er alleen colonoïden zijn die elkaar overlappen in hetzelfde brandpuntsvlak in het gezichtsveld (Figuur 1Biv).
- Maak geen afbeeldingen als er alleen colonoïde puin in het gezichtsveld aanwezig is (Figuur 1Bv). Neem geen colonoïde puin op in de analyse.
- Pas de volgende uitsluitingscriteria toe.
- Sla afbeeldingen op in een draagbaar grafisch netwerkformaat en exporteer.
- Als u extra tijdstippen in beeld brengt, plaatst u de microtiterplaat met 96 putjes en colonoïden terug in de incubator bij 37 °C, 5% CO2.
5. Analyse van het beeld
- Open Fiji ImageJ en importeer de afbeeldingsgegevensset door de bestanden naar de ImageJ-werkbalk te slepen en neer te zetten of naar Bestand | Open en selecteer de bestanden. Eenmaal geopend, combineert u de bestanden tot een afbeeldingsstapel door te klikken op Afbeelding| Stapels| Afbeeldingen om te stapelen. Converteer de afbeeldingsstapel naar een 8-bits bestandsindeling door te klikken op Afbeelding| Soort| 8 -bits.
- Klik voor elke afbeeldingsset op de ImageJ-werkbalk op de ImageJ-werkbalk en selecteer handmatig het interessegebied (ROI) op de transmissieafbeelding met de computermuis; de ROI is de omtrek van de colonoïde. Schakel vervolgens door de afbeeldingsstapel naar de bijbehorende GFP-kanaalafbeelding.
- Klik op Analyseren| Metingen instellen; vink in het dialoogvenster Afmetingen instellen de optie Gemiddelde grijswaarde aan en laat alle andere vakjes uitgeschakeld. Selecteer de GFP-afbeelding en klik op Analyseren | Maatregel. Herhaal deze analyse voor elke colonoïde in de afbeeldingsstapel. Zodra de gegevensset is geanalyseerd, kopieert u alle gegevens in het venster Resultaten en plakt u ze in een spreadsheetsoftwaretoepassing.
6. Berekening van de maximale toxiciteit in %
- Bereken het gemiddelde van de technisch gerepliceerde gemiddelde grijze waarden (MGV) voor elke voorwaarde met behulp van vergelijking (1).
 (gemiddelde van de behandeling a) =
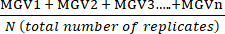 (1)
- Druk het gemiddelde van elke aandoening uit als een percentage ten opzichte van het gemiddelde van de maximale toxiciteitstoestand (MT) met behulp van vergelijking (2).
%MTa = (2)
7. Berekening van de CPI
- Normaliseer (NORM) de gegevens als volgt, met behulp van de gemiddelde waarden berekend in stap 6.1, trek het gemiddelde van de onbehandelde aandoening (UT) af van elke behandelingsconditie en de maximale toxiciteit (MT) conditie (om de achtergrondceldood te verwijderen die onafhankelijk van cytokinebehandeling optreedt). Deel vervolgens elke behandelingsconditie door het achtergrond-afgetrokken gemiddelde van de Max Toxiciteit (MT)-conditie zoals weergegeven in vergelijking (3).
NORMa = (3)
- Trek de in stap 7.1 berekende genormaliseerde waarden af van 1; de resulterende waarden vertegenwoordigen de levensvatbaarheid van de cel (V) na behandeling (zoals in vergelijking (4) hieronder).
Va = 1 −NORMa (4) - Bereken de coëfficiënt van perturbagen-interactie (CPI) met behulp van vergelijking (5):
CPI = (5)
Waarbij a de eerste behandeling aangeeft; b geeft de tweede behandeling aan; En AB is de combinatiebehandeling. CPI-waarden geven synergetische (<1), additieve (=1) of antagonistische (>1) relaties aan.
Resultaten
Met behulp van dit protocol hebben we aangetoond hoe colonoïden van CD-patiënten kunnen worden gebruikt om de cytotoxische effecten van de IBD-relevante cytokines IFN-γ en TNF-α op het primaire epitheel te bestuderen. We gebruikten een in de handel verkrijgbare fluorescerende celdoodkleurstof (SYTOX Green Nucleic Acid Stain), die alleen cellen kan binnendringen die een gecompromitteerd celmembraan hebben, waar het vervolgens wordt geactiveerd door binding aan nucleïnezuren. We behandelden colonoïden samen met cytokines en de fluorescerende celdoodkleurstof en voerden live celbeeldvorming uit op 8 uur en 24 uur met een omgekeerde epifluorescentiemicroscoop. Representatieve transmissie-/fluorescerende overlay-beelden na 8 uur geven aan dat alleen de met IFN-γ + TNF-α behandelde colonoïden positief zijn voor fluorescerend signaal; er is echter slechts een klein aantal fluorescerende cellen (Figuur 2A). Celblebbing, een morfologische indicator van celdood20, kan ook worden waargenomen bij de toestand IFN-γ + TNF-α. Na 24 uur vertonen colonoïden die zijn behandeld met IFN-γ + TNF-α grote gebieden die positief zijn voor een fluorescerend signaal (Figuur 2A). Er is ook een duidelijke breuk in de morfologie van de colonoïde - het centrale lumen is niet langer zichtbaar en de epitheelbarrière is volledig verstoord.
Om het kleurstofsignaal van de celdood te kwantificeren, gebruikten we open-source beeldanalysesoftware om de fluorescerende intensiteit van elke colonoïde te berekenen. Vervolgens hebben we de gegevens genormaliseerd door het gemiddelde van elke aandoening uit te drukken als een percentage van de Max Toxiciteit-behandeling. Na 8 uur was de homeostatische of achtergrondceldood in de BSA-controlecolonoïden relatief laag (7,7% van de maximale toxiciteit) (Figuur 2B). Er waren op dit moment geen statistisch significante veranderingen in celdoodniveaus; aandoeningen die met TNF-α werden behandeld, vertoonden echter een kleine toename van de cytotoxiciteit (Figuur 2B). Na 24 uur waren de celdoodniveaus verhoogd voor alle met cytokines behandelde aandoeningen. Er was echter een minimale verandering in celdood voor de BSA-controleconditie tussen tijdstippen (7,5% van de maximale toxiciteit na 24 uur). De colonoïden behandeld met IFN-γ + TNF-α hadden de grootste toename van celdoodniveaus in vergelijking met BSA-controle (29,4% van de maximale toxiciteit). Het verschil in celdoodniveaus tussen de gecombineerde behandeling en de enkelvoudige cytokinebehandelingen (IFN-γ, TNF-α) was zeer significant. Deze resultaten suggereren de mogelijkheid van een cytotoxische synergetische interactie tussen IFN-γ en TNF-α na 24 uur.
We gebruikten de CPI om de cytotoxische interacties tussen cytokinebehandelingen te kwantificeren en om te bepalen of ze synergetisch waren. Interacties tussen cytokinen worden als synergetisch beschouwd wanneer de CPI-waarde <1 is, additief wanneer =1 of antagonistisch wanneer >1. We berekenden CPI-waarden per tijdstip (Figuur 2C). Na 8 uur vertoonde de CPI-waarde een lichte synergie (0,99), terwijl de CPI-waarde na 24 uur aanzienlijk daalde (0,83). Deze analyse bevestigde dat de interactie tussen IFN-γ en TNF-α na 24 uur synergetisch was. Verder illustreert het hoe synergisme tussen IFN-γ en TNF-α in deze context tijdsafhankelijk is.

Figuur 1: Schema van de experimentele workflow en probleemoplossing. (A) Schematisch overzicht van het protocol. (B) Representatieve afbeeldingen. (BI) Lichtmicroscopiebeeld dat de optimale dichtheid van de cultuur en de optimale grootte van colonoïden illustreert voordat ze worden gepasseerd voor een test. Schaalbalk = 500 μm. (Bii) Lichtmicroscopiebeeld dat de optimale grootte van colonoïde fragmenten na dissociatie illustreert; Fragmenten rood gemarkeerd. Schaalbalk = 100 μm. (Biii) Lichtmicroscopiebeeld van necrotische colonoïde morfologie na MT-behandeling (met Triton X-100). Schaalbalk = 25 μm. (Biv) Lichtmicroscopiebeeld van twee colonoïden die elkaar overlappen in hetzelfde brandpuntsvlak. Schaalbalk = 25 μm. (Bv) Lichtmicroscopiebeeld van colonoïde celresten aanwezig na passaging; puin rood gemarkeerd. Schaal balk = 25 μm. Afkortingen: ROI = regio van belang; MFI = gemiddelde fluorescentie-intensiteit; MT = Maximale toxiciteit. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 2: Kwantitatieve analyse van cytokine-geïnduceerde celdood in menselijke CD-colonoïden. (A) Representatieve live microscopiebeelden van CD-colonoïden behandeld met SYTOX Groene Nucleïnezuurkleuring (fluorescerende celdoodkleurstof) en cytokinen na 8 uur en 24 uur; transmissie- en GFP-kanalen (groene kleur) over elkaar heen gelegd. Colonoïden werden als volgt behandeld: 1) PBS/BSA, 2) 10 ng/ml IFN-γ, 3) 10 ng/ml TNF-α, 4) 10 ng/ml IFN-γ + 10 ng/ml TNF-α. Schaalbalken = 25 μm. (B) Kwantitatieve analyse van CD-colonoïden behandeld met de fluorescerende celdoodkleurstof en cytokines na 8 en 24 uur; de gegevens worden uitgedrukt als een % van de MT-toestand. N = 2 CD-colonoïde lijnen, 11-16 colonoïden afgebeeld per aandoening. (C) CPI berekend per tijdstip met behulp van de dataset van B, N = 2 CD-colonoïde lijnen. Gegevens worden uitgedrukt als middelen ± SE. In B werd een tweezijdige ANOVA-analyse uitgevoerd, gevolgd door Bonferroni-posttests, *P < 0,05, ***P < 0,001 zoals aangegeven. Afkortingen: CD = ziekte van Crohn; GFP = groen fluorescerend eiwit; CPI = coëfficiënt van perturbagen interactie; PBS = fosfaatgebufferde zoutoplossing; BSA = runderserumalbumine; TNF-α = tumornecrosefactor-alfa; IFN-γ = interferon-gamma; MT = Maximale toxiciteit. Klik hier om een grotere versie van deze figuur te bekijken.
Tabel 1: Samenstelling van de cultuurmedia voor het protocol. Om Organoid Proliferation Media te bereiden, combineert u L-WRN geconditioneerde media en Serumvrije Media 1:1 en voegt u vervolgens supplementen toe. Organoïde proliferatiemedia moeten binnen 2 weken na bereiding worden gebruikt. Houd er rekening mee dat alle volledige media moeten worden bewaard bij 4 °C. Klik hier om deze tabel te downloaden.
Tabel 2: Experimentele plaatlay-out met 96 putjes en cytokinebehandelingen. Klik hier om deze tabel te downloaden.
Discussie
Er zijn verschillende methoden ontwikkeld voor kwantitatieve analyses van celdood in darmorganoïden. Het onderzoeken van de verstoring van de morfologie van intestinale organoïden door lichtmicroscopie is een eenvoudige benadering om de effecten van cytotoxische stoffen te kwantificeren11. Morfologische veranderingen zijn echter geen directe meting van celdood en de methode is slechts semi-kwantitatief. Een andere methode is het evalueren van de metabolische activiteit van organoïden met behulp van een MTT- of ATP-test10,11. Het is belangrijk op te merken dat deze tests alleen veranderingen in de levensvatbaarheid van cellen kunnen bepalen en moeten worden gevalideerd met een celdoodtest. Andere fluorometrische celdoodtesten met behulp van DNA-bindende kleurstoffen zijn gerapporteerd12,13. Een niet-beeldvormende benadering met behulp van een fluorescerende microplaatlezer is mogelijk en maakt een hoge doorvoer mogelijk12. Deze methode meet echter het gemiddelde signaal van een hele put, waardoor deze ongeschikt is voor heterogene populaties. Het vereist ook het gebruik van een microplaatlezer met Z-hoogteverstelling. Op fluorescerende beeldvorming gebaseerde technieken kunnen worden gebruikt voor analyse van één organoïde en het vastleggen van cellulaire/subcellulaire en morfologische gegevens. Geautomatiseerde confocale high-content imaging (HCI)-systemen kunnen grote hoeveelheden gegevens genereren met een hoge doorvoer13. Helaas heeft confocale HCI gespecialiseerde apparatuur nodig, maakt het gebruik van complexe protocollen, vereist het doorgaans commerciële beeldanalysesoftware en is het duur.
Ons protocol voor kwantitatieve analyse van colonoïde celdood op meerdere tijdstippen is rechttoe rechtaan, eenvoudig en goedkoop. In vergelijking met geautomatiseerde HCI- en plaatlezersystemen is het echter tijdrovend en heeft het een verminderde doorvoer. Een andere beperking van onze methode is het gebruik van breedveldmicroscopie in tegenstelling tot confocale microscopie. Confocale microscopie is meer geschikt voor het afbeelden van dikke 3D-monsters zoals organoïden, omdat het een onscherp signaal vermindert en seriële optische secties (Z-stacks) kan verkrijgen. Confocale beeldvorming vereist echter doorgaans langere acquisitietijden en lasers met hoge intensiteit die de fototoxiciteit/fotobleking verhogen. Het is van cruciaal belang op te merken dat fluorescerende celdoodkleurstoffen zoals SYTOX Green alleen geschikt zijn voor het meten van vormen van celdood waarbij de integriteit van het celmembraan verloren gaat, zoals necrose, late apoptose-geassocieerde secundaire necrose, necroptose en pyroptose21. Er zijn enkele vormen van gereguleerde celdood waarbij het celmembraan ondoordringbaar blijft, in ieder geval tijdens de vroege fasen van celdood, zoals caspase-afhankelijke apoptose. Dit protocol kan echter gemakkelijk worden gewijzigd om ook beeldvorming van een caspase 3/7 activiteit fluorescerende reporter22 op te nemen. Dit zou aanvullende gegevens opleveren om de specifieke celdoodmodaliteit te helpen karakteriseren.
We gebruikten ons protocol om de cytotoxische synergetische interactie tussen de cytokines IFN-γ en TNF-α aan te tonen (Figuur 2C), die we eerder hebben gerapporteerd in van CD-patiënten afgeleide organoïden 9,10. De fysiologische relevantie van deze vorm van synergisme is ook aangetoond in muizenmodellen van hemofagocytaire lymfohistiocytose en sepsis23. Er zijn verschillende wiskundige referentiemodellen en benaderingen geïmplementeerd voor het kwantificeren van synergie tussen combinaties van biologische agentia24,25. Ze verschillen in termen van hun complexiteit, het aantal factoren waarmee ze rekening houden en de drempel om een interactie als synergetisch te beschouwen24,25. Sommige modellen vereisen voorkennis van de geteste biologische agentia, maken bepaalde aannames over de activiteit van agentia en kunnen uitgebreide dosis-responscurves vereisen voor elke afzonderlijke en combinatiebehandeling25. De methode die we hebben gekozen om synergie te meten, is een wijziging van het CDI-model (Coëfficiënt van geneesmiddelinteractie), dat eerder is gebruikt om de remmende effecten van combinaties van chemotherapie op de proliferatie van kankercellijnen te meten26. Het CDI is een Bliss-onafhankelijkheidsmodel; bij het berekenen van het voorspelde gecombineerde effect van twee perturbagens gaat Bliss independence ervan uit dat ze zich richten op afzonderlijke paden en onafhankelijke werkingsmechanismen hebben27. Om een interactie tussen perturbagens synergetisch te laten zijn, moet het werkelijke gecombineerde effect groter zijn dan het voorspelde effect. Dit model is geschikt voor onze experimentele opzet, aangezien bekend is dat IFN-γ en TNF-α verschillende receptoren en stroomafwaartse signaalcomponenten hebben. Verder maakt Bliss-onafhankelijkheid het mogelijk om een interactiecoëfficiënt te berekenen om synergisme te kwantificeren en vereist het geen dosis-responsdatasets.
Er zijn een paar belangrijke factoren waarmee rekening moet worden gehouden om optimale resultaten voor dit protocol te garanderen. Het is belangrijk dat colonoïden worden vermeerderd tot een hoge dichtheid (Figuur 1Bi), dat ze een diameter van ongeveer 25-50 μm hebben en actief prolifereren voordat ze proberen cellen te zaaien. Het gebruik van suboptimale culturen van colonoïden voor tests kan resulteren in onvoldoende celaantallen, laag colonoïdherstel en inconsistente experimenten. Voor reproduceerbare resultaten is het ook belangrijk om de dichtheid van colonoïden consistent te zaaien tussen experimenten. Het is eerder aangetoond dat de in vitro respons op inflammatoire cytokines kan worden beïnvloed door de dichtheid van celzaaien28,29. Een ander veelvoorkomend probleem is de vorming van luchtbellen in de BME-koepel, die de beeldvorming kunnen beïnvloeden. Dit kan worden voorkomen door gebruik te maken van de omgekeerde pipetteertechniek. Deze techniek resulteert ook in een consistenter zaaien.
Verder, als u meerdere tijdstippen in beeld brengt, bereidt u voor elk tijdstip een maximale toxiciteitsvoorwaarde voor. Triton-X 100, een niet-ionogene oppervlakteactieve stof, wordt vaak gebruikt als positieve controle (Max Toxiciteitsvoorwaarde) voor cytotoxiciteitstests. De toevoeging van Triton-X 100 lyseert en doodt de colonoïden, waardoor de fluorescerende celdoodkleurstof de cellen kan binnendringen. Het gebruik van een maximale toxiciteitsvoorwaarde van een eerder tijdstip zal resulteren in een onnauwkeurige en inconsistente normalisatie van gegevens omdat het fluorescerende signaal in de loop van de tijd vervalt.
Een laatste punt om te overwegen is de keuze van BME die wordt gebruikt voor colonoïde cultuur. Er zijn verschillende commerciële producenten van BME; voor ons protocol hebben we echter alleen het merk getest dat is opgenomen in de materiaaltabel. Een recente studie met behulp van van patiënten afkomstige organoïden van alvleesklierkanker wees uit dat de commerciële bron van BME de celproliferatiesnelheden veranderde, maar geen significant effect had op de respons op chemotherapiemedicijnen of genexpressie30. Met dit in gedachten verwachten we dat de trend van resultaten vergelijkbaar zal zijn tussen BME-merken voor ons protocol, maar we raden aan om consequent hetzelfde merk te gebruiken.
We hebben aangetoond hoe dit protocol kan worden gebruikt voor de analyse van IFN-γ en TNF-α geïnduceerde celdood met behulp van van CD-patiënt afgeleide colonoïden. Van patiënten afgeleide darmorganoïden zijn een krachtig hulpmiddel om CD te bestuderen, omdat ze veel kenmerken van de ziekte behouden, waaronder een verhoogde gevoeligheid voor de cytotoxische effecten van TNF-α31. Het protocol kan echter gemakkelijk worden gewijzigd om cytotoxische effecten van andere perturbagens dan cytokines of andere ziektetoestanden dan IBD te onderzoeken, zoals colorectale kanker (we hebben het protocol met succes getest met behulp van niet-IBD-colonoïden). Wij zijn van mening dat deze methode nuttig is voor elk onderzoeksgebied dat zich bezighoudt met celdoodmechanismen, epitheliale barrièrefunctie of intestinale mucosale immunologie.
Openbaarmakingen
K.N. ontving onderzoeksfinanciering van AbbVie Inc. gedurende de tijd dat het werk werd voltooid. Deze financiering was in het kader van een prijs van een onderzoekscentrum (SFI-14/SP/2710) aan APC Microbiome Ireland.
Dankbetuigingen
De auteurs willen de patiënten bedanken voor hun geïnformeerde toestemming en deelname aan het onderzoek, en het klinisch personeel voor hun uitstekende hulp. Figuur 1A is gemaakt met BioRender.com. Dit werk werd ondersteund door subsidies van Science Foundation Ireland, namelijk een prijs voor loopbaanontwikkeling (CDA) aan K.N. (SFI-13/CDA/2171), een subsidie voor een onderzoekscentrum (SFI-12/RC/2273) en een prijs voor een onderzoekscentrum (SFI-14/SP/2710) aan APC Microbiome Ireland. P.F. ontving ook financiering van SFI/20/RP/9007.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Advanced DMEM/F12 | Gibco | 12634010 | |
| Amphotericin B Solution | Sigma-Merck | A2942 | |
| A-83-01 | Sigma-Merck | SML0788 | |
| BioRender | Science Suite Inc. | N/A | Scientific illustration software |
| Bovine Serum Albumin | Sigma-Merck | A2058 | Essentially IgG-free, low endotoxin |
| B27 Supplement | Invitrogen | 17504-044 | |
| CHIR-99021 | Sigma-Merck | SML1046 | |
| Costar 48-well Clear TC-treated Multiple Well Plates, Individually Wrapped, Sterile | Corning | 3548 | |
| Cultrex Basement Membrane Extract, Type 2, Pathclear | R&D Systems | 3532-010-02 | Basement membrane extract |
| Dimethyl sulfoxide | Sigma-Merck | D2650 | |
| Dulbecco′s Phosphate Buffered Saline | Sigma-Merck | D8537 | |
| EVOS FL Digital Inverted Fluorescence Microscope | Invitrogen | AMF4300 | Digital inverted epifluorescence microscope |
| EVOS 40x Objective, fluorite, LWD, phase-contrast | ThermoFisher Scientific | AMEP4683 | Long working distance 40x fluorescence objective |
| Fiji/ImageJ (Windows version) | Open-source software | N/A | Image analysis software |
| Foetal Bovine Serum | Sigma-Merck | F9665 | |
| Gentamicin Solution | Sigma-Merck | G1397 | |
| Gentle Cell Dissociation Reagent | STEMCELL Technologies | 100-0485 | Enzyme-free cell dissociation reagent |
| GlutaMAX-1 | Gibco | 35050061 | L-alanyl-L-glutamine dipeptide supplement |
| GraphPad Prism 5 (Windows version) | Dotmatics | N/A | Data graphics and statistics software |
| Greiner 15 mL Polypropylene Centrifuge Tube, Sterile with conical bottom & Screw Cap | Cruinn | 188261CI | |
| HEPES 1 M | Gibco | 15630080 | |
| Human recombinant EGF (animal free) | Peprotech | AF-100-15 | |
| N-Acetylcysteine | Sigma-Merck | A9165 | |
| Nicotinamide | Sigma-Merck | N0636 | |
| Normocin | InvivoGen | ant-nr-05 | Broad range antimicrobial reagent |
| Nunc Edge 96-Well, Nunclon Delta-Treated, Flat-Bottom Microplate | ThermoFisher Scientific | 15543115 | |
| N2 supplement | Invitrogen | 17502-048 | |
| Recombinant Human IFN-gamma Protein | R&D Systems | 285-IF | Resuspend in sterile filtered 0.1% PBS/BSA |
| Recombinant Human TNF-alpha Protein | R&D Systems | 210-TA | Resuspend in sterile filtered 0.1% PBS/BSA |
| SB202190 | Sigma-Merck | S7067 | |
| Snap Cap Low Retention Microcentrifuge Tubes | ThermoFisher Scientific | 3451 | |
| SYTOX Green Nucleic Acid Stain - 5 mM Solution in DMSO | Invitrogen | S7020 | Fluorescent cell death dye, protect from light |
| Triton X-100 | Sigma-Merck | 93420 | |
| Trypan Blue solution | Sigma-Merck | T8154 | |
| Tryple Express | Gibco | 12604013 | Enzymatic dissociation reagent |
| Y-27632 | MedChemExpress | HY-10071 | Inhibitor of ROCK-I and ROCK-II |
Referenties
- Patankar, J. V., Becker, C. Cell death in the gut epithelium and implications for chronic inflammation. Nat Rev Gastroenterol Hepatol. 17 (9), 543-556 (2020).
- Zeissig, S., et al. Downregulation of epithelial apoptosis and barrier repair in active Crohn's disease by tumour necrosis factor alpha antibody treatment. Gut. 53 (9), 1295-1302 (2004).
- Bartee, E., Mcfadden, G. Cytokine synergy: An underappreciated contributor to innate anti-viral immunity. Cytokine. 63 (3), 237-240 (2013).
- Fish, S. M., Proujansky, R., Reenstra, W. W. Synergistic effects of interferon γ and tumour necrosis factor α on T84 cell function. Gut. 45 (2), 191-198 (1999).
- Wakisaka, Y., Sugimoto, S., Sato, T. Organoid medicine for Inflammatory Bowel Disease. Stem Cells. 40 (2), 123-132 (2022).
- Flood, P., Hanrahan, N., Nally, K., Melgar, S. Human intestinal organoids: Modeling gastrointestinal physiology and immunopathology - current applications and limitations. Eur J Immunol. 54 (2), e2250248(2024).
- Matsuzawa-Ishimoto, Y., et al. An intestinal organoid-based platform that recreates susceptibility to t-cell-mediated tissue injury. Blood. 135 (26), 2388-2401 (2020).
- Lee, C., et al. Intestinal epithelial responses to IL-17 in adult stem cell-derived human intestinal organoids. J Crohns Colitis. 16 (12), 1911-1923 (2022).
- Woznicki, J. A., et al. TNF-α synergises with IFN-γ to induce caspase-8-JAK1/2-STAT1-dependent death of intestinal epithelial cells. Cell Death Dis. 12 (10), 864(2021).
- Flood, P., et al. DNA sensor-associated type I interferon signaling is increased in ulcerative colitis and induces jak-dependent inflammatory cell death in colonic organoids. Am J Physiol Gastrointest Liver Physiol. 323 (5), G439-G460 (2022).
- Grabinger, T., et al. Ex vivo culture of intestinal crypt organoids as a model system for assessing cell death induction in intestinal epithelial cells and enteropathy. Cell Death Dis. 5 (5), e1228(2014).
- Bode, K. J., Mueller, S., Schweinlin, M., Metzger, M., Brunner, T. A fast and simple fluorometric method to detect cell death in 3D intestinal organoids. Biotechniques. 67 (1), 23-28 (2019).
- Mertens, S., et al. Drug-repurposing screen on patient-derived organoids identifies therapy-induced vulnerability in KRAS-mutant colon cancer. Cell Rep. 42 (4), 112324(2023).
- Vandussen, K. L., et al. Development of an enhanced human gastrointestinal epithelial culture system to facilitate patient-based assays. Gut. 64 (6), 911-920 (2015).
- Miyoshi, H., Stappenbeck, T. S. In vitro expansion and genetic modification of gastrointestinal stem cells in spheroid culture. Nat Protoc. 8 (12), 2471-2482 (2013).
- Sato, T., et al. Long-term expansion of epithelial organoids from human colon, adenoma, adenocarcinoma, and Barrett's epithelium. Gastroenterology. 141 (5), 1762-1772 (2011).
- Woznicki, J. A., et al. Human BCL-G regulates secretion of inflammatory chemokines but is dispensable for induction of apoptosis by IFN-γ and TNF-α in intestinal epithelial cells. Cell Death Dis. 11 (1), 68(2020).
- Edgar, R. D., et al. Culture-associated DNA methylation changes impact on cellular function of human intestinal organoids. Cell Mol Gastroenterol Hepatol. 14 (6), 1295-1310 (2022).
- Mubaid, F., Brown, C. M. Less is more: Longer exposure times with low light intensity is less photo-toxic. Microscopy Today. 25 (6), 26-35 (2017).
- Ziegler, U., Groscurth, P. Morphological features of cell death. News Physiol Sci. 19 (3), 124-128 (2004).
- Zhang, Y., Chen, X., Gueydan, C., Han, J. Plasma membrane changes during programmed cell deaths. Cell Res. 28 (1), 9-21 (2018).
- Tamura, H., et al. Evaluation of anticancer agents using patient-derived tumor organoids characteristically similar to source tissues. Oncol Rep. 40 (2), 635-646 (2018).
- Karki, R., et al. Synergism of TNF-α IFN-γ triggers inflammatory cell death, tissue damage, and mortality in SARS-CoV-2 infection and cytokine shock syndromes. Cell. 184 (1), 149-168 (2021).
- Geary, N. Understanding synergy. Am J Physiol Endocrinol Metab. 304 (3), E237-E253 (2013).
- Duarte, D., Vale, N. Evaluation of synergism in drug combinations and reference models for future orientations in oncology. Curr Res Pharmacol Drug Discov. 3, 100110(2022).
- Wong, F. C., Woo, C. C., Hsu, A., Tan, B. K. The anti-cancer activities of Vernonia amygdalina extract in human breast cancer cell lines are mediated through caspase-dependent and p53-independent pathways. PLoS One. 8 (10), e78021(2013).
- Ryall, K. A., Tan, A. C. Systems biology approaches for advancing the discovery of effective drug combinations. J Cheminform. 7, 7(2015).
- Sukho, P., et al. Effect of cell seeding density and inflammatory cytokines on adipose tissue-derived stem cells: An in vitro study. Stem Cell Rev Rep. 13 (2), 267-277 (2017).
- Vaughan-Jackson, A., et al. Density dependent regulation of inflammatory responses in macrophages. Front Immunol. 13, 895488(2022).
- Lumibao, J. C., et al. The impact of extracellular matrix on the precision medicine utility of pancreatic cancer patient-derived organoids. bioRxiv. , 10.1101/2023.01.26.525757 (2023).
- Lee, C., et al. TNF-α induces LGR5+ stem cell dysfunction in patients with Crohn's disease. Cell Mol Gastroenterol Hepatol. 13 (3), 789-808 (2022).
Herprints en machtigingen
