We onderzochten skeletspierweefsel in Bos indicus en gekruiste stieren om verschillen in vleeskwaliteitskenmerken te verklaren. De Warner-Bratzler-afschuifkracht (WBSF) bleek te variëren van 4,7 kg tot 4,2 kg. Myosine isovormen met zware ketens onthulden verschillen tussen dieren, en de myofibrilfragmentatie-index gaf meer inzicht in variaties in gevoeligheid (WBSF).
Methodenartikel
Onderzoek naar de Longissimus-spier: het ontrafelen van de correlatie met vleeskwaliteit bij Bos indicus en gekruiste stieren
In dit artikel
Samenvatting
Samenvatting
In deze studie werd spierweefsel bij Bos indicus en gekruiste stieren onderzocht om verschillen in vleeskwaliteitskenmerken te verklaren. Karkaseigenschappen, vleeskwaliteitsparameters en biochemisch en moleculair onderzoek van myofibrillaire eiwitten worden beschreven. Methoden voor het evalueren van pH, intramusculair vet (IMF), vleeskleur (L*, a*, b*), waterverliezen, malsheid en moleculair-biologische assays zijn geschetst. Specifieke procedures voor kalibratie, monstervoorbereiding en gegevensanalyse voor elke methode worden beschreven. Deze omvatten technieken zoals infraroodspectroscopie voor IMF-inhoud, objectieve tederheidsbeoordeling en elektroforetische scheiding van MyHC-isovormen.
Kleurparameters werden benadrukt als mogelijke hulpmiddelen voor het voorspellen van de malsheid van rundvlees, een cruciaal kwaliteitskenmerk dat van invloed is op consumentenbeslissingen. De studie maakte gebruik van de Warner-Bratzler-afschuifkrachtmethode (WBSF), waarbij waarden van 4,68 en 4,23 kg werden onthuld voor respectievelijk Nellore en Angus-Nellore (P < 0,01). Totale kookverliezen en biochemische analyses, waaronder de myofibrilfragmentatie-index (MFI), gaven inzicht in malsheidsvariaties. Spiervezeltypes, met name myosine heavy chain (MyHC) isovormen, werden onderzocht, met een opmerkelijke afwezigheid van MyHC-IIb-isovorm bij de bestudeerde Zebu-dieren. De relatie tussen MyHC-I en de malsheid van vlees onthulde uiteenlopende bevindingen in de literatuur, wat de complexiteit van deze associatie benadrukte. Over het algemeen biedt de studie uitgebreide inzichten in de factoren die van invloed zijn op de vleeskwaliteit van Bos indicus en gekruiste (Bos taurus × Bos indicus) stieren, wat waardevolle informatie biedt voor de rundvleesindustrie.
Inleiding
Brazilië heeft de grootste commerciële veestapel ter wereld, telt ongeveer 220 miljoen dieren en is de op een na grootste vleesproducent, met een opbrengst van meer dan 9 miljoen ton karkasequivalent per jaar1. De vleesveeproductiesector levert een aanzienlijke bijdrage aan het nationale landbouwsysteem, met een totale jaarlijkse omzet van meer dan R$ 55 miljard. Sinds 2004 is Brazilië een belangrijke speler in de wereldwijde vleeshandel en exporteert het naar meer dan 180 landen, wat neerkomt op ~50% van de wereldhandelin vlees 2.
De malsheid van vlees is het belangrijkste kwaliteitskenmerk dat van invloed is op de tevredenheid van de consument en de vleesconsumptie3. Door biochemische en objectieve methoden te gebruiken om de malsheid van vlees te meten, willen onderzoekers waardevolle inzichten verschaffen in factoren zoals diergenetica, verwerkingstechnieken en opslagomstandigheden, waardoor uiteindelijk de kwaliteit en consistentie van vleesproducten voor consumenten wordt verbeterd. Dergelijke informatie is nuttig omdat de malsheid van vlees steeds belangrijker is geworden in de besluitvorming van de consument tijdens aankopen. Bovendien biedt de beoordeling van de malsheid van vlees waardevolle informatie voor kwaliteitscontrole in de vleesproductie- en -verwerkende industrie. Door de malsheid consequent te monitoren, kunnen producenten ervoor zorgen dat vleesproducten voldoen aan de gewenste normen en specificaties. In deze context omarmen Braziliaanse vleesveehouders geleidelijk intensieve feedlot-systemen met gekruiste dieren om de kapitaalomzet te verbeteren. Dit systeem is goed voor ongeveer 10% ton karkas dat jaarlijks in Brazilië wordt geproduceerd 4,5.
De toenemende vraag van consumenten naar een betere vleeskwaliteit heeft vleesveehouders ertoe aangezet om te kruisen met Europese rassen, voornamelijk Aberdeen Angus6. Deze strategie is gericht op het produceren van F1 Angus-Nellore-hybriden, die bekend staan om hun superieure prestaties, gewenste karkaseigenschappen en verbeterde vleeskwaliteit in vergelijking met pure zeboe-dieren 7,8. In de tropische regio's van Brazilië is het gebruikelijk om niet-gecastreerde dieren (stieren) van gevorderde rijpheid te gebruiken bij het afmesten van boerderijen, waardoor de vleeskwaliteitskenmerken zoals kleur, marmering en malsheid in gevaar kunnen komen. Uit een onderzoek blijkt met name dat 95% van de dieren die in Braziliaanse feedlots zijn afgemaakt, mannetjes zijn, waarbij 73% Nellore is, gevolgd door 22% gekruiste dieren en 5% andere genotypen 9,10.
Inzicht in de biochemische mechanismen die ten grondslag liggen aan de malsheid van vlees is cruciaal voor het verbeteren van de vleeskwaliteit. Een belangrijk aspect is postmortale proteolyse, die de structurele integriteit van spiervezels beïnvloedt11. De myofibrilfragmentatie-index (MFI) is een veelgebruikte biochemische test die de mate van myofibrildegradatie kwantificeert en inzicht geeft in de malsheid van vlees12. De MFI-methode omvat het meten van de fragmentatie van myofibrillaire eiwitten, wat direct verband houdt met de malsheid van het vlees. Deze test vormt een aanvulling op de traditionele vleeskwaliteitsbeoordelingen en biedt een beter begrip van de biochemische processen die bijdragen aan variaties in de malsheid van het vlees.
In deze context onderzocht de huidige studie de skeletspieren van Bos indicus versus gekruiste (Bos taurus × Bos indicus) stieren die in feedlot waren afgemaakt, met als doel verschillen in vleeskwaliteitskenmerken te verklaren.
Protocol
Alle procedures met dieren voldeden aan de ethische onderzoeksnormen die zijn opgesteld door de Commissie voor ethiek van diergebruik (CEUA) van de "Universidade Estadual Paulista Júlio de Mesquita Filho" - UNESP Botucatu Campus, onder protocol 0171/2018.
1. Proefdieren
- Maak 30 Nellore-stieren (Bos indicus) en 30 F1 Angus-Nillore-stieren (Bos taurus × Bos indicus) af, in de leeftijd van 20-24 maanden, in een weide. Huisvest beide groepen dieren in collectieve hokken van 5 m x 6 m met een betonnen vloer en uitgerust met schelpvormige waterbakken, die plaats bieden aan maximaal vijf dieren per hok. Zorg ervoor dat alle dieren tot dezelfde managementgroep behoren (geboren en getogen op dezelfde boerderij) en aan dezelfde voederperiode worden onderworpen.
OPMERKING: In deze studie hadden de Nellore-stieren een gemiddeld aanvangslichaamsgewicht van 370,7 kg, terwijl de F1 Angus-Nellore-stieren een gemiddeld aanvangslichaamsgewicht hadden van 380,8 ± 17 kg. - Feedlot-dieet
- Zorg ervoor dat het afwerkingsdieet bestaat uit 11,3% ruwvoer (Tifton hooi en suikerrietbagasse) en 88,7% krachtvoer (gemalen droge maïskorrel, sojameel, maïs natte distilleerdersgranen, droog maïsglutenvoer en minerale kern). Voer de dieren gedurende 120 dagen en geef de dië ad libitum twee keer per dag (om 10.00 uur en 16.00 uur).
- Slachten
- Registreer het uiteindelijke lichaamsgewicht (BWf) aan het einde van de experimentele periode. Verwerk alle dieren in een nabijgelegen slachthuis en volg de standaard inspectieprocedures. Zorg ervoor dat de dieren vóór het slachten minimaal 16 uur vasten, waarbij ze zich onthouden van zowel voer als water.
OPMERKING: F1 Angus-Nellore-stieren vertoonden een uiteindelijk lichaamsgewicht van 615,09 ± 57,53 kg, terwijl Nellore-stieren een gewicht hadden van 545,47 ± 11,45 kg.
- Registreer het uiteindelijke lichaamsgewicht (BWf) aan het einde van de experimentele periode. Verwerk alle dieren in een nabijgelegen slachthuis en volg de standaard inspectieprocedures. Zorg ervoor dat de dieren vóór het slachten minimaal 16 uur vasten, waarbij ze zich onthouden van zowel voer als water.
- Evaluatie van karkaskenmerken
- Weeg de runderkarkassen eerst en laat ze vervolgens 48 uur afkoelen bij 2-4 °C. Metingen omvatten heet karkasgewicht (HCW), ribooggebied (REA) en rugvetdikte (BFT) op de12e/13eribinterface , zoals aanbevolen13. Bepaal de REA met behulp van de rastermethode met een klein raster (18 cm x 13 cm) en meet de BFT in millimeters met behulp van een schuifmaat.
- Meet de REA in elk karkas met behulp van een netvormig raster (hetzelfde als gebruikt in het USDA Yield Grade-classificatiesysteem), verdeeld in vierkanten van 1 cm² met één stip in het midden. Voeg alle vierkanten binnen de omtrek van de ribeye en die langs de contouren van de tracering die door de middelste stip gaan, bij elkaar op.
- Meet de BFT op een specifieke positie op de beoordelingsplaats ergens tussen de12e/13eribben . Om deze positie te bepalen, meet je de lengte van de rib eye; Bepaal vervolgens, beginnend bij de mediale grens "A", een punt driekwart van de weg langs de rib eye en halverwege "B". Neem een schuifmaat door dit punt en haaks op de gespecificeerde rib op het grensvlak tussen het onderhuidse vet en het intermusculair vet. Meet het onderhuidse vet door de schuifmaat in een rechte hoek ten opzichte van de lijn van het onderhuidse vet te plaatsen, vanaf het interfacepunt (aanvullende figuur S1).
- Weeg de runderkarkassen eerst en laat ze vervolgens 48 uur afkoelen bij 2-4 °C. Metingen omvatten heet karkasgewicht (HCW), ribooggebied (REA) en rugvetdikte (BFT) op de12e/13eribinterface , zoals aanbevolen13. Bepaal de REA met behulp van de rastermethode met een klein raster (18 cm x 13 cm) en meet de BFT in millimeters met behulp van een schuifmaat.
- Monsterneming
- Bemonster Longissimus thoracis (LT) van het linker halve karkas (deel van ± 12,0 cm vlees), tussen de 11een 13erib in de schedelrichting. Verdeel in het laboratorium de vleesmonsters in steaks van 2,54 cm.
- Veroudering
- Beoordeel de kwaliteitskenmerken van het vlees na een natte rijpingsperiode van 14 dagen bij een temperatuur van 0-2 °C in een incubator voor biologisch zuurstofverbruik (BZV). Gebruik steaks met een dikte van 2,54 cm voor de analyse van vleeskleur, pH, intramusculair vet, zuiveringsverlies, watervasthoudend vermogen, objectieve malsheid en kookverliezen. Verpak de steaks apart in plastic zakken voor een hoog vacuüm en een lage zuurstofdoorlaatbaarheid en bewaar ze na het bereiken van de rijpingstijd ingevroren bij -20 °C tot het moment van analyse. Ontdooi de rundvleesmonsters gedurende 24 uur bij 4 °C en stel ze gedurende 30 minuten bloot aan zuurstof bij 4 °C (bloeitijd).
2. De pH van het vlees
- Meet de pH van het vlees met behulp van een digitale pH-meter die is uitgerust met een penetratiesonde. Kalibreer het met pH 4.0 en 7.0 buffers bij een kamertemperatuur van 25 °C. Meet de pH van het vlees op drie locaties van het LT-spiermonster. Registreer handmatig de gegevensmetingen en exporteer vervolgens het gegevensblad; bereken het gemiddelde van de drie metingen voor de pH van vlees.
3. Intramusculair vet
OPMERKING: Het intramusculair vetgehalte (IMF) werd bepaald met behulp van nabij-infraroodspectroscopie (NIR)14 en met gravimetrische methode15.
- Verwijder het onderhuidse vet van de LT-spier met behulp van een scalpel. Maal en homogeniseer de steak vervolgens gedurende 5 minuten met een mixer, waarbij u ongeveer 180 g van het monster opneemt. Plaats het monster in een beker, plaats het in de monsterkamer en voer subscanning uit van verschillende zones van het testmonster door de monsterbeker te draaien; Voeg de zones samen voor het eindresultaat.
- Voer drie metingen uit voor elk monster. Plaats de monsters na homogenisatie op de plaat voor verdere aflezing. Stel het apparaat in op NIR-transmissie, met een bewegende roostermonochromator die het gebied van 850 nm tot 1050 nm scant.
- Exporteer het gegevensblad en bereken vervolgens de gemiddelde drie metingen voor het IMF. Druk de resultaten uit als een percentage met behulp van de formule: [(IMF-gemiddelde ÷ steekproefgewicht) × 100].
- Combineer homogeniseer de LT-spiermonsters (3,0 g) met een chloroform/methanol-methanol/chloroform-oplossing (2:1) gedurende 2 minuten en onderwerp ze aan centrifugatie (700 × g; 10 min; 20 °C) om de hydrofiele (bovenste), vaste (midden) en hydrofobe (onderste) fasen te scheiden.
- Filtreer de na het centrifugeren verkregen hydrofobe fase met behulp van een filtreerpapier op een trechter met lichte zuigkracht. Breng het filtraat (onderste fase; lipiden in chloroform) over in een kolf met het label lipidefase en breng ten minste 5 mm filtraat over in een vooraf gewogen bekerkolf na het enkele minuten te hebben laten staan. Noteer vervolgens het volume van de chloroformlaag (minimaal 150 ml) en zuig de alcoholische laag op.
- Homogeniseer 100 g aliquots van het monster van vers of bevroren weefsel gedurende 2 minuten met een mengsel van 100 ml chloroform en 200 ml methanol. Voeg 100 ml chloroform toe aan het mengsel, meng gedurende 30 s, voeg 100 ml gedestilleerd water toe en meng nog eens 30 s.
- Filtreer het homogenaat door filtreerpapier op een trechter met lichte zuigkracht. Oefen druk uit met de bodem van een bekerglas wanneer het residu droog is geworden om een maximale terugwinning van het oplosmiddel te garanderen.
- Breng het filtraat over in een maatcilinder van 500 ml en laat het een paar minuten staan om het te scheiden en te klaren. Noteer het volume van de chloroformlaag (minimaal 150 ml) en zuig de alcohollaag op.
- Zorg ervoor dat u de toplaag volledig verwijdert; De chloroformlaag bevat het gezuiverde lipide. Voor kwantitatieve lipide-extractie herstelt u het lipide dat in het weefselresidu is opgesloten door het residu en het filterpapier te mengen met 100 ml chloroform.
- Filtreer het mengsel door de trechter en spoel de blenderkan en het residu af met in totaal 50 ml chloroform. Meng dit filtraat met het originele filtraat voordat u de alcohollaag verwijdert.
OPMERKING: Filtratie is doorgaans snel; Oefen met de bodem van een bekerglas druk uit op het droogresidu om een maximale recuperatie van het oplosmiddel te garanderen.
- Droog de monsters in een oven, koel ze minstens 24 uur af in een exsiccator en plaats ze in een oven op 110 °C tot ze volledig zijn verdampt, koel ze een nacht verder af in een exsiccator en weeg ze ten slotte opnieuw.
- Bepaal het IMF-gehalte door het verschil tussen het begin- en eindgewicht van de beker te berekenen.
4. Kleur van het vlees
- Kalibreer het apparaat met behulp van een zwarte en een witte standaardplaat. Plaats de witte kalibratieplaat in de buurt van het midden van de plaat. Gebruik bij het uitvoeren van een kalibratie het gebied nabij het midden van de plaat. De kalibratie is voltooid nadat de lamp drie keer knippert.
- Meet na 30 minuten bij 4 °C (bloeitijd). Verkrijg kleurmetingen van drie verschillende locaties op het LT-spiermonster, waarbij bindweefsel en vet zorgvuldig worden vermeden.
- Bereken bij kamertemperatuur (20 °C) een gemiddelde van deze metingen, zoals aanbevolen16.
5. Waterverliezen
- Beoordeel het zuiveringsverlies (PL) voor alle monsters. Bepaal de PL van runderlendesecties door het verschil te meten tussen het begingewicht voor het invriezen en het eindgewicht na het invriezen/ontdooien.
OPMERKING: Evalueer niet de PL van nooit ingevroren runderlende controlerunderen. - Meet het watervasthoudend vermogen (WHC) aan de hand van het gewichtsverschil van een vleesmonster (ongeveer 1,0 g) voor en na blootstelling aan een druk van 10 kg gedurende 5 min17.
6. Objectieve malsheid van het vlees
OPMERKING: De meting van de Warner-Bratzler-schuifkracht (WBSF) werd uitgevoerd zoals beschreven18,19.
- Plaats de monsters op een rooster dat aan een vuurvast glas is bevestigd en kook ze in een industriële elektrische oven tot ze een eindtemperatuur van 71 °C hebben bereikt. Koel, weeg en koel de monsters na het koken gedurende 24 uur bij 4 °C.
- Bepaal de kookverliezen (CL) met behulp van de formule
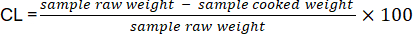 .
- Bepaal het druppelverlies door het vuurvaste materiaal voor en na het koken van het monster te wegen. Leg hiervoor de monsters op een rooster boven een vuurvast glas, zodat vleessappen en vet tijdens het koken kunnen worden afgevoerd.
- Bepaal het verdampingsverlies door alleen het monster voor en na het koken te wegen.
- Noteer het gewicht van de ruwe en gekookte koffie en bereken het percentage DL als het gewicht van de druppel na het koken gedeeld door het gewicht van het ontdooide vleesmonster.
- Bereken het verdampingsverliespercentage (EVP) met behulp van de formule [100 - (gewicht na koken) ÷ ruw gewicht × 100].
- Voor de bepaling van WBSF worden acht aders met een diameter van 1,27 cm doorsnede met behulp van een textuuranalysator, uitgerust met een Warner-Bratzler Shear Force-mes van 3,07 mm en een V-vormige (hoek van 60°) snijkant.
- Rapporteer de resultaten als het gemiddelde van zes waarden per monster, in kilogram (kg), na uitsluiting van de lage en hoge extremen19.
7. Biochemische test
OPMERKING: Postmortale proteolyse werd beoordeeld door de myofibrilfragmentatie-index (MFI) te schatten, volgens de oorspronkelijke procedure beschreven door Culler et al.20 en aangepast voor Bos indicus-runderen door Borges et al.21.
- Homogeniseer fragmenten van ongeveer 3 g LT-monsters (vetgestript spierweefsel en bindweefsel) in een bufferoplossing met 100 mM kaliumchloride, 20 mM kaliumfosfaat bij pH 7, 1 mM ethyleendiaminetetra-azijnzuur (EDTA), 1 mM magnesiumchloride en 1 mM natriumazide bij 2 °C, gevolgd door centrifugatie (1.000 × g gedurende 15 minuten bij 4 °C).
- Resuspendeer het bezinksel in 10 volumes (v/w) isolatiemedium met behulp van een roerstaaf, belijd het vervolgens opnieuw bij 1.000 × g gedurende 15 minuten en decanteer het supernatant.
- Resuspendeer het sediment in 2,5 volumes (v/w) isolatiemedium en scheid het bindweefsel en het puin door het door een polyethyleenzeef (18 mesh) te halen. Gebruik 2,5 extra volumes (v/w) om de myofibrillen door de zeef te laten gaan.
- Bepaal de eiwitconcentratie van de suspensie van myofibrillen met behulp van de biureetmethode van Gornall et al.22. Verdun een aliquot van de myofiblensuspensie met isolatiemedium tot een eiwitconcentratie van 0,5 ± 0,05 mg/ml.
- Meet direct de absorptie van deze suspensie bij 540 nm. Bepaal MFI met behulp van spectrofotometrie bij 540 nm. Vermenigvuldig de extinctie met 200 om de MFI voor elk monster te verkrijgen (en rapporteer deze als een index zonder meeteenheid).
8. Moleculair-biologische test
OPMERKING: Voor de analyse van myosine heavy chain (MyHC), het meest voorkomende eiwit in de skeletspieren van runderen, werden LT-monsters van beide groepen verwerkt volgens het protocol dat in de literatuur wordt beschreven23,24.
- Bereik elektroforetische scheiding met behulp van een gradiënt SDS-PAGE-gel (7-10%) en een 4% stapelgel. Breng 25 μL van elk monster aan op de gel en laat het gedurende 1 uur op 70 V, 28 mA en 4 °C draaien, gevolgd door een run op 180 V, 12 mA en 4 °C gedurende 29 uur.
- Gebruik twee verschillende buffers in de runs: de bovenste gelbuffer bestaande uit glycine, tris(hydroxymethyl)aminomethaanbase, natriumdodecylsulfaat (SDS) en gedestilleerd water, terwijl de onderste gelbuffer identiek is aan de bovenste buffer, met toevoeging van mercaptoethanol.
- Kleur de gels met Coomassie Blue en maak foto's met behulp van de juiste software.
- Identificeer MyHC-isovormen (MyHC-I, MyHC-IIa, MyHC-IIx/d) op basis van hun molecuulgewicht (respectievelijk 223.900, 224.243 en 223.875 kDa). Voer een semi-kwantitatieve analyse uit door densitometrie van de banden die overeenkomen met elke isovorm, met behulp van geschikte software.
- Gebruik de Rat soleus en de Extensor digitorum longus (EDL)-spier als positieve controles om MyHC-isovormen te classificeren, waarbij u in elke gel één putje reserveert voor het laden van 40 μl van het verwerkte monster.
- Voer voor alle gegevens de variantieanalyse (ANOVA) uit met behulp van de F-test, met behulp van het volgende model:
Yij = μ + ti + Ɛij
waarbij Yij de waargenomen waarde is van de experimentele eenheid die verwijst naar behandeling i in herhaling j; μ is het algemene effect van het gemiddelde; t is het behandelingseffect (genetische groep) en ε is de experimentele fout. - Vergelijk de gemiddelden met behulp van de t-toets van de student en neem de P-waarde < 0,05 aan als de kritische kans.
Resultaten
Tabel 1 toont de karkaskenmerken van de twee genetische groepen die in dit onderzoek zijn onderzocht. Er werden met name verschillen geïdentificeerd (P < 0,01) in HCW, REA en BFT, waarbij gekruiste dieren grotere waarden vertoonden, wat een heterosis-effect suggereert.
| Variabele¹ | Kanton Nellore | F1 Angus x Nellore | SEM | P-waarde |
| BWfinale, kg | 545,47b | 615.09EEN | 7.32 | <.0001 |
| HCW, kg | 286,87b | 325.12EEN | 3.26 | <.0001 |
| REA, cm² | 75.17ter | 90,48EEN | 1.66 | <.0001 |
| BFT, mm | 5,72ter | 9.16een | 0.62 | 0.001 |
Tabel 1: Karkaskenmerken van met feedlot afgewerkte Nellore (Bos indicus) en F1 Angus-Nellore (Bos taurus × Bos indicus) stieren. a-b Verschillende kleine letters geven verschillen aan bij P < 0,05. Afkortingen: BW = lichaamsgewicht; HCW = warm karkasgewicht; REA = ribeye gebied; BFT = dikte van het rugvet; SEM = standaardfout van het gemiddelde.
Er werden ook vergelijkingen van vleeskwaliteitskenmerken uitgevoerd (tabel 2) en er werden geen verschillen gevonden voor vlees-pH, roodheid, PL, EVP en CL (P > 0,05) tussen Nellore- versus F1-Angus-Nellore-stieren. Gekruiste stieren hadden echter een grotere IMF, geelheid, WHC en MFI dan Nellore-stieren (P < 0,05). Bijgevolg werden de vleeskwaliteitskenmerken van Nellore-stieren negatief beïnvloed in termen van malsheid, met meer WBSF en DL (taaier vlees), evenals een lagere WHC en meer vocht.
| Variabele¹ | Kanton Nellore | F1 Angus x Nellore | SEM | P-waarde |
| Ph | 5.58 | 5.63 | 0.06 | 0.122 |
| Vocht, % | 74,51 EEN | 73,65 ter | 0.21 | 0.017 |
| IMF NIRS, % | 3.79een | 5.11 b | 0.25 | 0.002 |
| IMF gravimetrische methode, % | 1,95 een | 3.11 ter | 0.34 | 0.005 |
| Lichtheid (L*) | 31,57 een | 30,98 miljard | 0.58 | 0.008 |
| Roodheid (a*) | 14.91 | 15.59 | 0.37 | 0.061 |
| Geelheid (b*) | 5.61 een | 6.19 ter | 0.17 | 0.003 |
| Verlies bij opschonen, % | 23.17 | 21.03 | 1.22 | 0.176 |
| Druppelverlies, % | 3,96 een | 3.67 ter | 0.05 | 0.039 |
| Verdampingsverlies, % | 22.9 | 24.22 | 1.15 | 0.122 |
| Totaal kookverlies, % | 26.8 | 28.08 | 1.04 | 0.764 |
| WHC, % | 61.3 | 63.5 | 1.01 | 0.042 |
| WBSF, kg | 4.68 een | 4.23 ter | 0.17 | 0.002 |
| MFI | 64,95 A | 81,76 miljard | 1.54 | 0.005 |
Tabel 2: Vleeskwaliteitskenmerken van Nellore (Bos indicus) en F1 Angus-Nellore (Bos taurus × Bos indicus). a-b Verschillende kleine letters geven verschillen aan bij P < 0,05. Afkortingen: IMF = intramusculair vetgehalte; WBSF = Warner-Blatzler afschuifkracht; MFI = myofibrilfragmentatie-index; WHC = watervasthoudend vermogen.
De verschillen in malsheid van vlees kunnen ook in verband worden gebracht met verschillen in MyHC IIa (P < 0,01) tussen experimentele groepen (Figuur 1). F1 Angus-Nellore-stieren vertoonden een hogere abundantie van MyHC IIa in vergelijking met Nellore-stieren. Deze bevindingen suggereren dat er voor Nellore-dieren een modulatie plaatsvond van snelle glycolytische vezels (MyHC IIx) naar snel oxidatieve glycolytische vezels (MyHC IIa). Daarentegen vond deze modulatie voor F1 Angus-Nellore-dieren plaats met minder omvang, wat een merkbare hypertrofische groei van snelle glycolytische vezels (MyHC IIx) vertoonde. De expressie van de MyHC-IIa-isovormen varieerde dus duidelijk tussen deze groepen.
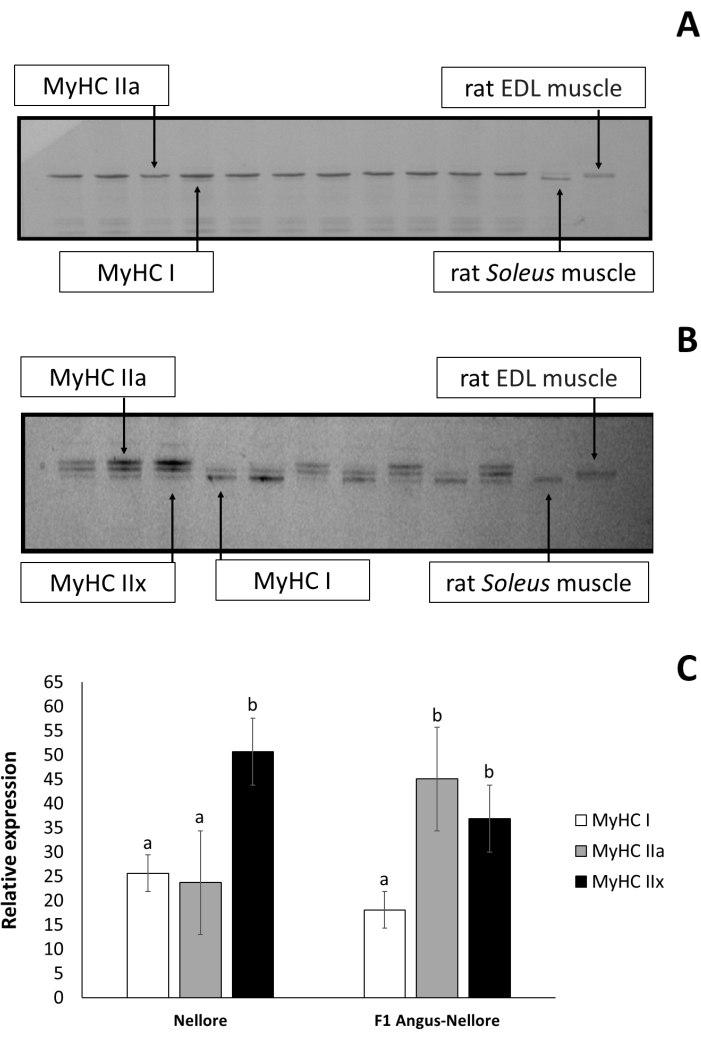
Figuur 1: Elektroforese van myosine zware keten isovormen van de Longissimus thoracis spier. (A) Nellore en (B) F1 Angus-Nellore stieren. (C) Relatief percentage MyHC-isovormen in de Longissimus thoracis-spier van twee experimentele groepen (SDS-PAGE-gel 7-10%). Afkortingen: MyHC = myosine zware keten; SDS-PAGE = elektroforese van natriumdodecylsulfaat-polyacrylamidegel. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullende figuur S1: Methode voor het meten van de dikte van het rugvet (BFT) op het grensvlak tussen het onderhuidse vet en het intermusculair vet. Het proces omvat het identificeren van specifieke anatomische oriëntatiepunten, waaronder de mediale grens "A" en een punt driekwart langs de ribeye en halverwege "B". Vervolgens wordt een schuifmaat loodrecht op de gespecificeerde rib op punt B geplaatst, die zich uitstrekt tot het grensvlak tussen het onderhuidse vet en het intermusculair vet. De onderhuidse vetdikte wordt gemeten door de schuifmaat in een rechte hoek ten opzichte van de lijn van onderhuids vet vanaf het interfacepunt te plaatsen. Klik hier om dit bestand te downloaden.
Discussie
Tijdens de evaluatie van het karkas is het van cruciaal belang om de groei- en kwaliteitskenmerken na een afkoelperiode van 48 uur nauwkeurig te meten om consistente en vergelijkbare gegevens te verkrijgen. De twee biologische modellen vertoonden uiteenlopende karkaskenmerken, met name HCW, REA en BFT, die consistent zijn met bevindingen die in andere onderzoeken zijn gerapporteerd. Het gemiddelde HCW van Nellore-stieren komt overeen met de Braziliaanse marktvoorkeuren, die prioriteit geven aan een grotere vleesproductie per diereenheid met een lager vetgehalte25. Omgekeerd hebben gekruiste runderen (Bos taurus × Bos indicus) een hoger karkasgewicht en hogere marmeringsscores, wat vlees oplevert met een superieure sensorische kwaliteit. Dit komt tegemoet aan de marktvraag naar rundvlees met een verhoogde toegevoegde waarde, aangezien deze kenmerken worden geassocieerd met hoogwaardige vleesproducten26.
De verkregen gemiddelde pH-waarden, variërend tussen 5,3 en 5,5, komen nauw overeen met de gerapporteerde literatuurwaarden voor rundvlees27, die doorgaans variëren van 5,3 tot 5,6. De kleurvariabelen L*, a*, b* komen overeen met de gemiddelde waarden voor vleesvee die in andere onderzoeken zijn waargenomen 7,28. Deze studies rapporteerden b*, a* en L* variabelen variërend van 4,0 tot 7,0, 13 tot 16 en 30,0 tot 32,0, respectievelijk. Bij deze vleeskwaliteitstests moet de monstervoorbereiding nauwgezet zijn, met de juiste behandeling van spiermonsters, inclusief een gestandaardiseerd verouderingsproces en bloeitijd vóór analyse, om uniformiteit te garanderen. Kalibratie- en meetprotocollen vereisen dat alle apparaten, zoals pH-meters en colorimeters, vóór gebruik nauwkeurig worden gekalibreerd om de integriteit van de metingen te behouden.
De kleur van vlees is het gevolg van de interactie van zuurstof met myoglobine in spieren, en de concentratie van myoglobine lijkt evenredig te zijn met de grootte van het dier29. Soortgelijke bevindingen werden gerapporteerd door Purchas et al.30 voor Europese dieren (Bos taurus), waar ze een hogere roodheid en geelheid waarnamen in het vlees van snelgroeiende Angus-runderen in vergelijking met langzaam groeiende dieren. Eerdere studies hebben het potentiële nut van kleurparameters (L*, a*, b*) gerapporteerd als een hulpmiddel voor het voorspellen van de malsheid van rundvlees bij zowel Europese31- als Zebu-dieren32.
Het onderzoek naar de kleur van vlees is cruciaal, omdat het een van de belangrijkste factoren is waarmee consumenten rekening houden bij het kopen van vlees, naast overwegingen als voedselveiligheid (oorsprong van het product en handel), snijtype en -grootte, evenals vetheid en intramusculair vet (marmering). Om de kans te vergroten dat vlees mals en sappig is, wordt consumenten geadviseerd om de vleeskleur, de snijgrootte en, met name, marmering of intramusculair en onderhuids vet te beoordelen33. Toch is het duidelijk dat kleur de grootste invloed uitoefent op de besluitvorming tijdens de aankoop van vlees.
De gemiddelde verkregen WBSF-waarde lag tussen de 4,0 en 4,7 kg. Objectieve malsheidsanalyse is op grote schaal gebruikt om de malsheid van vlees te beoordelen, omdat het als relatief kosteneffectief wordt beschouwd en geen panelleden of sensorische tests vereist34. Gezien de subjectieve aard van consumentenbeoordelingen van de malsheid van rundvlees, die wordt beïnvloed door IMF35, zijn instrumentele methoden cruciaal voor het voorspellen van malsheid. Bovendien vereist de gevoeligheid van bepaalde methoden, zoals nabij-infraroodspectroscopie, nauwkeurige kalibratie en consistentie bij de monstervoorbereiding; Elke afwijking kan leiden tot onnauwkeurige metingen.
Het oorspronkelijke concept van het WBSF-instrument heeft sinds de jaren 60 enkele wijzigingen ondergaan36. In de context van rundvlees werd deze methode gestandaardiseerd door Wheeler et al.37. Volgens de auteurs moet de bereiding en het koken van monsters nauwgezet worden gecontroleerd: monsters worden op een rooster boven een vuurvast glas geplaatst en gekookt tot ze een interne temperatuur van 71 °C hebben bereikt. Na het koken worden de monsters gekoeld, gewogen en gedurende 24 uur gekoeld bij 4 °C om ze te stabiliseren voordat ze verder worden geanalyseerd. Kookverliezen worden berekend met behulp van formules voor druppelverlies en verdampingsverlies, zodat de gewichtsveranderingen als gevolg van koken nauwkeurig worden gekwantificeerd. De WBSF-meting is een cruciale stap, waarbij acht kernen per monster worden verdeeld, waarbij het gemiddelde van zes schuifkrachtwaarden wordt gerapporteerd na uitsluiting van extremen, wat een betrouwbare maatstaf biedt voor de malsheid van het vlees. De totale kookverliezen in de huidige studie, vertegenwoordigd door de som van EL en DL, waren vergelijkbaar met die gerapporteerd bij runderen die met feedlot waren afgewerkt38. Bovendien wordt algemeen aanvaard dat door warmte veroorzaakte veranderingen in het bindweefsel bijdragen aan een mals effect. Studies hebben de impact van de eindkooktemperatuur op de malsheid aangetoond en veranderingen in de myofibrillaire structuur aan het licht gebracht, waarbij zowel de malsheid als de CL worden beïnvloed door eiwitdenaturatie39,40. Dergelijke chemische of moleculaire gebeurtenissen kunnen de sensorische eigenschappen beïnvloeden als gevolg van veranderingen in WHC.
De waargenomen resultaten met betrekking tot CL en WHC komen overeen met de verwachtingen, aangezien het algemeen bekend is dat waterdistributie en beschikbaarheid in spieren een cruciale rol spelen bij sappigheid, malsheid en smaak41. Bijgevolg leiden een hogere DL en een lagere WHC tot taaier en minder sappig vlees, zoals in deze studie werd waargenomen voor Nellore-stieren.
Biochemische analyses zoals MFI worden gebruikt als indicator voor de malsheid van vlees. De resultaten die in de huidige studie zijn verkregen, bevestigen dat de MFI in rundvlees afneemt naarmate de WBSF-waarde toeneemt, wat mogelijk wijst op verminderde myofibrillaire fragmentatie in taaier vlees. MFI dient dus als een indicator van proteolyse van spiervezels, die toeneemt met afnemende WBSF42. Onderzoekers meldden dat een hogere mate van myofibrillaire proteolyse leidde tot verhoogde malsheid bij rundvlees43 en lam44. Deze biochemische test voor postmortale proteolyse omvat de homogenisatie van LT-monsters in een specifieke bufferoplossing, gevolgd door centrifugatie en resuspensie, waarbij de eiwitconcentratie wordt bepaald met behulp van de biureetmethode. De MFI wordt vervolgens gemeten via spectrofotometrie, wat een index oplevert die de mate van myofibrillaire fragmentatie weergeeft. Deze zorgvuldig gecontroleerde stappen zorgen voor de integriteit en betrouwbaarheid van de gegevens, cruciaal voor het evalueren van de kwaliteit en marktwaarde van vleesproducten.
Bovendien kan MFI meer dan 50% van de variatie in malsheid in oud vlees verklaren. Bij het bestuderen van verschillende rassen of groepen zijn variaties in malsheid van vlees niet alleen afhankelijk van genetische factoren. Met name voor de LT-spier, zoals aangegeven in dit onderzoek, wordt de gevoeligheid voornamelijk toegeschreven aan de proteolyse van myofibrillaire eiwitten en, in mindere mate, aan de lengte van het sarcomeer en het bindweefselgehalte45. Desalniettemin kan de relatie tussen WBSF en MFI dienen als een waardevol hulpmiddel voor het opsporen van problemen in de malsheid van vlees veroorzaakt door postmortem koelopslagprocessen in de vleesindustrie. Het is belangrijk op te merken dat hoewel onze studie inzicht geeft in verschillen in rastypen, het geen uitgebreide genetische evaluatie vormt vanwege de steekproefomvang en reikwijdte van ons onderzoek.
Moleculaire analyse vereist een strikte controle van de elektroforese-omstandigheden en de daaropvolgende analyse van MyHC-isovormen om de betrouwbaarheid van de eiwitscheiding en -identificatie te garanderen. Het naleven van deze kritieke stappen zorgt voor de robuustheid en reproduceerbaarheid van de bevindingen van het onderzoek. Het type spiervezel speelt een fundamentele rol bij het moduleren van de groei en de malsheid van rundvlees. MyHC-eiwitten zijn de meest voorkomende eiwitten in runderspier46 en worden vaak bestudeerd voor de moleculaire herkenning van vezeltypes in elke spier. Sommige MyHC-isovormen, zoals MyHC-IIx, zijn gesuggereerd als biomarkers van vleesmalsheid in Bos taurus47. Er zijn echter beperkte studies geweest die de genen die coderen voor MyHC evalueerden en hun isovormen kwantificeerden bij Zebu-dieren (Bos indicus). De afwezigheid van de MyHC-IIb-isovorm in de bestudeerde dieren komt overeen met de bevindingen die zijn gerapporteerd in onderzoeken naar de identificatie en expressie van MyHC in de skeletspier van volwassen runderen48. Met name bij Nellore-runderen konden eerdere studies de aanwezigheid van de MyHC-IIb-isovorm niet detecteren door elektroforese in de LT-spier. Deze isovorm komt vaker voor bij Bos taurus-rassen met dubbele spieren, zoals Blonde d'Aquitaine49.
De relatie tussen het type spiervezel en de malsheid van rundvlees is een onderwerp van voortdurende discussie geweest. Variabiliteit van het monster is een belangrijke factor, omdat verschillen in spiersamenstelling en vezeltypes tussen dieren tot inconsistente resultaten kunnen leiden. Omgevingsfactoren, waaronder voeding en gebruiksomstandigheden, spelen ook een cruciale rol bij het beïnvloeden van vleeskwaliteitskenmerken. Deze beperkingen benadrukken de noodzaak van strikte controle en standaardisatie gedurende het hele meetproces om betrouwbare en vergelijkbare resultaten te garanderen. Net als bij de bevindingen in de huidige studie, is een negatief effect van MyHC-I op de gevoeligheid van LT-spieren gerapporteerd voor Charolais-runderen50,51. Daarentegen hebben andere studies een positief effect van MyHC-I op de malsheid van vlees beschreven bij verschillende rassen, waaronder Aubrac, Salers, Limousin, Charolais, Montbéliard, Holstein en Blonde d'Aquitaine 52,53,54. Afwijkende resultaten die in de literatuur worden gevonden, kunnen worden toegeschreven aan genotypeverschillen en beperkingen van de methoden die worden gebruikt voor de scheiding en identificatie van deze isovorm in de LT-spier van runderen. Bovendien kunnen verschillende achtergrondomgevingen en diëten ook van invloed zijn op de vleeskwaliteit en spiertype-eigenschappen.
Biochemische analyses, met name de MFI, werpen licht op postmortale mechanismen voor malsheid van rundvlees en tonen de sleutelrol van spiervezeltypes, myosine zware ketenisovormen en hun impact op de malsheid van rundvlees. De afwezigheid van bepaalde MyHC-isovormen bij Bos indicus-runderen wordt opgemerkt, met implicaties voor de variatie in de malsheid van rundvlees. Over het algemeen reguleert het complexe samenspel van genetische en biochemische factoren de malsheid van rundvlees en benadrukt het de noodzaak van verder onderzoek op dit gebied. De integratie van meerdere methoden, zoals WBSF-meting, IMF-inhoudsanalyse en MyHC-isovormelektroforese, helpt variaties in vleeskwaliteit te verklaren. De beschreven gedetailleerde protocollen bieden nauwkeurige stappen voor het beoordelen van de vleeskwaliteit, zodat de procedures nauwkeurig kunnen worden gerepliceerd of aangepast door andere onderzoekers. Bovendien bieden de bevindingen waardevolle genetische inzichten door significante verschillen in vleeskwaliteitskenmerken tussen Bos indicus en gekruiste stieren te benadrukken.
Openbaarmakingen
De auteurs hebben niets te onthullen. De financiers hadden geen rol bij de opzet van het onderzoek, de gegevensverzameling en -analyse, de beslissing om te publiceren of de voorbereiding van het manuscript.
Dankbetuigingen
Dit onderzoek werd gefinancierd door FAPESP (subsidies 2023/05002-3; 2023/02662-2 en 2024/09871-9), CAPES (financieringscode 001), CNPq (304158/2022-4), en door PROPE (IEPe-RC subsidienummer 149) van de School of Veterinary Medicine and Animal Science, São Paulo State University.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Acetone | Merk, Darmstadt, Germany | CAS 67-64-1 | 100014 | oplossingen die worden gebruikt voor de elektroforetische scheidingen |
| Anti-MYH-1 Antilichaam | Merk, Darmstadt, Germany | MABT846 | Rattensoleus |
| Anti-Myosine antilichaam | Abcam, Massachusetts, Verenigde Staten | ab37484 | Myosine zware keten |
| Anti-Myosine-2 (MYH2) Antilichaam | Merk, Darmstadt, Germany | MABT840 | Extensor digitorum longus (EDL) |
| Biologische zuurstofbehoefte (BOD) incubator | TECNAL, São Paulo, Brazil | TE-371/240L | Vleesrijping |
| Chloroform; absoluut analytisch reagens | Sigma-Aldrich, Missouri, Verenigde Staten | 67-66-3 | Intramusculair vet |
| CIELab systeem | Konica Minolta Sensing, Tokio, Japan | CR-400 colorimeter | Vleeskleur |
| Coomassie Blue | Sigma-Aldrich, Missouri, Verenigde Staten | C.I. 42655) | Myosine zware keten |
| Elektrische oven | Venâncio Aires, Rio Grande do Sul, Brazil | Vlees malsheid | |
| Ethanol | Merk, Darmstadt, Germany | 64-17-5 | oplossingen die worden gebruikt voor de elektroforetische scheidingen |
| Ethyleendiaminetetraazijnzuur | Sigma-Aldrich, Missouri, Verenigde Staten | 60-00-4 | Post-mortem proteolyse |
| Glaskolven | Sigma-Aldrich, Missouri, Verenigde Staten | oplossingen die worden gebruikt voor de elektroforetische scheidingen | |
| Glycine | Sigma-Aldrich, Missouri, Verenigde Staten | G6761 | Myosine zware keten |
| Infrarood spectroscopie - FoodScan | Foss NIRSystems, Madson, Verenigde Staten | FoodScan™ 2 | Intramusculair vet |
| Magnesiumchloride | Sigma-Aldrich, Missouri, Verenigde Staten | 7786-30-3 | Post-mortem proteolyse |
| Mercaptoethanol | Sigma-Aldrich, Missouri, Verenigde Staten | M6250 | Myosine zware keten |
| Methanol, absoluut analytisch reagens | Sigma-Aldrich, Missouri, Verenigde Staten | 67-56-1 | Intramusculair vet |
| pH meter | LineLab, São Paulo, Brazil | AKLA 71980 | Vlees pH |
| PlusOne 2-D Quant Kit | GE Healthcare Product | Code 80-6483-56 | Post-mortem proteolyse |
| Polypropyleen | Sigma-Aldrich, Missouri, Verenigde Staten | oplossingen die worden gebruikt voor de elektroforetische scheidingen | |
| Kaliumchloride | Sigma-Aldrich, Missouri, Verenigde Staten | 7447-40-7 | Post-mortem proteolyse |
| Kaliumfosfaat | Sigma-Aldrich, Missouri, Verenigde Staten | P0662 | Post-mortem proteolyse |
| R software | Wenen, Oostenrijk | versie 3.6.2 | Gegevensanalyse |
| Natriumazid | Sigma-Aldrich, Missouri, Verenigde Staten | 26628-22-8 | Post-mortem proteolyse |
| Natriumdodecylsulfaat (SDS) | Sigma-Aldrich, Missouri, Verenigde Staten | 822050 | Myosine zware keten |
| Spectrofotometer | Perkin Elmer, Shelton, Verenigde Staten | Perkin Elmer Lambda 25 UV/Vis | Post-mortem proteolyse |
| Statistisch analysesysteem | SAS, Cary, North Carolina, Verenigde Staten | versie 9.1, | Gegevensanalyse |
| Textuur Analyzer | AMETEK Brookfield, Massachusetts, Verenigde Staten | CTX | Vlees malsheid |
| Tris(hydroxymethyl)aminomethaan | Sigma-Aldrich, Missouri, Verenigde Staten | 77-86-1 | Myosine zware keten |
| Ultrafreezer | Indrel Scientific, Londrina, Paraná, Brazil. | INDREL IULT 335 D - LCD | Stapelopslag |
| Ultrapuur water | Elga PURELAB Ultra Ionic systeem | oplossingen die worden gebruikt voor de elektroforetische scheidingen | |
| Ultra-Turrax hoge scheurmixer | Marconi – MA102/E, Piracicaba, São Paulo, Brazil | Post-mortem proteolyse |
Referenties
- Nunes, C. L. deC., Pflanzer, S. B., Rezende-de-Souza, J. H., Chizzotti, M. L. Beef production and carcass evaluation in Brazil. Anim Front. 14 (2), 15-20 (2024).
- MAPA. Projeções Do Agronegócio: Brasil 2017/18 a 2027/28 Projeções de Longo Prazo / Ministério Da Agricultura, Pecuária e Abastecimento. Biblioteca Nacional de Agricultura. , BINAGRI. Brasília-DF. (2018).
- Bernués, A., Ripoll, G., Panea, B. Consumer segmentation based on convenience orientation and attitudes towards quality attributes of lamb meat. Food Qual Prefer. 26, 211-220 (2012).
- Andrade, T. S., et al. Perception of consultants, feedlot owners, and packers regarding management and marketing decisions on feedlots: A national survey in Brazil (Part II). Can J Anim Sci. 100 (4), 759-770 (2020).
- de Andrade, T. S., et al. Perception of consultants, feedlot owners, and packers regarding the optimal economic slaughter endpoint in feedlots: A national survey in Brazil (Part I). Can J Anim Sci. 100 (4), 745-758 (2020).
- Santiago, B., et al. Comparison of dental carcass maturity in non-castrated male F1 Angus-Nellore cattle finished in feedlot. Food Sci Anim Resour. 41 (3), 554-562 (2021).
- Miguel, G. Z., et al. Immunocastration improves carcass traits and beef color attributes in Nellore and Nellore×Aberdeen Angus crossbred animals finished in feedlot. Meat Sci. 96 (2), 884-891 (2014).
- Costa, N. V., et al. Carcass and meat quality traits in Nellore and F1 Nellore-Araguaia crosses. Genet Mol Res. 14 (2), 5379-5389 (2015).
- Pinto, A. C. J., Millen, D. D. Nutritional recommendations and management practices adopted by feedlot cattle nutritionists: the 2016 Brazilian survey. Can J Anim Sci. 99 (2), 392-407 (2019).
- Costa Junior, C., et al. Brazilian beef cattle feedlot manure management: A country survey. J Anim Sci. 91 (4), 1811-1818 (2013).
- Huang, C., et al. Proteomics discovery of protein biomarkers linked to meat quality traits in post-mortem muscles: Current trends and future prospects: A review. Trends Food Sci Technol. 105, 416-432 (2020).
- Muniz, M. M. M., et al. Use of gene expression profile to identify potentially relevant transcripts to myofibrillar fragmentation index trait. Funct Integr Genomics. 20, 609-619 (2020).
- Official United States Standards for Grades of Carcass Beef. United States Standards for Grades of Carcass Beef. USDA. , Available from: https://www.ams.usda.gov/sites/default/files/media/CarcassBeefStandard.pdf 1-20 (1997).
- Anderson, S. Determination of fat, moisture, and protein in meat and meat products by using the FOSS FoodScan near-infrared spectrophotometer with FOSS artificial neural network calibration model and associated database: Collaborative study. J AOAC Int. 90 (4), 1073-1083 (2007).
- Bligh, E. G., Dyer, W. J. A rapid method of total lipid extraction. Can J Biochem Physiol. 37 (8), 911-917 (1959).
- Hernández Salueña, B., Sáenz Gamasa, C., Diñeiro Rubial, J. M., Alberdi Odriozola, C. CIELAB color paths during meat shelf life. Meat Sci. 157, 107889(2019).
- Rao, M. V., Gault, N. F. S., Kennedy, S. Variations in water-holding capacity due to changes in the fibre diameter, sarcomere length and connective tissue morphology of some beef muscles under acidic conditions below the ultimate pH. Meat Sci. 26 (1), 19-37 (1989).
- Wheeler, T. L., Koohmaraie, M., Cundiff, L. V., Dikeman, M. E. Effects of cooking and shearing methodology on variation in Warner-Bratzler shear force values in beef. J Anim Sci. 72 (9), 2325-2330 (1994).
- AMSA. Research Guidelines for Cookery, Sensory Evaluation, and Instrumental Tenderness Measurements of Meat. American Meat Science Association Educational Foundation. , (2015).
- Culler, R. D., Parrish, F. C., Smith, G. C., Cross, H. R. Relationship of myofibril fragmentation index to certain chemical, physical and sensory characteristics of bovine longissimus muscle. J Food Sci. 43 (4), 1177-1180 (1978).
- Borges, B. O., et al. Polymorphisms in candidate genes and their association with carcass traits and meat quality in Nellore cattle. Pesqui Agropecu Bras. 49 (5), 364-371 (2014).
- Gornall, A. G., Bardawill, C. J., David, M. M. Determination of serum proteins by means of the biuret reaction. J Biol Chem. 177 (2), 751-766 (1949).
- Chardulo, L. A. L., et al. Gene and protein expression of myosin heavy chain in Nellore cattle comparing growth or meat tenderness traits. Anim Biotechnol. 32 (3), 300-309 (2019).
- Vechetti-Júnior, I. J., et al. NFAT isoforms regulate muscle fiber type transition without altering can during aerobic training. Int J Sports Med. 34 (10), 861-867 (2013).
- Ferraz, J. B. S., de Felício, P. E. Production systems - An example from Brazil. Meat Sci. 84, 238-243 (2010).
- Liang, R. R., et al. Tenderness and sensory attributes of the longissimus lumborum muscles with different quality grades from Chinese fattened yellow crossbred steers. Meat Sci. 112, 52-57 (2016).
- Viljoen, H. F., De Kock, H. L., Webb, E. C. Consumer acceptability of dark, firm and dry (DFD) and normal pH beef steaks. Meat Sci. 61 (2), 181-185 (2002).
- Lopes, L. S. F., et al. Application of the principal component analysis , cluster analysis , and partial least square regression on crossbreed Angus-Nellore bulls feedlot finished. Trop Anim Health Prod. 52 (6), 3655-3664 (2020).
- Oddy, V. H., Harper, G. S., Greenwood, P. L., McDonagh, M. B. Nutritional and developmental effects on the intrinsic properties of muscles as they relate to the eating quality of beef. Aust J Exp Agric. 41 (7), 921-942 (2001).
- Purchas, R. W., Burnham, D. L., Morris, S. T. Effects of growth potential and growth path on tenderness of beef longissimus muscle from bulls and steers. J Anim Sci. 80 (12), 3211-3221 (2002).
- Wulf, D. M., O’Connor, S. F., Tatum, J. D., Smith, G. C. Using objective measures of muscle color to predict beef Longissimus tenderness. J Anim Sci. 75 (3), 684-692 (1997).
- Baldassini, W. A., et al. Meat quality traits of Nellore bulls according to different degrees of backfat thickness: A multivariate approach. Anim Prod Sci. 57 (2), 363-370 (2017).
- Chardulo, L. A. L., Silveira, A. C., Vianello, F. Analytical aspects for tropical meat quality assessment. Food Quality, Safety and Technology. Lima, G. P. P., Vianello, F. , Springer-Verlag Wien. 53-62 (2013).
- Chen, L., Opara, U. L. Texture measurement approaches in fresh and processed foods - A review. Food Research International. 51 (2), 823-835 (2013).
- Luo, L., Guo, D., Zhou, G., Chen, K. An investigation on the relationship among marbling features, physiological age and Warner–Bratzler Shear force of steer longissimus dorsi muscle. J Food Sci Technol. 55 (4), 1569-1574 (2018).
- Essex, E. Objective measurements for texture in foods. J Texture Stud. 1, 19-37 (1969).
- Wheeler, T. L., Koohmaraie, M., Shackelford, S. D. Standardized Warner-Bratzler shear force procedures for meat tenderness measurement. , Available from: https://www.ars.usda.gov/ARSUserFiles/30400510/protocols/shearforceprocedures.pdf (1995).
- Severino, M., et al. Proteomics unveils post-mortem changes in beef muscle proteins and provides insight into variations in meat quality traits of crossbred young steers and heifers raised in feedlot. Int J Mol Sci. 23 (20), 12259(2022).
- Bertola, N. C., Bevilacqua, A. E., Zaritsky, N. E. Heat treatment effect on texture changes and thermal denaturation of proteins in beef muscle. J Food Process Preserv. 18 (1), 31-46 (1994).
- Palka, K., Daun, H. Changes in texture, cooking losses, and myofibrillar structure of bovine M. semitendinosus during heating. Meat Sci. 51 (3), 237-243 (1999).
- Pearce, K. L., Rosenvold, K., Andersen, H. J., Hopkins, D. L. Water distribution and mobility in meat during the conversion of muscle to meat and ageing and the impacts on fresh meat quality attributes - A review. Meat Sci. 89 (2), 111-124 (2011).
- Muniz, M. M. M., et al. Use of gene expression profile to identify potentially relevant transcripts to myofibrillar fragmentation index trait. Funct Integr Genomics. 20 (4), 609-619 (2020).
- Baldassini, W., et al. Meat quality and muscle tissue proteome of crossbred bulls finished under feedlot using wet distiller grains by-product. Foods. 11 (20), 3233(2022).
- della Malva, A., et al. In-depth characterization of myofibrillar muscle proteome changes in lambs fed hazelnut skin by-products. Food Biosci. 53, 102836(2023).
- Koohmaraie, M., Kent, M. P., Shackelford, S. D., Veiseth, E., Wheeler, T. L. Meat tenderness and muscle growth: Is there any relationship. Meat Sci. 62 (3), 345-352 (2002).
- Lefaucheur, L., et al. Muscle characteristics and meat quality traits are affected by divergent selection on residual feed intake in pigs. J Anim Sci. 89 (4), 996-1010 (2011).
- Picard, B., et al. Inverse relationships between biomarkers and beef tenderness according to contractile and metabolic properties of the muscle. J Agric Food Chem. 62 (40), 9808-9818 (2014).
- Chikuni, K., Muroya, S., Nakajima, I. Myosin heavy chain isoforms expressed in bovine skeletal muscles. Meat Sci. 67 (1), 87-94 (2004).
- Picard, B., Cassar-Malek, I. Evidence for expression of IIb myosin heavy chain isoform in some skeletal muscles of Blonde d’Aquitaine bulls. Meat Sci. 82 (1), 30-36 (2009).
- Crouse, J. D., Koohmaraie, M., Seideman, S. D. The relationship of muscle fibre size to tenderness of beef. Meat Sci. 30 (4), 295-302 (1991).
- Zamora, F., et al. Predicting variability of ageing and toughness in beef M. Longissimus lumborum et thoracis. Meat Sci. 43 (3-4), 321-333 (1996).
- Strydom, P. E., Naude, R. T., Smith, M. F., Scholtz, M. M., Van Wyk, J. B. Characterisation of indigenous African cattle breeds in relation to meat quality traits. Meat Sci. 55 (1), 79-88 (2000).
- Renand, G., Picard, B., Touraille, C., Berge, P., Lepetit, J. Relationships between muscle characteristics and meat quality traits of young Charolais bulls. Meat Sci. 59 (1), 49-60 (2001).
- Chriki, S., et al. Meta-analysis of the comparison of the metabolic and contractile characteristics of two bovine muscles: Longissimus thoracis and semitendinosus. Meat Sci. 91 (4), 423-429 (2012).
Herprints en machtigingen
