Mesenchymale stamcellen uit het beenmerg van de kaak hebben belangrijke functies bij diverse differentiatie, zelfvernieuwing en immuunmodulatie. Ze zijn naar voren gekomen als een cruciaal reservoir van voorlopercellen in gentherapie, weefselmanipulatie en regeneratieve geneeskunde. Hier presenteren we een unieke methode voor het isoleren van mesenchymale stamcellen van kaakbeenmerg bij ratten.
Methodenartikel
Techniek voor isolatie en kweek van mesenchymale stamcellen van rattenkaakbeenmerg
In dit artikel
Samenvatting
Samenvatting
Beenmerg mesenchymale stamcellen (BMMSC's) zijn een type stamcel met multidirectioneel differentiatiepotentieel. Vergeleken met BMMSC's die zijn afgeleid van appendiculaire botten, hebben BMMSC's die zijn afgeleid van de kaak een groter proliferatief en osteogeen differentiatievermogen, en worden ze geleidelijk belangrijke zaadcellen voor het herstel van kaakdefecten. De onderkaak heeft echter een complexe benige structuur en een minder poreuze inhoud dan appendiculaire botten. Het is moeilijk om met traditionele methoden een groot aantal hoogwaardige, van de kaak afgeleide mesenchymale beenmergstamcellen te verkrijgen. Deze studie presenteert een 'niche-gebaseerde benadering van stamheid' voor het isoleren en kweken van mesenchymale stamcellen van beenmerg van ratten (JBMMSC's). Primaire JBMMSC's van ratten werden geïsoleerd en gekweekt met behulp van de methode voor het hele beenmerg in combinatie met de botschijfvergistingsmethode. De geïsoleerde cellen werden geïdentificeerd als JBMMSC's door observatie van de celmorfologie, detectie van markers op het celoppervlak en inductie van multidirectionele differentiatie. De cellen die met deze methode worden geëxtraheerd, vertonen een 'fibroblastachtige' spoelvorm. De cellen zijn lang, spoelvormig en fibroblastachtig. De flowcytometrie-analyse toont aan dat deze cellen positief zijn voor CD29, CD44 en CD90, maar negatief voor CD11b/c, CD34 en CD45, wat congruent is met de kenmerken van BMMSC. De cellen vertonen een sterke proliferatiecapaciteit en kunnen osteogene, adipogene en chondrogene differentiatie ondergaan. Deze studie biedt een effectieve en stabiele methode om in korte tijd voldoende hoogwaardige JBMMSC's met een sterk differentiatievermogen te verkrijgen, wat verdere studies van de verkenning van biologische functie, regeneratieve geneeskunde en gerelateerde klinische toepassingen zou kunnen vergemakkelijken.
Inleiding
Mesenchymale stamcellen (MSC's) werden voor het eerst ontdekt in het beenmerg, wat het vermogen aantoonde om adhesieve kolonies in cultuur te vormen en een sterk osteogeen potentieel1. Pittinger et al.2 vonden verder hun multidirectionele differentiatiepotentieel ten opzichte van bot, vet en kraakbeen. Hoewel alle mesenchymale stamcellen uit verschillende bronnen het potentieel hebben voor multidirectionele differentiatie, hebben mesenchymale beenmergstamcellen het sterkste chongene differentiatiepotentieel in vergelijking met mesenchymale stamcellen die zijn afgeleid van andere weefsels, waardoor ze worden beschouwd als de beste kandidaatcellen voor botweefselmanipulatie3. Veel onderzoeken hebben echter aangetoond dat BMMSC's van verschillende oorsprong plaatsspecifieke kenmerken en eigenschappen vertonen, zoals osteogeen differentiatievermogen en cellulaire proliferatieve activiteit 4,5. Dit kan te wijten zijn aan verschillende kiemlagen tussen de kaak en appendiculaire botten of de darmbeenderen6.
Kaakbeenmerg mesenchymale stamcellen (JBMMSC's) ontstaan uit neurale topcellen van het neuroectoderm, terwijl femur-afgeleide BMMSC's afkomstig zijn van het mesoderm7. Vergeleken met BMMSC's die zijn afgeleid van lange botten en de darmbeenkam, hebben JBMMSC's een hogere proliferatiesnelheid, ALP-activiteit en osteogeen potentieel8. Bovendien kan het toepassingseffect van BMMSC's in weefsels en organen variëren, afhankelijk van verschillende celtypen en omgevingen9. Herstel van kaakdefecten hangt voornamelijk af van de rekrutering van kaak-afgeleide mesenchymale stamcellen. Daarom kan het bestuderen van JBMMSC's een experimentele basis bieden voor de klinische toepassing ervan in de engineering van kaakbotweefsel10. Fundamenteel onderzoek en klinische toepassingen richten zich echter voornamelijk op BMMSC's die zijn afgeleid van appendiculaire en axiale botten11. Onderzoek naar JBMMSC's is beperkt, en dit kan te wijten zijn aan het lage gehalte aan poreus bot in de onderkaak en het feit dat de kaken van ratten nog minder poreus botgehalte hebben12. Daarom is het moeilijk om mesenchymale stamcellen uit het beenmerg van het kaakbot te scheiden met behulp van de gewone beenmergspoelmethode, die vaak wordt gebruikt bij het isoleren van BMMSC's uit appendiculaire botten of de darmbeenkam13. Op basis van de methoden van Hong et al.14 en Cheng et al.15 veronderstelden we dat de combinatie van dichte botvertering en de beenmergspoelmethode de JBMMSC's van ratten efficiënt zou kunnen isoleren.
Deze studie heeft tot doel een efficiënte methode vast te stellen voor het isoleren van JBMMSC's van ratten en voldoende zaadcelbronnen te bieden voor de engineering van kaakbotweefsel.
Protocol
Het protocol werd goedgekeurd door de Institutional Animal Ethics Committee van het Chinese PLA General Hospital. Voor het experiment werden dertien weken oude mannelijke Wistar-ratten gebruikt. Details over de dieren, reagentia en apparatuur staan vermeld in de Materiaaltabel.
1. Experimentele voorbereiding
- Steriliseer alle chirurgische instrumenten, inclusief oogscharen, pincetten en botgeuren, bij hoge temperatuur en druk.
- Bereid cultuurmedia van tevoren voor.
- Bereid α-MEM compleet medium met 10% foetaal runderserum (FBS) en 1% penicilline-streptomycine.
- Bereid 0,1% collagenase type II in fosfaatgebufferde zoutoplossing (PBS).
- Bereid 50 ml PBS met 1% penicilline-streptomycine in een steriele centrifugebuis van 50 ml voor eenmalig gebruik.
2. Isolatie en teelt van ratten-JBMMSC's
- Isoleer de onderkaak van de rat volgens de onderstaande stappen:
OPMERKING: Om de steriliteit van het monster te behouden, moeten alle metalen chirurgische instrumenten vóór gebruik ten minste drie seconden bij hoge temperatuur op een alcohollampvlam worden gedesinfecteerd.- Verdoof de rat met 2% pentobarbital-natrium (2 ml/kg) door middel van intraperitoneale injectie.
- Offer de verdoofde rat op door dislocatie van de halswervels (volgens institutioneel goedgekeurde protocollen) nadat de ademhalingsfrequentie is afgenomen en de spieren volledig zijn ontspannen.
- Dompel de rat 30 minuten onder in 75% ethanol om hem te desinfecteren en breng hem vervolgens over naar de ultraschone tafel.
- Leg de rat op een steriele wegwerpdoek of in een steriele container en houd hem in rugligging.
- Knip en scheid de huid en spier van de angulus oris tot het gewricht langs de ramus, en scheid vervolgens de condylus van de glenoïde fossa door de kaakgewrichtsschijf en bilaterale perifere ligamenten horizontaal door te knippen met een oogheelkundige schaar.
OPMERKING: Bepaal de positie van het kaakgewricht door de onderkaak te bewegen en de positie van de condylus uitwendig te observeren. - Knip en scheid de spieren en het bindweefsel van de laterale onderkaak met een schaar van de vestibulaire groef aan de buccale zijde van de onderste snijtanden naar de linker- en rechterkant.
- Snijd de linguale spieren van de onderkaak in van het linguale frenum naar het achterste deel van de onderkaak.
- Verwijder de onderkaak van de schedel.
- Verdeel de onderkaak in tweeën door de symfyse tussen de onderste snijtanden door te knippen met een oogheelkundige schaar.
- Verwijder de resterende aangehechte spieren, fascia en andere zachte weefsels op de onderkaak voorzichtig met behulp van een oogheelkundige schaar en pincet.
- Isoleer JBMMSC's.
- Plaats de snavel van de rongeur op de kruising van de snijtanden en het mesiale deel van de eerste kies, knip de verbinding tussen de onderste snijtanden en de onderkaak af met de rongeur en trek de onderste snijtanden volledig uit.
- Verwijder alle kiezen met een botgeur.
- Verwijder de mandibulaire ramus met een botrongeur en leg de mergholte bloot door het centrale deel van de onderkaak langs de distale rand van de laatste kies16 te scheiden.
- Zuig α-MEM compleet medium met een steriele wegwerpspuit van 1 ml. Steek de naald in de beenmergholte en spoel het beenmerg herhaaldelijk in de kweekschaal met α-MEM compleet medium totdat het bot wit wordt.
- Verzamel de beenmergspoeloplossing in een centrifugebuis van 15 ml en centrifugeer deze gedurende 3 minuten op 800 x g bij kamertemperatuur.
- Gooi het supernatans weg met een pipet, resuspendeer de cellen met 10 ml α-MEM compleet medium en plaats ze in een nieuw kweekschaaltje van 10 cm.
- Verdeel de gespoelde onderkaak in botschijfjes van 1-3 mm³ met een rongeur en verteer ze met 3 ml 0,1% type II collagenase gedurende 90 minuten in een shaker van 200 tpm/min bij 37 °C.
- Centrifugeer de verteerde onderkaak op 800 x g gedurende 3 minuten bij kamertemperatuur en gooi de supernatant weg.
- Kweek de geoogste cellen en verteerde botplakken met α-MEM compleet medium bij 37 °C in een 5% CO2 bevochtigde incubator.
- Vervang na 72 uur de helft van het kweekmedium door vers medium en vervang het vervolgens elke 2 dagen volledig.
NOTITIE: Verplaats de kweekschaal de eerste drie dagen niet. - Passage de aanhangende cellen in een verhouding van 1:2 wanneer ze 80%-90% confluentie bereiken. Verwijder botplakken tijdens de tweede subcultuur. Gebruik de cellen van de P2- of P3-generaties voor experimenten.
3. Flowcytometrie voor identificatie van markers op het celoppervlak
- Resuspendeer JBMMSC's van de P2-generatie in flowcytometriebuffer. Tel de cellen met behulp van een geautomatiseerde cellenteller en pas de concentratie aan naar 3 × 10⁶ cellen/ml.
- Voeg 100 μL celsuspensie en 2 μL monoklonale antilichamen (CD11b/c, CD29, CD34, CD44, CD45 en CD90) toe aan elke microcentrifugebuis. Incubeer gedurende 30 minuten bij 4 °C17,18.
- Was het monster twee keer met 200 μL flowcytometriebuffer en centrifugeer het gedurende 5 minuten op 250 x g bij kamertemperatuur. Verwijder het supernatant.
- Voeg 100 μL flowcytometriebuffer en 2 μL PE-gelabeld fluorescerend secundair antilichaam toe aan elke buis. Incubeer bij 4 °C gedurende 30 min.
- Herhaal stap 3.3.
- Resuspendeer JBMMSC's in 300-500 μL flowcytometriebuffer per buis.
- Voer de flowcytometrische analyse uit met behulp van een flowcytometer.
OPMERKING: Gebruik homologe antilichamen als negatieve controles om achtergrondkleuring te elimineren die wordt veroorzaakt door de niet-specifieke combinatie van antilichamen.
4. Bepaling van de celproliferatie
- Zaai JBMMSC's van de P3-generatie in een plaat met 96 putjes met een dichtheid van 5 × 10³ cellen per putje.
- Voeg 10 μL CCK-8-oplossing toe aan elk putje.
- Plaats de plaat met 96 putjes gedurende 2 uur in de incubator en meet de absorptie (OD-waarde bij 450 nm) met behulp van een microplaatlezer.
NOTITIE: Voer de test elke dag op hetzelfde tijdstip uit gedurende zeven opeenvolgende dagen.
5. Vermogen tot kolonievorming
- Zaai 1000 JBMMSC's uit doorgang 3 in 10 cm kweekschaaltjes en kweek bij 37 °C met 5% CO2.
- Verander het kweekmedium elke 3 dagen.
- Voer kristalvioletkleuring uit na continue teelt gedurende 15 dagen.
- Fixeer vervolgens de cellen met methanol gedurende 5 minuten en kleur ze gedurende 5 minuten met 2% kristalviolet.
6. Multilineage differentiatie van JBMMSC's
OPMERKING: Gebruik JBMMSC's van de P3-generatie voor differentiatie van meerdere afstammingslijnen. De controlegroep werd gekweekt met α-MEM compleet medium.
- Voer osteogene differentiatie uit.
- Inoculeer 1 × 10⁵ JBMMSC's per putje in een plaat met zes putjes.
- Wanneer de celsamenvloeiing 70% bereikt, verander dan het medium in osteogeen inductiemedium.
OPMERKING: Vervang het osteogene inductiemedium elke 3 dagen. - Voer alkalische fosfatase (ALP) kleuring uit na 7 dagen osteogene inductie.
- Verwijder het medium van de plaat met zes putjes, fixeer de cellen met 4% paraformaldehyde gedurende 30 minuten op kamertemperatuur en was ze vervolgens drie keer met PBS.
- Kleurig de cellen met ALP-kleuringsoplossing bij kamertemperatuur gedurende 30 minuten en bescherm ze tegen licht.
- Spoel de cellen af totdat er geen kleuroplossing meer over is en bekijk de monsters onder een microscoop.
- Voer Alizarin rode kleuring uit na 21 dagen osteogene inductie.
- Kleuring de cellen met Alizarin rode kleuringsoplossing gedurende 5 minuten na fixatie van de cellen met 4% paraformaldehyde gedurende 30 minuten.
- Was de cellen met PBS totdat er geen Alizarin rode kleuringsoplossing meer over is.
- Observeer het aantal calciumknobbeltjes onder een microscoop.
- Voer adipogene differentiatie uit.
- Inoculeer 1 × 10⁵ JBMMSC's per putje in een plaat met zes putjes.
- Wanneer de celsamenvloeiing 70% bereikt, verandert u het medium in adipogeen inductiemedium.
OPMERKING: Vervang het adipogene inductiemedium om de drie dagen. - Voer Olierode O-kleuring uit na 14 dagen adipogene inductie.
- Verwijder het medium van de plaat met zes putjes, fixeer de cellen met Oil red O fixeeroplossing gedurende 20-30 minuten en was ze vervolgens drie keer met PBS.
- Verwijder de fixeeroplossing en was de cellen twee keer met gedestilleerd water.
- Dompel de cellen onder in 60% isopropanol gedurende 20-30 s.
- Verwijder 60% isopropanol en kleur de cellen met Olie rood O kleuring gedurende 20-30 minuten.
- Verwijder de kleuringsoplossing, spoel de cellen met 60% isopropanol gedurende 20-30 s en was ze vervolgens met gedestilleerd water.
- Kleur de kern met hematoxyline-oplossing gedurende 1-2 minuten.
- Verwijder de hematoxyline-oplossing en was de cellen 2-3 keer met gedestilleerd water. Voeg Olie rode O buffer toe gedurende 1 minuut en verwijder deze.
- Bekijk het aantal lipidedruppeltjes onder een microscoop.
- Voer chondrogene differentiatie uit.
- Inoculeer 1 × 10⁵ JBMMSC's per putje in een plaat met zes putjes.
- Wanneer de celsamenvloeiing 70% bereikt, verander dan het medium in chondrogenisch inductiemedium.
OPMERKING: Vervang het chondrogene inductiemedium elke 3 dagen. - Voer Alcian-blauwkleuring uit na 21 dagen chondrogene inductie.
- Verwijder het medium van de plaat met zes putjes, fixeer de cellen met 4% paraformaldehyde gedurende 30 minuten op kamertemperatuur en was ze vervolgens drie keer met PBS.
- Kleuring van de cellen met Alcian-blauwkleuring bij 37 °C gedurende 1 uur.
- Spoel de cellen af totdat er geen kleuroplossing meer is en bekijk ze onder een microscoop.
7. PCR in realtime
- Extraheer totaal RNA met behulp van de RNA-extractiekit en meet de RNA-concentratie met een enzymmarker (volgens de instructies van de fabrikant).
- Synthese cDNA met behulp van 500 ng RNA19.
- Voer qRT-PCR uit op een real-time systeem met 10 μL qRT-PCR-mix met 1 μL cDNA, 3,5 μL dubbel gedestilleerd water, 5 μL SYBR en 0,5 μL primermix (0,1 μM).
OPMERKING: Primersequenties staan vermeld in Tabel 1. De thermische cyclusomstandigheden zijn als volgt: 50 °C gedurende 2 minuten, 95 °C gedurende 2 min, gevolgd door 40 cycli van 95 °C gedurende 15 s, 60 °C gedurende 2 minuten en vervolgens stappen van 0,5 °C gedurende 5 s van 60 °C tot 95 °C voor de smeltcurve. - Gebruik GAPDH als interne controle16.
Resultaten
Na 72 uur celinoculatie waren de meeste cellen gesuspendeerd en rond van vorm, en zeer weinig hechtten zich aan de wand (Figuur 1B). Tegen de vijfde dag verschenen aanhangende celkolonies, die spoelen of fibroblastachtige vormen vertoonden (Figuur 1C). Tegen de zevende dag bereikten de aanhangende cellen 90% samenvloeiing en vormden ze een "visschool"-vorm met een klein aantal intermitterende zwevende cellen (Figuur 1D). Gepassageerde cellen groeiden snel en werden elke 3 dagen gepasseerd. De celmorfologie was relatief homogeen, voornamelijk spoelvormig, en gerangschikt in een vortexachtig patroon na samenvloeiing (Figuur 1E-G).
Flowcytometrieanalyse onthulde hoge expressieniveaus van mesenchymale stamceloppervlaktemarkers CD90, CD29 en CD44, met positieve percentages van respectievelijk 97,2%, 97,7% en 95,7%. Omgekeerd vertoonden hematopoëtische stamceloppervlaktemarkers CD45, CD34 en CD11b/c een lage expressie, met positieve percentages van respectievelijk 1,37%, 0,66% en 1,49% (Figuur 2A). Na 2 weken cultuur vertoonden JBMMSC's kolonisatie, zoals blijkt uit kristalviolette kleuring (Figuur 2B). Ze vertoonden in vitro een stabiel expansievermogen, waarbij de celgroeicurve een typisch 'S-achtig' patroon volgde (Figuur 2C). Het celproliferatieproces omvatte een latente periode, logaritmische groeifase en plateaufase. De snelle groei begon na twee dagen, gevolgd door een vertraging na zes dagen. Individuele cellen vertoonden kenmerken van zelfreplicatie en proliferatie.
De cellen vertoonden blauw-paarse ALP-kleuringsdeeltjes op de 7edag en rode gemineraliseerde knobbeltjes op de21e dag. Bovendien vertoonden de cellen na 14 dagen adipogene inductie rode druppeltjes met parels, terwijl chondrogene differentiatie-inductie resulteerde in de vorming van blauw kraakbeenachtig weefsel (Figuur 3A). Bovendien waren na 7 dagen osteogene inductie de mRNA-expressieniveaus van ALP, OCN en Runx2 in JBMMSC's verhoogd15 (Figuur 3B).
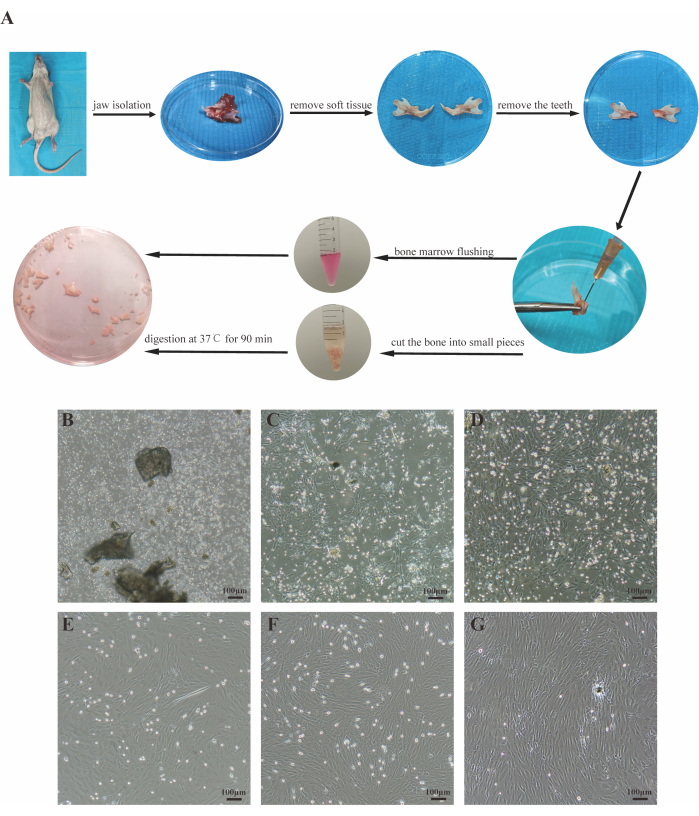
Figuur 1: Isolatie en cultuur van JBMMSC's. (A) Een overzicht van het protocol. (B-D) Afbeeldingen van cellen die respectievelijk 3 dagen, 5 dagen en 7 dagen in primaire cultuur zijn gekweekt. (E-G) Afbeeldingen van respectievelijk de P1-, P2- en P3-cellen. Schaal balken: 100 μm. Klik hier om een grotere versie van deze figuur te bekijken.
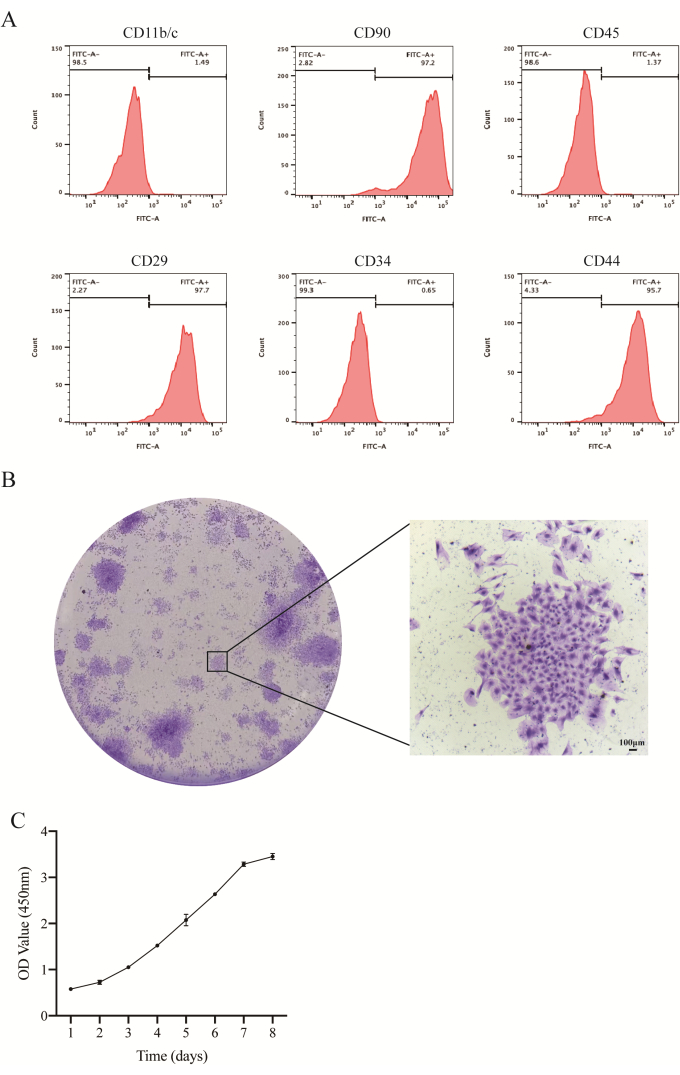
Figuur 2: Identificatie van JBMMSC's. (A) Flowcytometrie-analyseresultaten van JBMMSC's bij ratten. Uit flowcytometrie-analyse bleek dat deze cellen positief waren voor CD29, CD44 en CD90, in overeenstemming met de kenmerken van BMMSC's. Omgekeerd waren ze negatief voor CD11b/c, CD34 en CD45. (B) Representatieve beelden van JBMMSC-kolonies gekleurd met kristalviolet (schaalbalken: 100 μm). (C) De celgroeicurve toonde de celproliferatiesnelheid. De gegevens en de foutbalken geven het gemiddelde ± standaarddeviatie aan, n = 3. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 3: Multilineage (osteogene, adipogene en chondrogene) differentiatie van JBMMSC's. (A) Na 7 dagen osteogene inductie werd een verhoogde ALP-activiteit waargenomen. 21 dagen na osteogene inductie waren talrijke gemineraliseerde knobbeltjes rood gekleurd met Alizarine-rode kleuring. Olierode O-kleuring onthulde een aanzienlijk aantal lipidedruppeltjes. Alciaanse blauwe kleuring benadrukte de cellen die na chondrogene inductie in chondrocyten werden geïnduceerd. (B) mRNA-expressie van osteogeen gerelateerd gen ALP, OCN en Runx2 van JBMMSC's na osteogene inductie gedurende 7 dagen. (***P < 0,001, vs. de controlegroep). De gegevens en de foutbalken geven het gemiddelde ± standaarddeviatie aan, n = 3. Schaal balken: 100 μm. Klik hier om een grotere versie van deze figuur te bekijken.
| Gen | Primer sequenties (5'-3') |
| GADPH | F: ACCCAGAAGACTGTGGATGG |
| R: CACATTGGGGGTAGGAACAC | |
| ALP | F: CACGTTGACTGTGGTTACTGCTGA |
| R: CCTTGTAACCAGGCCCGTTG | |
| OCN | F: GGTGGTGAATAGACTCCGGC |
| R: GCAACACATGCCCTAAACGG | |
| Runx2 | F: GCACCCAGCCCATAATAGA |
| R: TTGGAGCAAGGAGAACCC |
Tabel 1: Primers gebruikt in Real-time PCR.
Discussie
Beenmerg mesenchymale stamcellen (BMMSC's) vertegenwoordigen een subset van niet-hematopoëtische stamcellen die zich in het beenmerg bevinden en worden gekenmerkt door hun zelfvernieuwend vermogen, multidirectioneel differentiatiepotentieel en ondersteunende functies voor hematopoëse. Deze cellen spelen een cruciale rol in verschillende fysiologische processen, zoals weefselregeneratie, angiogenese en de regulatie van cellulaire activiteiten20. Bijgevolg worden BMMSC's vaak gebruikt bij weefselherstel en regeneratieve engineering als een optimale zaadcelbron21.
Kaakbeenmerg mesenchymale stamcellen (JBMMSC's), oorspronkelijk geïsoleerd uit menselijke kaakbeenmergaspiraten in 2005 door Matsubara et al.22, vertonen onderscheidende differentiatiekenmerken die kunnen worden toegeschreven aan de unieke oorsprong en ontwikkelingspaden van de kaak in vergelijking met andere skeletplaatsen 4,23. Gezien de verschillende ontwikkelings- en pathologische mechanismen die craniofaciale botten beheersen, lijkt het absoluut noodzakelijk om prioriteit te geven aan JBMMSC's bij het herstel van craniofaciale botdefecten, vanwege hun homologe ontwikkelingskenmerken23. Bovendien vertonen JBMMSC's een verhoogde histocompatibiliteit met de orale micro-omgeving vanwege hun gedeelde embryonale weefseloorsprong24,25. Ondanks deze voordelen blijft een gestandaardiseerd en veilig isolatieprotocol voor JBMMSC's ongrijpbaar en blijft onderzoek naar JBMMSC's relatief beperkt.
De isolatie en teelt van BMMSC's is momenteel niet gestandaardiseerd, met algemeen gebruikte methoden zoals het sorteren van immunomagnetische kralen, het sorteren van flowcytometrie, centrifugeren met dichtheidsgradiënt en het kweken van hele beenmerghechting26. Hiervan isoleren de immunomagnetische parelmethode en de flowcytometrie-sorteermethode cellen door specifieke antigenen op het celoppervlak te herkennen. Deze methoden omvatten echter omslachtige operaties, vereisen gespecialiseerde instrumenten en kunnen de celactiviteit beïnvloeden ondanks het feit dat ze cellen met een hoge zuiverheid opleveren27. De dichtheidsgradiëntcentrifugatiemethode scheidt cellen door middel van centrifugatie en stratificatie, wat de micro-omgeving van de cel kan veranderen, wat leidt tot langzamere celgroei en verhoogde cellulaire veroudering28. Omgekeerd scheidt en zuivert de hele beenmerg-adherente kweekmethode BMMSC's door het medium met tussenpozen te vervangen en te passeren op basis van verschillende hechtingscapaciteiten tussen verschillende celtypen in het beenmerg. Deze methode brengt minimale schade toe aan cellen en is eenvoudig uit te voeren16.
In vergelijking met het dijbeen is de kaak kleiner van omvang en heeft hij een smallere beenmergholte, met interferentie van cellen in de tand of parodontaal ligament. De beenmergspoel- en adhesiemethode vereist een relatief grotere hoeveelheid beenmerg en is geschikt voor grote dieren en mensen29. JBMMSC's bij ratten die worden geëxtraheerd door toepassing van de traditionele beenmergspoelmethode zijn zeldzaam in aantal, prolifereren langzaam en van slechte kwaliteit30,31. Het gehalte aan JBMMSC's in het beenmerg is erg laag en ze worden voornamelijk aangetroffen in het compacte bot en endosteum. Bu-Kyu Lee et al.32 gebruikten de mandibulaire aspiraten om JBMMSC's te isoleren, terwijl de totale aspiratietijd voor 10 ml beenmergbloed voor de onderkaak vijf keer langer was dan die voor de darmbeenkam, en de initiële opbrengst van MSC's uit de onderkaak was drie keer lager dan die van de darmbeenkam. Het spoelen van het beenmerg alleen kan de cellen in het compacte bot en endosteum niet effectief isoleren.
In de afgelopen jaren hebben studies aangetoond dat compact bot een nieuwe en betrouwbare bron van BMMSC's is, en er is een relatief eenvoudige methode van BMMSC-isolatie afgeleid, de botschijfverteringscultuurmethode33. BMMSC's die met deze methode zijn geïsoleerd, hebben een hoge zuiverheid34. Guo et al.35hebben met succes mesenchymale stamcellen van botten geïsoleerd uit dijbenen van muizen met behulp van de botplakverteringscultuurmethode. Yamazaet al.12 en Cheng et al.15 pasten de botplakverteringscultuurmethode toe op de isolatie van mesenchymale stamcellen van het mandibulaire beenmerg van muizen en verifieerden MSC-eigenschappen door celproliferatie, immunofenotype en differentiatie van multilineage. Dit experiment gebruikte een combinatie van gespoelde verkleving van het hele beenmerg en botschijfvertering om primaire JBMMSC's van ratten te isoleren en te kweken. Het beenmerg werd grondig uit de holte gespoeld zonder filtratie om de oorspronkelijke cellulaire samenstelling en groeifactoren in het beenmerg te behouden. Vervolgens werden de botplakken in kleine stukjes gesneden en verteerd met behulp van type II collagenase om cellen te vergemakkelijken om uit botfragmenten te klimmen. Ten slotte werden de botplakken geënt op een kweekschaal en gekweekt om cellen uit de botplakken te laten kruipen. De combinatiemethode zorgt ervoor dat het kweeksysteem van de primaire cel tegelijkertijd componenten van hematopoëtische stamcellen, poreus bot en corticaal bot bevat, wat de micro-omgeving van mesenchymale stamcellen in het beenmerg in het lichaam beter kan simuleren en meer bevorderlijk is voor het behoud van de oorspronkelijke biologische kenmerken van cellen. Deze methode wordt daarom "een niche-gebaseerde benadering van stamheid" genoemd36. Luet al.37 benadrukte ook het belang van stamcelniches bij de isolatie van BMMSC's, maar ze betroffen alleen de micro-omgeving in het beenmerg zonder corticaal bot. Deze methode is met succes toegepast bij het isoleren van mesenchymale stamcellen uit het beenmerg van de kaak van muizen38.
We hebben ook met succes ratten-JBMMSC's geïsoleerd en gekweekt met deze niche-gebaseerde aanpak. Ten eerste vertoonden de geïsoleerde cellen een fibroblastachtige vorm en hechtten ze zich in vitro aan plastic kweekplaten. Ten tweede brachten de cellen de CD90-, CD29- en CD44-oppervlaktemarkers positief tot expressie en brachten ze CD45, CD34 en CD11b/c negatief tot expressie. Ten derde kunnen de cellen differentiëren in osteocyten, adipocyten en chondrocyten. De verkregen cellen hadden een goede morfologie, een snelle proliferatiesnelheid en differentiatievermogen, die voldeden aan de minimumcriteria voor het identificeren van van mensen afkomstige mesenchymale stamcellen voorgesteld door de International Society for Cellular Therapy17.
De isolatie van JBMMSC's is ontwikkeld en gebruikt om cellen bij mensen te isoleren. Matsubara et al.22 waren de eersten die JBMMSC's isoleerden uit menselijke alveolaire beenmergmonsters tijdens kaakchirurgie. Mogelijke complicaties kunnen optreden tijdens het aspiratieproces van de onderkaak, waaronder schade aan aangrenzend weefsel, infectie als gevolg van orale bacteriële besmetting, enz. Zong et al.39 spoelden de beenmergholte van de poreuze stukjes botmonster om menselijke JBMMSC's te verkrijgen. Park et al.40 isoleerden menselijke JBMMSC's uit alveolaire botschilfers verkregen tijdens implantaatboren met behulp van een sequentiële vergistingsmethode. Mason et al.41 isoleerden menselijke JBMMSC's rechtstreeks uit de kaak, beenmergkernen en aspiratie van patiënten die routinematige plaatsing van tandheelkundig implantaten ondergingen. Er was een hoog slagingspercentage van het isoleren van cellen uit aspiraten of kern en een hoger slagingspercentage van de combinatie. Hoewel de bovenstaande methoden JBMMSC's met succes van mensen hebben geïsoleerd, moeten de verschillen in effectiviteit tussen methoden worden vergeleken. Momenteel is deze gepresenteerde methode alleen gebruikt bij muizen en ratten en er is geen onderzoek gedaan naar het toepassen van deze methode op de isolatie van menselijke JBMMSC's. Er zijn beperkingen aan deze methode, vooral wanneer deze wordt toegepast op mensen. Ten eerste is deze methode om beenmergspoeling en botschijfvertering te combineren relatief ingewikkeld en vereist meer stappen. Ten tweede stellen complexe processen hogere eisen aan de steriliteit van operaties, wat van cruciaal belang is voor het protocol. Ten derde is het onmogelijk om de hele beenmergholte van het menselijk kaakbot te spoelen, dus het onderzoeken van enkele equivalente methoden, zoals het spoelen van cancellous botfragmenten, is noodzakelijk.
Samenvattend heeft deze studie met succes JBMMSC's van ratten geïsoleerd en gekweekt met behulp van een combinatie van beenmergspoeling en botschijfvertering op basis van het principe van 'stamcelniche'. De resultaten van de celidentificatie bevestigden dat deze methode voldoende en zeer zuivere JBMMSC's kan isoleren, waardoor voldoende celbronnen worden geboden voor de engineering van kaakbotweefsel, met name bij het herstel van botdefecten, wat van groot belang is.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Deze studie werd ondersteund door de gezondheidszorgprojecten van de logistieke afdeling van de Militaire Commissie (19BJZ22), de Beijing Natural Science Foundation (7232154) en de klinische onderzoeksprojecten van de Fourth Mil Med Univ. (2021XB025).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Alizarin Red S Solution 0.2% | Solarbio | G1450 | |
| BCIP/NBT Alkaline Phosphatase Color Development Kit | Beyotime | C3206 | |
| Bio-Rad CFX96 Real-Time System | Bio-Rad | ||
| CCK8 Kit | Dujindo | CK04 | |
| Cell culture dish 10 cm | Corning | 353003 | |
| Centrifuge | Eppendorf | 5810R | |
| Centrifuge Tube 15 mL | Corning | 430790 | |
| Centrifuge Tube 50 mL | Corning | 430828 | |
| CO2 incubator | Thermo Fisher | 3111 | |
| Constant-temperature oscillator | Shanghai Zhicheng Analysis Instrument Manufacturing Co., Ltd. | ZWY-100H | |
| Fetal bovine serum | BI | 04-001-1ACS | |
| Flow cytometer | BD | FACS C6 | |
| Inverted phase-contrast microscope | Olympus | CKX41 | |
| Mesenchymal Stem Cell (Rat) Surface marker Detection Kit | Oricell | RAXMX-09011 | |
| Multifunctional microplate reader | BioTek | Synergy LX Multi-Mode | |
| Oil Red O Stain Kit | Solarbio | G1262 | |
| Paraformaldehyde 4% | Solarbio | P1110 | |
| PBS | MACGENE | CC008 | |
| penicillin-streptomycin 0.25% | MACGENE | CC004 | |
| PowerUp SYBR Green Master Mix | Thermo Fisher | A25742 | |
| PrimeScript RT Master Mix | Takara | RR036A | |
| Rat Bone Marrow Mesenchymal Stem Cells Adipogenic Differentiation kit | Oricell | RAXMX-90031 | |
| Rat Bone Marrow Mesenchymal Stem Cells Chondrogenic Differentiation kit | Oricell | RAXMX-90041 | |
| Rat Bone Marrow Mesenchymal Stem Cells Osteogenic Differentiation kit | Oricell | RAXMD-90021 | |
| RNA extraction kit | TIANGEN | DP419 | |
| Super-clean bench | Beijing Yataikelong Instrument Technology Co. Ltd. | KLCZ-1220A | |
| Trypsin-EDTA 0.25% | MACGENE | CC012 | |
| Type II collagenase | Solarbio | C8150 | |
| Wistar rat | Beijing Yataikelong Instrument Technology Co. Ltd. | ||
| α-MEM culture medium | Gibco | C12571500BT |
Referenties
- Friedenstein, A. J., Petrakova, K. V., Kurolesova, A. I., Frolova, G. P. Heterotopic of bone marrow. Analysis of precursor cells for osteogenic and hematopoietic tissues. Transplantation. 6 (2), 230-247 (1968).
- Pittenger, M. F., et al. Multilineage potential of adult human mesenchymal stem cells. Science. 284 (5411), 143-147 (1999).
- Shao, J., Zhang, W., Yang, T. Using mesenchymal stem cells as a therapy for bone regeneration and repairing. Biol Res. 48, 62(2015).
- Aghaloo, T. L., et al. Osteogenic potential of mandibular vs. Long-bone marrow stromal cells. J Dent Res. 89 (11), 1293-1298 (2010).
- Mendi, A., Ulutürk, H., Ataç, M. S., Yılmaz, D. Stem cells for the oromaxillofacial area: Could they be a promising source for regeneration in dentistry. Adv Exp Med Biol. 1144, 101-121 (2019).
- Couly, G. F., Coltey, P. M., Le Douarin, N. M. The triple origin of skull in higher vertebrates: A study in quail-chick chimeras. Development. 117 (2), 409-429 (1993).
- Leucht, P., et al. Embryonic origin and hox status determine progenitor cell fate during adult bone regeneration. Development. 135 (17), 2845-2854 (2008).
- Jeyaraman, M., et al. Is mandible derived mesenchymal stromal cells superior in proliferation and regeneration to long bone-derived mesenchymal stromal cells. World J Methodol. 13 (2), 10-17 (2023).
- Mouraret, S., et al. The potential for vertical bone regeneration via maxillary periosteal elevation. J Clin Peri.odontol. 41 (12), 1170-1177 (2014).
- Li, T. Q., Meng, X. B., Shi, Q., Zhang, T. Research progress in biological characteristics and influencing factors of jaw bone marrow mesenchymal stem cell. Zhonghua Kou Qiang Yi Xue Za Zhi. 57 (1), 107-112 (2022).
- Arthur, A., Gronthos, S. Clinical application of bone marrow mesenchymal stem/stromal cells to repair skeletal tissue. Int J Mol Sci. 21 (24), 9759(2020).
- Yamaza, T., et al. Mouse mandible contains distinctive mesenchymal stem cells. J Dent Res. 90 (3), 317-324 (2011).
- Chen, L., et al. Directional homing of glycosylation-modified bone marrow mesenchymal stem cells for bone defect repair. J Nanobiotechnology. 19 (1), 228(2021).
- Hong, Y., et al. Isolation and cultivation of mandibular bone marrow mesenchymal stem cells in rats. J Vis Exp. (162), e61532(2020).
- Cheng, B., et al. Isolation, culture and biological characteristics of high-purity orofacial-bone-derived mesenchymal stem cells of the rats. Zhongguo Zuzhi Gongcheng Yanjiu. 25 (1), 67-72 (2021).
- Lee, D. J., et al. Osteogenic potential of mesenchymal stem cells from rat mandible to regenerate critical sized calvarial defect. J Tissue Eng. 10, 2041731419830427(2019).
- Dominici, M., et al. Minimal criteria for defining multipotent mesenchymal stromal cells. The international society for cellular therapy position statement. Cytotherapy. 8 (4), 315-317 (2006).
- Fathi, E., Mesbah-Namin, S. A., Vietor, I., Farahzadi, R. Mesenchymal stem cells cause induction of granulocyte differentiation of rat bone marrow c-kit(+) hematopoietic stem cells through jak3/stat3, erk, and pi3k signaling pathways. Iran J Basic Med Sci. 25 (10), 1222-1227 (2022).
- Xu, W., et al. Exosomes from microglia attenuate photoreceptor injury and neovascularization in an animal model of retinopathy of prematurity. Mol Ther Nucleic Acids. 16, 778-790 (2019).
- Chu, D. T., et al. An update on the progress of isolation, culture, storage, and clinical application of human bone marrow mesenchymal stem/stromal cells. Int J Mol Sci. 21 (3), 708(2020).
- Liu, Y., et al. Systemic infusion of mesenchymal stem cells improves cell-based bone regeneration via upregulation of regulatory T cells. Tissue Eng Part A. 21 (3-4), 498-509 (2015).
- Matsubara, T., et al. Alveolar bone marrow as a cell source for regenerative medicine: Differences between alveolar and iliac bone marrow stromal cells. J Bone Miner Res. 20 (3), 399-409 (2005).
- Zhang, G., Li, Q., Yuan, Q., Zhang, S. Spatial distributions, characteristics, and applications of craniofacial stem cells. Stem Cells Int. 2020, 8868593(2020).
- Akintoye, S. O. The distinctive jaw and alveolar bone regeneration. Oral Dis. 24 (1-2), 49-51 (2018).
- Park, J. B., Kim, I., Lee, W., Kim, H. Evaluation of the regenerative capacity of stem cells combined with bone graft material and collagen matrix using a rabbit calvarial defect model. J Periodontal Implant Sci. 53 (6), 467-477 (2023).
- Ni, X., et al. Isolation, culture and identification of SD rat bone marrow mesenchymal stem cells in tissue engineering. Materials Exp. 12, 817-822 (2022).
- Abdallah, B. M., Khattab, H. M. Recent approaches to isolating and culturing mouse bone marrowderived mesenchymal stromal stem cells. Curr Stem Cell Res Ther. 16 (5), 599-607 (2021).
- Tan, S. L., Ahmad, T. S., Selvaratnam, L., Kamarul, T. Isolation, characterization and the multilineage differentiation potential of rabbit bone marrow-derived mesenchymal stem cells. J Anat. 222 (4), 437-450 (2013).
- Mason, S., Tarle, S. A., Osibin, W., Kinfu, Y., Kaigler, D. Standardization and safety of alveolar bone-derived stem cell isolation. J Dent Res. 93 (1), 55-61 (2014).
- Kagami, H., Agata, H., Tojo, A. Bone marrow stromal cells (bone marrow-derived multipotent mesenchymal stromal cells) for bone tissue engineering: Basic science to clinical translation. Int J Biochem Cell Biol. 43 (3), 286-289 (2011).
- Liu, J., Watanabe, K., Dabdoub, S. M., Lee, B. S., Kim, D. G. Site-specific characteristics of bone and progenitor cells in control and ovariectomized rats. Bone. 163, 116501(2022).
- Lee, B. K., Choi, S. J., Mack, D., Oh, S. H. Isolation of mesenchymal stem cells from the mandibular marrow aspirates. Oral Surg Oral Med Oral Pathol Oral Radiol Endod. 112 (6), e86-e93 (2011).
- Zhu, H., et al. A protocol for isolation and culture of mesenchymal stem cells from mouse compact bone. Nat Protoc. 5 (3), 550-560 (2010).
- Short, B. J., Brouard, N., Simmons, P. J. Prospective isolation of mesenchymal stem cells from mouse compact bone. Methods Mol Biol. 482, 259-268 (2009).
- Guo, Z., et al. In vitro characteristics and in vivo immunosuppressive activity of compact bone-derived murine mesenchymal progenitor cells. Stem Cells. 24 (4), 992-1000 (2006).
- Pal, B., Das, B. In vitro culture of naïve human bone marrow mesenchymal stem cells: A stemness based approach. Front Cell Dev Biol. 5, 69(2017).
- Lu, L. L., et al. Isolation and characterization of human umbilical cord mesenchymal stem cells with hematopoiesis-supportive function and other potentials. Haematologica. 91 (8), 1017-1026 (2006).
- Cao, W., et al. Mir-344d-3p regulates osteogenic and adipogenic differentiation of mouse mandibular bone marrow mesenchymal stem cells. PeerJ. 11, e14838(2023).
- Zong, C., Zhao, L., Huang, C., Chen, Y., Tian, L. Isolation and culture of bone marrow mesenchymal stem cells from the human mandible. J Vis Exp. (182), e63811(2022).
- Park, J. C., et al. Acquisition of human alveolar bone-derived stromal cells using minimally irrigated implant osteotomy: In vitro and in vivo evaluations. J Clin Periodontol. 39 (5), 495-505 (2012).
- Mason, S., Tarle, S. A., Osibin, W., Kinfu, Y., Kaigler, D. Standardization and safety of alveolar bone-derived stem cell isolation. J Dent Res. 93 (1), 55-61 (2014).
Herprints en machtigingen
