Om de evolutie van taal te bestuderen, is het belangrijk om hersenmechanismen bij mensen te vergelijken met die bij niet-menselijke primaten. We ontwikkelden een methode om op een niet-invasieve manier de elektro-encefalografie (EEG) van wakkere dieren te meten. Het stelt ons in staat om EEG-gegevens tussen mens en dier op de lange termijn direct te vergelijken zonder ze te schaden.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Elektro-encefalografiemetingen bij wakkere zijdeaapjes die luisteren naar specifieke vocalisaties
In dit artikel
Samenvatting
Samenvatting
Vocale communicatie speelt een cruciale rol in de sociale interacties van primaten, met name bij overleving en sociale organisatie. Mensen hebben een unieke en geavanceerde vocale communicatiestrategie ontwikkeld in de vorm van taal. Om de evolutie van de menselijke taal te bestuderen, is het noodzakelijk om de neurale mechanismen te onderzoeken die ten grondslag liggen aan vocale verwerking bij mensen, en om te begrijpen hoe hersenmechanismen zijn geëvolueerd door ze te vergelijken met die van niet-menselijke primaten. Hierin ontwikkelden we een methode om de elektro-encefalografie (EEG) van wakkere niet-menselijke primaten niet-invasief te meten. Deze registratiemethode maakt langetermijnstudies mogelijk zonder de dieren schade toe te brengen, en, belangrijker nog, stelt ons in staat om EEG-gegevens van niet-menselijke primaten direct te vergelijken met menselijke gegevens, waardoor inzicht wordt verkregen in de evolutie van de menselijke taal. In de huidige studie gebruikten we de hoofdhuid-EEG-opnamemethode om hersenactiviteit te onderzoeken als reactie op soortspecifieke vocalisaties bij zijdeaapjes. Deze studie biedt nieuwe inzichten door hoofdhuid-EEG te gebruiken om wijdverspreide neurale representaties in zijdeaapjes vast te leggen tijdens vocale perceptie, waardoor hiaten in bestaande kennis worden opgevuld.
Inleiding
Primaten gebruiken soortspecifieke vocalisaties om biologisch belangrijke informatie over te brengen, zoals de emotionele toestand van de beller of de intentie om sociale banden te onderhouden, de aanwezigheid van roofdieren of andere gevaarlijke situaties. Onderzoek naar de neurale mechanismen die ten grondslag liggen aan de perceptie van vocalisatie bij vocale niet-menselijke primaten kan ons cruciale aanwijzingen geven om de evolutionaire oorsprong van menselijke taal beter te begrijpen.
Gewone zijdeaapjes zijn kleine primaten afkomstig uit Zuid-Amerika. In de afgelopen jaren worden zijdeaapjes steeds vaker gebruikt als modeldieren, naast makaakapen, vanwege hun hoge reproductie, gebruiksgemak vanwege hun kleine formaat en de ontwikkeling van nuttige transgene technieken 1,2,3. Naast hun bruikbaarheid als ziektemodellen is rijke vocale communicatie binnen groepen een ander uniek kenmerk van deze soort 4,5,6,7. Marmosets wisselen routinematig vocale signalen uit om te communiceren met onzichtbare soortgenoten in het bos. Door de hersenactiviteit te onderzoeken die betrokken is bij vocale waarneming en productie bij zijdeaapjes, kunnen we bepalen hoe ze de auditieve informatie van hun eigen of specifieke oproepen in de hersenen verwerken en identificeren welke neurale circuits erbij betrokken zijn. Eerdere studies hebben neurale activiteit aangetoond in de primaire auditieve cortex 8,9,10,11,12 en frontale cortex 13,14 die betrokken zijn bij de vocale productie bij zijdeaapjes. Bovendien werden deze opgewonden en onderdrukte neuronale reacties gemoduleerd door auditief-vocale interacties in de primaire auditieve cortex 8,10. Deze studies leverden gedetailleerde neurale activiteitsgegevens op het niveau van één neuron met behulp van invasieve registratiemethoden. Talrijke studies hebben de neurale activiteit die betrokken is bij de vocale productie van zijdeaapjes verder onderzocht; Vocale perceptie blijft echter slecht begrepen15,16.
Verschillende niet-invasieve hersenbeeldvormingsonderzoeken hebben de neurale mechanismen van vocale verwerking bij zijdeaapjes opgehelderd 17,18,19; Hun hoge ruimtelijke resolutie is een voordeel, maar om dieren tijdens het scannen in wakkere toestand te houden, zijn geavanceerde technieken nodig. Echter, meer recentelijk, Jafari et al. identificeerden frontotemporale regio's die betrokken zijn bij vocale perceptie bij wakkere zijdeaapjes met behulp van functionele magnetische resonantiebeeldvorming (fMRI)19. Bijna alle experimenten om de hersenfuncties op te helderen die betrokken zijn bij vocale perceptie en productie bij mensen zijn uitgevoerd met behulp van niet-invasieve methoden, zoals elektro-encefalografie van de hoofdhuid (EEG), magneto-encefalografie (MEG)20,21 en fMRI 22,23,24. Talrijke studies bij mensen hebben hersenactiviteit onderzocht die verband houdt met vocale perceptie met behulp van EEG. De meeste van deze onderzoeken hebben zich gericht op emotionele informatie 25,26,27 en de opvallendheid van emotionele woorden 28, waarbij de resultaten veranderingen in gebeurtenisgerelateerde potentialen tijdens vocale perceptie onthullen29. Elektrocorticografie (ECoG) en opnames van één neuron met behulp van intracraniaal geïmplanteerde elektroden bij mensen zijn alleen uitgevoerd in een beperkt aantal experimenten bij patiënten die een neurochirurgische behandeling ondergaan30,31.
Een evolutionair perspectief waarin mensen met apen worden vergeleken, is belangrijk bij het begrijpen van de unieke neurale mechanismen die ten grondslag liggen aan vocale perceptie en productie die zich bij mensen hebben ontwikkeld. Om de neurale mechanismen die betrokken zijn bij spraakperceptie en vocalisatie bij vocaal-rijke niet-menselijke primaten, zoals de zijdeaapje, direct te vergelijken met mensen, is het belangrijk om gegevens tussen de twee soorten te vergelijken met behulp van dezelfde methode. Functionele MRI maakt beeldvorming van de hele hersenen mogelijk en heeft een hoge ruimtelijke resolutie. Het heeft het voordeel dat het activiteit registreert die loodrecht op de schedel staat of in diepe gebieden die moeilijk te registreren zijn met EEG of MEG. De MRI-machine is echter duur om te installeren en te onderhouden, en er zijn veel beperkingen aan de stimuli die kunnen worden gepresenteerd vanwege de aard van het apparaat. Ter vergelijking: EEG, event-related potentials (ERP's) en MEG hebben een hoge temporele resolutie, waardoor ze nuttig zijn voor het analyseren van vocale verwerking van tijdreeksen. EEG heeft met name de voordelen van een hoge mobiliteit en de mogelijkheid om in verschillende experimentele omgevingen te worden gebruikt, relatief lage kosten en de vereiste voor slechts één operator.
Aangezien er al een grote hoeveelheid EEG-gegevens bij mensen is verkregen, zijn EEG-meetmethoden met behulp van niet-invasieve paradigma's nodig voor niet-menselijke primaten. Onze onderzoeksgroep ontwikkelde een unieke niet-invasieve EEG-opnamemethode met behulp van buisjes32 voor makaken en zijdeaapjes. Hier rapporteren we verschillende nieuwe bevindingen met betrekking tot auditieve verwerking bij niet-menselijke primaten 33,34,35,36,37. Om de hersenactiviteit te karakteriseren als reactie op soortspecifieke vocalisaties in zijdeaapjes, hebben we een experimenteel systeem geconstrueerd om niet-invasief hersenactiviteit vast te leggen met behulp van elektroden die op de hoofdhuid worden geplaatst. In deze studie beschrijven we de EEG-meetmethode voor zijdeaapjes.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Alle experimenten zijn goedgekeurd door de Commissie dierproeven van EHUB (nr. 2022-003, 2023-104) en uitgevoerd in overeenstemming met de door EHUB gepubliceerde Gids voor de verzorging en het gebruik van laboratoriumprimaten. Negen gewone zijdeaapjes (Callithrix jacchus, zes mannetjes en drie vrouwtjes, 2-12 jaar oud, met een gewicht van 330-490 g) werden gebruikt voor het experiment.
1. Dieren
- Huisvest de zijdeaapjes in eenpersoonskooien die zijn uitgerust met nestkasten, houten zitstokken en andere verrijkingsapparaten.
- Houd de kamers onder een licht-donkercyclus van 12 uur, waarbij de temperatuur en vochtigheid op respectievelijk 28 ± 2 °C en 40 ± 20% worden gehouden.
- Voer de dieren tweemaal daags 14 g apenkorrels uit de Nieuwe Wereld, aangevuld met voer zoals Arabische gom en meelwormen. Zorg voor water ad libitum.
- Voer alle experimenten uit in een geluidgedempte box in een experimenteerruimte.
2. Apparatuur (Figuur 1B en Tabel met materialen)
- Gebruik zilverelektroden van 4 mm. De AgCl-coating op het elektrodeoppervlak voorkomt polarisatie en zorgt voor een stabiele opname.
- Gebruik een versterker om de EEG-signalen op te nemen. Bandpass-filter (0.016-250 Hz) en bemonstert de gegevens op 1.000 Hz.
- Sluit een 64-kanaals elektrode-invoerbox aan op de versterker en plaats deze voor het onderwerp.
- Plaats de luidspreker op 30 cm van de zijdeaapkop en regel het geluidsniveau op 65-75 dB, gemeten in de oorpositie. Lever de auditieve prikkels via deze luidspreker.
- Plaats de camera voor het onderwerp om hun toestand tijdens de EEG-opname te controleren.
- De primatenstoel is gemaakt van acrylplaten en palen van kunsthars. Laat de onderzoeker voor de experimenten de dieren vasthouden terwijl ze op de voetplaat zitten; Plaats nu een halsstuk en bevestig het aan het nekpaneel, en plaats en bevestig het taillestuk aan het taillepaneel. Zorg ervoor dat het hele lichaam van elke zijdeaapje losjes is vastgezet.
3. Anesthesie
- Verdoof de dieren met een intramusculaire injectie van alfaxalone (6-8 mg/kg) en atropine (0,05 mg/kg). Met dit protocol kan de anesthesie ongeveer 20 minuten worden volgehouden. Dien extra doses alfaxalone toe om de duur van de anesthesie te verlengen als de procedure langer duurt. Dien ook vooraf anti-emetica (Maropitant 1 mg/kg, subcutane injectie) toe om de misselijkheid tegen te gaan, wat een bijwerking is van alfaxalone.
OPMERKING: Marmosets moeten tijdens de procedures onder injectie- of inhalatie-anesthesie zijn en moeten onmiddellijk na het scheren van het haar kunnen herstellen. - Bewaak de vitale functies met een pulsoximeter en dien indien nodig zuurstof-luchtmengsel toe (O2 0,5 l/min, lucht 0,5 l/min).
- Houd de kamertemperatuur boven 27 °C en wikkel een warme doek om het lichaam van het zijdeaapje om onderkoeling te voorkomen.
4. Ontharing
- Scheer het hele hoofd (ook achter de oorschelp) met een elektrisch scheerapparaat.
- Breng ontharingscrème aan voor de gevoelige huid. Veeg de crème na 5 minuten af met een nat gaasje.
5. Voorbereiding van het masker
- Verwerk van tevoren een thermoplastisch masker zodat het past bij de grootte van de apenstoel. Boor met name het deel van de rugleuning dat uit de verticale lengte van de stoel steekt met vier schroefgaten, zodat het aan de nekplaat van de stoel kan worden bevestigd.
OPMERKING: Thermoplastische maskers zijn veilig en kunnen worden gebruikt om het hoofd te immobiliseren tijdens bestralingstherapie bij patiënten. We gebruikten een klein masker dat was ontworpen voor kinderen en sneden het op maat van de zijdeaapjes. Dit masker wordt zachter wanneer het in warm water van 75 °C wordt geplaatst en hardt uit als de temperatuur daalt wanneer het uit het water wordt gehaald. - Zet de dieren voor de experimenten in een primatenstoel. Ondersteun het verdoofde dier met behulp van nek- en heupplaten en bevestig het dier en deze platen aan de stoel.
- Verwarm het masker in heet water en vorm het vervolgens zodat het op de kop van het zijdeaapje past. Nadat u het masker uit het warme water hebt gehaald, wacht u tot de temperatuur is gedaald (ongeveer in het bereik van 50 °C) om brandwonden te voorkomen en plaatst u het vervolgens op het hoofd van de proefpersoon om het masker te vormen.
- Maak na afkoeling en uitharding het masker los van het dier en knip de bovenkant van de kop en het oor van het masker uit om het gebied voor de elektrode-instelling bloot te leggen.
OPMERKING: Nadat dit masker was gemaakt, kon het op andere personen worden gebruikt.
6. Aanpassing van stoel en masker (30 min/dag gedurende 3 dagen)
- Laat het dier onder wakkere omstandigheden aan de stoel wennen door het in een stoel te plaatsen en het ongeveer 30 minuten te belonen. Herhaal deze procedure gedurende 3 dagen.
- Wen het dier aan de kop fixatie met behulp van het masker gedurende 2 dagen.
OPMERKING: Dit aanpassingsproces is aangepast aan de toestand van het individu. Na de aanpassing kunnen de dieren zich tijdelijk verzetten tijdens het vangen en het instellen van het hoofdmasker, maar zodra ze in de stoel zitten en hun hoofd is gefixeerd, worden ze rustig. - Evalueer tijdens het aanpassen van de stoel de volgende gedragsparameters: i) emissie van angstige of alarmerende geluiden, ii) afwijzing van de aangeboden beloning en iii) gewelddadige bewegingen. Als een van deze gedragingen wordt waargenomen, beëindig dan de sessie voor die dag, zodat de zijdeaap zich geleidelijk kan aanpassen aan de experimentele omgeving.
7. EEG-opname (2 uur/dag)
- Voorbereiding van het onderwerp
- Bevestig een transferkooi aan een klein venster van de thuiskooi en verplaats het zijdeaapje van de thuiskooi naar de transferkooi, meestal vanzelf. Bedek de draagkooi met een doek en breng deze over naar de experimenteerruimte.
- Fixatie van het hoofd
- Leg het zijdeaapje vast met beschermende handschoenen en leg het in de speciale stoel.
- Plaats het voorbereide masker op de kop van de zijdeaap. Steek het schroeflichaam dat aan de stoel is bevestigd door het gat in het masker en bevestig het met duimschroeven.
- Zet het hoofd en masker lichtjes vast met een band net onder de neus.
OPMERKING: Het hoofd van de proefpersoon hoefde niet volledig te worden gefixeerd zolang de elektroden niet door beweging werden verwijderd. Daarom hebben we voor alle onderwerpen hetzelfde masker gebruikt.
- Definitie van de locatie van elektroden
- Gebruik de neus, inion en oorlellen als anatomische oriëntatiepunten om de locatie van de elektroden te bepalen volgens de Internationale 10-20 methode 32,33,34,35,36,37. Meet de afstand tussen de nasion en inion in de middellijn met een meetlint. Definieer de locatie van Cz in het midden van de afstand. Plaats de andere elektroden (Fz, Pz, Oz, F3 of F4) met 20% van de inion-neion-lengte als de afstand tussen de elektrode. Markeer de elektrodeposities op de hoofdhuid met behulp van een dermatograaf op oliebasis.
- Voorbereiding van de huid
- Wrijf over het gemarkeerde gebied met een dun wattenstaafje gedrenkt in ontsmettingsalcohol om vuil en talg van de hoofdhuid te verwijderen.
- Elektrode instellingen
NOTITIE: Voer de stappen 7.2.1-7.2.3 uit op alle elektrodeposities om elektroden op Fz, Cz, C3, C4, Pz, A1, A2 en F3 (of F4) te plaatsen.- Snijd met een buissnijder een stuk siliconen buis met een binnendiameter van 4 mm en een buitendiameter van 7 mm in een lengte van ongeveer 20 mm.
- Breng lijm aan op de randen van de gesneden buis en plak deze op de hoofdhuid.
- Vul de binnenkant van de tube met EEG-gel met behulp van een spuit en een niet-puntige spuitnaald.
- Sluit de referentie-elektrode aan op Pz en de aardelektroden op F3 of F4 (Figuur 1C).
- Steek de elektroden in de buis en sluit de elektrodekabel aan op de invoerdoos.
- Start de applicatie voor EEG-opnames om de impedantie van de elektrode te meten en pas de parameters aan om ervoor te zorgen dat alle elektroden lager zijn dan 5 kΩ.
- Bundel de elektrodekabels om het geluid te verminderen.
- Geef beloningen tijdens de immobilisatieprocedure van het hoofd en tussen taaksessies door handmatig 1-3 ml van de vloeibare beloning (kauwgom of voeding) toe te dienen met een spuit.
- Geef het bestand op dat moet worden opgeslagen in de EEG-opnamesoftware en druk op de knop Opname starten . Voer het script voor stimuluspresentatie onmiddellijk uit nadat de EEG-opname is gestart. Druk op de stopknop op de EEG-opname wanneer de uitvoering van het stimuluspresentatiescript is voltooid om alle opnames te beëindigen. Wanneer de opname is voltooid, verwijdert u de elektroden en het hoofdmasker.
- Vang de dieren en breng ze terug naar hun draagkooien. Laat de buisjes op de hoofdhuid zitten; Alle buizen vielen er op natuurlijke wijze af in ongeveer 1 dag.
OPMERKING: In de beginperiode gebruikten we aceton om de lijm op te lossen en de tube na de opnamesessies te verwijderen; Er waren echter gevallen van huidletsel; Daarom hebben we de dieren vervolgens teruggebracht naar hun thuiskooien zonder de buis te verwijderen. In de tientallen experimenten die we tot nu toe hebben uitgevoerd, hebben zijdeaapjes geen interesse getoond in de verwijderde buisjes en is er nooit per ongeluk ingeslikt. - Prikkel
- Neem natuurlijke, eenvoudige en samengestelde oproepen op in de gevangenschap of experimentele kamer van zijdeaapjes die niet worden gebruikt in latere EEG-opnames. Extraheer drie soortspecifieke enkelvoudige en samengestelde aanroepen (Phee-, Tsik-Ek- en Tsik-String5-aanroepen ) uit de opgenomen bestanden.
- Creëer naast de oproepstimuli witte ruis met behulp van een functie in de programmeersoftware en gebruik dat als stimulus.
- Om dit protocol te volgen, gebruikt u drie auditieve bestanden (16 bit, 48 kHz) met zijdeaapjes in het experiment. Beheer de taak met behulp van een aangepast script.
OPMERKING: Elk blok bevat 50 oproepen voor elke stimulus, voor een totaal van 200 oproepen. Elk opnameblok duurt ongeveer 10 minuten. Elke deelnemer moet twee blokken uitvoeren. Het interval tussen gesprekken is 3 s. Van de vier audio-stimulusbestanden (zie aanvullend bestand 1) was de Phee-oproepstimulus ongeveer 2 s lang, terwijl de andere drie ongeveer 1 s lang waren. Dit kwam omdat een enkele Phee-oproep nog steeds een langdurige oproep is (Figuur 1D). - In elk geluidsstimulusbestand bevat het rechterkanaal de oproep- of ruisgegevens van het zijdeaapje en het linkerkanaal het triggersignaal voor het begin van de stimulus. Stuur dit triggersignaal via een synchronisatieapparaat naar het EEG-opnamesysteem en registreer het als gebeurtenistijd.
8. Gegevensanalyse
OPMERKING: De originele code die in de programmeersoftware en toolbox is geschreven, is gebruikt om de EEG-gegevens na te bewerken, zoals hieronder beschreven (aanvullend bestand 2)37.
- Preprocessing
- Referentie opnieuw naar de referentie van het gekoppelde oor.
- Hoogdoorlaatfilter bij 2 Hz.
- Epoch van 100 ms voor tot 1000 ms na het begin van de stimulus.
- Basislijn correct naar het gemiddelde van de prestimulusperiode van 100 ms. Verwerp artefacten met behulp van een criterium van ±150 μV.
- Event-related potentieel in kaart brengen (ERP)
- Neem het gemiddelde van alle onderzoeksgegevens voor elke proefpersoon.
- Verkrijg groepsgemiddelde golfvormen door het gemiddelde te nemen van alle onderwerpen.
- Om de gemiddelde ERP's tussen gesprekstypen en ruisstimuli te vergelijken, past u een eenrichtingsvariantieanalyse (ANOVA) toe met stimuli als de factor tussen proefpersonen in de Cz-respons.
- Pas post hoc meervoudige vergelijkingsanalyse toe met de methode van Tukey.
- Plotten van gebeurtenisgerelateerde spectrale verstoring (ERSP)
- Bereken de ERSP om de gemiddelde gebeurtenisgerelateerde verandering in spectraal vermogen in de loop van de tijd in een breed frequentiebereik te visualiseren met behulp van vergelijking (1). Fk (f,t) is de spectrale schatting van proef k bij frequentie f en tijdstip t:
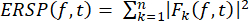 (1)
- Pas tijd-frequentie-decompositie toe op de activiteiten met behulp van sinusvormige wavelettransformaties, met drie lengtecycli op de laagste frequentie (10 Hz), lineair toenemend met frequentie tot 32 cycli op de hoogste frequentie (120 Hz).
- Definieer de initiële en voorbijgaande responsen in een periode van 150 ms na het begin van de stimulus bij 2-30 Hz, en de aanhoudende responsen in een periode van 800 ms van 151 tot 950 ms na het begin van de stimulus bij 40-100 uur.
- Om de verschillen in initiële en aanhoudende responsen in de Fz en Cz tussen proefpersonenleeftijden en oproeptypen te testen, voert u een tweerichtings-ANOVA uit met behulp van het oproeptype als de factor binnen het onderwerp en leeftijden als de factor tussen de proefpersonen.
- Bereken de ERSP om de gemiddelde gebeurtenisgerelateerde verandering in spectraal vermogen in de loop van de tijd in een breed frequentiebereik te visualiseren met behulp van vergelijking (1). Fk (f,t) is de spectrale schatting van proef k bij frequentie f en tijdstip t:
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Eerst hebben we de gemiddelde event-related potentials (ERP's) uitgezet voor elke auditieve stimulus in de zijdeaapjes (Figuur 2). Het auditief opgewekte potentieel (AEP) was prominent aanwezig in de toestand Lawaai , wat het duidelijke begin van de stimuli weerspiegelt (zie figuur 1D). Om de gemiddelde ERP's tussen gesprekstypen en ruisstimuli te vergelijken, pasten we een eenrichtingsvariantieanalyse (ANOVA) toe met stimuli als de between-subject-fact...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Aandachtspunten over anesthesie
Er is geprobeerd zowel ketamine als xylazine toe te dienen, en hoewel deze pijnstillend zijn en daarom geschikt zijn voor lange pijnlijke taken, hebben zijdeaapjes de neiging om een daling van het zuurstofgehalte in het bloed te ervaren zonder zuurstofinhalatie44. Kortom, alfaxalon is waarschijnlijk het meest geschikt voor pijnloze taken zoals scheren of het maken van maskers. Bovendien zou voor het scheren, dat slechts 10-15 minuten duurt, inhal...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben geen belangenconflicten bekend te maken.
Dankbetuigingen
Dit werk werd ondersteund door het Hakubi-project van de Universiteit van Kyoto, Grant-in-Aid for Challenging Research (Pioneering) (No.22K18644), Grant-in-Aid for Scientific Research (C) (No. 22K12745 ), Grant-in-Aid for Scientific Research (B) (No. 21H02851) en Grant-in-Aid for Scientific Research (A) (No. 19H01039). We willen Editage (www.editage.jp) bedanken voor de Engelstalige redactie.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Alfaxalone | Meiji Animal Health | Alfaxan | |
| Amplifier | Brain Products | BrainAmp | |
| Atropine | Fuso Pharmaceutical Industries | Atropine Sulfate Injection | |
| Audio editor | Adobe | Adobe Audition | |
| Data processing software | MathWorks | MATLAB | versie R2023a |
| Data processing toolbox | University of California-SanDiego | EEGLAB | |
| Data processing toolbox | University of California-Davis | ERPLAB | |
| Electric shaver | Panasonic | ER803PPA | |
| Electrode | Unique Medical | UL-3010 | AgCl coated (custom) |
| Electrode gel | Neurospec AG | V16 SuperVisc | |
| Electrode input box | Brain Products | EIB64-DUO | 64ch |
| Glue | 3M | Scotch 7005S | |
| Hair removering cream | Kracie | epilat voor gevoelige huid | |
| Isoflurane | Bussan Animal Health | ds isoflurane | |
| Liquid gum | San-ei Yakuhin Boeki | Arabic Call SS | Gum arabic+water |
| Liquid nutrition | Nestlé Health Science Company | Isocal 1.0 Junior | Polymeric formule |
| Maropitant | Zoetis | Cerenia injecteerbare oplossing | |
| Monitor Camera | Intel | RealSense LiDAR Camera L515 | |
| Monkey pellets | Oriental Yeast | SPS | |
| Primate chair | Natsume Seisakusho | Op bestelling gemaakt | |
| Pulse oximeters | Covident | Nellcor | PM10N |
| Skin prepping pasta | Mammendorfer Institut für Physik und Medizin | NeuPrep | |
| Slicon tube | AsONE | Φ4 x 7mm | |
| Speaker | Fostex | PM0.3 | |
| Synchronization device | Brain Vision | StimTrak | |
| Thermoplastic mask | CIVCO | MTAPU Type Uniframe Thermoplastic Mask 2.4mm |
Referenties
- Miller, C. T., et al. Marmosets: A neuroscientific model of human social behavior. Neuron. 90 (2), 219-233 (2016).
- Okano, H., Hikishima, K., Iriki, A., Sasaki, E. The common marmoset as a novel animal model system for biomedical and neuroscience research applications. Semin Fetal Neonatal Med. 17 (6), 336-340 (2012).
- t'Hart, B. A., Abbott, D. H., Nakamura, K., Fuchs, E. The marmoset monkey: a multi-purpose preclinical and translational model of human biology and disease. Drug Discov Today. 17 (21-22), 1160-1165 (2012).
- Bezerra, B. M., Souto, A. Structure and usage of the vocal repertoire of Callithrix jacchus. Int J Primatol. 29 (3), 671-701 (2008).
- Agamaite, J. A., Chang, C. J., Osmanski, M. S., Wang, X. A quantitative acoustic analysis of the vocal repertoire of the common marmoset (Callithrix jacchus). J Acoust Soc Am. 138 (5), 2906-2928 (2015).
- Pistorio, A. L., Vintch, B., Wang, X. Acoustic analysis of vocal development in a New World primate, the common marmoset (Callithrix jacchus). J Acoust Soc Am. 120 (3), 1655-1670 (2006).
- Grijseels, D. M., Prendergast, B. J., Gorman, J. C., Miller, C. T. The neurobiology of vocal communication in marmosets. Ann N. Y. Acad Sci. 1528 (1), 13-28 (2023).
- Eliades, S. J., Wang, X. Neural substrates of vocalization feedback monitoring in primate auditory cortex. Nature. 453 (7198), 1102-1106 (2008).
- Eliades, S. J., Wang, X. Comparison of auditory-vocal interactions across multiple types of vocalizations in marmoset auditory cortex. J Neurophysiol. 109 (6), 1638-1657 (2013).
- Eliades, S. J., Wang, X. Contributions of sensory tuning to auditory-vocal interactions in marmoset auditory cortex. Hear Res. 348, 98-111 (2017).
- Eliades, S. J., Wang, X. Neural correlates of the lombard effect in primate auditory cortex. J Neurosci. 32 (31), 10737-10748 (2012).
- Tsunada, J., Wang, X., Eliades, S. J. Multiple processes of vocal sensory-motor interaction in primate auditory cortex. Nat Commun. 15 (1), 3093(2024).
- Miller, C. T., Thomas, A. W., Nummela, S. U., de la Mothe, L. A. Responses of primate frontal cortex neurons during natural vocal communication. J Neurophysiol. 114 (2), 1158-1171 (2015).
- Roy, S., Zhao, L., Wang, X. Distinct neural activities in premotor cortex during natural vocal behaviors in a New World Primate, the common marmoset (Callithrix jacchus). J Neurosci. 36 (48), 12168-12179 (2016).
- Wang, X., Merzenich, M. M., Beitel, R., Schreiner, C. E. Representation of a species-specific vocalization in the primary auditory cortex of the common marmoset: temporal and spectral characteristics. J Neurophysiol. 74 (6), 2685-2706 (1995).
- Zeng, H. -h, et al. Distinct neuron populations for simple and compound calls in the primary auditory cortex of awake marmosets. National Science Review. 8 (11), nwab126(2021).
- Sadagopan, S., Temiz-Karayol, N. Z., Voss, H. U. High-field functional magnetic resonance imaging of vocalization processing in marmosets. Sci Rep. 5, 10950(2015).
- Kato, M., et al. Individual identity and affective valence in marmoset calls: in vivo brain imaging with vocal sound playback. Anim Cogn. 21 (3), 331-343 (2018).
- Jafari, A., et al. A vocalization-processing network in marmosets. Cell Rep. 42 (5), 112526(2023).
- Papanicolaou, A. C., et al. Differential brain activation patterns during perception of voice and tone onset time series: a MEG study. Neuroimage. 18 (2), 448-459 (2003).
- Capilla, A., Belin, P., Gross, J. The early spatio-temporal correlates and task independence of cerebral voice processing studied with MEG. Cereb Cortex. 23 (6), 1388-1395 (2012).
- Belin, P., Zatorre, R. J., Lafaille, P., Ahad, P., Pike, B. Voice-selective areas in human auditory cortex. Nature. 403 (6767), 309-312 (2000).
- Perrodin, C., Kayser, C., Abel, T. J., Logothetis, N. K., Petkov, C. I. Who is that? Brain networks and mechanisms for identifying individuals. Trends Cogn Sci. 19 (12), 783-796 (2015).
- Pernet, C. R., et al. The human voice areas: Spatial organization and inter-individual variability in temporal and extra-temporal cortices. Neuroimage. 119, 164-174 (2015).
- Chen, X., Pan, Z., Wang, P., Zhang, L., Yuan, J. EEG oscillations reflect task effects for the change detection in vocal emotion. Cogn Neurodyn. 9 (3), 351-358 (2015).
- Hiyoshi-Taniguchi, K., et al. EEG correlates of voice and face emotional judgments in the human brain. Cogn Comput. 7 (1), 11-19 (2015).
- Lévêque, Y., Schön, D. Listening to the human voice alters sensorimotor brain rhythms. PloS One. 8, e80659(2013).
- Liu, T., et al. Electrophysiological insights into processing nonverbal emotional vocalizations. NeuroReport. 23, 108-112 (2012).
- Bruneau, N., et al. Early neurophysiological correlates of vocal versus non-vocal sound processing in adults. Brain Res. 1528, 20-27 (2013).
- Flinker, A., et al. Single-Trial speech suppression of auditory cortex activity in humans. J Neurosci. 30, 16643-16650 (2010).
- Greenlee, J. D. W., et al. Human auditory cortical activation during self-vocalization. PloS One. 6 (3), e14744(2011).
- Itoh, K., Konoike, N., Iwaoki, H., Igarashi, H., Nakamura, K. A novel "dip-in electrode" method for electrode application to record noninvasive scalp electroencephalograms and evoked potentials in an awake common marmoset. Neuroimage: Reports. 2 (3), 100116(2022).
- Itoh, K., et al. Cerebral cortical processing time is elongated in human brain evolution. Sci Rep. 12 (1), 1103(2022).
- Itoh, K., Nejime, M., Konoike, N., Nakamura, K., Nakada, T. Evolutionary elongation of the time window of integration in auditory cortex: macaque vs. human comparison of the effects of sound duration on auditory evoked potentials. Front Neurosci. 13, 630(2019).
- Itoh, K., Iwaoki, H., Konoike, N., Igarashi, H., Nakamura, K. Noninvasive scalp recording of the middle latency responses and cortical auditory evoked potentials in the alert common marmoset. Hear Res. 405, 108229(2021).
- Itoh, K., Nejime, M., Konoike, N., Nakada, T., Nakamura, K. Noninvasive scalp recording of cortical auditory evoked potentials in the alert macaque monkey. Hear Res. 327, 117-125 (2015).
- Konoike, N., et al. Comparison of noninvasive, scalp-recorded auditory steady-state responses in humans, rhesus monkeys, and common marmosets. Sci Rep. 12 (1), 9210(2022).
- Eliades, S. J., Miller, C. T. Marmoset vocal communication: Behavior and neurobiology. Dev Neurobiol. 77 (3), 286-299 (2017).
- Ray, S., Hsiao, S. S., Crone, N. E., Franaszczuk, P. J., Niebur, E. Effect of stimulus intensity on the spike-local field potential relationship in the secondary somatosensory cortex. J Neurosci. 28 (29), 7334-7343 (2008).
- Leonard, M. K., et al. Large-scale single-neuron speech sound encoding across the depth of human cortex. Nature. 626 (7999), 593-602 (2024).
- Dubey, A., Ray, S. Comparison of tuning properties of gamma and high-gamma power in local field potential (LFP) versus electrocorticogram (ECoG) in visual cortex. Sci Rep. 10 (1), 5422(2020).
- Ray, S., Crone, N. E., Niebur, E., Franaszczuk, P. J., Hsiao, S. S. Neural correlates of high-gamma oscillations (60-200 Hz) in Macaque local field potentials and their potential implications in electrocorticography. Journal Neurosci. 28 (45), 11526-11536 (2008).
- Buzsáki, G., Anastassiou, C. A., Koch, C. The origin of extracellular fields and currents--EEG, ECoG, LFP and spikes. Nat Rev Neurosci. 13 (6), 407-420 (2012).
- Konoike, N., Miwa, M., Ishigami, A., Nakamura, K. Hypoxemia after single-shot anesthesia in common marmosets. J Med Primatol. 46 (3), 70-74 (2017).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
