Hier wordt een protocol gepresenteerd voor het bepalen van nucleïnezuurmetaboliserende enzymen, met behulp van voorbeelden van ligase-, nuclease- en polymerase-enzymen. De test maakt gebruik van fluorescerend gelabelde en niet-gelabelde oligonucleotiden die kunnen worden gecombineerd om duplexen te vormen die RNA- en/of DNA-schade of tussenproducten van de route nabootsen, waardoor het enzymgedrag kan worden gekarakteriseerd.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Gebruik van gemodificeerde synthetische oligonucleotiden om nucleïnezuurmetaboliserende enzymen te testen
In dit artikel
Samenvatting
Samenvatting
De beschikbaarheid van een reeks gemodificeerde synthetische oligonucleotiden van commerciële leveranciers heeft de ontwikkeling mogelijk gemaakt van geavanceerde assays om diverse eigenschappen van nucleïnezuurmetaboliserende enzymen te karakteriseren die in elk standaard moleculair-biologisch laboratorium kunnen worden uitgevoerd. Het gebruik van fluorescerende labels heeft deze methoden toegankelijk gemaakt voor onderzoekers met standaard PAGE-elektroforese-apparatuur en een fluorescerende imager, zonder radioactieve materialen te gebruiken of een laboratorium nodig te hebben dat is ontworpen voor de opslag en bereiding van radioactieve materialen, d.w.z. een Hot Lab. De optionele toevoeging van standaardmodificaties zoals fosforylering kan het instellen van de test vereenvoudigen, terwijl de specifieke opname van gemodificeerde nucleotiden die DNA-schade of tussenproducten nabootsen, kan worden gebruikt om specifieke aspecten van enzymgedrag te onderzoeken. Hier worden het ontwerp en de uitvoering gedemonstreerd van tests om verschillende aspecten van DNA-verwerking door enzymen te ondervragen met behulp van in de handel verkrijgbare synthetische oligonucleotiden. Deze omvatten het vermogen van ligases om zich te verbinden of nucleasen om verschillende DNA- en RNA-hybride structuren af te breken, differentieel cofactorgebruik door de DNA-ligase en evaluatie van het DNA-bindende vermogen van enzymen. Factoren waarmee rekening moet worden gehouden bij het ontwerpen van synthetische nucleotidesubstraten worden besproken en er wordt een basisset oligonucleotiden verstrekt die kunnen worden gebruikt voor een reeks nucleïnezuurligase-, polymerase- en nuclease-enzymassays.
Inleiding
Alle levensvormen hebben nucleïnezuurverwerkende enzymen nodig om fundamentele biologische processen uit te voeren, waaronder replicatie, transcriptie en DNA-reparatie. De belangrijkste enzymatische functionaliteiten voor deze routes zijn polymerasen, die kopieën van RNA/DNA-moleculen genereren, ligases die zich aansluiten bij polynucleotidesubstraten, nucleasen die ze afbreken, en helicasen en topoisomerasen, die nucleïnezuurduplexen smelten of hun topologie veranderen 1,2,3,4,5,6,7,8,9,10 . Bovendien bieden veel van deze enzymen essentiële moleculaire hulpmiddelen voor toepassingen zoals klonen, diagnostiek en high-throughput sequencing 11,12,13,14,15.
De functionele kenmerken, kinetiek en substraatspecificiteiten van deze enzymen kunnen worden bepaald met behulp van gelabelde DNA/RNA-substraten die worden geproduceerd door oligonucleotiden te gloeien. Het traceren van substraten en producten wordt van oudsher bereikt door het aanbrengen van een radioactief label (32P) aan het uiteinde van de 5'-streng, dat vervolgens kan worden gedetecteerd met fotografische film of met een fosforbeeldvormingssysteem16,17. Hoewel radioactief gelabelde substraten het voordeel bieden van een verhoogde experimentele gevoeligheid en de chemische eigenschappen van een nucleotide niet veranderen, hebben de potentiële gezondheidsrisico's van het werken met radio-isotopen de ontwikkeling van niet-radioactieve nucleïnezuuretikettering aangemoedigd om een veiliger alternatief te bieden voor DNA- en RNA-detectie 18,19,20 . Hiervan vallen fluorescentiedetectie, inclusief directe fluorescentiedetectie, tijdopgeloste fluorescentie en energieoverdracht/fluorescentie-afschriktesten op als de meest veelzijdige 21,22,23,24. Het uitgebreide scala aan fluoroforen maakt verschillende ontwerpen van DNA/RNA-substraten mogelijk met unieke reporters op elk oligonucleotide25. Bovendien stelt de stabiliteit van fluoroforen, in vergelijking met radio-isotopen, gebruikers in staat om aanzienlijke hoeveelheden fluorescerend gelabelde DNA-substraten te produceren en te bewaren19. Deze met fluorofoor gelabelde substraten kunnen worden geïncubeerd met het eiwit van belang, samen met verschillende combinaties van metaal- en nucleotide-cofactoren, om bindings- en/of enzymactiviteit te analyseren. Visualisatie van binding of activiteit kan worden waargenomen met behulp van verschillende fluorofoorkleurkanalen met een gelbeeldvormingssysteem. Aangezien met deze techniek alleen de fluorescerend gelabelde oligonucleotiden zichtbaar zullen zijn, zal elke toename of afname van de grootte van het gelabelde oligonucleotide gemakkelijk te volgen zijn. Gels kunnen daarna ook worden gekleurd, met nucleïnezuurkleuringskleurstoffen om alle DNA-banden die op de gel aanwezig zijn te visualiseren.
Polynucleïnezuurligases zijn enzymen die fragmenten van DNA/RNA samenvoegen en de afdichting van breuken katalyseren door de vorming van een fosfodiësterbinding tussen 5' gefosforyleerde DNA-termini en de 3' OH van DNA. Ze kunnen in twee groepen worden verdeeld op basis van hun nucleotidesubstraatvereiste. De sterk geconserveerde NAD-afhankelijke ligases worden aangetroffen in alle bacteriën26, terwijl de structureel diverse ATP-afhankelijke enzymen in alle domeinen van het leven kunnen worden geïdentificeerd 8,27. DNA-ligases spelen een belangrijke rol bij de verwerking van Okazaki-fragmenten tijdens replicatie en zijn ook betrokken bij verschillende DNA-herstelroutes, zoals nucleotide- en base-excisiereparatie, door het afdichten van spontane inkepingen en inkepingen die overblijven na reparatie 8,10. Verschillende DNA-ligases vertonen verschillende capaciteiten om verschillende conformaties van DNA-breuken te verbinden, waaronder inkepingen in een duplex, dubbelstrengs breuken, mismatches en hiaten, evenals RNA- en DNA-hybriden 28,29,30. Een breed scala aan ligeerbare substraten kan worden geassembleerd door oligonucleotiden te gloeien met een 5'-fosfaat om naast elkaar geplaatste 5'- en 3'-termini te genereren in een nucleïnezuurduplex 31,32,33. De meest gebruikelijke analysemethode is resolutie door ureum PAGE in een eindpuntanalyseformaat; Recente innovaties zijn echter het gebruik van capillaire gelelektroforese, die een hoge doorvoer mogelijk maakt34, massaspectrometrische profilering35, evenals een homogene moleculaire bakentest, die tijdopgeloste monitoring mogelijk maakt36.
De eerste stap in een ligatiereactie is de adenylering van het ligase-enzym door adenosinetrifosfaat (ATP) of nicotinamide-adeninedinucleotide (NAD), wat resulteert in een covalent enzymtussenproduct. De tweede stap in de reactie is adenylering van het nucleïnezuursubstraat aan het 5'-uiteinde van de nick-plaats, gevolgd door ligatie van de nucleïnezuur-nick-strengen. Veel ligase-enzymen die recombinant tot expressie worden gebracht in E. coli worden gezuiverd in de geadenyleerde vorm en zijn daarom in staat om nucleïnezuren met succes te ligeren zonder de toevoeging van een nucleotide-cofactor. Dit maakt het moeilijk om te bepalen welk specifiek type nucleotide-cofactor ze nodig hebben voor de ligatie van nucleïnezuren. Naast het beschrijven van assays om de activiteit van DNA-ligase te evalueren, wordt ook een methode gepresenteerd om het cofactorgebruik betrouwbaar te bepalen door het enzym te de-adenyleren met behulp van niet-gelabelde substraten.
Nucleasen zijn een grote en diverse groep DNA/RNA-modificerende enzymen en katalytische RNA's die de fosfodiësterbindingen tussen nucleïnezuren splitsen37. Nuclease-enzymfunctionaliteiten zijn vereist bij DNA-replicatie, -reparatie en RNA-verwerking en kunnen worden geclassificeerd op basis van hun suikerspecificiteit voor DNA, RNA of beide. Endonucleasen hydrolyseren de fosfodiësterbindingen binnen een DNA/RNA-streng, terwijl exonucleasen DNA/RNA-strengen één nucleotide tegelijk hydrolyseren vanaf het 3' of 5' uiteinde en dit kunnen doen van het 3' tot 5' of het 5' tot 3' uiteinde van het DNA38.
Hoewel veel nuclease-eiwitten niet-specifiek zijn en bij meerdere processen betrokken kunnen zijn, zijn andere zeer specifiek voor een bepaalde sequentie of DNA-schade 6,39,40. Sequentiespecifieke nucleasen worden gebruikt in een breed scala aan biotechnologische toepassingen, zoals klonen, mutagenese en genoombewerking. Populaire nucleasen voor deze toepassingen zijn restrictienucleasen41, zinkvingernucleasen42, transcriptionele activator-achtige effectornucleasen en meest recentelijk de RNA-geleide gemanipuleerde CRISPR-nucleasen43. Schadespecifieke nucleasen zijn onlangs geïdentificeerd, zoals het EndoMS-nuclease, dat specifiek is voor mismatches in het DNA via zijn mismatch-specifieke RecB-achtige nucleasedomein 5,44. Nuclease-activiteitstesten zijn in het verleden uitgevoerd als discontinue tests met radioactief gelabelde substraten; Naast hun andere nadelen maken deze echter niet de identificatie mogelijk van de plaats die wordt doorsneden door een nuclease-eiwit, wat mogelijk is bij gebruik van fluorescerend geëtiketteerde substraten45,46. Meer recentelijk zijn continue nuclease-assays ontwikkeld die werken door verschillende DNA-kleurstoffen te gebruiken die in verschillende toestanden met DNA interageren; bijvoorbeeld het uitzenden van een hoger fluorescerend signaal bij interactie met dsDNA dan in zijn ongebonden toestand, of specifiek binden aan korte RNA's47. Andere continue nucleasetesten maken gebruik van DNA-haarspelden met een fluorofoorgroep aan de 5' en een quencher aan het 3'-uiteinde, zodat de fluorescentie toeneemt naarmate het oligonucleotide wordt afgebroken als gevolg van een scheiding van de fluorofoor en de quencher48. Hoewel deze tests het mogelijk maken om de kinetiek van DNA-afbrekende eiwitten te karakteriseren, vereisen ze voorkennis van de functie en het substraat van het enzym en zijn ze ook beperkt tot enzymen die de DNA-conformatie veranderen om een verschil in kleurstofbinding te veroorzaken. Om deze reden zijn endpoint-assays die individuele nucleaseproducten oplossen nog steeds wenselijk om inzicht te geven in DNA-modificaties veroorzaakt door eiwitactiviteit.
Hier wordt een gedetailleerde procedure gepresenteerd voor het ontwerp van fluorescerend gelabelde DNA/RNA-oligonucleotiden die kunnen worden gemengd en gematcht om substraten te genereren voor het testen van de activiteit van nieuwe nuclease-, polymerase- en ligase-enzymen. De validatie van deze basisset van oligonucleotidesequenties vereenvoudigt het experimentele ontwerp en vergemakkelijkt de economische profilering van een breed scala aan enzymatische functionaliteiten zonder dat een groot aantal op maat gemaakte substraten hoeft te worden aangeschaft. Er wordt een gedetailleerde procedure gegeven voor het uitvoeren van een standaard DNA-verwerkende enzymtest met deze substraten, met behulp van het voorbeeld van DNA-ligase-activiteit en modificaties voor het testen en analyseren van nuclease- en polymerase-enzymen worden beschreven. Bovendien wordt een gewijzigde test gegeven voor het bepalen van de cofactorspecificiteit van het DNA-ligase-enzym met hoge nauwkeurigheid, en worden dubbel gelabelde sondes gebruikt om de assemblage van ligaties met meerdere componenten te evalueren. Ten slotte worden aanpassingen aan het basistestformaat besproken om het mogelijk te maken om eiwit-DNA-interacties met dezelfde substraten te bepalen door middel van de elektroforetische mobiliteitsverschuivingstest (EMSA).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
1. Ontwerp en aankoop van oligonucleotiden
OPMERKING: Ontwerp enkelstrengs oligonucleotiden die moeten worden geassembleerd en gegloeid tot de gewenste duplexen. Een of meer van de strengen in een duplex moeten een fluorescerend deel dragen om de verwerking van oligonucleotide door het betreffende enzym te kunnen volgen. Tabel 1 bevat een basisset van enkelstrengs sequenties die voor een reeks activiteiten kunnen worden samengesteld.
- Neem de specifieke modificaties op die nodig zijn voor het enzym van belang, zoals hieronder beschreven.
- Voor DNA-ligasesubstraten (Figuur 1): Stel het eenvoudigste substraat samen uit drie oligonucleotiden: een 5' gefosforyleerde donorstreng (NL2), een 5' FAM-gelabelde acceptorstreng (NL1) en een complement dat de twee overbrugt (NL3).
- Zorg ervoor dat de strengen die het eindpunt van 5' van de ligatabele inkeping vormen, zijn gefosforyleerd voordat u de substraatmastermix in stap 2 monteert. Bestel dit als een modificatie op NL2 (zoals aangegeven in Tabel 1) of gebruik enzymatische fosforylering met T4 polynucleotide kinase na resuspendatie van de oligonucleotiden.
- Neem de 5'-terminale fosforylering van NL6 en NL8 op, die het complement van dubbelstrengs breuken vormen zoals afgebeeld in figuur 1A (NL6/NL7 en NL8/NL9), aangezien dit het meest lijkt op het natuurlijke substraat dat wordt geproduceerd uit een restrictie-endonuclease. Gebruik een dubbel gelabeld substraat om de relatieve mate van ligatie te bepalen voor assemblages met meerdere onderdelen (zie stap 6).
- Verander de complementstreng om mismatches (NL10) en hiaten (NL11) te produceren.
OPMERKING: Variaties op het eenvoudige ingesneden substraat zijn weergegeven in figuur 1A. Het is mogelijk om andere sequenties te gebruiken om een nog breder scala aan mismatches of langere hiaten te produceren door de onderstreepte positie te variëren. - Vervang DNA-oligonucleotiden door RNA-oligonucleotiden.
OPMERKING: Variaties op het eenvoudige ingesneden substraat worden weergegeven in figuur 1B. Een breder scala aan DNA/RNA-duplexen kan worden gegenereerd door extra combinaties van de hier gegeven basisset om bijvoorbeeld dubbelstrengs breuken te genereren die zowel RNA als DNA bevatten. Een voorbeeld van deze variatie wordt gegeven in stap 6 hieronder, waar een dual-label strategie wordt gebruikt.
- Voor DNA-polymerasesubstraten: Monteer de oligonucleotiden NL1 en NL3 die in tabel 1 worden vermeld om een eenvoudige primer-uitbreidingstest te verkrijgen. Onderzoek aanvullende aspecten van polymerase-activiteit door modificaties aan te brengen in de NL1 (primer) of NL3 (sjabloon) strengen.
- Neem beschadigde base-analogen op in de NL3-oligonucleotide vóór positie 20 om het vermogen te bepalen om beschadigde laesies op de sjabloonstreng te omzeilen.
- Neem beschadigde base-analogen op in de NL1-oligonucleotide op positie 20 om het vermogen te bepalen om een beschadigde primer te verlengen.
- Gebruik RNL1 of RNL3 in de duplex om de uitbreiding van een RNA-primer of het gebruik van een RNA-sjabloon te onderzoeken.
- Voor nucleasesubstraten (Figuur 2): Assembleer oligonucleotiden om een niet-uitputtende reeks dubbel- en enkelstrengs substraten te verkrijgen (Figuur 2Ai), evenals een reeks geflapte en gespreide juncties (Figuur 2Aii) en beschadigde substraten (Figuur 2B).
- Als u ribonuclease-activiteiten wilt onderzoeken, vervangt u iteratief NL1, NL2 en NL3 door RNL1, RNL2 en RNL3. Gebruik extra RNA-versies van HJ5 en HJ6 om deze set verder uit te breiden.
- Gebruik oligonucleotiden MD5, MD6 en MD9 met een centraal geplaatste modificatie die oxidatieve schade nabootst, een abasisch reparatietussenproduct of een deaminatieproduct (Figuur 2B). De substraten zullen op deze positie splijting van de streng detecteren. Label de aanvulling NL3-streng met een orthogonale fluorofoor zoals TAMRA om dubbelstrengs splitsing te detecteren (zie stap 6).
- Gebruik orthogonale labeling van het complement om dubbelstrengs snijden te detecteren op de niet-overeenkomende plaatsen op zowel de sonde (NL5 en ND9) als de complementstrengen (MD10 en NL10).
- Voor DNA-ligasesubstraten (Figuur 1): Stel het eenvoudigste substraat samen uit drie oligonucleotiden: een 5' gefosforyleerde donorstreng (NL2), een 5' FAM-gelabelde acceptorstreng (NL1) en een complement dat de twee overbrugt (NL3).
- Bestel synthetische oligonucleotiden met relevante fluoroforen en andere modificaties bij een commerciële verkoper.
OPMERKING: Een syntheseschaal van 100 nM en HPLC-zuivering na de synthese zijn geschikt voor de beschreven tests.
2. Het assembleren en gloeien van nucleïnezuurduplexen
- Resuspensie en verdunning van oligonucleotiden
- Centrifugeer voor het openen de gevriesdroogde oligonucleotiden in hun buisjes van 2 ml op volle snelheid in een tafelcentrifuge gedurende 2-5 minuten om er zeker van te zijn dat het nucleïnezuur zich op de bodem van de buis bevindt.
- Bereid een stamvoorraad van 100 μM voor door de oligonucleotiden te resuspenderen in TE-buffer (10 mM tris(hydroxymethyl)aminomethaan (Tris), 1 mM ethyleendiaminetetra-azijnzuur (EDTA)). Zorg ervoor dat de oligonucleotiden grondig worden geresuspendeerd door herhaalde zachte vortexen en korte centrifugatie op volle snelheid.
- Bereid een voorraad van 10 μM voor door een aliquot mastermateriaal te verdunnen met TE-buffer. Verdun de voorraad van 10 μM met ultrapuur water (MQ-water) om werkvoorraden te bereiden met concentraties van 0.5 μM, 0.7 μM of 2.5 μM volgens tabel 2.
- Monteren en gloeien van de reactiemastermixen
- Gebruik werkvoorraden om de reactiemastermengsels samen te stellen met behulp van de combinaties in tabel 2 en de volumes in tabel 3. Voor de standaard DNA-ligasetest en de meeste andere hier beschreven tests is de uiteindelijke buffersamenstelling 50 mM Tris pH 8.0, 50 mM NaCl, 10 mM Dithiothreitol (DTT) met 10 mM Mg als het tweewaardige kation.
- Gloei de oligonucleotiden in een PCR- of microcentrifugebuis door ze gedurende 5 minuten bij 95 °C te verwarmen met behulp van een verwarmingsblok of thermocycler. Laat 30 minuten (volumes <1 ml) tot 1 uur (volumes >1 ml) afkoelen tot kamertemperatuur. Voor langere oligonucleotiden (>40 nt) koelt u langzamer af met behulp van een thermocycler met een neerwaartse helling van 95 °C tot 25 °C gedurende 45 minuten, of laat u de buis met het gloeimengsel in een bekerglas kokend water van 1 liter drijven en een nacht afkoelen tot kamertemperatuur.
- Voeg nucleotidecofactoren en andere warmtegevoelige buffercomponenten toe aan de mastermix na afkoeling tot kamertemperatuur. Gebruik het uiteindelijke reactiemengsel rechtstreeks voor de bepaling door toevoeging van een enzym (zie stap 3 hieronder) of bewaar het bij -20 °C voor toekomstig gebruik.
3. Standaard testopstelling
- Assemblage en initiatie van de analysereactie
- Combineer 22,5 μl van het substraatmastermengsel van belang met 2,5 μl van het DNA-ligase of een ander enzym van belang in een PCR-buis. Voer reacties in tweevoud of drievoud uit, vooral als de resultaten worden gekwantificeerd.
- Neem een controle zonder eiwit (alleen buffer) op in de analysemonsters. Neem op dit moment geen cofactorcontroles op, indien nodig.
OPMERKING: Enzymen kunnen worden bewaard bij -20 °C in 50% v/v glycerol, waardoor ze rechtstreeks uit de oplossing kunnen worden gepipetteerd. Zorg ervoor dat enzymoplossingen met glycerol goed worden gemengd voordat ze worden toegevoegd, hetzij door pipetteren om te mengen of door zachte vortexen.
- Breng de reacties onmiddellijk over naar een PCR-machine bij 25 °C en incubeer gedurende 30 minuten. Varieer de temperatuur en duur afhankelijk van de optimale omstandigheden voor enzymactiviteit.
- Blus de reacties door 5 μL laadkleurstof toe te voegen (95% formamide, 0,5 M ethyleendiaminetetra-azijnzuur (EDTA), broomfenolblauw) en incubeer bij 95 °C gedurende 5 min.
4. Analyse van de analyseresultaten
- Bereid Tris-Borate-EDTA (TBE)-Ureum PAGE gels zoals hieronder beschreven.
- Bereid een voorraad van 20% acrylamide, 7 M ureum en 1x TBE-oplossing voor. Gebruik voor de hier beschreven oligonucleotideset acrylamide/bis-oplossing in een verhouding van 29:1 voor een optimale resolutie.
- Meng voor één gel 10 ml 20% acrylamide en 7 M ureumoplossing met 100 μl APS (10%) en 3 μl tetramethylethyleendiamine (TMED) en giet in een gelcaster.
- Nadat de gel is gestold, voert u de monsters uit op de TBE-ureumgel bij 45 - 55 °C.
- Laat de gel 30 minuten in 1x TBE-buffer lopen op 10 mA per gel met externe verwarming.
- Verwijder overtollig ureum in de putjes van de gel door te spoelen met 1x TBE met behulp van een weidepipet.
- Laad 10 μL van elke reactie en laat 1,0-1,5 uur op 10 mA draaien met externe verwarming.
- Visualiseer de gel op de imager met de juiste instellingen voor de gekozen fluorofoor. Gebruik voor FAM een filterset die excitatie/emissie geeft bij 495/519 nm, die in de meeste imagers als een pre-set wordt opgeslagen.
- Kwantificeer de bandintensiteit van het product en het substraat met behulp van beeldverwerkingssoftware met de imager, of een extern programma zoals ImageJ49,50 en bereken het percentage van het product met behulp van de formule
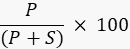
Waarbij P de geïntegreerde waarde van de productband is en S het geïntegreerde gebied van de substraatband. In het geval van het voorbeeld van de DNA-ligasereactie loopt de productband op 40 nucleotiden (nt) en de substraatband op 20 nt.
5. De-adenylering van het DNA-ligase om de cofactorspecificiteit te testen
- Bereiding van reactiemastermixen
- Bereid één set van de mastermix met de FAM-gelabelde NL1-oligonucleotide zoals beschreven in tabel 4. Bereid een tweede set met het NL1-oligonucleotide zonder FAM-label, zoals beschreven in tabel 4.
- Verwarm beide DNA-duplexen afzonderlijk tot 95 °C gedurende 5 minuten en koel ze 30 min tot 1 uur af tot 25 °C. Voeg geen nucleotide-cofactor toe aan een van beide mastermixen.
- Assemblage en initiatie van de-adenylatiereactie
- Bereid een enkele de-adenylatiereactie voor voor elk te testen cofactortype/concentratie door 10 μl van het niet-geëtiketteerde mastermengsel te combineren met 2,5 μl ligase-enzym.
- Bereid extra buisjes voor als no-cofactor-controle en geen eiwit-controle (2,5 μL buffer toegevoegd in plaats van enzym).
- Incubeer de reacties bij een temperatuur die specifiek is voor de optimale activiteit van het enzym, gedurende 1-2 uur. De incubatietijd kan worden verlengd als het enzym nog steeds geadenyleerd is.
- Voer de ligatiereactie uit met de cofactor.
- Voeg 10 μL van het gelabelde mastermengsel en 2,5 μL van de gewenste nucleotidecofactoren (bijv. ATP, NAD, ADP of GTP) rechtstreeks toe aan de gedeadenyleerde reactie (eindconcentratie 0,1-1 mM).
- Voeg 2,5 μL reactiebuffer toe aan de cofactorcontrole zonder nucleotide.
- Incubeer de reacties voor dezelfde tijdsperiode en temperatuur als eerder gebruikt. Blus en visualiseer zoals beschreven in stap 4.
6. Gebruik van dubbel gelabelde substraten voor gespalkte ligatie of meerdelige assemblage
- Ontwerp en koop een oligonucleotide met een fluorescerend deel dat een ander excitatie-/emissiespectrum heeft dan de reeds gebruikte fluorofoor.
- Gebruik in de hier beschreven opstelling NL2 (TAMRA) oligonucleotide met 5-carboxytetramethylrhodamine (TAMRA) aan het 3'-uiteinde (tabel 1).
- Stel de mastermix samen zoals hieronder beschreven.
- Combineer de componenten van de reactie beschreven in stap 2, inclusief equimolaire verhoudingen van alle oligonucleotiden die in de assemblage worden gebruikt, evenals buffer- en tweewaardige kationen.
- Gloeien door verwarmen bij 95 °C gedurende 5 minuten en afkoelen bij 25 °C gedurende 30 min - 1 uur. Voeg de cofactor en het enzym toe en incubeer zoals beschreven in stap 3.
- Voer de monsters uit en beeldde ze af zoals beschreven in stap 4 met behulp van de juiste kanalen voor het fluorofoorpaar in het substraat. In het geval van FAM en TAMRA zijn dit de fluoresceïne (FITC) en tetramethylrhodamine (TRITC) kanalen die op de meeste beeldvormers aanwezig zijn.
7. Evaluatie van DNA-binding door middel van Electrophoretic Mobility Shift Assay (EMSA) op native gel
- Bereid een 10% native TBE PAGE gel zoals hieronder beschreven.
- Combineer 2,5 ml 40% acrylamide, 1 ml 10x TBE, 100 μl 10% APS, 3 μl TMED en 6,5 ml MQ-water en giet in een gelcaster.
- Monteer de bindingsreactie zoals hieronder beschreven.
- Monteer het EMSA-substraat volgens tabel 5 zodat EDTA (10 mM) is opgenomen en metaalionen zijn weggelaten.
- Combineer 20 μL van de EMSA substraat mastermix met 5 μL van het eiwit in een PCR-buisje. Voeg een controlemonster zonder eiwit toe. Incubeer gedurende 30 minuten bij 25 °C.
- Analyseer door middel van natuurlijke elektroforese zoals hieronder beschreven.
- Voeg 5 μl 5x natuurlijke laadkleurstof (100 mM EDTA, 0,25 % broomfenolblauw, 25% v/v glycerol en MQ-water tot 1 ml) toe aan de monsters.
- Laad op de voorbereide gel en laat deze 2-3 uur op 60 V draaien met afkoeling door watercirculatie tot het verffront zich enkele cm boven het uiteinde van de gel bevindt.
- Visualiseer en analyseer gels zoals beschreven in stap 4.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Ligatie door DNA-ligase
De enzymatische activiteit van DNA-ligase zal resulteren in een toename van de grootte van het fluorescerend gelabelde oligonucleotide wanneer het wordt gevisualiseerd op een ureum PAGE-gel. In het geval van de substraten voor zowel DNA- als RNA-ligatie die in tabel 2 zijn vermeld, komt dit overeen met een verdubbeling in grootte van 20 nt naar 40 nt (figuur 3A). Optimale enzymactiviteit kan worden bepaald door veranderende omstand...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Cruciale stappen in het protocol
Ontwerp en aankoop van oligonucleotide: Bij de aankoop van de oligonucleotiden voor duplexvorming is het essentieel om rekening te houden met het sequentieontwerp. Het wordt aanbevolen om een oligo-analysetool te gebruiken om eigenschappen van de nucleotidesequentie te voorspellen, zoals GC-gehalte, smelttemperatuur, secundaire structuur en dimerisatiepotentieel, voordat u57 bestelt.
Assemblage en gloeien van nucleïne...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
SEG en UR zijn werknemers van ArcticZymes Technologies AS, dat de R2D-ligase distribueert. AW, ER-S en RS hebben geen tegenstrijdige belangen.
Dankbetuigingen
AW wordt ondersteund door een Rutherford Discovery Fellowship (20-UOW-004). RS is de ontvanger van een Nieuw-Zeelandse Post Antarctic Scholarship. SG en UR erkennen het Chemisch Instituut van de Universiteit van Tromsø - de Noorse Arctische Universiteit voor technische ondersteuning.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 30% Acrylamide/Bis Solution (29:1) | BioRad | 1610156 | |
| Adenosinetrifosfaat (ATP) | Veel leveranciers | ||
| Ammoniumpersulfaat (APS) | Veel leveranciers | ||
| Centrifuge voor op tafel | Veel leveranciers | ||
| Borate | Veel leveranciers | ||
| Broomfenolblauw | Veel leveranciers | ||
| Dithiothreitol (DTT) | Veel leveranciers | ||
| Elektroforesesysteem met circelair waterbad | Veel leveranciers | ||
| Ethyleendiaminetetraazijnzuur (EDTA) | Veel leveranciers | Andere metaalionen kunnen de voorkeur hebben, afhankelijk van het bestudeerde eiwit | |
| Fluorescentie imager, bijv. iBright FL1000 | Thermo Fisher Scientific | A32752 | |
| Formamide | Veel leveranciers | ||
| Gelgietsysteem | Veel leveranciers | ||
| Verwarmingsblok | Veel leveranciers | ||
| Microcentrifugebuisjes (1,5 ml) | Veel leveranciers | ||
| Micropipetten en tips | Veel leveranciers | 1 ml, 0,2 ml, 0,02 ml, 0,002 ml | |
| Nicotinamide adenine dinucleotide (NAD+) | Veel leveranciers | ||
| Oligonucleotiden | Integrated DNA Technologies | NA | Thermo Fisher, Sigma-Aldrich, Genscript en anderen leveren deze ook |
| Weidepipet | Veel leveranciers | ||
| PCR thermocycler | Veel leveranciers | ||
| PCR-buisjes | Veel leveranciers | ||
| RNAse away | ThermoFisher | 7002PK | Alleen nodig bij het werken met RNA oligo's |
| RNase AWAY | Merck | 83931-250ML | Oplosmiddel voor het verwijderen van RNAse-besmetting op oppervlakken |
| RNAse-vrij water | New England Biolabs | B1500L | Alleen nodig bij het werken met RNA oligo's |
| Natriumchloride | Veel leveranciers | ||
| SUPERase IN RNase inhibitor | Thermo Fisher Scientific | AM2694 | Breed spectrum RNAse-remmer (eiwit-gebaseerd) |
| SYBR Gold | Thermo Fisher Scientific | S11494 | Dit kan worden gebruikt om gels na te kleuren en ongelabelde oligonucleotiden te visualiseren |
| Tetramethylethyleendiamine (TMED) | Veel leveranciers | ||
| Tris, of tris(hydroxymethyl)aminomethaan | Veel leveranciers | ||
| Ultrapuur water (Milli-Q) | Merck | ||
| Urea | Veel leveranciers | ||
| Vortex | Veel leveranciers |
Referenties
- Gao, Y., et al. Structures and operating principles of the replisome. Science. 363 (6429), 7003(2019).
- Yang, W., Gao, Y. Translesion and repair DNA polymerases: Diverse structure and mechanism. Annu Rev Biochem. 87, 239-261 (2018).
- Lohman, T. M., Fazio, N. T. How does a helicase unwind DNA? Insights from RecBCD Helicase. Bioessays. 40 (6), e1800009(2018).
- Ahdash, Z., et al. Mechanistic insight into the assembly of the HerA-NurA helicase-nuclease DNA end resection complex. Nucleic Acids Res. 45 (20), 12025-12038 (2017).
- Wozniak, K. J., Simmons, L. A. Bacterial DNA excision repair pathways. Nat Rev Microbiol. 20 (8), 465-477 (2022).
- Zhang, L., Jiang, D., Wu, M., Yang, Z., Oger, P. M. New insights into DNA repair revealed by NucS endonucleases from hyperthermophilic Archaea. Front Microbiol. 11, 1263(2020).
- Saathoff, J. H., Kashammer, L., Lammens, K., Byrne, R. T., Hopfner, K. P. The bacterial Mre11-Rad50 homolog SbcCD cleaves opposing strands of DNA by two chemically distinct nuclease reactions. Nucleic Acids Res. 46 (21), 11303-11314 (2018).
- Williamson, A., Leiros, H. S. Structural insight into DNA joining: from conserved mechanisms to diverse scaffolds. Nucleic Acids Res. 48 (15), 8225-8242 (2020).
- Caglayan, M. Interplay between DNA polymerases and DNA ligases: Influence on substrate channeling and the fidelity of DNA ligation. J Mol Biol. 431 (11), 2068-2081 (2019).
- Shuman, S. DNA ligases: Progress and prospects. J Biol Chem. 284 (26), 17365-17369 (2009).
- Lohman, G. J., Tabor, S., Nichols, N. M. DNA ligases. Curr Prot Mol Biol. , Chapter 3, Unit 3.14 (2011).
- Rittié, L., Perbal, B. Enzymes used in molecular biology: a useful guide. J Cell Commun Signal. 2 (1-2), 25-45 (2008).
- Chandrasegaran, S., Carroll, D. Origins of programmable nucleases for genome engineering. J Mol Biol. 428 (5), Part b 963-989 (2016).
- Aschenbrenner, J., Marx, A. DNA polymerases and biotechnological applications. Curr Opin Biotechnol. 48, 187-195 (2017).
- Loenen, W. A. M., Dryden, D. T. F., Raleigh, E. A., Wilson, G. G., Murray, N. E. Highlights of the DNA cutters: a short history of the restriction enzymes. Nucleic Acids Res. 42 (1), 3-19 (2013).
- Voytas, D., Ke, N. Detection and quantitation of radiolabeled proteins and DNA in gels and blots. Curr Protoc Immunol. , Appendix 3 (A) (2002).
- Phillips, D. H. Detection of DNA modifications by the 32P-postlabelling assay. Mutat Res. 378 (1-2), 1-12 (1997).
- Huang, C., Yu, Y. T. Synthesis and labeling of RNA in vitro. Curr Prot Mol Biol. , Chapter 4, Unit 4.15 (2013).
- Ballal, R., Cheema, A., Ahmad, W., Rosen, E. M., Saha, T. Fluorescent oligonucleotides can serve as suitable alternatives to radiolabeled oligonucleotides. J Biomol Tech. 20 (4), 190-194 (2009).
- Anderson, B. J., Larkin, C., Guja, K., Schildbach, J. F. Using fluorophore-labeled oligonucleotides to measure affinities of protein-DNA interactions. Meth Enzymol. 450, 253-272 (2008).
- Liu, W., et al. Establishment of an accurate and fast detection method using molecular beacons in loop-mediated isothermal amplification assay. Sci Rep. 7 (1), 40125(2017).
- Ma, C., et al. Simultaneous detection of kinase and phosphatase activities of polynucleotide kinase using molecular beacon probes. Anal Biochem. 443 (2), 166-168 (2013).
- Li, J., Cao, Z. C., Tang, Z., Wang, K., Tan, W. Molecular beacons for protein-DNA interaction studies. Meth Mol Biol. 429, 209-224 (2008).
- Yang, C. J., Li, J. J., Tan, W. Using molecular beacons for sensitive fluorescence assays of the enzymatic cleavage of nucleic acids. Meth Mol Biol. 335, 71-81 (2006).
- Nikiforov, T. T., Roman, S. Fluorogenic DNA ligase and base excision repair enzyme assays using substrates labeled with single fluorophores. Anal Biochem. 477, 69-77 (2015).
- Pergolizzi, G., Wagner, G. K., Bowater, R. P. Biochemical and structural characterisation of DNA ligases from bacteria and Archaea. Biosci Rep. 36 (5), 00391(2016).
- Martin, I. V., MacNeill, S. A. ATP-dependent DNA ligases. Genome Biol. 3 (4), REVIEWS3005 (2002).
- Bilotti, K., et al. Mismatch discrimination and sequence bias during end-joining by DNA ligases. Nucleic Acids Res. 50 (8), 4647-4658 (2022).
- Bauer, R. J., et al. Comparative analysis of the end-joining activity of several DNA ligases. PLoS One. 12 (12), e0190062(2017).
- Lohman, G. J. S., Zhang, Y., Zhelkovsky, A. M., Cantor, E. J., Evans, T. C. Efficient DNA ligation in DNA-RNA hybrid helices by Chlorella virus DNA ligase. Nucleic Acids Res. 42 (3), 1831-1844 (2014).
- Bullard, D. R., Bowater, R. P. Direct comparison of nick-joining activity of the nucleic acid ligases from bacteriophage T4. Biochem J. 398 (1), 135-144 (2006).
- Magnet, S., Blanchard, J. S. Mechanistic and kinetic study of the ATP-dependent DNA ligase of Neisseria meningitidis. Biochemistry. 43 (3), 710-717 (2004).
- Williamson, A., Grgic, M., Leiros, H. S. DNA binding with a minimal scaffold: structure-function analysis of Lig E DNA ligases. Nucleic Acids Res. 46 (16), 8616-8629 (2018).
- Lohman, G. J., et al. A high-throughput assay for the comprehensive profiling of DNA ligase fidelity. Nucleic Acids Res. 44 (2), e14(2016).
- Kim, J., Mrksich, M. Profiling the selectivity of DNA ligases in an array format with mass spectrometry. Nucleic Acids Res. 38 (1), e2(2010).
- Tang, Z. W., et al. Real-time monitoring of nucleic acid ligation in homogenous solutions using molecular beacons. Nucleic Acids Res. 31 (23), e148(2003).
- Yang, W. Nucleases: diversity of structure, function and mechanism. Q Rev Biophys. 44 (1), 1-93 (2011).
- Marti, T. M., Fleck, O. DNA repair nucleases. Cell Mol Life Sci. 61 (3), 336-354 (2004).
- Wang, B. B., et al. Review of DNA repair enzymes in bacteria: With a major focus on AddAB and RecBCD. DNA Repair. 118, 103389(2022).
- Pidugu, L. S., et al. Structural insights into the mechanism of base excision by MBD4. J Mol Biol. 433 (15), 167097(2021).
- Roberts, R. J. How restriction enzymes became the workhorses of molecular biology. Proc Natl Acad Sci U S A. 102 (17), 5905-5908 (2005).
- Miller, J. C., et al. An improved zinc-finger nuclease architecture for highly specific genome editing. Nat Biotechnol. 25 (7), 778-785 (2007).
- Kim, H., Kim, J. S. A guide to genome engineering with programmable nucleases. Nat Rev Genet. 15 (5), 321-334 (2014).
- Takemoto, N., Numata, I., Su'etsugu, M., Miyoshi-Akiyama, T. Bacterial EndoMS/NucS acts as a clamp-mediated mismatch endonuclease to prevent asymmetric accumulation of replication errors. Nucleic Acids Res. 46 (12), 6152-6165 (2018).
- Reardon, J. T., Sancar, A. Molecular anatomy of the human excision nuclease assembled at sites of DNA damage. Mol Cell Biol. 22 (16), 5938-5945 (2002).
- Kunkel, T. A., Soni, A. Exonucleolytic proofreading enhances the fidelity of DNA synthesis by chick embryo DNA polymerase-gamma. J Biol Chem. 263 (9), 4450-4459 (1988).
- Sheppard, E. C., Rogers, S., Harmer, N. J., Chahwan, R. A universal fluorescence-based toolkit for real-time quantification of DNA and RNA nuclease activity. Sci Rep. 9 (1), 8853(2019).
- Li, J. J., Geyer, R., Tan, W. Using molecular beacons as a sensitive fluorescence assay for enzymatic cleavage of single-stranded DNA. Nucleic Acids Res. 28 (11), e52(2000).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat Meth. 9 (7), 671-675 (2012).
- Sharma, J. K., et al. Methods for competitive enrichment and evaluation of superior DNA ligases. Meth Enzymol. 644, 209-225 (2020).
- Rzoska-Smith, E., Stelzer, R., Monterio, M., Cary, S. C., Williamson, A. DNA repair enzymes of the Antarctic Dry Valley metagenome. Front Microbiol. 14, 1156817(2023).
- Williamson, A., Pedersen, H. Recombinant expression and purification of an ATP-dependent DNA ligase from Aliivibrio salmonicida. Protein Expres Purif. 97 (0), 29-36 (2014).
- Akey, D., et al. Crystal structure and nonhomologous end-joining function of the ligase component of Mycobacterium DNA ligase D. J Biol Chem. 281 (19), 13412-13423 (2006).
- Kim, D. J., et al. ATP-dependent DNA ligase from Archaeoglobus fulgidus displays a tightly closed conformation. Acta Crystallogr Sect F Struct Biol Cryst Commun. 65, Pt 6 544-550 (2009).
- Nishida, H., Kiyonari, S., Ishino, Y., Morikawa, K. The closed structure of an archaeal DNA ligase from Pyrococcus furiosus. J Mol Biol. 360 (5), 956-967 (2006).
- Gundesø, S., et al. R2D ligase: Unveiling a novel DNA ligase with surprising DNA-to-RNA ligation activity. Biotechnol J. 19 (3), e2300711(2024).
- Hendling, M., Barišić, I. In silico design of DNA oligonucleotides: Challenges and approaches. Comput Struct Biotechnol J. 17, 1056-1065 (2019).
- Green, M. R., Sambrook, J. How to win the battle with RNase. Cold Spring Harb Prot. 2019 (2), 10.1101/pdb.top101857 (2019).
- Summer, H., Grämer, R., Dröge, P. Denaturing urea polyacrylamide gel electrophoresis (Urea PAGE). J Vis Exp. (32), e1485(2009).
- Smith, D. R. Gel Electrophoresis of DNA. Mol Biometh Handbook. , Humana Press. Totowa, NJ. 17-33 (1998).
- Lorenz, T. C. Polymerase chain reaction: basic protocol plus troubleshooting and optimization strategies. J Vis Exp. (63), e3998(2012).
- Rousseau, M., et al. Characterisation and engineering of a thermophilic RNA ligase from Palaeococcus pacificus. Nucleic Acids Res. 52 (7), 3924-3937 (2024).
- Kestemont, D., Herdewijn, P., Renders, M. Enzymatic synthesis of backbone-modified oligonucleotides using T4 DNA ligase. Curr Prot Chem Biol. 11 (2), e62(2019).
- Farell, E. M., Alexandre, G. Bovine serum albumin further enhances the effects of organic solvents on increased yield of polymerase chain reaction of GC-rich templates. BMC Res Notes. 5, 257(2012).
- Nazarenko, I., Pires, R., Lowe, B., Obaidy, M., Rashtchian, A. Effect of primary and secondary structure of oligodeoxyribonucleotides on the fluorescent properties of conjugated dyes. Nucleic Acids Res. 30 (9), 2089-2195 (2002).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
